Explorează Resurse
Figuri interactive, tabele cu valori, imagini explicate și alte resurse utile: apasă pe fiecare structură ca să o înveți, apoi exersează și testează-te.
- 1Introducere în anatomie și fiziologiePaginile 1 - 11
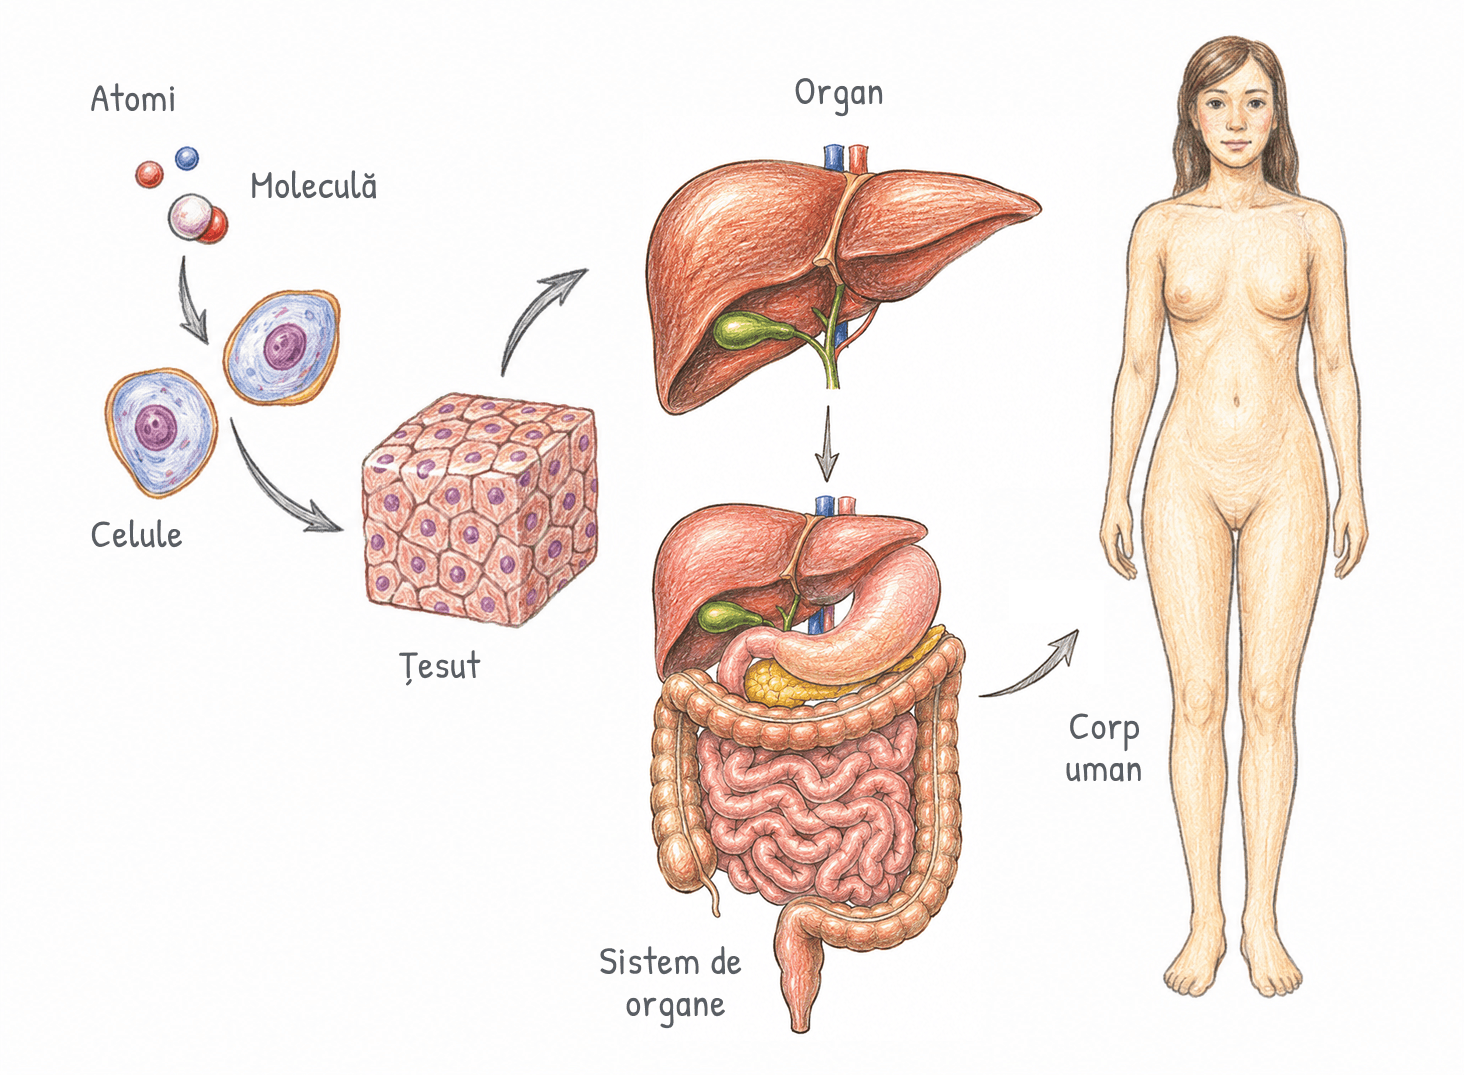
Fig. 1.1 · Biologie Barron's · p. 2
Nivelurile de organizare structurală a corpului umanFigura urmărește nivelurile de organizare structurală ale corpului uman, de la cel mai simplu la cel mai complex. Fiecare nivel se construiește din elementele nivelului anterior, iar săgețile arată această trecere: atomi → moleculă → celule → țesut → organ → sistem de organe → corp uman. Citirea începe din colțul din stânga sus, cu atomii și molecula de sub ei. De acolo, săgețile coboară la cele două celule și apoi la blocul de țesut, urcă la organul din partea de sus a figurii, coboară la sistemul de organe de sub el și ajung, în dreapta, la corpul uman întreg. Cele șapte niveluri Atomii formează cel mai simplu nivel. Sunt particule electronomicroscopice de materie, unități ale elementelor precum oxigenul, carbonul, azotul sau sodiul. Moleculele se formează prin combinarea atomilor între ei. Dintre moleculele importante din corpul uman fac parte apa, clorura de sodiu, proteinele, glucidele și lipidele. Celula ia naștere prin asocierea mai multor molecule și este unitatea fundamentală a organismelor vii. Cele două celule din figură au fiecare câte un nucleu. Celula conține structuri subcelulare precum nucleul, mitocondriile, ribozomii și lizozomii, iar o celulă tipică, cu organitele ei, apare în Figura 3.5. Celulele nervoase, musculare și sanguine sunt exemple de celule din organismul uman, fiecare cu structură și funcție unică. Țesutul este un grup de celule cu structură similară, care funcționează împreună și îndeplinesc aceeași funcție. În figură, el apare ca un bloc de celule asemănătoare, strânse unele lângă altele. Organismul are patru tipuri principale de țesuturi: țesutul epitelial (precum epidermul din piele), țesutul conjunctiv (precum sângele și țesutul osos), țesutul muscular și țesutul nervos, fiecare cu rolurile lui în organism. Toate patru sunt recapitulate în Figura 4.6. Organul este compus din două sau mai multe tipuri diferite de țesuturi și funcționează ca un centru anatomic și fiziologic specializat pentru o anumită activitate. Organul desenat în figură este ficatul. Manualul dă ca exemplu stomacul, compus din țesut epitelial, muscular, nervos și conjunctiv. Sistemul de organe este compus din mai multe organe cu funcții complementare, cum sunt sistemul digestiv, respirator, nervos și circulator. Figura ilustrează sistemul digestiv, în care ficatul se recunoaște din nou, în partea de sus, deasupra intestinelor. Organismul, reprezentat în figură de corpul uman întreg, se formează prin funcționarea împreună a tuturor sistemelor. Reține ambele formulări ale manualului: sistemul de organe este „nivelul final de organizare structurală”, iar organismul este „cel mai înalt nivel de organizare”. Sistemul digestiv în Tabelul 1.1 Sistemele de organe sunt prezentate în Tabelul 1.1 al manualului, fiecare cu rolul fiziologic și componentele lui majore. Rolul sistemului digestiv este digestia alimentelor și absorbția nutrienților solubili din hrana ingerată, iar componentele lui majore sunt dinții, glandele salivare, esofagul, stomacul, intestinele, ficatul și pancreasul. Așa se explică săgeata dintre organ și sistemul de organe: ficatul este unul dintre organele care, împreună, alcătuiesc sistemul digestiv. Organele acestui sistem sunt prezentate în detaliu în Figura 18.1.

Fig. 1.2 · Biologie Barron's · p. 6
Poziția anatomică și termenii direcționaliFigura prezintă poziția anatomică și câțiva termeni direcționali, cuvintele cu care anatomia arată unde se află o parte a corpului față de alta. Panoul (a) redă corpul în poziția de referință. În panoul (b), același corp este întors ușor spre stânga imaginii, astfel că se văd și fața lui, și o parte laterală. Pe trunchi se întâlnesc trei linii cu săgeți, câte una pentru fiecare pereche de direcții opuse, iar pe membre sunt indicate puncte proximale și distale. (a) Poziția anatomică Punctul de referință pentru toți termenii direcționali este poziția anatomică. Corpul stă în ortostatism (poziție verticală), cu privirea înainte, picioarele apropiate, membrele superioare pe lângă corp, palmele înainte și policele orientat spre exterior. Manualul subliniază, într-o casetă „De reținut”, că această poziție este baza întregii terminologii direcționale. Axa verticală: superior și inferior Săgeata verticală cu două vârfuri, trasă de-a lungul trunchiului, reprezintă prima pereche. Superior (cranial, cefalic): direcția orientată spre partea de sus a corpului sau înspre cap. De exemplu, nasul este situat superior față de gură. Termenii „cefalic” și „cranial” sunt folosiți câteodată în locul lui „superior”. Aceeași direcție este marcată încă o dată lângă cap, sub numele „cranial”. Inferior (caudal): direcția orientată spre partea opusă capului sau spre partea de jos a corpului. De exemplu, abdomenul este situat inferior față de torace. „Caudal” este o expresie alternativă, rar folosită în anatomia omului, deoarece omul nu are coadă. Axa dintre față și spate: ventral și dorsal Linia orizontală care străbate trunchiul are câte o săgeată la fiecare capăt. Ventral (anterior): săgeata plină, îndreptată spre stânga imaginii, încotro privește omul din desen. În poziție anatomică, fața anterioară este cea orientată spre partea din față a corpului. Termenul „anterior” este adesea înlocuit cu „ventral”, deși „ventral” se referă la partea abdominală a patrupedelor, cum este câinele. Dorsal (posterior): continuarea punctată a liniei, spre dreapta. Fața posterioară este partea din spate a corpului. Termenul „posterior” poate fi înlocuit cu „dorsal”. Față de linia mediană: medial și lateral A treia săgeată, cea de jos, are două vârfuri: unul pe linia mediană a trunchiului, celălalt spre partea laterală a corpului. Medial: o direcție apropiată de linia mediană a corpului sau a uneia dintre structurile sale. De exemplu, nasul este situat medial față de ochi. Lateral: poziția îndepărtată de linia mediană. De exemplu, ochii sunt situați lateral față de nas. Cele două exemple descriu aceeași pereche, nasul și ochii, din ambele sensuri, pentru că acești termeni compară poziția unei structuri cu a alteia. Pe membre: proximal și distal Pe membre, reperul este locul în care membrul se atașează de trunchi. Perechea apare de două ori în figură, o dată pe membrul superior și o dată pe cel inferior. Proximal: un punct orientat spre locul de atașare al unei extremități de trunchi. Pe membrul superior este marcat brațul, lângă umăr, iar pe cel inferior, zona genunchiului. Distal: un punct situat la distanță de locul de atașare. Pe membrul superior este marcată mâna, iar pe cel inferior, glezna. Exemplele din text se potrivesc cu membrul inferior din desen: femurul, mai apropiat de trunchi decât glezna, este proximal, iar glezna este situată distal față de femur. Alți termeni direcționali Textul de lângă figură mai definește două perechi care nu apar în desen: Ipsilateral și controlateral: structuri aflate de aceeași parte a corpului, respectiv de partea opusă. Colonul ascendent și vezica biliară sunt ipsilaterale, iar colonul ascendent și colonul descendent sunt situate controlateral. Superficial și profund: o poziție mai aproape de suprafața corpului, respectiv mai îndepărtată de aceasta. Pielea este superficială față de mușchi, iar inima este situată profund comparativ cu mușchii. Toți acești termeni sunt adunați, cu definiții și exemple, în Tabelul 1.2.

Fig. 1.3 · Biologie Barron's · p. 8
Cele trei planuri ale corpului umanÎn corpul uman se pot imagina numeroase suprafețe drepte, numite planuri. Ele traversează corpul și oferă puncte de reper pentru organele acestuia. Figura prezintă cele trei planuri importante, trasate prin corpul unui om aflat în picioare, cu membrele superioare pe lângă trunchi. Corpul este văzut la un unghi, așa că fiecare plan apare ca un dreptunghi în perspectivă, care îl străbate și iese de o parte și de alta a lui. Două dintre planuri sunt verticale, iar unul este orizontal. Ca să le deosebești, urmărește ce două părți ale corpului desparte fiecare plan: dreapta de stânga, partea anterioară de cea posterioară sau partea superioară de cea inferioară. Termenii direcționali folosiți aici sunt prezentați în Figura 1.2. Planul sagital (albastru) Este un plan vertical care împarte corpul într-o parte dreaptă și una stângă. Un plan sagital poate fi de două feluri: Planul mediosagital divide corpul în două jumătăți egale, stângă și dreaptă. Planul parasagital divide corpul în două jumătăți inegale (stângă și dreaptă). În figură, planul sagital străbate trunchiul din față în spate, pe mijlocul pieptului și al abdomenului, așa că împarte corpul în jumătăți egale: este un plan mediosagital. Planul frontal sau coronal (verde) Ca și planul sagital, are o direcție verticală, însă divide corpul într-o parte anterioară (ventrală) și una posterioară (dorsală). În figură, el traversează corpul dintr-o parte în alta, prin dreptul umerilor. Planul frontal formează un unghi drept cu planul sagital: în desen, cele două suprafețe verticale se încrucișează perpendicular, în interiorul corpului. Planul transversal sau orizontal (violet) Este singurul plan orizontal și împarte corpul într-o parte superioară și una inferioară. În figură, trece la nivelul taliei și taie atât trunchiul, cât și ambele antebrațe. Pentru a fi studiate, organele se pot secționa în plan transversal. Secțiunile obținute astfel se numesc secțiuni transversale.

Fig. 1.4 · Biologie Barron's · p. 9
Cavitățile principale ale corpului și subdiviziunile lorCavitățile corpului sunt spații care conțin organele interne. Figura prezintă corpul în secțiune sagitală, adică tăiat de un plan vertical care îl împarte într-o parte dreaptă și una stângă. Așa se pot urmări, de sus până jos, cele două cavități principale, cu subdiviziunile și conținutul lor. Corpul este desenat din profil, cu fața spre dreapta. Spatele, adică fața posterioară (dorsală) a corpului, se află deci în stânga desenului, iar fața anterioară (ventrală) în dreapta. Pe aceste două fețe se află cele două cavități principale, cavitatea posterioară (dorsală) și cavitatea anterioară (ventrală). În această figură, cavitatea dorsală este colorată în albastru. Cavitatea ventrală are două culori, verde pentru cavitatea toracică și violet pentru cavitatea abdomino-pelviană. Cavitatea posterioară (dorsală) Se află de-a lungul suprafeței posterioare a corpului. În desen, pornește din cap și coboară fără întrerupere de-a lungul spatelui. Cuprinde două componente: Cavitatea craniană ocupă interiorul capului și adăpostește encefalul. Canalul rahidian, delimitat de vertebre, adăpostește măduva spinării. În desen, este tubul îngust care coboară de-a lungul spatelui, încadrat de șirul vertebrelor. Encefalul și măduva spinării alcătuiesc împreună sistemul nervos central. Măduva spinării este o continuare a encefalului și se extinde în jos prin canalul osos format de vertebre. Craniul protejează encefalul, iar coloana vertebrală protejează măduva spinării. Cavitatea dorsală adăpostește, așadar, sistemul nervos central. Cavitatea anterioară (ventrală) Este situată pe fața anterioară a corpului și ocupă trunchiul, în fața coloanei vertebrale. Prezintă două subdiviziuni importante, cavitatea toracică, sus, și cavitatea abdomino-pelviană, jos. Ele sunt separate de un mușchi de mari dimensiuni, cu formă de cupolă, diafragma. În desen, diafragma este peretele boltit în sus care închide cavitatea toracică pe dedesubt. Cavitatea toracică Este delimitată de coaste și mușchii intercostali. În interiorul ei, manualul deosebește trei cavități, pe care desenul nu le mai separă: Cavitățile pleurale, stângă și dreaptă, conțin fiecare câte un plămân. Cavitatea pericardică, situată medial față de cavitățile pleurale, adăpostește inima. Este un spațiu îngust, situat între foița viscerală și cea parietală a pericardului, membranele care învelesc inima. Cavitatea pericardică este localizată într-o regiune numită mediastin. Mediastinul conține toate componentele cavității toracice, cu excepția plămânilor: inima, timusul, esofagul, traheea, bronhiile, precum și vase sanguine și limfatice. Cum arată inima în mediastin, flancată de plămâni, se vede în Figura 15.1. Cavitatea abdomino-pelviană Este mai des întâlnită sub denumirea de cavitate peritoneală și conține organele interne abdominale și pelviene. În desen formează un singur spațiu, de sub diafragmă până în partea de jos a trunchiului, fără nicio linie între cele două subdiviziuni ale sale: Subdiviziunea abdominală, în partea superioară, cuprinde stomacul, intestinele, splina, ficatul și alte organe. Subdiviziunea pelviană, în partea inferioară, conține vezica urinară, anumite organe reproducătoare și rectul. Regiunile și membranele cavităților Diviziunile suplimentare ale cavității abdomino-pelviene determină nouă regiuni diferite, prezentate în Figura 1.5.
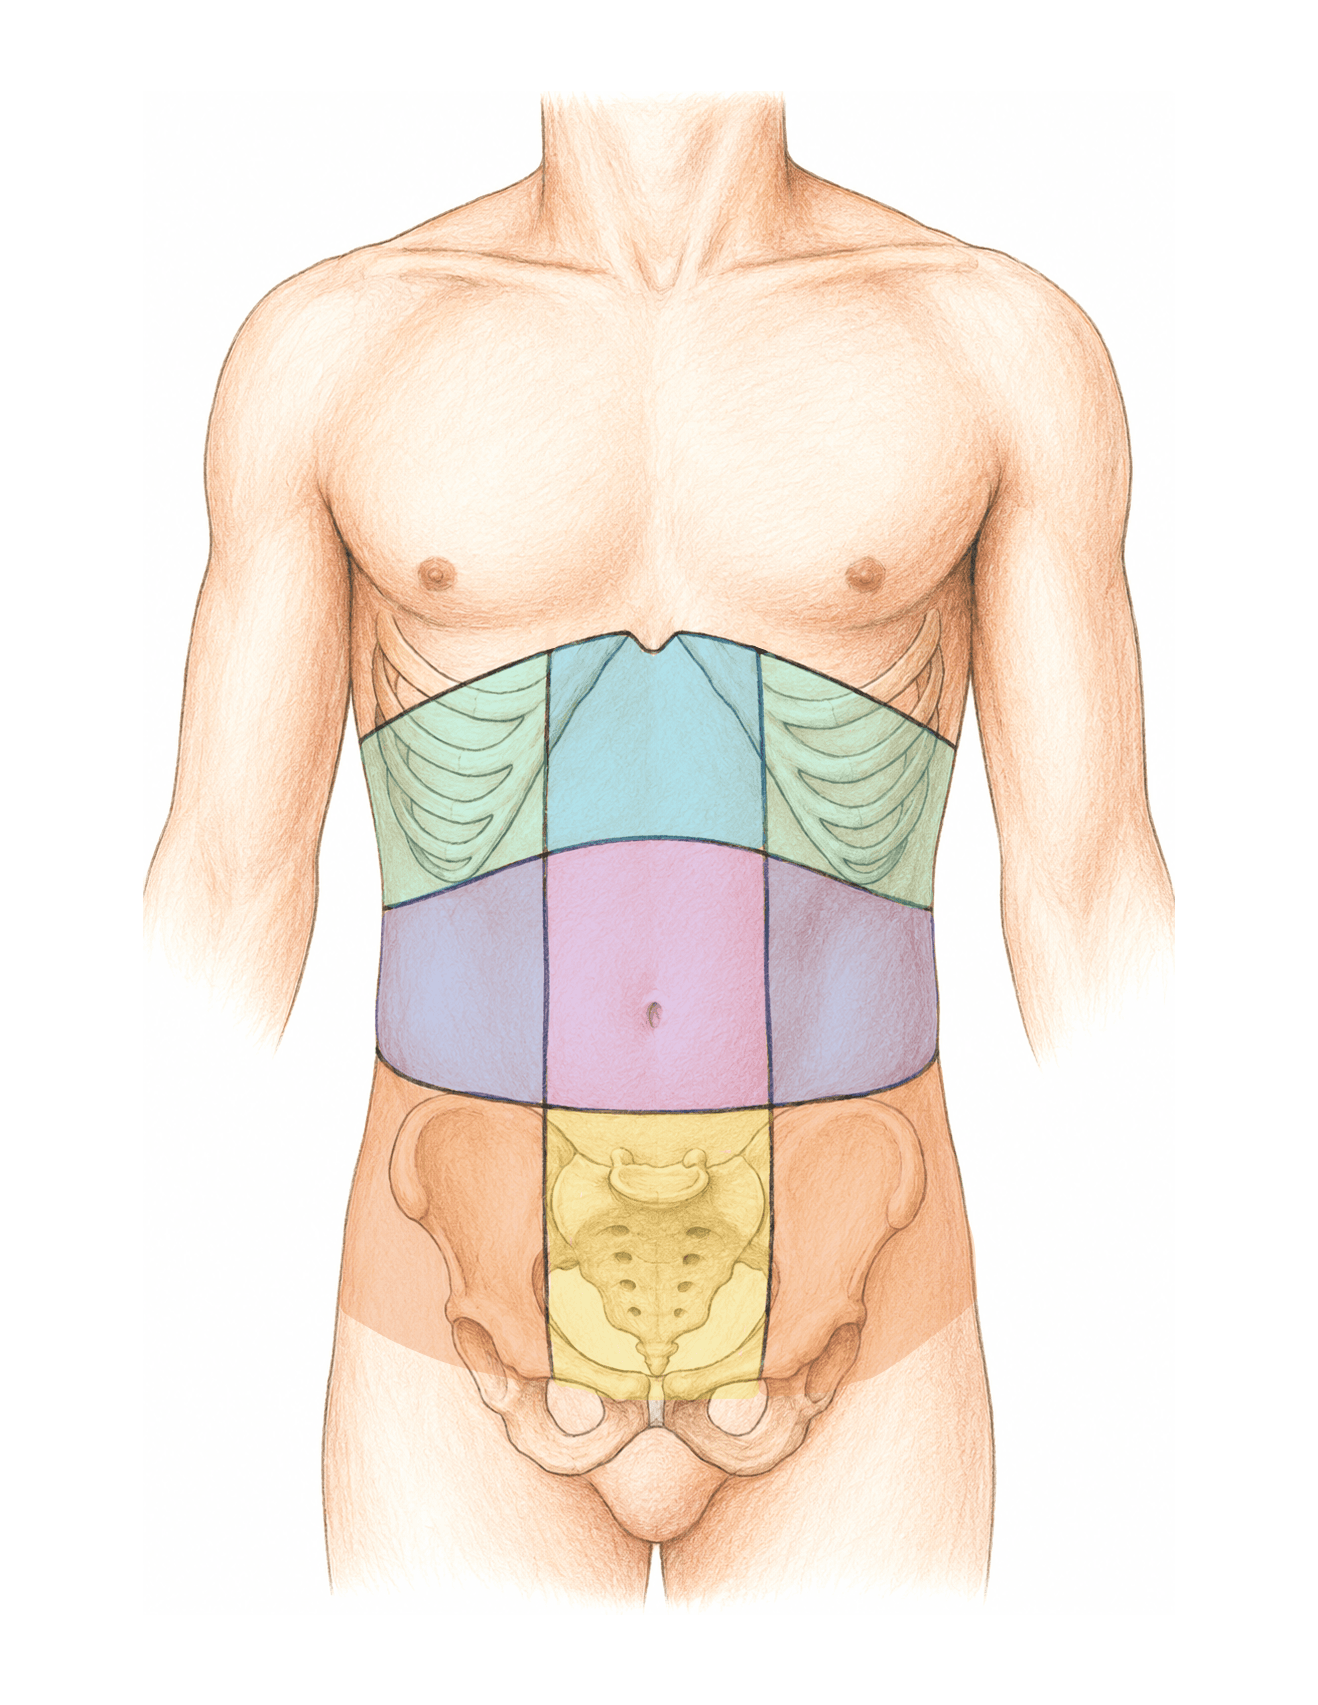
Fig. 1.5 · Biologie Barron's · p. 10
Regiunile cavității abdomino-pelvieneFigura arată împărțirea cavității abdomino-pelviene în nouă regiuni. Această cavitate este una dintre cele două subdiviziuni ale cavității ventrale, separată de cavitatea toracică prin mușchiul diafragmă, și conține organele interne abdominale și pelviene (Figura 1.4). Corpul este desenat din față, cu coastele și oasele bazinului vizibile prin transparență, ca repere. Liniile trasate peste abdomen formează o grilă cu trei rânduri și trei coloane, iar fiecare căsuță a grilei este o regiune. Atenție la „drept” și „stâng”: se referă la părțile persoanei desenate, nu la ale celui care privește. De aceea regiunile drepte apar în stânga figurii, iar cele stângi în dreapta. Poziția regiunilor se descrie cu termenii direcționali, care au ca reper poziția anatomică (Figura 1.2): superior înseamnă spre cap, inferior în partea opusă capului, iar lateral la distanță de linia mediană a corpului. Cel mai ușor le înveți pornind din centru, așa cum face și manualul: regiunile din coloana mijlocie se raportează la regiunea ombilicală, iar fiecare regiune laterală se raportează la vecina ei din coloana mijlocie. Rândul superior Regiunea epigastrică ocupă mijlocul rândului și se află superior față de regiunea ombilicală. În desen este chiar sub vârful unghiului format, pe linia mediană, de marginile coastelor din dreapta și din stânga. Hipocondrul drept și hipocondrul stâng se află lateral de regiunea epigastrică, câte unul de fiecare parte. În desen, peste aceste două regiuni se văd coastele inferioare. Rândul mijlociu Regiunea ombilicală se află în centrul abdomenului. Ocupă căsuța din mijlocul grilei, cu buricul desenat în interiorul ei. Flancul drept și flancul stâng se află lateral de regiunea ombilicală. În desen ocupă părțile laterale ale abdomenului dintre coaste și bazin, unde nu este desenat niciun os. Rândul inferior Regiunea hipogastrică, etichetată în figură „Hipogastrul”, se află imediat inferior față de regiunea ombilicală. În desen ocupă mijlocul bazinului, unde se vede osul sacru. Regiunile inghinale (iliace), dreaptă și stângă, se află lateral de regiunea hipogastrică. În figură sunt etichetate „Regiunea iliacă dreaptă” și „Regiunea iliacă stângă”, iar în desen fiecare se află în dreptul ilionului, partea superioară, lărgită, a osului coxal. Cele patru cadrane Manualul descrie și o a doua împărțire, pe care figura nu o desenează. Două linii imaginare, una orizontală și una verticală, se intersectează în centrul cavității abdomino-pelviene și delimitează alte patru regiuni, numite cadrane: cadranul superior drept, cadranul superior stâng, cadranul inferior drept și cadranul inferior stâng. Aceste denumiri sunt folosite curent în practica clinică.
- 2Bazele chimice ale anatomiei și fiziologieiPaginile 21 - 34
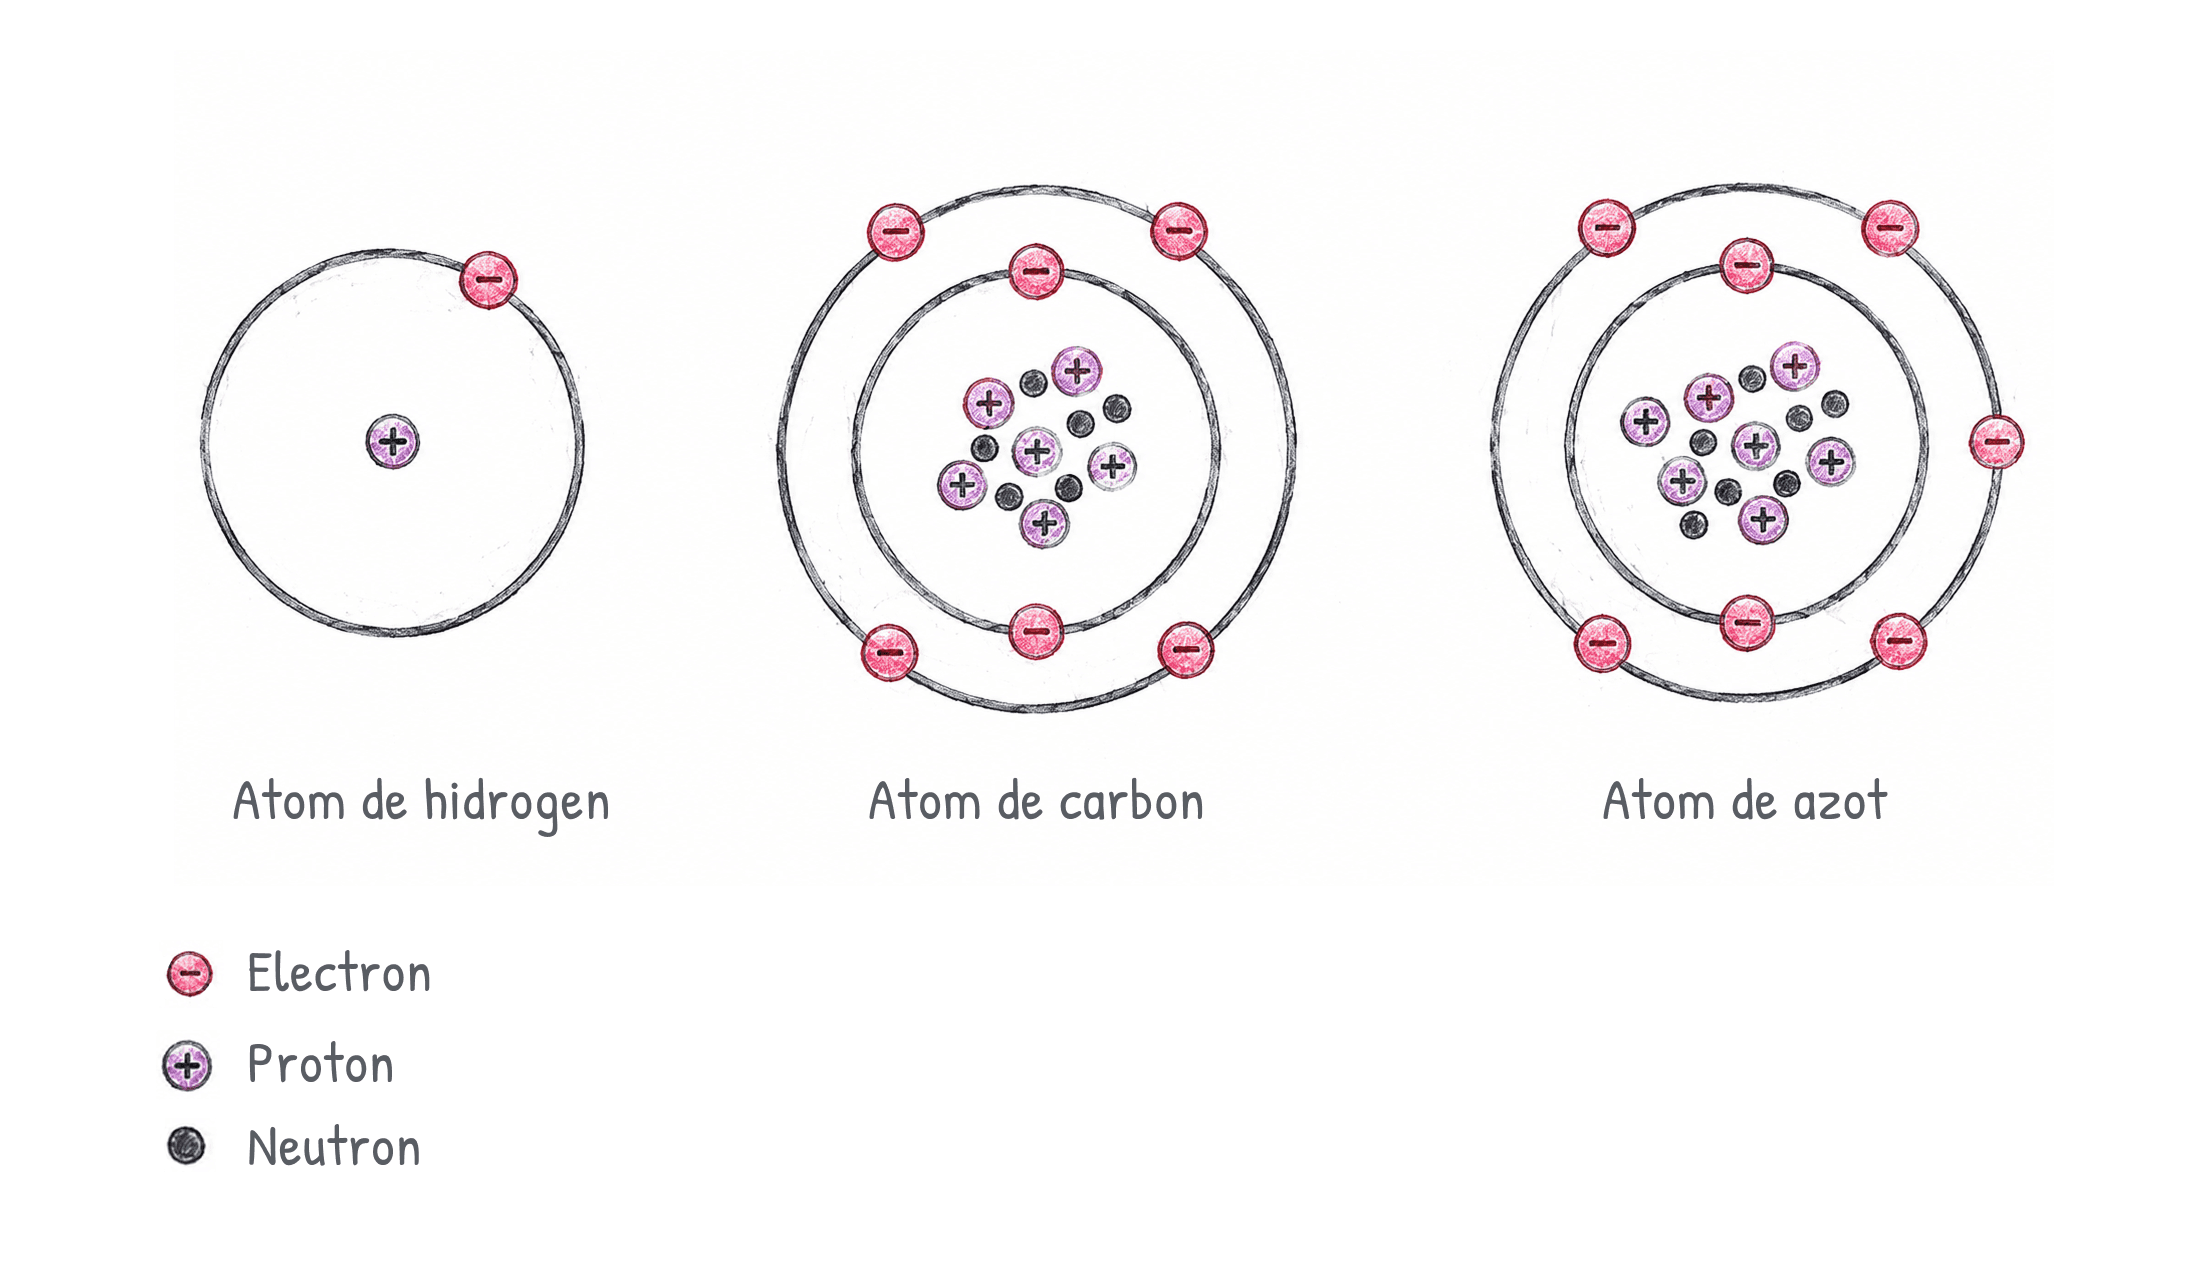
Fig. 2.1 · Biologie Barron's · p. 23
Structura atomului: hidrogen, carbon și azotElementele sunt compuse din atomi, cea mai mică parte dintr-un element care poate intra în combinații cu atomii altor elemente. Un atom nu poate fi spart în subunități mai mici fără a-și pierde proprietățile elementare. Figura prezintă, folosind același model, atomii a trei elemente: hidrogenul ($\ce{H}$), carbonul ($\ce{C}$) și azotul ($\ce{N}$). Legenda arată simbolul fiecăreia dintre cele trei particule esențiale ale atomului. În fiecare desen, nucleul este grupul de particule din centru, iar electronii sunt așezați pe cercurile din jurul lui. Particulele atomului Protonul (cerculețul cu semnul plus) este încărcat pozitiv, iar masa lui este de aproximativ 1835 de ori masa unui electron. Neutronul (cerculețul mic, fără niciun semn) nu este încărcat electric și are aceeași greutate ca protonul. Electronul (cerculețul cu semnul minus) este încărcat negativ și orbitează în jurul nucleului. Protonii și neutronii (nucleari) aderă strâns pentru a forma nucleul dens, încărcat pozitiv, al atomului. Traseele pe care electronii se învârt în jurul nucleului se numesc straturi și sunt desenate în figură ca cercuri concentrice. Cei trei atomi Numărul atomic al unui element reprezintă numărul de protoni dintr-un atom, iar numărul de masă (masa atomică) este suma protonilor și neutronilor. Numărând particulele din desen, afli ambele valori pentru fiecare atom: Atomul de hidrogen are un singur proton în nucleu, fără neutroni, și un singur electron pe unicul său strat. Numărul atomic și numărul de masă sunt amândouă 1. Atomul de carbon are 6 protoni și 6 neutroni în nucleu, deci numărul atomic 6 și numărul de masă 12. Cei 6 electroni sunt distribuiți pe două straturi, 2 pe stratul intern și 4 pe cel extern. Atomul de azot are 7 protoni și 7 neutroni în nucleu, deci numărul atomic 7 și numărul de masă 14. Cei 7 electroni sunt distribuiți tot pe două straturi, 2 pe stratul intern și 5 pe cel extern. Valorile 1, 12 și 14 sunt chiar masele atomice trecute pentru hidrogen, carbon și azot în Tabelul 2.1, de pe aceeași pagină. În fiecare atom desenat, numărul de electroni este egal cu numărul de protoni. În această stare, atomii sunt considerați neîncărcați (neutri). Stratul extern și stabilitatea atomului Distribuția electronilor este importantă pentru chimia atomului. Atomii sunt cel mai stabili atunci când pe stratul extern se află un număr complet de electroni: doi (pentru hidrogen și heliu) sau opt. Un element cu atomi ale căror straturi externe sunt complete este un element inert, deoarece nu intră în reacție cu alți atomi. Heliul, neonul și kryptonul sunt exemple de elemente inerte. Niciunul dintre cei trei atomi din figură nu are stratul extern complet: hidrogenul are pe el un singur electron în loc de doi, carbonul are patru, iar azotul cinci, în loc de opt. Un atom tinde să primească sau să cedeze electroni până când stratul extern este complet și atomul devine stabil. O reacție care se soldează cu pierderea de electroni se numește oxidare, iar una care are ca rezultat primirea de electroni se numește reducere. Cele două au loc împreună și se numesc reacții de oxido-reducere. Un atom care pierde sau primește electroni nu mai este neutru, ci se încarcă și devine ion. Ionul are sarcină pozitivă dacă are un proton în plus și sarcină negativă dacă are un electron în plus. Izotopii Numărul de protoni este același pentru toți atomii unui element, dar numărul de neutroni poate varia. Astfel de variante se numesc izotopi: au același număr atomic, dar masă atomică diferită. Izotopul de carbon $\ce{^{14}C}$, cu doi neutroni în plus față de atomul de carbon din figură, are tot numărul atomic 6, dar numărul de masă 14. Ce urmează: legăturile chimice Atomii se leagă în molecule prin legături chimice: se apropie până când straturile lor electronice se suprapun, apoi schimbă sau pun în comun electroni. În legătura ionică, electronii unui atom sunt cedați altui atom, iar ionii cu sarcini opuse care rezultă se atrag (Figura 2.2). În legătura covalentă, doi atomi pun în comun electroni, cum fac oxigenul și hidrogenul în molecula de apă, completându-și astfel straturile externe (Figura 2.3). Pentru că are doar patru electroni pe stratul extern, carbonul poate participa la o multitudine de legături covalente și se poate combina cu alți patru atomi sau grupuri de atomi.

Fig. 2.2 · Biologie Barron's · p. 24
Legătura ionică: formarea clorurii de sodiuFigura urmărește, pas cu pas, cum ia naștere o legătură ionică între un atom de sodiu ($\ce{Na}$) și unul de clor ($\ce{Cl}$). Se citește de la stânga la dreapta: întâi cei doi atomi neutri, cu săgeata curbată „Transfer de electroni” între ei, iar după săgeata dreaptă, în dreapta, cei doi ioni rezultați, însoțiți de semnul plus și, respectiv, de semnul minus, și numiți împreună clorură de sodiu. Fiecare atom este desenat ca în Figura 2.1: nucleul în mijloc, cu numărul de protoni (P) și de neutroni (N) scris înăuntru, iar electronii ca puncte pe straturile din jurul lui. Punctul de plecare: doi atomi neutri Sodiul are 11 protoni și 11 electroni, așezați pe trei straturi: 2, 8 și 1. Singurul electron de pe stratul extern este desenat chiar pe partea dinspre clor, acolo de unde pleacă săgeata. Clorul are 17 protoni și 17 electroni, tot pe trei straturi: 2, 8 și 7. Stratului extern îi lipsește un singur electron ca să ajungă la opt, iar în desen locul rămas liber se vede pe partea dinspre sodiu. La amândoi, numărul de protoni este egal cu cel de electroni, așa că atomii sunt neutri. Niciunul nu are însă stratul extern complet, iar atomii sunt cei mai stabili atunci când pe stratul extern se află un număr complet de electroni, doi (la hidrogen și heliu) sau opt. De aceea un atom tinde să primească sau să cedeze electroni până când stratul extern este complet și atomul devine stabil. Transferul de electroni Pentru a se forma o legătură, atomii trebuie să se apropie îndeajuns, astfel încât straturile lor electronice să se suprapună. Săgeata curbată arată ce se întâmplă atunci: electronul singuratic al sodiului este cedat clorului. Sodiul rămâne fără al treilea strat, iar stratul de dedesubt, cu opt electroni, devine noul lui strat extern, deja complet, așa că în desen ionul de sodiu apare mai mic, cu doar două straturi. Clorul își umple locul liber și ajunge și el la opt electroni pe stratul extern. Pentru sodiu, pierderea electronului este o oxidare, iar pentru clor primirea lui este o reducere, două tipuri de reacții care au loc împreună, ca reacții de oxido-reducere. Rezultatul: doi ioni cu sarcini opuse Nucleele au rămas neatinse, cu același număr de protoni, deci avem în continuare sodiu și clor. S-a rupt însă echilibrul dintre sarcini: Ionul de sodiu are 11 protoni și doar 10 electroni. Un proton în plus înseamnă o sarcină pozitivă, de unde notația $\ce{Na+}$. Ionul de clor are 17 protoni și 18 electroni. Un electron în plus înseamnă o sarcină negativă, de unde notația $\ce{Cl-}$. Atomii care pierd sau primesc electroni se încarcă și devin ioni. Ionii de sodiu, de calciu, de potasiu și multe alte tipuri de ioni sunt importanți în fiziologia umană. Legătura ionică propriu-zisă Cei doi ioni au sarcini electrice opuse, iar ionii cu sarcini opuse se atrag între ei. Chiar această atracție este legătura ionică, motiv pentru care ionii sunt desenați alături, uniți prin „și”, sub eticheta comună „Clorură de sodiu”: clorura de sodiu este formată din ioni de sodiu și de clor combinați exact în acest fel. În Tabelul 2.2, care compară cele trei tipuri de legături chimice (ionice, covalente și de hidrogen), legătura ionică are ca bază chimică atracția dintre ioni cu sarcini opuse, este trecută la legături puternice și are drept exemplu tocmai clorura de sodiu. Al doilea tip de legătură, cea covalentă, se formează altfel: atomii nu cedează electroni, ci pun în comun unul sau mai mulți (Figura 2.3).
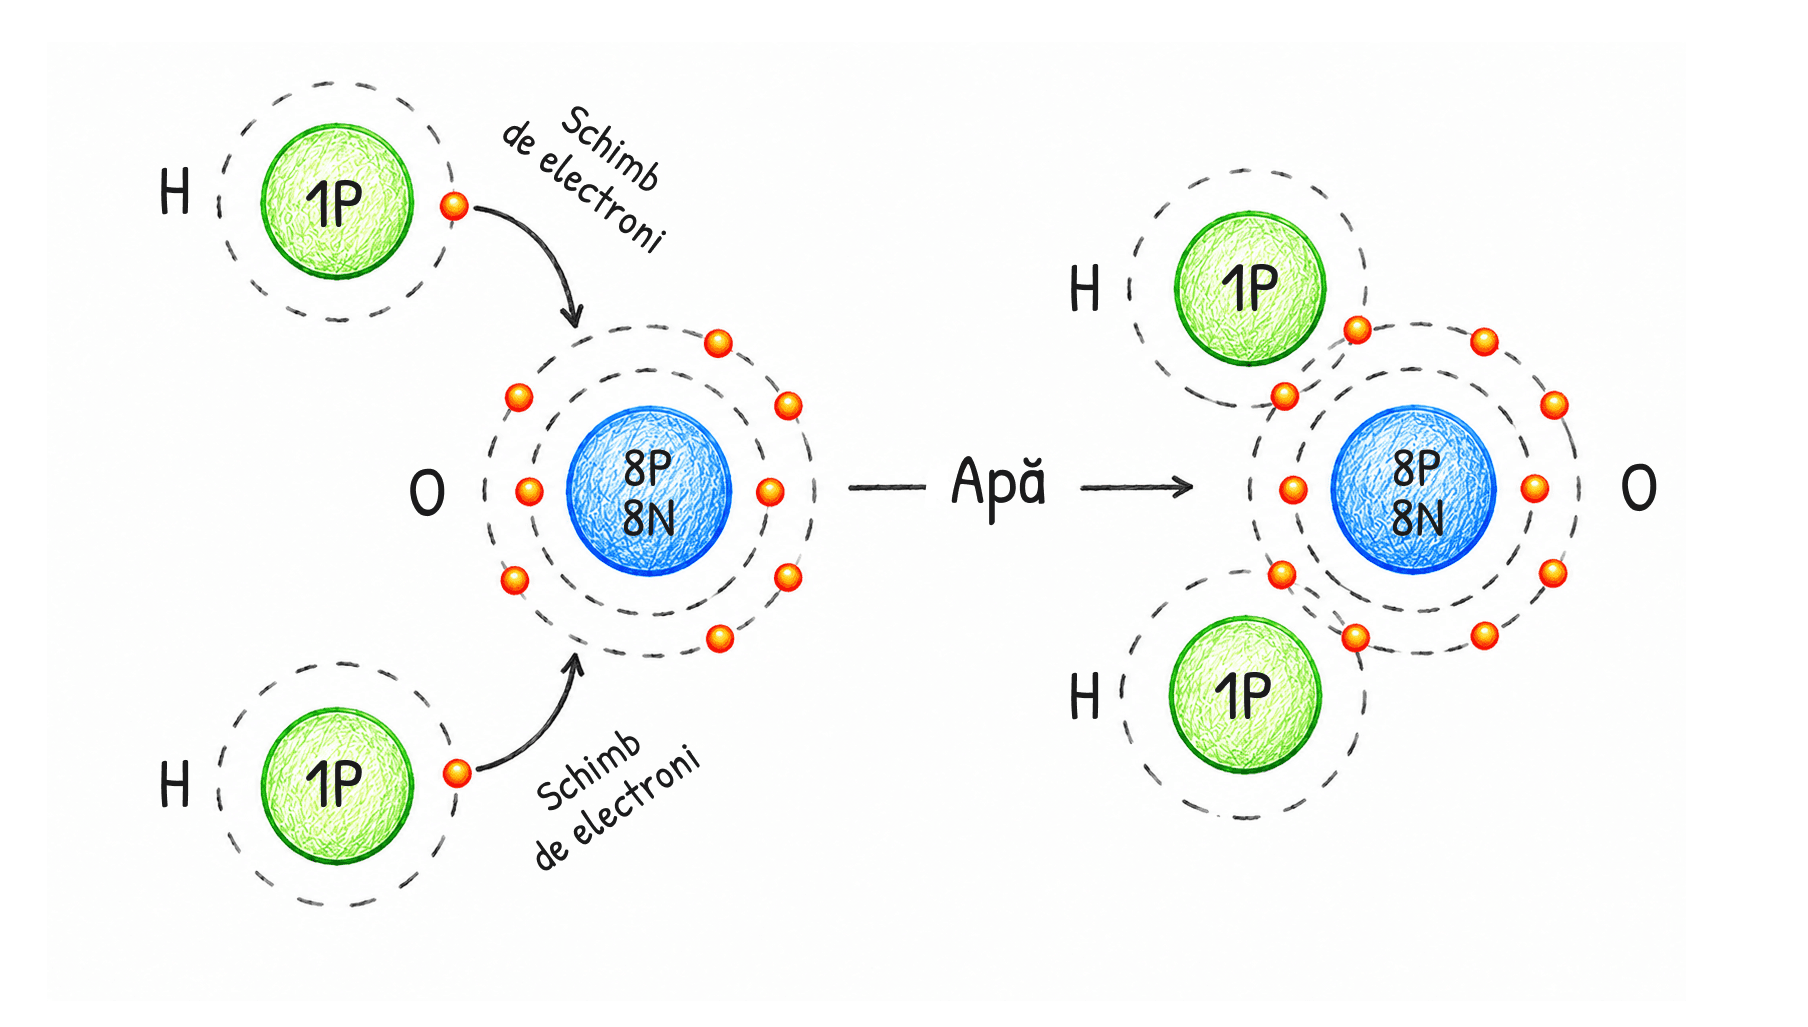
Fig. 2.3 · Biologie Barron's · p. 25
Legătura covalentă: formarea moleculei de apăFigura arată cum se formează o legătură covalentă, pe exemplul moleculei de apă ($\ce{H2O}$). Legătura covalentă este al doilea tip de legătură chimică din manual, după cea ionică, și se formează când doi atomi pun în comun unul sau mai mulți electroni. Desenul se citește de la stânga la dreapta: în stânga sunt trei atomi separați, doi de hidrogen ($\ce{H}$) și unul de oxigen ($\ce{O}$), iar săgeata marcată „Apă” duce la molecula pe care o formează împreună, în dreapta. Atomii sunt desenați după modelul din Figura 2.1. În centru se află nucleul, în care este notat câți protoni (P) și câți neutroni (N) conține. Cercurile din jurul lui sunt straturile pe care se învârt electronii, iar electronii sunt punctele mici de pe aceste cercuri. În stânga: atomii înainte de legătură Atomul de hidrogen are în nucleu un singur proton (notat „1P”) și un singur electron pe unicul său strat. Stratul hidrogenului este complet cu doi electroni, așa că fiecăruia dintre cei doi atomi de hidrogen îi lipsește un electron. Atomul de oxigen are în nucleu 8 protoni și 8 neutroni (notați „8P” și „8N”), iar în jur 8 electroni, așezați pe două straturi: 2 pe cel intern și 6 pe cel extern. Stratul extern este complet cu opt electroni, deci oxigenului îi lipsesc doi. Atomii sunt cei mai stabili atunci când pe stratul lor extern se află un număr complet de electroni. Legătura din figură le permite tuturor celor trei să ajungă în această stare. Săgețile „Schimb de electroni” Pentru a se lega, atomii trebuie să se apropie destul de mult încât straturile lor electronice să se suprapună. Săgețile curbe pornesc de la electronul fiecărui hidrogen și ajung la stratul extern al oxigenului. Cu toate că eticheta vorbește despre un schimb, hidrogenul nu îi cedează oxigenului electronul, ci îl pune în comun cu el: electronul hidrogenului formează o pereche cu unul dintre electronii oxigenului, iar perechea le aparține amândurora. Aici stă diferența față de legătura ionică din Figura 2.2, unde săgeata poartă eticheta „Transfer de electroni”: acolo electronul trece de la sodiu la clor, iar atomii devin ioni. În dreapta: molecula de apă Cercurile celor doi atomi de hidrogen se suprapun acum peste stratul extern al oxigenului. Electronii puși în comun sunt desenați exact în punctele în care cercurile se intersectează, adică pe ambele straturi în același timp. Dacă îi numeri, pe cercul fiecărui hidrogen sunt acum doi electroni, iar pe stratul extern al oxigenului sunt opt: cei 6 proprii și câte unul adus de fiecare hidrogen. Stratul extern al fiecărui atom s-a completat, exact cum spune legenda figurii, iar stratul intern al oxigenului, cu cei 2 electroni ai săi, a rămas neschimbat. Între oxigen și fiecare hidrogen se împarte o singură pereche de electroni, așa că molecula de apă are două legături simple. Când între doi atomi se împart două perechi, legătura este dublă. Pentru că este alcătuită din două tipuri de atomi, apa este un compus. Masa ei moleculară, 18, se poate calcula chiar din desen: oxigenul contribuie cu 16 (8 protoni și 8 neutroni), iar fiecare hidrogen cu 1 (un singur proton). Cele trei tipuri de legături chimice Manualul le rezumă în Tabelul 2.2: Ionică: atracția între ioni cu sarcini opuse. Este puternică (exemplu: clorura de sodiu). Covalentă: punerea în comun a perechilor de electroni între atomi. Este tot puternică (exemplu: legătura carbon-carbon). De hidrogen: atracții între părți ușor pozitive și părți ușor negative ale moleculelor. Este slabă (exemplu: coeziunea apei). Legăturile covalente din figură țin laolaltă atomii unei molecule de apă, iar legăturile de hidrogen țin împreună moleculele de apă între ele. Tot prin legături covalente se formează și molecula de metan ($\ce{CH4}$), în care carbonul își împarte electronii cu patru atomi de hidrogen. Carbonul are doar patru electroni pe stratul extern, așa că se poate combina cu alți patru atomi sau grupuri de atomi și participă la o multitudine de legături covalente.

Fig. 2.4 · Biologie Barron's · p. 27
Monozaharidele: glucoza, galactoza și fructozaFigura prezintă trei monozaharide, adică glucide simple (zaharide) alcătuite dintr-o singură unitate moleculară. Glucidele sunt compuse din carbon, hidrogen și oxigen, iar organismul le folosește atât ca materiale structurale, cât și ca sursă de energie. În panoul (a) este glucoza, în cele două forme ale ei, iar în panoul (b) alte două monozaharide. Toate moleculele sunt desenate atom cu atom: fiecare carbon al lanțului este scris separat, cu atomii și grupările legate de el, liniile dintre atomi sunt legăturile dintre ei, iar acolo unde apar două linii, ca la gruparea $\ce{C=O}$, legătura este dublă. (a) Cele două forme ale glucozei Glucoza ($\ce{C6H12O6}$) este cea mai frecvent întâlnită monozaharidă din corpul uman și combustibilul de bază al organismului. Ea se dizolvă în fluidele corpului și este transportată în toate celulele, unde este degradată chimic, eliberând energie. Cele două săgeți dintre desene, una spre dreapta și una spre stânga, arată că molecula trece dintr-o formă în cealaltă: Forma aciclică este un lanț deschis de șase atomi de carbon, cu atomi de hidrogen și grupări hidroxil ($\ce{-OH}$) legate de o parte și de alta a lanțului. Primul carbon, cel de sus, poartă gruparea $\ce{C=O}$. Forma ciclică apare când lanțul se închide într-un inel. Inelul este format din cinci atomi de carbon și un atom de oxigen, iar al șaselea carbon rămâne în afara lui, în gruparea $\ce{CH2OH}$ desenată deasupra. (b) Galactoza și fructoza Cele două monozaharide sunt desenate doar în formă aciclică și au aceeași formulă moleculară ca glucoza, $\ce{C6H12O6}$, adică același număr și același tip de atomi. Diferă doar felul în care atomii sunt aranjați în moleculă, iar moleculele aflate în această situație se numesc izomeri. Așezate lângă lanțul glucozei, cele două își arată deosebirile atom cu atom: Galactoza are gruparea $\ce{C=O}$ tot la capătul lanțului, ca glucoza. Se deosebește la al patrulea carbon, unde gruparea $\ce{-OH}$ este scrisă în stânga lanțului, nu în dreapta. Fructoza are gruparea $\ce{C=O}$ pe al doilea carbon, nu la capătul lanțului. Primul carbon poartă o grupare $\ce{-OH}$. Aranjamentul diferit nu este un simplu detaliu de desen, pentru că dispoziția atomilor în moleculă îi determină proprietățile. Raportul dintre hidrogen și oxigen În glucide, ponderea atomilor de hidrogen față de cei de oxigen este, de obicei, 2:1. Formula $\ce{C6H12O6}$ respectă exact această regulă: 12 atomi de hidrogen la 6 atomi de oxigen. Ce se construiește din monozaharide Glucidele sunt compuse din monozaharide. Două unități legate covalent formează o dizaharidă, iar în organismul uman sunt importante trei: maltoza, zaharoza și lactoza. Zaharoza, zahărul de masă, se obține prin unirea glucozei cu fructoza, iar lactoza, principala zaharidă din lapte, este compusă din glucoză și galactoză. Mai departe, din mii de unități glucidice se formează polizaharidele, cum este amidonul (Figura 2.5).

Fig. 2.5 · Biologie Barron's · p. 28
Dizaharidele și amidonulFigura arată cum se formează glucidele mai mari prin legarea între ele a monozaharidelor, zaharidele alcătuite dintr-o singură unitate moleculară, prezentate în Figura 2.4. Aici toate moleculele sunt desenate în forma lor inelară (ciclică), chiar și galactoza și fructoza, care în Figura 2.4 apar doar sub formă aciclică. Partea (a) conține trei reacții, câte una pe fiecare rând, care se citesc de la stânga la dreapta, în sensul săgeții. Partea (b) arată un fragment dintr-o moleculă de amidon. (a) Dizaharidele Dizaharidele sunt zaharuri compuse din două unități monozaharidice legate covalent una de cealaltă. Toate cele trei rânduri urmează aceeași schemă: în stânga săgeții sunt două monozaharide separate, iar în dreapta ei este dizaharida formată, în care cele două inele sunt unite printr-o punte de oxigen. Din fiecare reacție rezultă și o moleculă de apă ($\ce{H2O}$). Este același tip de reacție ca la formarea grăsimilor și a proteinelor, unde manualul o numește deshidratare: legătura covalentă se formează cu eliminarea unei molecule de apă. În organismul uman există trei dizaharide importante, câte una pe fiecare rând: Maltoza (primul rând) se formează din două molecule de glucoză. Rezultă din degradarea amidonului în intestin. Lactoza (al doilea rând) este compusă dintr-o moleculă de glucoză și una de galactoză, amândouă desenate în forma β. Este principala zaharidă din lapte și o sursă de energie. Zaharoza (al treilea rând), zahărul de masă, se formează prin unirea glucozei cu fructoza și este tot o sursă de energie. În desen, inelul fructozei are cinci colțuri, iar cel al glucozei șase, deși cele două au aceeași formulă moleculară, $\ce{C6H12O6}$. Sunt izomeri: aceiași atomi, aranjați diferit. (b) Polizaharidele: amidonul Glucidele compuse se numesc polizaharide și se formează prin combinații între diverse monozaharide. Printre cele mai importante polizaharide se numără amidonul, compus din mii de unități glucidice. Desenul arată doar câteva dintre ele, unite prin aceleași punți de oxigen ca în dizaharide. La fiecare capăt al lanțului apare câte o punte de oxigen fără inel după ea, semn că molecula se prelungește dincolo de desen. Lanțul nu este drept. De obicei, puntea de oxigen unește direct două inele vecine, dar în două locuri se prinde de gruparea $\ce{CH2}$ a unui inel, cea care la celelalte inele apare ca $\ce{CH2OH}$. Sus, așa se atașează lateral de lanț un inel, care formează o ramificație. În dreapta jos, tot printr-o grupare $\ce{CH2}$, lanțul coboară spre ultimele două inele. Amidonul este forma de depozitare a glucidelor întâlnită la plante. Mare parte din populația mondială își satisface nevoile energetice cu glucoza provenită din amidonul diverselor plante: orez, grâu, porumb, cartofi. Alte polizaharide, neilustrate în figură Glicogenul este compus tot din mii de unități glucidice, însă acestea se leagă într-un alt mod față de amidon. Este forma cea mai importantă de depozitare a glucozei în ficatul uman și în mușchii scheletici. Celuloza este alcătuită tot din unități glucidice, însă legăturile ei covalente nu pot fi rupte decât de câteva specii de microorganisme. Se găsește în pereții celulari ai plantelor și furnizează fibrele alimentare din organism. Oricât de mari ar fi, toate aceste glucide sunt compuse din monozaharide. În Tabelul 2.4, funcțiile lor majore sunt depozitul de energie și rolul structural, cu exemplele amidon, glicogen și celuloză. Drumul invers: digestia În timpul digestiei, aceste molecule sunt desfăcute înapoi în monozaharide. Amidonul este transformat în maltoză de amilaza salivară, în cavitatea orală, și de amilaza pancreatică, în intestinul subțire. Celulele intestinului subțire produc dizaharidaze (maltaza, lactaza și zaharaza), care descompun maltoza în glucoză, lactoza în glucoză și galactoză, iar zaharoza în glucoză și fructoză. Pentru aceste reacții este nevoie de apă: Figura 18.6 arată cum maltoza și o moleculă de apă dau două molecule de glucoză, adică primul rând al figurii de față, citit invers.
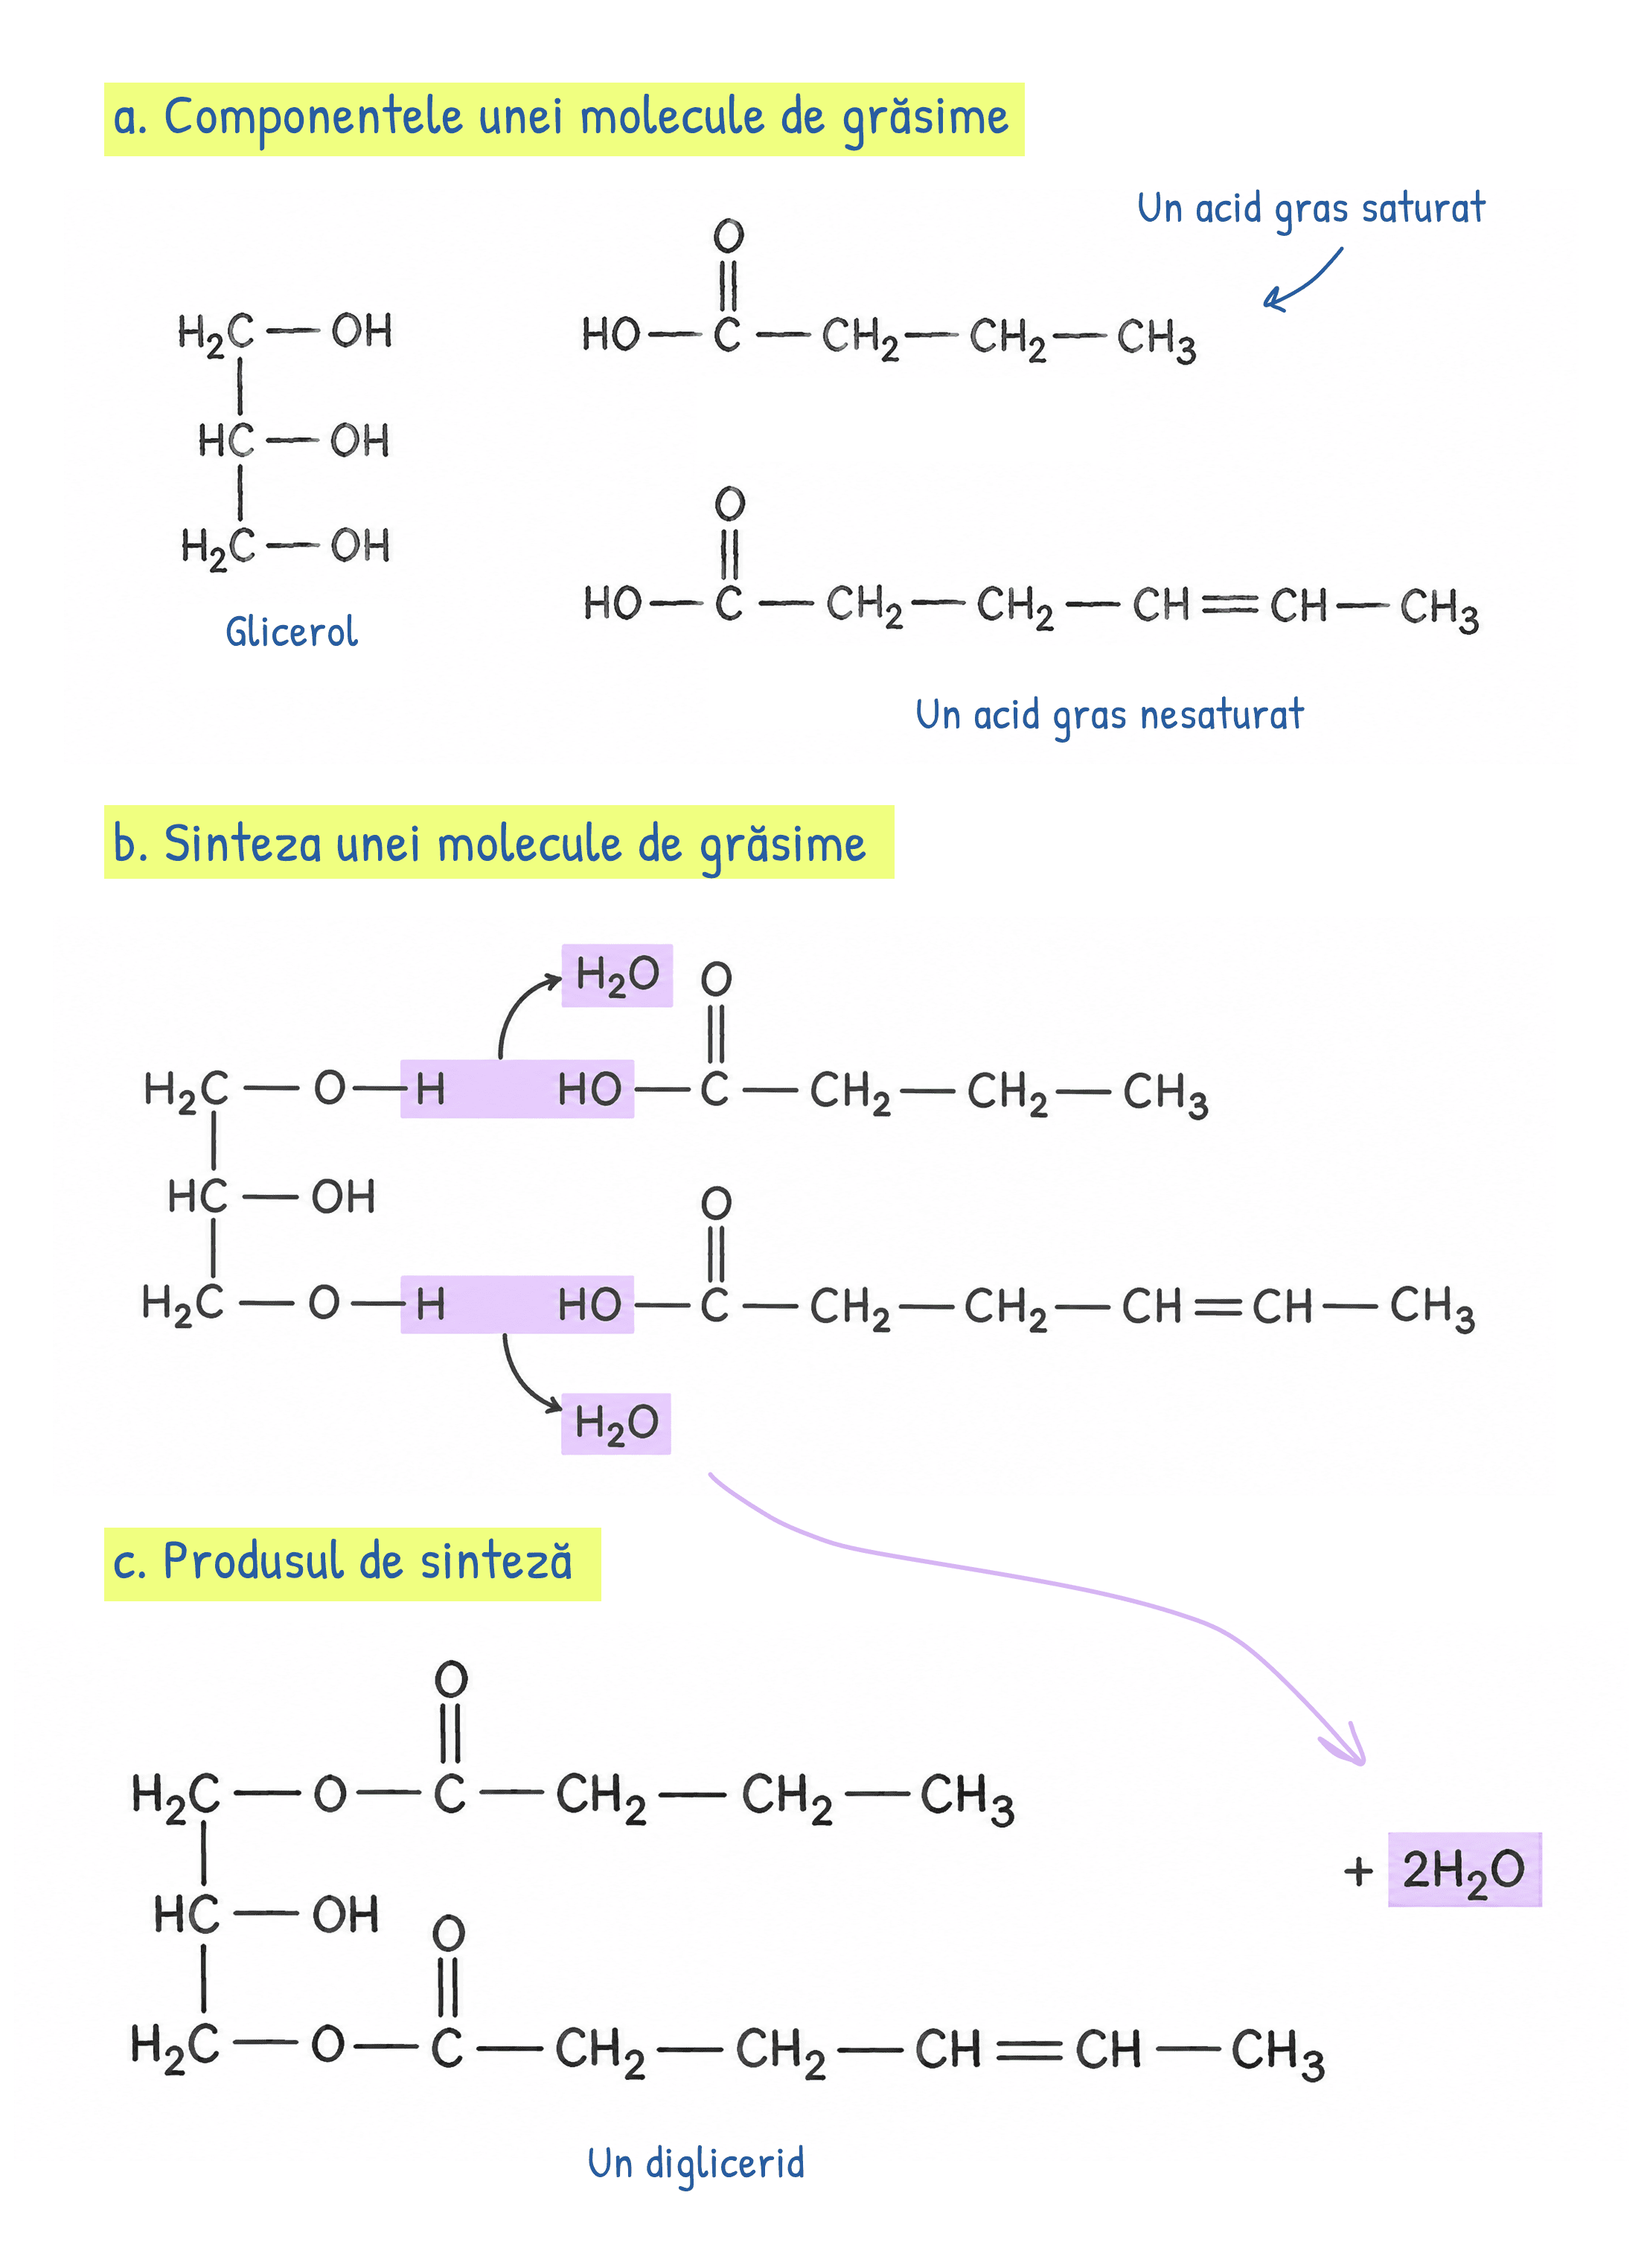
Fig. 2.6 · Biologie Barron's · p. 30
Sinteza unei grăsimi din glicerol și acizi grașiFigura arată cum se formează o grăsime, în trei panouri care se citesc de sus în jos: (a) moleculele de pornire, (b) reacția dintre ele și (c) molecula nou formată. Fiecare moleculă este scrisă cu simbolurile atomilor ei, iar liniile dintre simboluri sunt legăturile dintre atomi (o linie dublă înseamnă o legătură dublă). Grăsimile fac parte din lipide, molecule organice compuse din atomi de carbon, hidrogen și oxigen, la care raportul dintre atomii de hidrogen și cei de oxigen este mult mai mare decât la glucide. O grăsime este compusă dintr-o moleculă de glicerol și una, două sau trei molecule de acid gras, formând astfel mono-, di- sau trigliceride. (a) Componentele unei molecule de grăsime Glicerolul, în stânga, este o moleculă scurtă, cu trei atomi de carbon așezați unul sub altul, fiecare purtând câte o grupare $\ce{-OH}$. Acestea sunt cele trei locuri de care se pot lega acizii grași. Acidul gras conține un lanț lung de atomi de carbon, cu atomi de hidrogen asociați, și o grupare $\ce{-COOH}$ de acid organic, desenată la capătul din stânga al fiecărui acid. Numărul atomilor de carbon poate varia între 4 și 24. Acizii din figură sunt dintre cei mai scurți: cel saturat are 4 atomi de carbon, iar cel nesaturat are 6. Acidul gras saturat, desenat sus, nu are legături duble în lanțul de atomi de carbon. Acidul gras nesaturat, desenat jos, are una sau mai multe legături duble în moleculă, locuri în care se pot lega mai mulți atomi de hidrogen. O legătură dublă se formează când doi atomi împart două perechi de electroni, nu una singură. Acidul din figură are o singură legătură dublă ($\ce{CH=CH}$), deci este mononesaturat. Dacă ar avea două sau mai multe legături duble, s-ar numi polinesaturat. Observă că și acidul saturat are o legătură dublă, între carbon și oxigen ($\ce{C=O}$). Ea face parte din gruparea $\ce{-COOH}$, pe care o are orice acid gras, așa că deosebirea dintre acizii saturați și cei nesaturați se face după legăturile din lanțul de atomi de carbon. (b) Sinteza unei molecule de grăsime Acizii grași se leagă de glicerol printr-o reacție cu eliminare de apă, numită deshidratare, în timpul formării legăturii covalente. În panou, acidul saturat este așezat în dreptul grupării $\ce{-OH}$ de sus a glicerolului, iar cel nesaturat în dreptul celei de jos. Aceste două grupări sunt scrise aici desfăcut, $\ce{O-H}$, ca atomul de hidrogen care se desprinde să apară separat. Atomii evidențiați arată de unde provine apa: atomul de hidrogen din gruparea $\ce{-OH}$ a glicerolului și gruparea $\ce{-OH}$ din capătul acid al acidului gras se desprind împreună și formează o moleculă de $\ce{H2O}$, spre care duce săgeata curbă. Oxigenul rămas pe glicerol se leagă direct de atomul de carbon al grupării acide, iar această legătură covalentă prinde acidul gras de glicerol. Gruparea $\ce{-OH}$ din mijlocul glicerolului nu participă la reacție. (c) Produsul de sinteză Rezultatul este un diglicerid: glicerolul poartă acum doi acizi grași, fiecare legat printr-un atom de oxigen de câte un atom de carbon al glicerolului. În reacție s-au eliberat două molecule de apă, scrise $\ce{2H2O}$, câte una pentru fiecare acid gras legat. Glicerolul și acizii grași au fost reactanții, iar digliceridul și apa sunt produșii de reacție. Gruparea $\ce{-OH}$ din mijloc a rămas liberă. Dacă de ea s-ar lega și un al treilea acid gras, s-ar forma un triglicerid, iar cu un singur acid gras legat, molecula ar fi un monoglicerid. În structura unei grăsimi, acizii grași pot fi de același fel sau diferiți, așa cum se vede și aici: unul este saturat, iar celălalt nesaturat. Grăsimile în organism Depozitarea: animalele, inclusiv omul, depozitează grăsimile intracelular, la nivelul țesutului adipos, de obicei sub forma unor picături clare. Grăsimile de aici înmagazinează multă energie. Pe lângă rolul de depozit de energie, grăsimile au rol de izolare termică și de amortizare a șocurilor. Digestia: enzima numită lipază degradează grăsimile până la acizi grași și glicerol, adică înapoi la componentele din panoul (a) (Figura 18.6). Dieta: în anumite afecțiuni, este de preferat ca dieta să conțină acizi grași nesaturați, în locul celor saturați.
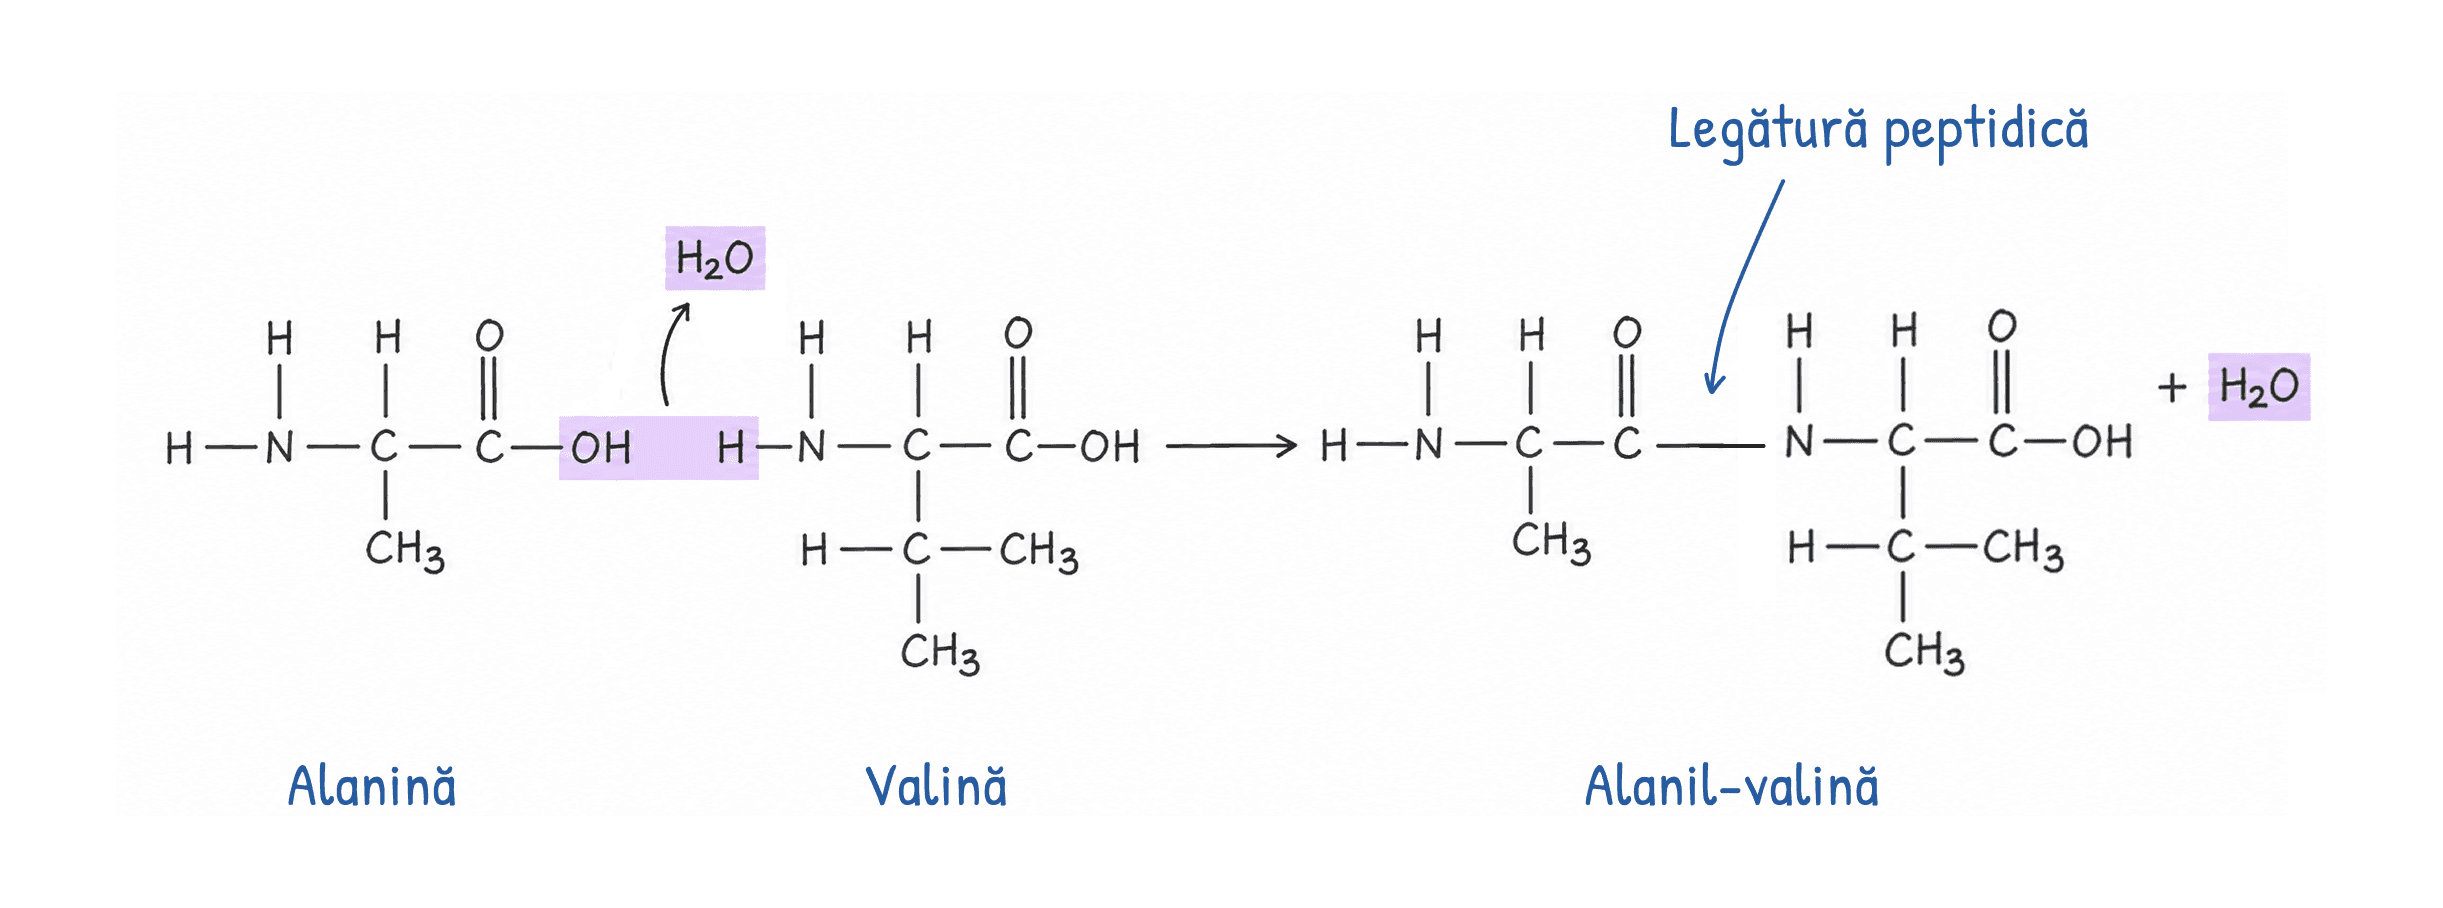
Fig. 2.7 · Biologie Barron's · p. 31
Legătura peptidică: formarea alanil-valineiFigura arată cum se leagă doi aminoacizi, unitățile din care sunt construite proteinele, pentru a forma o peptidă: alanil-valina. Desenul se citește de la stânga la dreapta, ca o reacție chimică. În stânga sunt reactanții, alanina și valina, iar săgeata orizontală duce la produșii de reacție din dreapta, alanil-valina și o moleculă de apă. Zonele evidențiate marchează atomii care se desprind din cei doi aminoacizi și apa pe care o formează, iar săgeata de deasupra produsului arată legătura nou formată. Cei doi aminoacizi Aminoacizii conțin atomi de carbon, hidrogen, oxigen și azot, iar câteodată și sulf sau fosfor. Există 20 de tipuri diferite, dar toate au aceeași alcătuire de bază, vizibilă la ambele molecule din stânga: Gruparea amino ($\ce{-NH2}$), desenată în capătul stâng al moleculei. Gruparea carboxil ($\ce{-COOH}$), numită și grupare acidă, desenată în capătul drept. Restul radical ($\ce{-R}$), prezent de regulă, atașat de carbonul din mijloc și desenat în jos. Aminoacizii se deosebesc între ei prin gruparea radical. Aranjamentul, tipul și numărul atomilor din ea conferă unicitate fiecărui aminoacid, exprimată prin tipurile de legături și gradul de aciditate sau alcalinitate. În figură se vede exact această diferență: alanina are ca radical o singură grupare $\ce{CH3}$, în timp ce valina are un radical mai ramificat, un carbon de care sunt legate două grupări $\ce{CH3}$. Alanina și valina se numără printre exemplele de aminoacizi date de manual, alături de acidul glutamic, triptofanul, tirozina și histidina. Formarea legăturii Zonele evidențiate arată ce se elimină: hidroxilul ($\ce{-OH}$) din gruparea carboxil a primului aminoacid (alanina) și atomul de hidrogen din gruparea amino a celui de-al doilea (valina). Săgeata curbă arată că cele două fragmente se unesc într-o moleculă de apă, deci reacția este o deshidratare. Tot printr-o deshidratare se leagă și acizii grași de glicerol în sinteza grăsimilor (Figura 2.6). Rămase fără acești atomi, gruparea amino a valinei și gruparea acidă a alaninei se leagă una de cealaltă. Legătura formată între cei doi aminoacizi, între carbonul grupării carboxil a alaninei și azotul grupării amino a valinei, se numește legătură peptidică. Legenda figurii precizează că este o legătură covalentă: cei doi atomi pun în comun electroni, iar legătura rezultată este una puternică (Figura 2.3). Produsul: alanil-valina Comparată cu reactanții, noua moleculă arată ce s-a pierdut: carbonul grupării carboxil a alaninei nu mai are hidroxilul, iar azotul valinei a rămas cu un singur atom de hidrogen. La capete, alanil-valina păstrează o grupare amino liberă (cea a alaninei) și o grupare carboxil liberă (cea a valinei). Fiecare dintre ele poate forma, în același fel, o nouă legătură peptidică cu un alt aminoacid, iar prin repetarea reacției se formează lanțuri lungi de aminoacizi. Proteinele sunt alcătuite din astfel de lanțuri, iar proteinele mici sunt deseori numite peptide. De ce contează Ordinea aminoacizilor din lanț nu este întâmplătoare: codul genetic din ADN, aflat în nucleul celulei, determină secvența de aminoacizi din proteina finală. În celulă, aminoacizii sunt legați între ei la ribozomi, iar lanțul peptidic se alungește cu câte un aminoacid (Figura 3.10). Corpul are nevoie de proteine pentru sinteza componentelor celulare, a hormonilor și a enzimelor, iar oasele, cartilajul, tendoanele și ligamentele conțin proteine în cantitate mare, ca material de suport și întărire. La nevoie, aminoacizii pot servi și ca sursă de energie, după ce ficatul le îndepărtează gruparea amino.

Fig. 2.8 · Biologie Barron's · p. 33
Structura dublu-helix a ADN-uluiFigura prezintă modelul propus în 1953 de biochimiștii James D. Watson și Francis H. C. Crick pentru structura ADN-ului (acidul dezoxiribonucleic), un model acceptat universal. Molecula este desenată ca o scară răsucită. Cele două benzi care se împletesc sunt cele două lanțuri (catene) de nucleotide, iar barele dintre ele sunt treptele scării, fiecare formată dintr-o pereche de baze azotate. În stânga sus, o nucleotidă este desenată separat, iar legenda din stânga, „Componentele ADN-ului”, explică literele și formele folosite în desen. Nucleotida, unitatea de bază Asemenea proteinelor, acizii nucleici sunt molecule foarte mari, alcătuite din multe subunități, numite nucleotide. Nucleotida desenată separat este cea încadrată cu linie punctată în prima treaptă a helixului, iar săgeata punctată arată de unde a fost scoasă. Are trei componente: Dezoxiriboza (S), glucida ADN-ului, o pentoză (glucidă cu 5 atomi de carbon). Gruparea fosfat (P), legată de dezoxiriboză. Baza azotată, o moleculă care conține azot și poartă acest nume pentru că are proprietăți bazice. În nucleotida din desen, baza este adenina (A), legată tot de dezoxiriboză. Componentele ADN-ului Legenda enumeră cele patru baze azotate ale ADN-ului: guanina (G), citozina (C), adenina (A) și timina (T). Adenina și guanina sunt molecule purinice, iar citozina și timina sunt molecule pirimidinice. Fiecare bază are capătul desenat în alt fel, iar ultimele două rânduri amintesc că P este gruparea fosfat și S este dezoxiriboza. Dezoxiriboza și timina sunt tocmai componentele care deosebesc ADN-ul de ARN. ARN-ul conține riboză în loc de dezoxiriboză și uracil în loc de timină. Cele două lanțuri Nucleotidele se leagă între ele și formează două lanțuri lungi, benzile notate la capetele de jos cu Lanțul 1 și Lanțul 2. Grupările fosfat leagă moleculele de dezoxiriboză una de cealaltă, formând așa-numitul „schelet” al lanțului. În partea de sus a desenului, pe ambele benzi, S și P se succed alternativ, iar bazele se prind de benzi în dreptul dezoxiribozei. Mai jos, benzile sunt desenate simplificat, fără litere. Bazele sunt îndreptate spre interior, precum treptele unei scări. Împerecherea bazelor Fiecare treaptă este formată din două baze, câte una de pe fiecare lanț. În ADN, adenina se împerechează cu timina, iar citozina cu guanina, așa că orice treaptă este fie o pereche A-T, fie o pereche G-C. Adenina și timina sunt complementare, ca și guanina și citozina, iar acest mod de aranjare constituie principiul complementarității bazelor. Formele din desen fac regula ușor de văzut: capătul rotunjit al adeninei intră în scobitura rotunjită a timinei, iar proeminența dreptunghiulară a guaninei intră în crestătura citozinei. Citite de la stânga la dreapta, cele 12 trepte din desen sunt, de sus în jos, A-T, G-C, T-A, C-G, iar acest grup de patru perechi se repetă de trei ori. Bazele celor două lanțuri sunt menținute împreună prin legături de hidrogen, legături slabe, desenate ca linii punctate între bazele fiecărei perechi. Eticheta „Legături de hidrogen” indică liniile punctate de la capătul adeninei din nucleotida desenată separat, prin care aceasta se leagă de timina de pe celălalt lanț. Dublul helix și codul genetic Cele două lanțuri se împletesc și formează un dublu helix, asemănător unei scări în spirală. Succesiunea bazelor de-a lungul lanțului dictează ordinea corectă a aminoacizilor din proteinele care urmează să fie sintetizate și reprezintă esența codului genetic. Prima etapă a sintezei proteice, transcripția, se bazează tot pe complementaritatea bazelor: o catenă de ARN mesager este sintetizată după bazele unei catene de ADN (Figura 3.9). ADN-ul se găsește în cei 46 de cromozomi ai nucleului celular (46 de molecule de ADN), este materialul din care sunt formate genele și are funcții de sinteză proteică și de transmitere a informației genetice. Legătura cu replicarea Pentru că fiecare bază are o singură parteneră posibilă, succesiunea de pe un lanț o stabilește pe cea de pe celălalt. Pe acest lucru se sprijină replicarea ADN-ului, care are loc înainte ca celula să se dividă: enzime specializate „desfac” dublul helix, bazele expuse de pe fiecare catenă își atrag nucleotidele complementare, iar enzima ADN polimerază le unește într-un șir lung de nucleotide. Fiecare nou dublu helix păstrează astfel câte o catenă veche, motiv pentru care procesul se numește replicare semiconservativă (Figura 2.9).
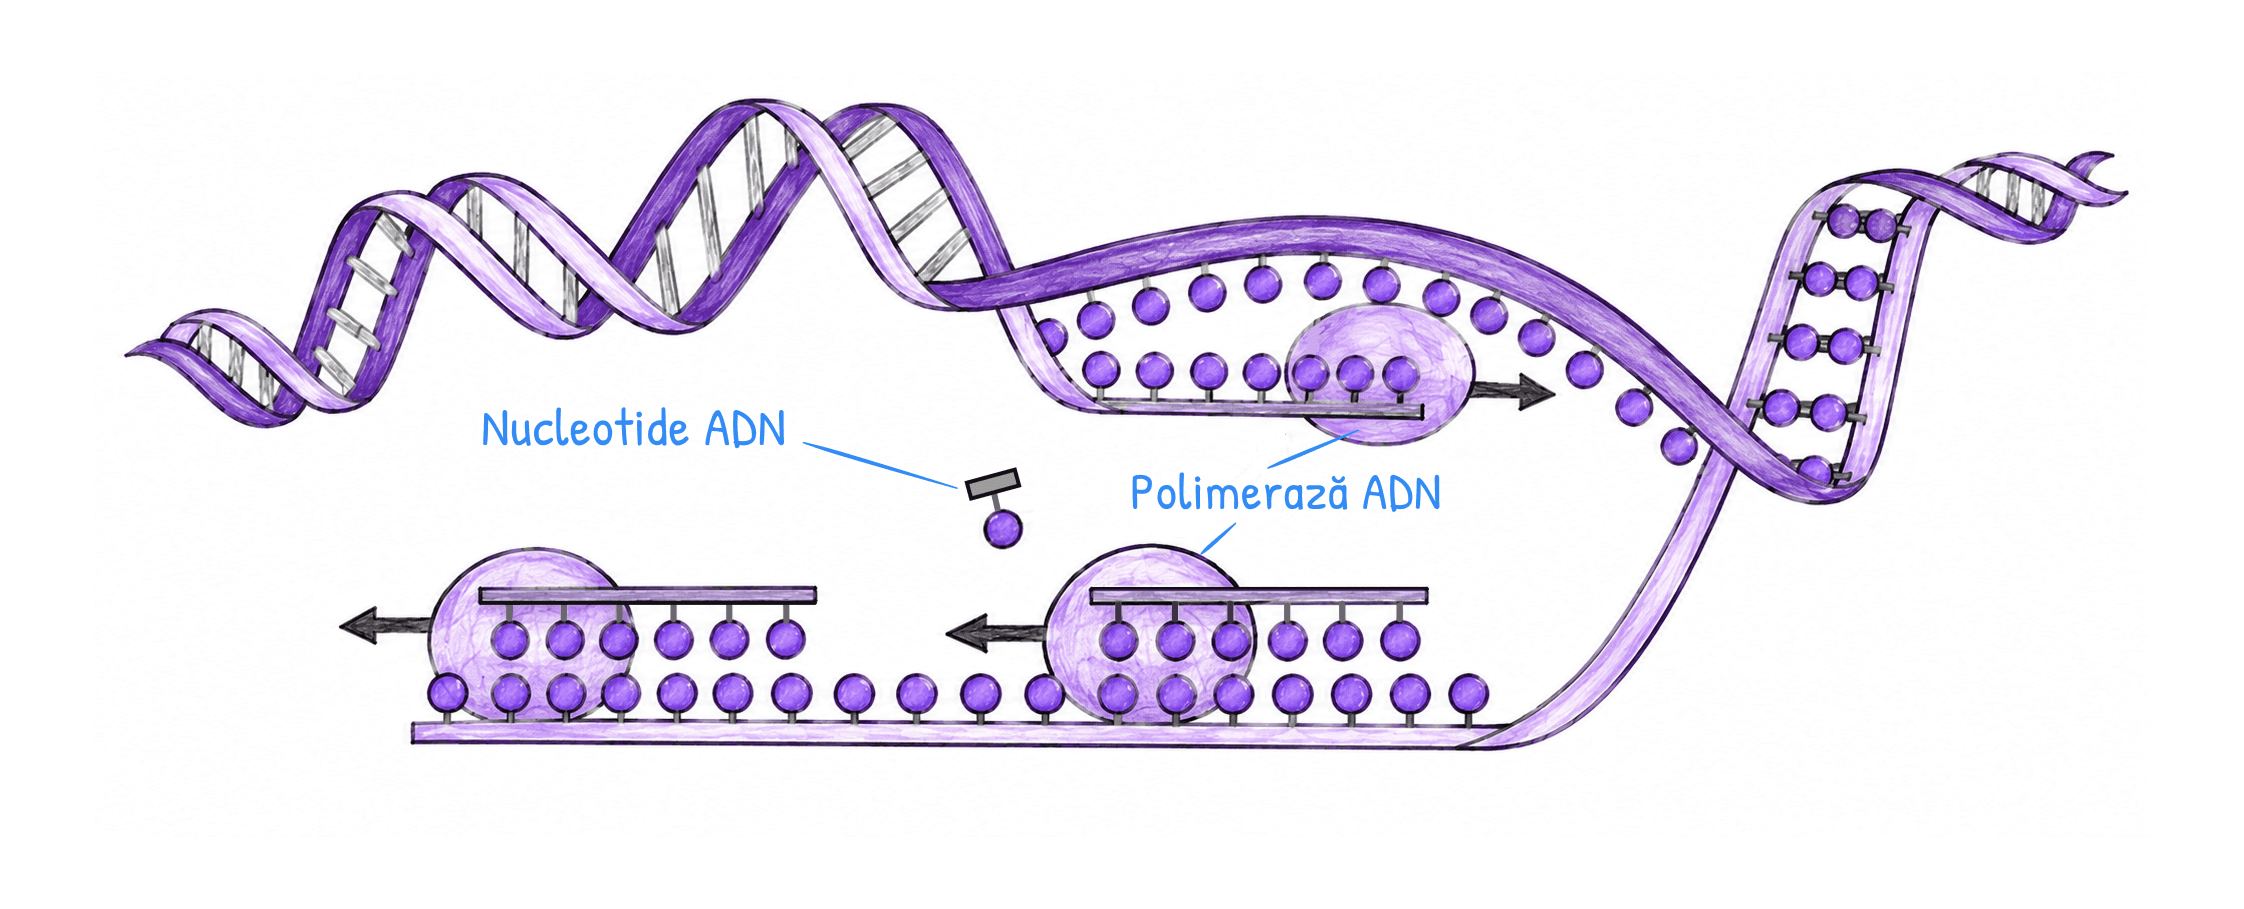
Fig. 2.9 · Biologie Barron's · p. 34
Replicarea ADN-uluiFigura surprinde o moleculă de ADN în plină replicare, procesul prin care ADN-ul se copiază înainte ca celula să se dividă. Ca în Figura 2.8, catenele sunt desenate ca panglici, iar acolo unde sunt răsucite, perechile de baze dintre ele apar ca treptele unei scări. Acolo unde helixul este desfăcut, nucleotidele apar ca bile prinse prin tije de catena lor. Atenție, figura se citește de la dreapta la stânga. În colțul din dreapta sus molecula este încă intactă, în mijloc cele două catene vechi sunt despărțite și fiecare își primește o catenă nouă, iar în stânga una dintre catenele vechi s-a răsucit deja, împreună cu catena ei nouă, într-un dublu helix. Dreapta: dublul helix se desface Capătul din dreapta sus este un dublu helix încă neatins: două catene răsucite una în jurul celeilalte, cu bazele ținute împreună prin legături slabe de hidrogen. Replicarea începe când enzime specializate rup sau „desfac” dublul helix. Aceste enzime nu sunt desenate, dar efectul lor se vede imediat spre stânga, unde catenele s-au despiralizat și au devenit drepte, ca laturile unei scări. Nucleotidele lor stau încă față în față, câte două pe fiecare treaptă. La baza acestei scări, catenele se despart de tot. Una pornește spre stânga pe deasupra, ca un arc, iar cealaltă coboară și se întinde de-a lungul marginii de jos a desenului. Pe măsură ce se separă, bazele purinice (adenina, guanina) și pirimidinice (citozina, timina) de pe fiecare catenă rămân expuse. Mijloc: fiecare catenă veche primește o catenă nouă Bazele expuse atrag din jur nucleotidele lor complementare și le fac să stea în opoziție: în dreptul unei adenine se așază o nucleotidă cu timină, în dreptul unei guanine, una cu citozină. O astfel de nucleotidă liberă este desenată între cele două catene, ca o bilă cu o tijă și o mică bucată de bară. Ca orice nucleotidă de ADN, ea conține dezoxiriboză, o grupare fosfat și o bază azotată. Enzima ADN polimerază, forma ovală mare care apare de trei ori în desen, unește componentele nucleotidice într-un șir lung de nucleotide. În urma ei rămâne catena nouă, o bară dreaptă de care atârnă nucleotidele împerecheate cu cele ale catenei vechi. Săgețile arată încotro înaintează fiecare enzimă: Pe catena veche de sus, cea în formă de arc, lucrează o singură enzimă, care înaintează spre dreapta, adică spre porțiunea care abia se desface. Catena nouă din spatele ei este lungă și continuă. În fața enzimei, bazele catenei vechi își așteaptă încă nucleotidele complementare. Pe catena veche de jos lucrează două enzime, care înaintează spre stânga. Aici catena nouă apare din două bucăți scurte, iar între ele, chiar sub nucleotida liberă, bazele catenei vechi nu și-au primit încă perechea. Stânga: un nou dublu helix Astfel, fiecare catenă veche determină sinteza unei noi catene, prin împerecherea bazelor complementare. Vechea catenă se unește apoi cu noua catenă și formează un dublu helix. Exact asta arată helixul din stânga: una dintre panglicile lui se continuă cu arcul catenei vechi de sus, iar cealaltă cu bara catenei noi de sub arc. Catena veche de jos va forma, împreună cu catena ei nouă, al doilea dublu helix, așa că din molecula inițială rezultă două noi dublu helixuri. De ce „semiconservativă” Fiecare dintre cele două molecule rezultate conține o catenă veche, păstrată din molecula inițială, și una nou sintetizată. Pentru că se conservă câte o catenă veche în fiecare nou dublu helix, procesul se numește replicare semiconservativă. Cum adenina se împerechează cu timina, iar citozina cu guanina, succesiunea bazelor de pe catena veche stabilește succesiunea de pe cea nouă. De aceea fiecare cromozom este copiat cu acuratețe. Când are loc replicarea ADN-ul se replică în interfază, mai precis în faza S a ciclului celular (Figura 3.7). În celulele umane se replică 46 de cromozomi, adică 46 de molecule de ADN. În faza G₁ fiecare cromozom are o singură cromatidă, iar după faza S are două cromatide, atașate la centromer. Cromozomii replicați se separă apoi, iar câte 46 trec în fiecare nouă celulă.
- 3Celulele și fiziologia celularăPaginile 45 - 63
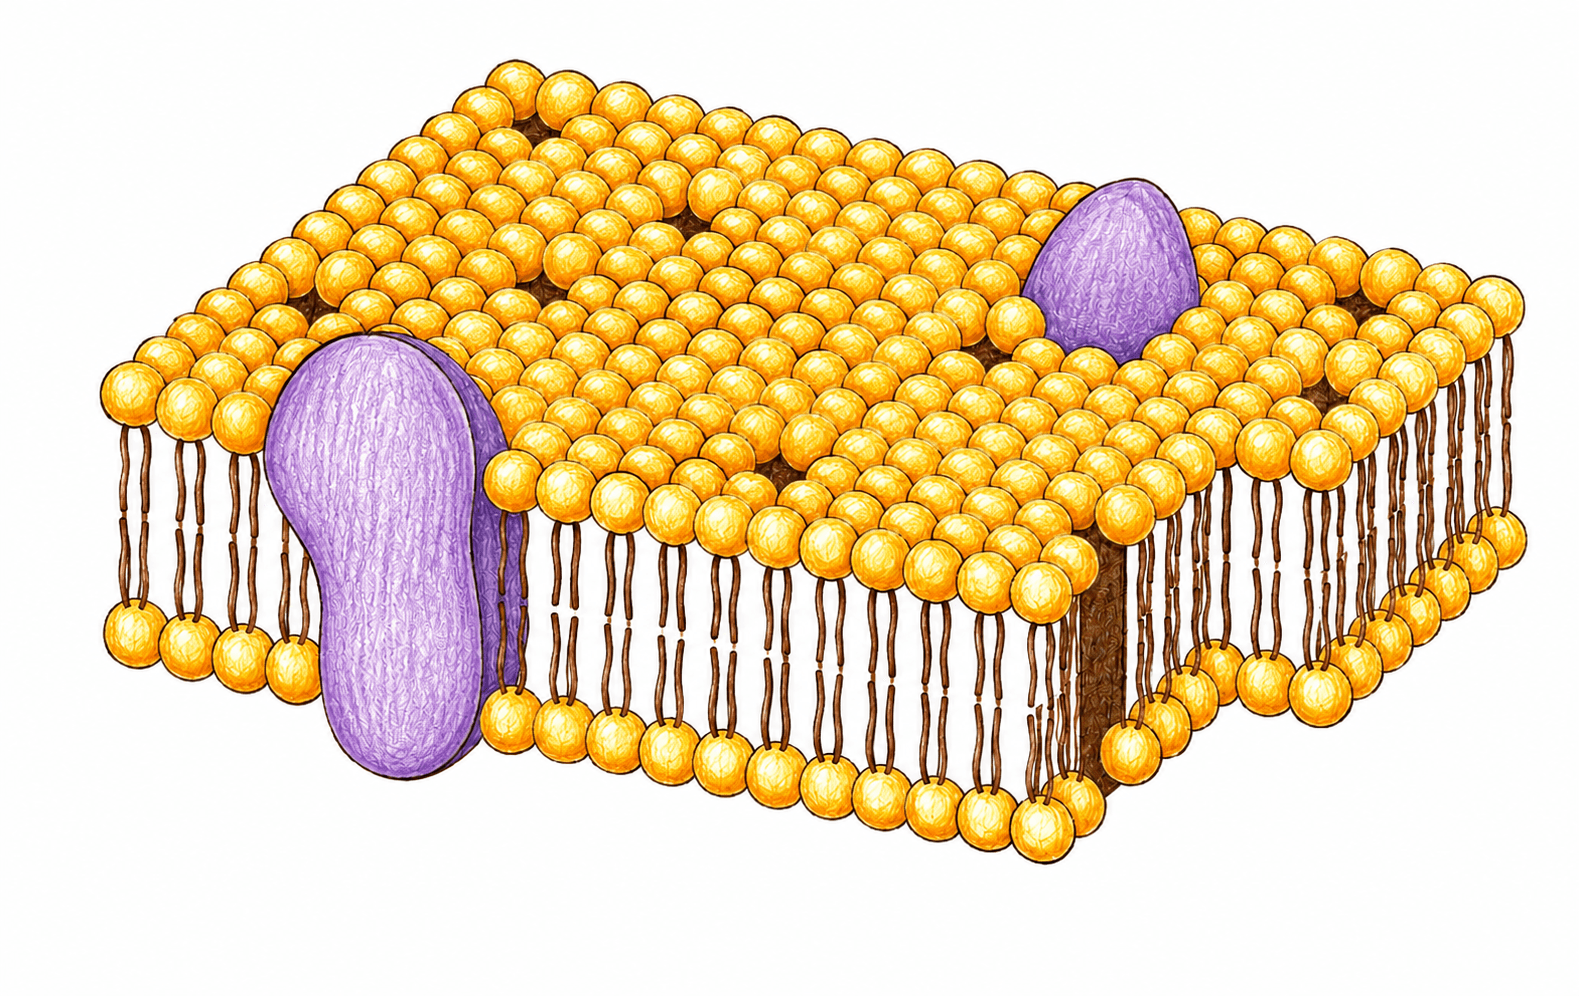
Fig. 3.1 · Biologie Barron's · p. 46
Modelul mozaicului fluid al membranei plasmaticeFigura arată un mic fragment de membrană plasmatică (numită și membrană celulară), membrana exterioară care delimitează celula și o separă de mediul extern. Fragmentul este desenat în perspectivă, ca un bloc: de deasupra i se vede suprafața, iar pe fețele tăiate, din față și din dreapta, i se vede grosimea. În Figura 3.5, aceeași membrană apare ca învelișul exterior al întregii celule. Membrana este alcătuită în principal din proteine și lipide, mai ales fosfolipide. Lipidele sunt așezate în două straturi (structură bistratificată), iar proteinele globulare încorporate în ele par să plutească printre lipide. De aceea spunem că membrana are o structură de mozaic fluid. Fosfolipidele și cele două straturi Fosfolipidele sunt lipide care conțin fosfor, iar rolul lor major este să formeze structura membranelor. În desen, fiecare moleculă de fosfolipid apare ca o bilă din care pornesc linii ondulate. Bila și liniile corespund celor două capete ale moleculei, care au proprietăți opuse: Capătul polarizat (bila) conține fosfor și este atras de apă, deci este hidrofil („îi place apa”). Capătul nepolarizat (liniile ondulate) este alcătuit din lanțuri de acizi grași. Interacționează cu alte substanțe nepolarizate și respinge moleculele de apă, deci este hidrofob („se teme de apă”). Datorită acestor proprietăți, membrana are o structură de „sandwich”. Stratul lipidic nr. 1 este cel de deasupra, a cărui suprafață acoperită de bile se vede în desen, iar stratul lipidic nr. 2 este cel de dedesubt, ale cărui bile se văd doar pe marginile tăiate. Bilele celor două straturi privesc spre cele două fețe ale membranei, unde intră în contact cu apa din exteriorul și din interiorul celulei, iar lanțurile de acizi grași stau față în față, în porțiunea internă a membranei. Figura nu arată care dintre straturi este cel dinspre exteriorul celulei. Tot datorită acestor proprietăți, membrana își poate mări suprafața atunci când veziculele aparatului Golgi fuzionează cu ea. Cele două straturi formează împreună un singur strat dublu de fosfolipide, în timp ce învelișul nuclear are două astfel de straturi duble. Proteinele globulare Proteinele din membrana plasmatică sunt de două feluri, transmembranare și periferice. După definițiile din manual, cele două proteine globulare din desen corespund acestor două feluri: Proteina transmembranară este cea mare din stânga. Ocupă întreaga grosime a membranei și proemină pe ambele fețe, ieșind deasupra stratului nr. 1 și sub stratul nr. 2. Proteinele transmembranare servesc drept canale pentru transportul membranar și pot servi, de asemenea, ca transportori ai moleculelor organice. Proteina periferică este cea în formă de cupolă din dreapta sus, așezată pe suprafața stratului nr. 1. Proteinele periferice se atașează pe suprafața membranei. Multe dintre ele acționează ca enzime, iar altele au rol în remodelarea celulară în timpul diviziunii și al contracțiilor celulare. Porii și canalul Pe suprafața stratului nr. 1, în golurile dintre bile, sunt răspândiți mici pori. Canalul este trecerea îngustă de pe fața din față a blocului, spre dreapta, care străbate membrana pe toată grosimea ei, de la bilele stratului nr. 1 până la cele ale stratului nr. 2. Manualul leagă canalele de proteinele transmembranare, despre care spune că servesc drept canale pentru transportul membranar. Componente care nu apar în desen Manualul mai descrie trei componente ale membranei, pe care desenul nu le arată: Glicolipidele sunt molecule din stratul lipidic situat spre exterior care au atașate molecule de glucide. Glicoproteinele sunt proteinele situate înspre mediul extern al celulei, cu care se asociază molecule de glucide. Glicolipidele și glicoproteinele din exteriorul celulelor le permit acestora să se recunoască una pe cealaltă și servesc ca receptori pentru moleculele semnalizatoare, precum hormonii. Colesterolul este un lipid prezent în membrană în cantități mari. El stabilizează lipidele din membrană și reduce fluiditatea membranei. Membrana semipermeabilă Membrana plasmatică este semipermeabilă, deoarece moleculele mici ($\ce{O2}$, $\ce{CO2}$ și apa) și lipidele pot aluneca printre moleculele fosfolipidice, în timp ce moleculele mari nu pot trece cu ușurință înspre sau dinspre celulă. În continuare, manualul descrie șase mecanisme prin care substanțele trec prin membrană: difuziunea, osmoza (Figura 3.2), difuziunea facilitată, transportul activ, endocitoza (Figura 3.3) și exocitoza. Proteinele membranei intervin în două dintre ele: în difuziunea facilitată lasă să treacă doar anumite molecule, iar în transportul activ transportă compușii chimici împotriva gradientului de concentrație, cu energie furnizată de ATP.
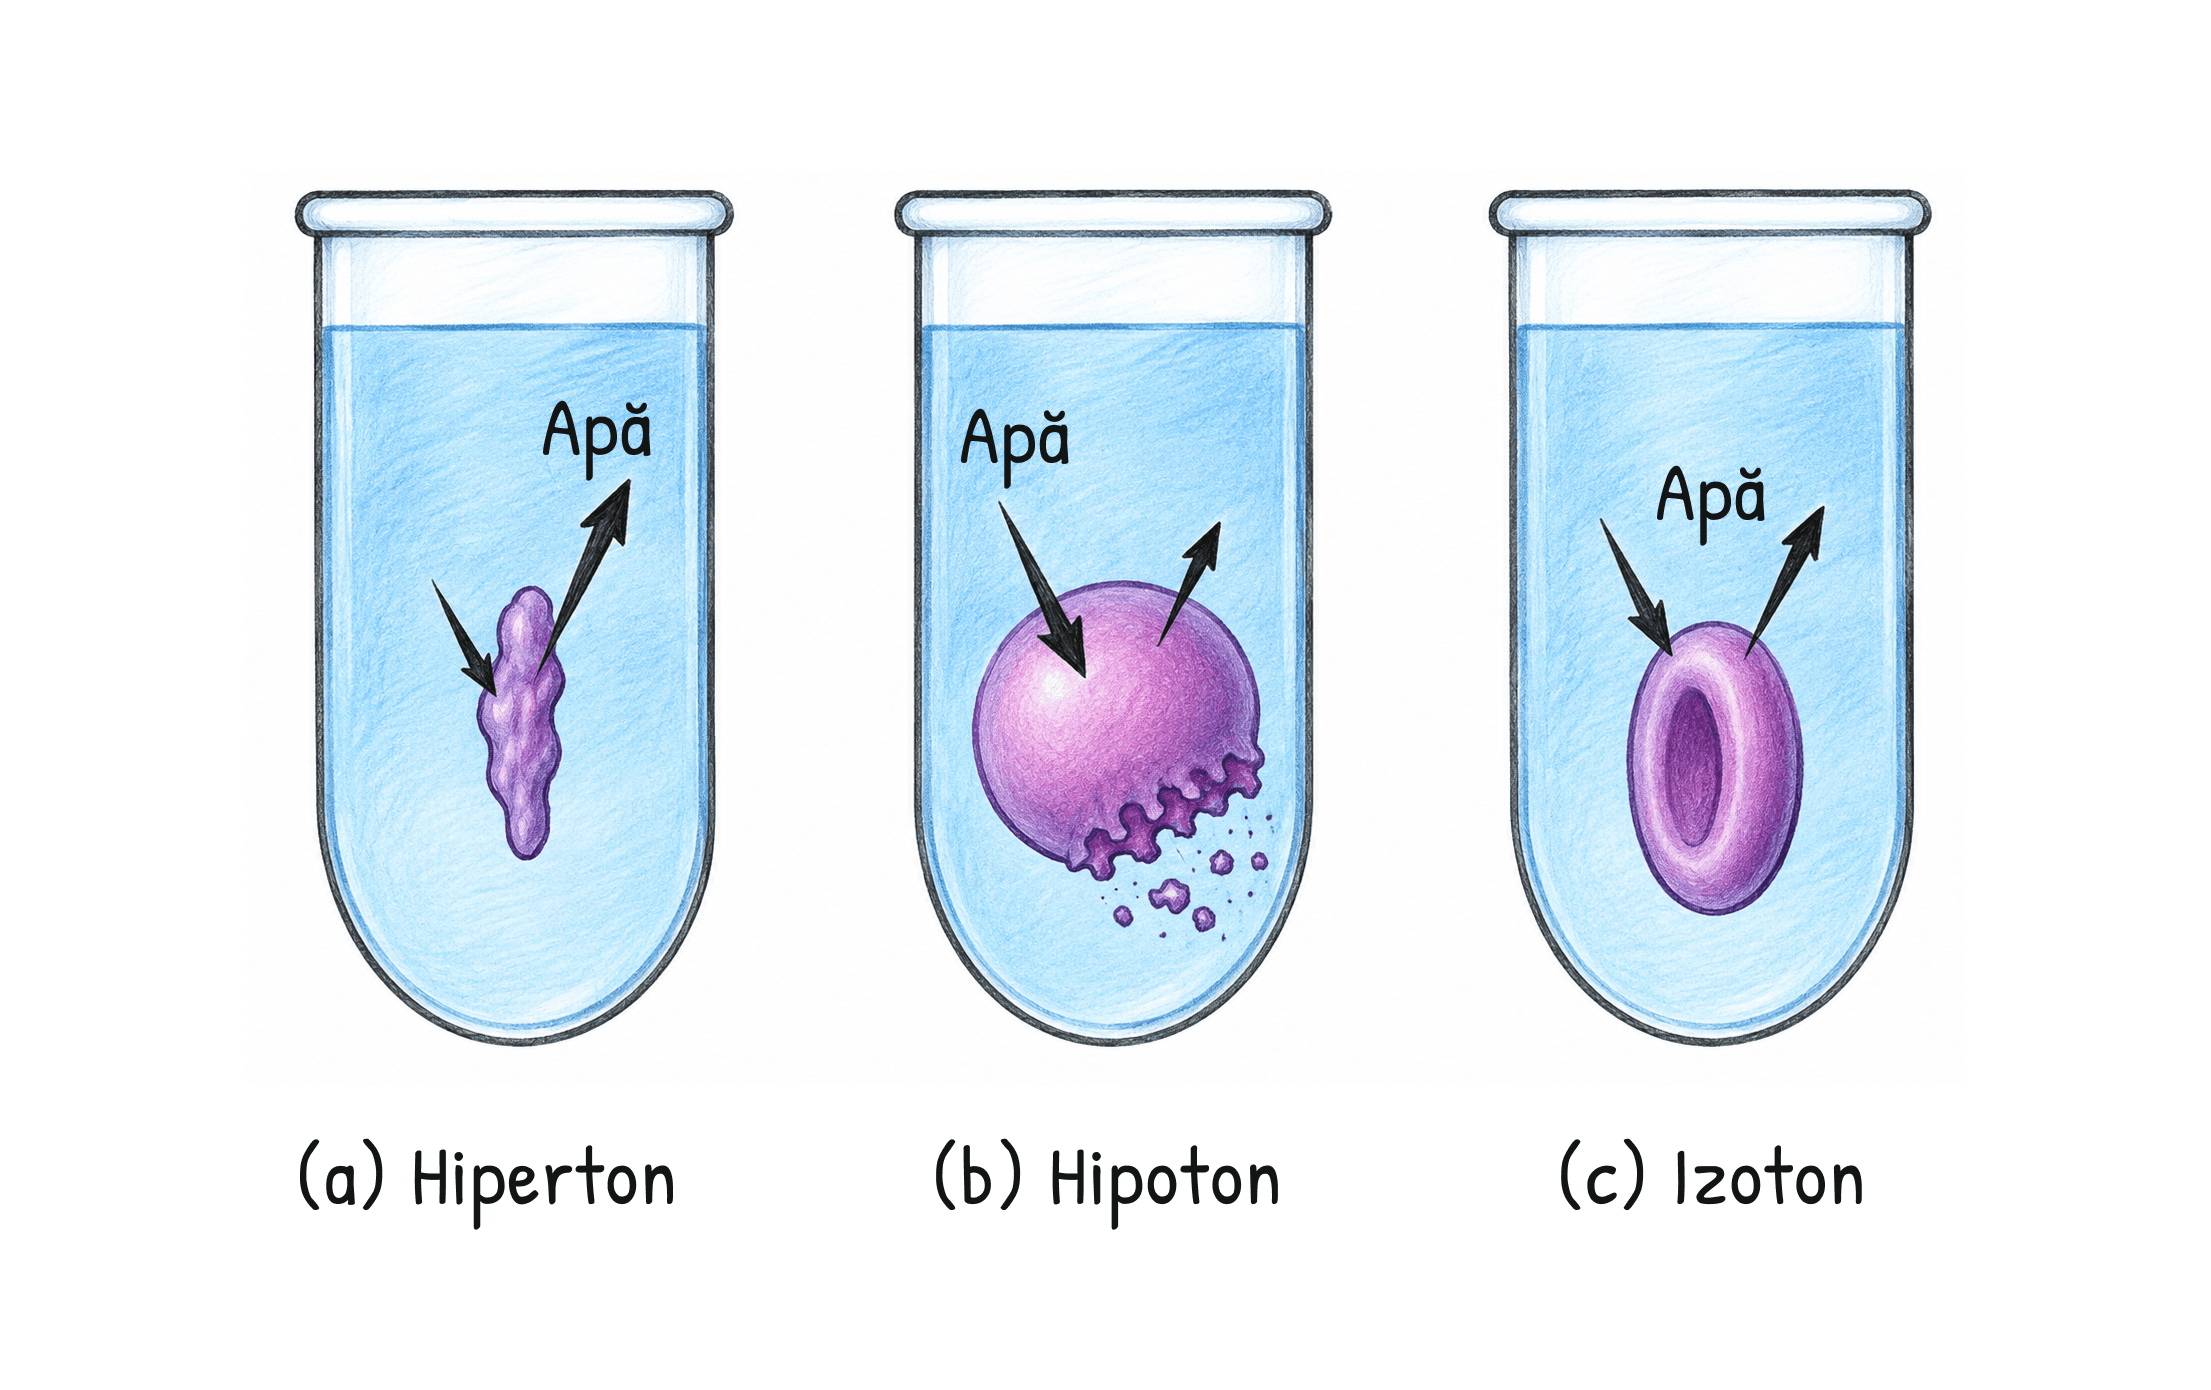
Fig. 3.2 · Biologie Barron's · p. 49
Osmoza în mediu hiperton, hipoton și izotonFigura arată trei eprubete cu soluții de sare de concentrații diferite, iar în fiecare dintre ele câte o celulă umană. Sub eprubete este scris tipul mediului: (a) hiperton, (b) hipoton și (c) izoton. Manualul folosește figura ca să explice osmoza. Ca s-o citești, compară de la o eprubetă la alta forma celulei și săgețile marcate „Apă”, care arată trecerea apei prin membrana celulei. În fiecare eprubetă sunt desenate două astfel de săgeți, una îndreptată spre celulă și una dinspre ea. În panourile (a) și (b), una dintre ele este mult mai groasă și indică sensul în care, potrivit textului, se deplasează apa. În panoul (c), cele două săgeți au aceeași grosime. Ce este osmoza Membrana plasmatică este semipermeabilă: moleculele mici ($\ce{O2}$, $\ce{CO2}$ și apa) și lipidele pot aluneca printre moleculele fosfolipidice, în timp ce moleculele mari nu pot trece cu ușurință înspre sau dinspre celulă. Structura ei este prezentată în Figura 3.1. Difuziunea este mișcarea moleculelor dintr-o zonă cu concentrație mare într-una cu concentrație mică, diferență numită gradient de concentrație. Osmoza este un tip de difuziune: difuziunea moleculelor de apă printr-o membrană semipermeabilă, dintr-o regiune cu o concentrație mică a substanței dizolvate (solvit) într-una cu o concentrație mare. Solvitul este o substanță chimică dizolvată în lichid (solventul). În figură, solvitul este sarea, clorura de sodiu, iar reperul pentru toate cele trei eprubete este concentrația normală a sării în citoplasmă, de aproximativ 1%. În Tabelul 3.1, care adună mecanismele mișcării moleculare prin membrana celulară, osmoza este descrisă scurt drept „difuziunea apei”, cu exemplul reabsorbției apei la nivelul tubilor renali. (a) Mediu hiperton Celula este introdusă într-o soluție cu 5% sare. Concentrația mai mare de solvit se află în afara celulei, așa că apa se deplasează din citoplasmă, prin membrana celulară, spre exterior, în direcția concentrației mai mari de sare. În desen, săgeata groasă pornește din celulă spre soluție. Celula pierde apă și se micșorează, se zbârcește: apare îngustă, cu un contur neregulat. Soluția se numește hipertonă, pentru că are concentrația de solvit mai mare decât citoplasma. (b) Mediu hipoton Celula este introdusă într-o soluție cu doar 0,3% sare. De data aceasta, concentrația mai mare de solvit se află în interiorul celulei, iar apa pătrunde prin membrană în citoplasmă, tot în direcția concentrației mai mari de sare. În desen, săgeata groasă este îndreptată spre celulă. Apa care intră face celula să se umfle sau chiar să se lizeze (să explodeze), iar desenul le arată pe amândouă: celula este mare și rotundă, iar marginea ei de jos este ruptă, cu mici fragmente împrăștiate dedesubt. Soluția se numește hipotonă, pentru că are concentrația de sare mai scăzută decât citoplasma. (c) Mediu izoton Concentrațiile de sare sunt la fel în interiorul și în exteriorul celulei, aproximativ 1%, iar soluția se numește izotonă. Pentru că concentrația solvitului este aceeași de ambele părți ale membranei plasmatice, osmoza nu se produce. Legenda figurii precizează că nu au loc mișcări ale moleculelor de apă. Celula nu pierde și nu primește apă, deci nu se zbârcește și nici nu se umflă: în desen are un contur oval, regulat. De reținut Celulele plasate în soluții hipertone se zbârcesc, iar cele plasate în soluții hipotone se umflă și se lizează. Sensul apei se deduce mereu la fel: apa trece prin membrană spre partea în care concentrația de solvit este mai mare. Când concentrația este aceeași de ambele părți, ca în soluția izotonă, osmoza nu are loc.
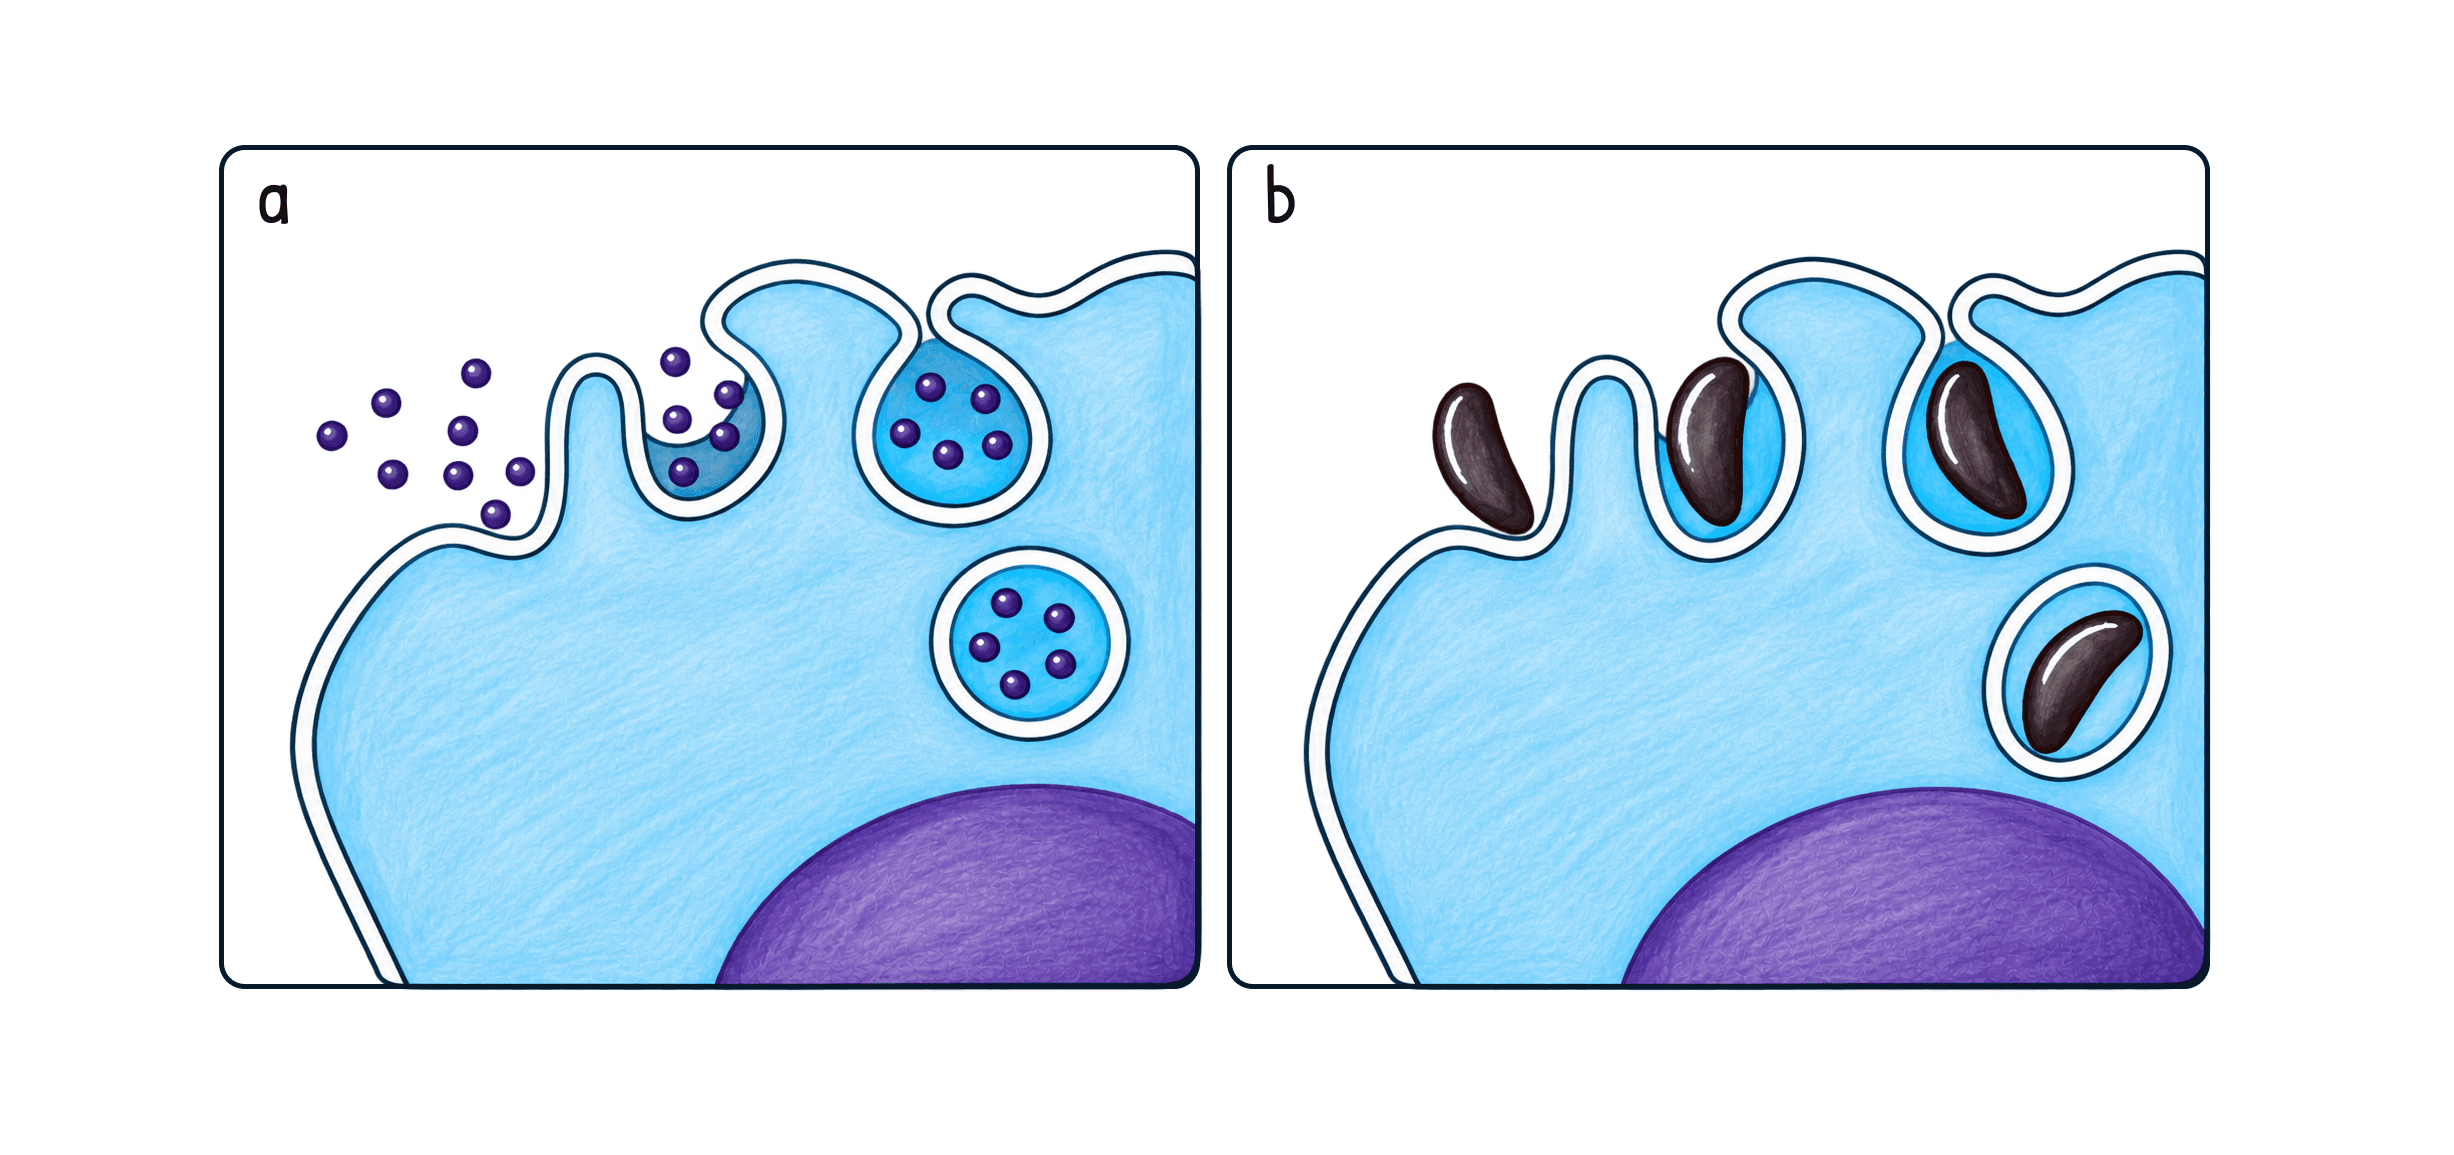
Fig. 3.3 · Biologie Barron's · p. 49
Endocitoza: pinocitoză și fagocitozăFigura compară cele două forme de endocitoză, unul dintre cele șase mecanisme prin care substanțele se deplasează prin membrana celulară. În cazul difuziunii, al osmozei sau al transportului activ, moleculele trec ele însele prin membrană. În endocitoză, membrana înglobează substanțele și le atrage în celulă, închise în vezicule delimitate de membrană. Fiecare panou arată doar o porțiune dintr-o celulă: citoplasma ocupă partea din dreapta jos, iar zona din stânga sus este mediul extern. Între ele se află membrana plasmatică, desenată ca un contur dublu, a cărei structură este prezentată în Figura 3.1. Forma mare și rotunjită de la baza fiecărui panou nu este etichetată în manual, dar corespunde nucleului, cel mai mare component al celulei, aflat în citoplasmă. Cum decurge endocitoza Ambele panouri arată aceeași succesiune, desenată de la stânga la dreapta, ca o serie de instantanee ale aceluiași proces: Materialul se află la suprafața celulei, în mediul extern. O mică porțiune din membrana plasmatică se pliază spre interior, formând o adâncitură care înglobează materialul. Membrana se închide în jurul conținutului și delimitează o veziculă, legată de restul membranei doar printr-un gât îngust. Vezicula se desprinde de membrană și migrează în citoplasmă, unde apare, în dreapta jos, ca un sac separat. Peretele fiecărei vezicule are același contur dublu ca membrana plasmatică, pentru că este chiar porțiunea de membrană care s-a pliat și s-a închis. Veziculele sunt saci membranoși care conțin diverse substanțe transportate în celulă. (a) Pinocitoza Când endocitoza implică picături de lichid, procesul se numește pinocitoză. Celula preia în interiorul ei substanțe chimice dizolvate în apă, desenate ca puncte mici și numeroase. Fiecare veziculă se închide în jurul unui mic volum de lichid și cuprinde, odată cu el, mai multe astfel de puncte. (b) Fagocitoza Când endocitoza implică material solid, procesul se numește fagocitoză. Particulele solide sunt desenate ca forme alungite, mult mai mari decât punctele din primul panou. Membrana le înconjoară una câte una, așa că fiecare veziculă conține o singură particulă. Un exemplu îl oferă globulele albe (leucocitele), care realizează endocitoză atunci când îndepărtează microbii din circulația sanguină, ingerând bacteriile. Procesul invers: exocitoza Opusă endocitozei este exocitoza, prin care substanțele se deplasează din interiorul celulei spre mediul extern. Pașii ei seamănă cu cei din figură, parcurși în sens invers: vezicule cu membrană migrează înspre membrana celulară și fuzionează cu ea, apoi regiunea fuzionată se rupe, iar conținutul veziculei se împrăștie în exterior. Exocitoza este o modalitate importantă de mișcare a moleculelor în celulele secretoare: prin ea, celulele endocrine secretă hormoni, celulele nervoase eliberează neurotransmițători la nivelul terminațiilor, iar celulele din diferite organe secretă mucus.
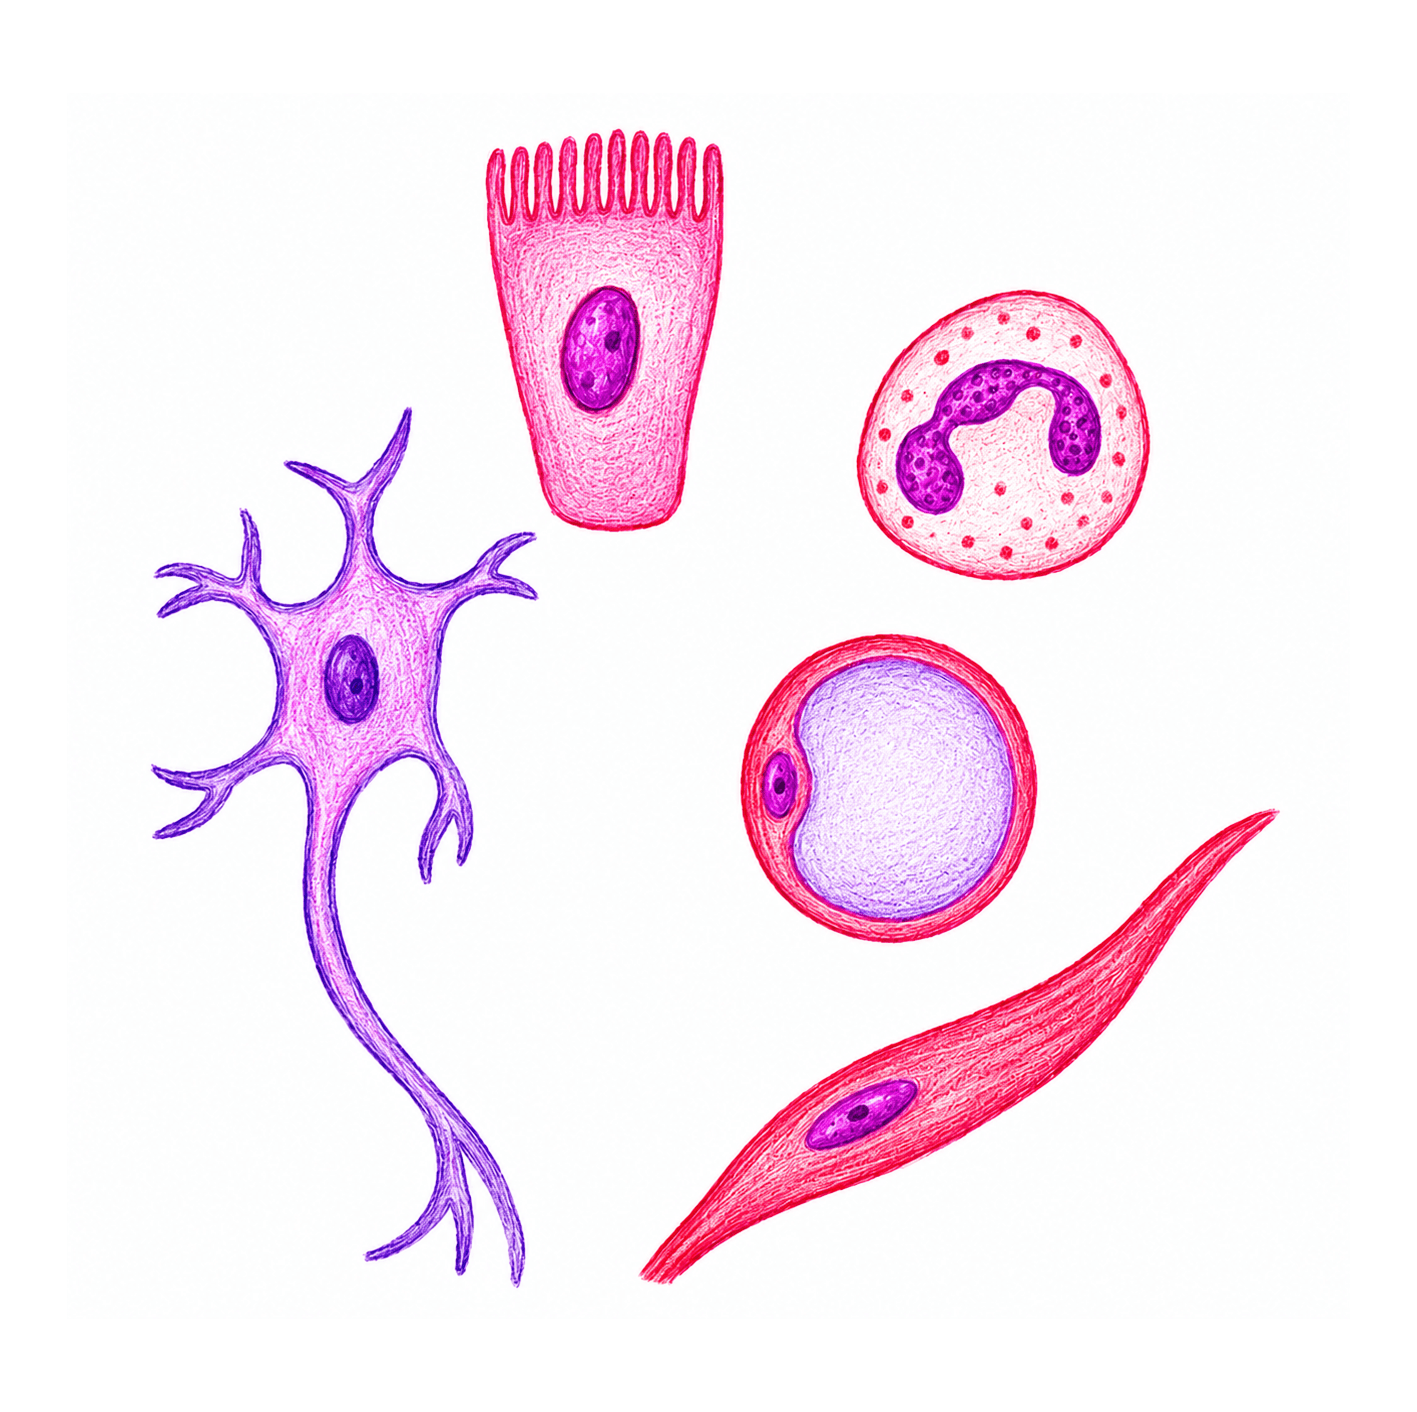
Fig. 3.4 · Biologie Barron's · p. 50
Diverse tipuri de celule din organismul umanFigura pune una lângă alta cinci celule din organismul uman, foarte diferite ca formă și mărime. Manualul trimite la ea la începutul capitolului, când prezintă teoria celulară: la fel ca toate organismele vii, corpul uman este alcătuit din celule, așa că biologia corpului uman gravitează în jurul biologiei celulare. Citește figura în doi pași, întâi fiecare celulă, cu forma ei, apoi nucleul din fiecare, pe care insistă și legenda: toate aceste celule au un nucleu, variabil ca poziție, formă și mărime. Ce au în comun toate celulele Oricât de diferite ar arăta, toate celulele, inclusiv cele umane, au două componente de bază. Conturul fiecărei celule din desen este membrana plasmatică (membrana celulară), care separă celula de mediul extern, îi menține forma și controlează trecerea substanțelor în și din celulă. În interior se află citoplasma, o substanță cu consistența unui gel, care conține nucleul. Prin nucleu, celulele umane se deosebesc de celulele procariote, ale bacteriilor, care sunt lipsite de nucleu. Cinci celule, patru țesuturi În organismul uman există patru tipuri principale de țesuturi, recapitulate în Figura 4.6. Cele cinci celule din figură le reprezintă pe toate patru: Celula epitelială cilindrică cu microvili (țesut epitelial) este înaltă, mai lată sus și îngustată spre bază, iar pe suprafața liberă poartă un rând de prelungiri fine, microvilii. Epiteliul simplu cilindric, un strat de celule înalte cu nucleii în porțiunea bazală, căptușește tractul gastrointestinal și are funcție de protecție, secreție și absorbție. Leucocitul (țesut conjunctiv) este o globulă albă, rotundă, cu un nucleu mare și curbat. Sângele din care face parte este un tip aparte de țesut conjunctiv, cu substanța fundamentală lichidă, iar globulele albe îndepărtează microbii din circulația sanguină prin endocitoză. Celula adipoasă (țesut conjunctiv) este aproape în întregime plină cu grăsime. Picăturile de grăsime împing citoplasma și nucleul spre periferie, într-o bandă subțire, și dau celulei o formă de inel. Țesutul adipos asigură protecția mecanică, izolarea termică și depozitarea grăsimii, o rezervă utilă de energie. Celula musculară netedă (țesut muscular) este alungită și fusiformă, cu capetele ascuțite, iar alungirea celulelor musculare le facilitează funcția contractilă. Mușchiul neted se află în pereții organelor interne (tractul digestiv, vasele de sânge, căile respiratorii și urinare), nu are striații și este involuntar. Celula nervoasă (țesut nervos) are un corp celular din care pornesc mai multe prelungiri scurte, ramificate, și una lungă, ramificată abia la capăt. Țesutul nervos are funcții legate de comunicare: recepționează stimuli, transmite și interpretează impulsuri nervoase. Nucleul: variabil ca poziție, formă și mărime Urmărește acum doar nucleii, de la o celulă la alta: Poziția: în celula nervoasă, nucleul stă la mijlocul corpului celular, iar în celula musculară netedă, în porțiunea ei cea mai lată. În celula epitelială stă spre mijlocul celulei, sub rândul de microvili, iar în celula adipoasă este împins la periferie, lângă membrană. Forma: este oval în celula epitelială și în cea nervoasă, alungit în sensul celulei în celula musculară netedă, turtit în celula adipoasă și curbat ca o potcoavă în leucocit. Mărimea: în leucocit, nucleul ocupă o bună parte din celulă. În celula adipoasă și în cea nervoasă este mic față de restul celulei. Ce se află în nucleu Cu excepția globulelor roșii, toate celulele umane au nucleu. Structurile lui nu sunt detaliate aici, dar textul din jurul figurii le descrie: Cromozomii: nucleul este compus în principal din histone (un tip de proteine) și ADN. ADN-ul este organizat în unități liniare numite cromozomi, ale căror segmente funcționale sunt genele, circa 30.000 în nucleii celulelor umane. Histonele oferă un cadru de sprijin pentru ADN: se unesc cu el și formează nucleozomi, structuri electronomicroscopice care se înfășoară între ei și formează cromozomul. Învelișul nuclear: o structură membranară dublă, alcătuită din două straturi duble de fosfolipide, față de unul singur în membrana plasmatică. Menține forma nucleului, iar prin porii lui mediul intern al nucleului comunică cu citoplasma. Nucleolii: două sau mai multe mase dense, care conțin ARN. Acesta intervine în producerea subunităților ribozomilor, asamblate apoi în citoplasmă. Învelișul nuclear, porii și nucleolul se văd în Figura 3.5, unde nucleul este desenat în interiorul unei celule tipice.
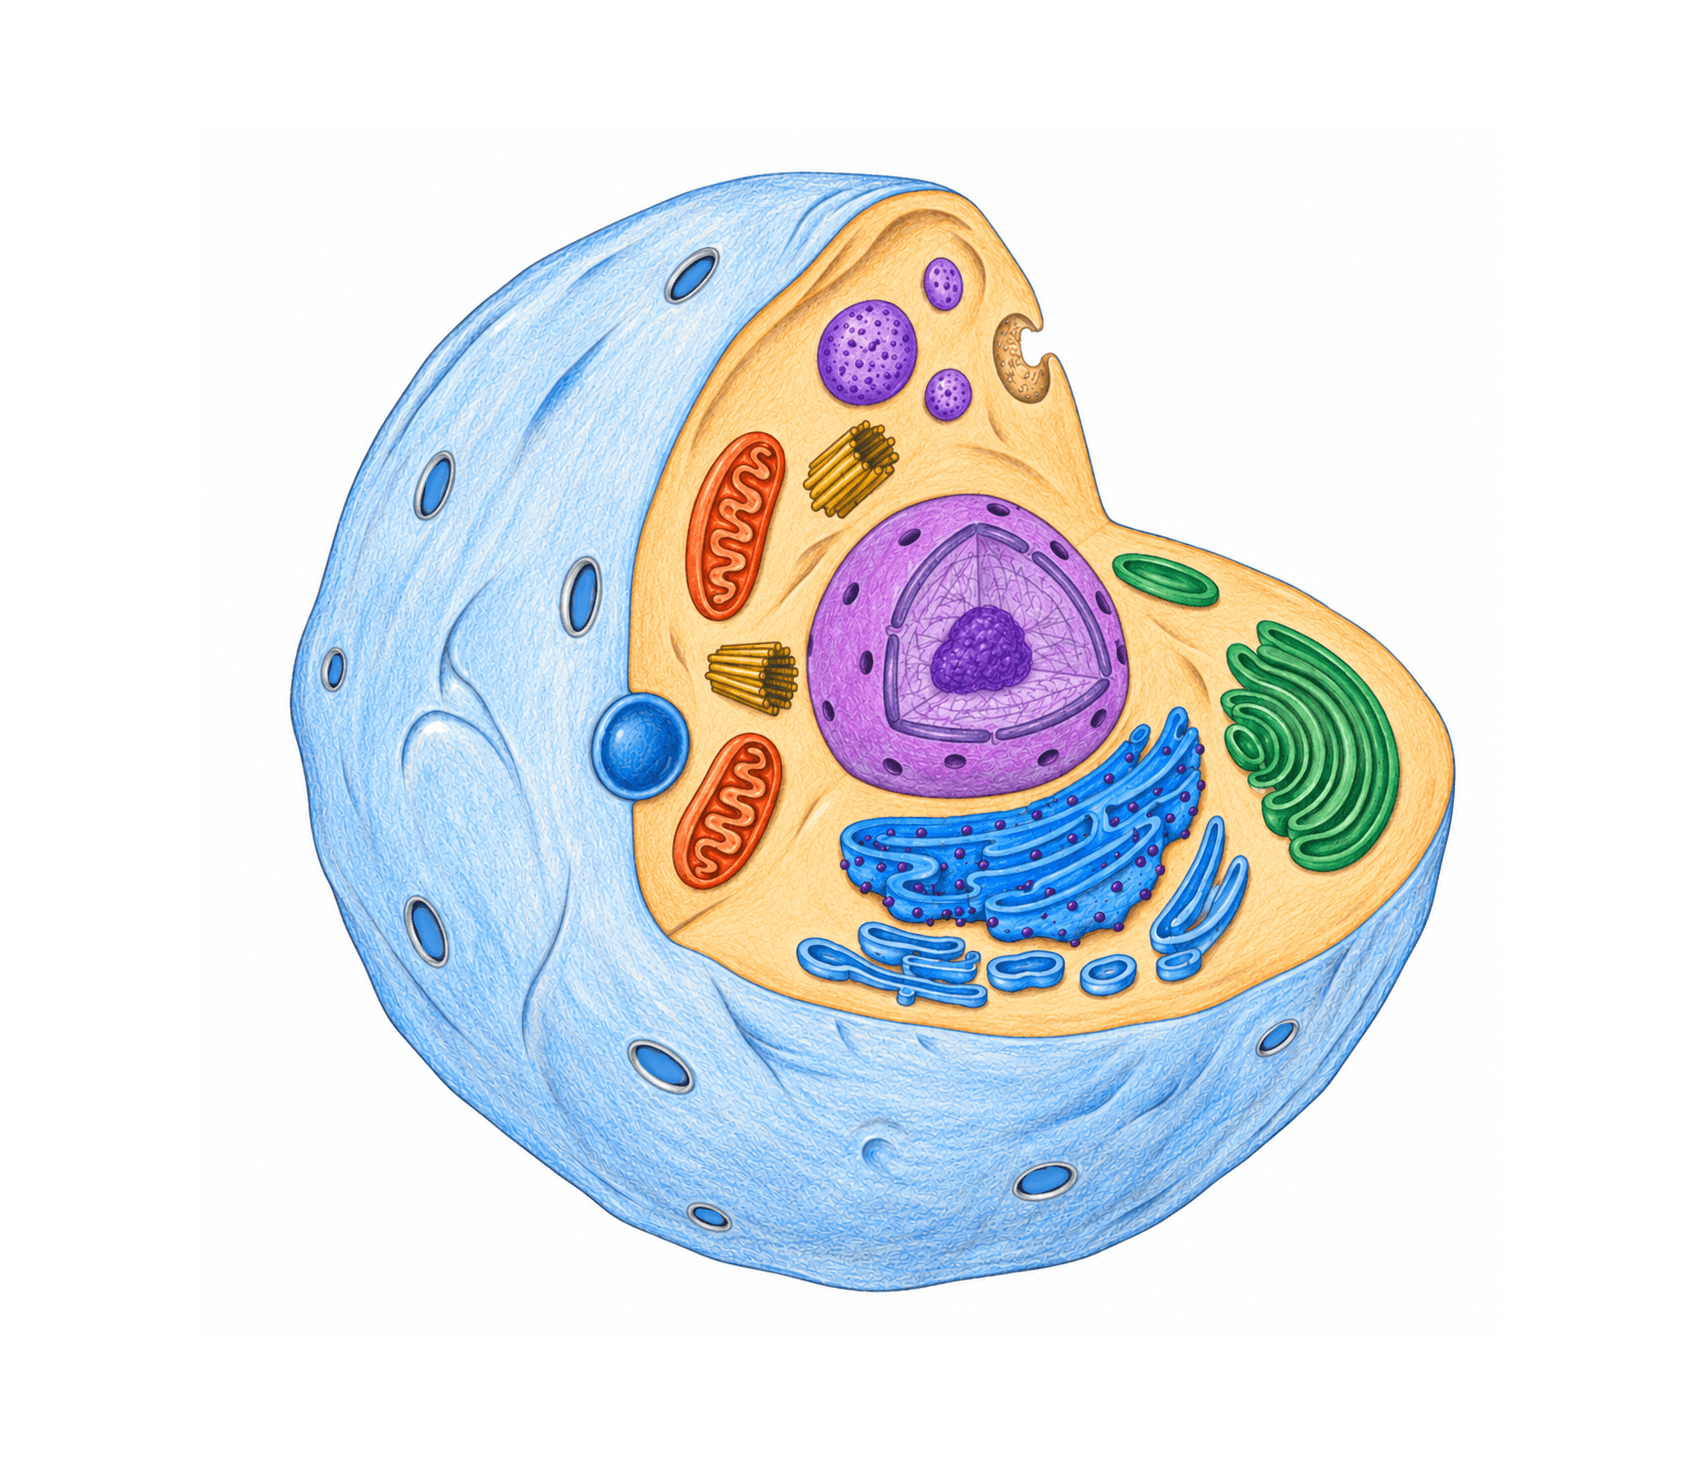
Fig. 3.5 · Biologie Barron's · p. 51
Celula umană tipică și organitele eiFigura reprezintă o celulă umană tipică, cu diverse organite. Celula este desenată ca un corp rotunjit din care s-a tăiat o felie, ca să i se vadă interiorul. În mijlocul feliei se află nucleul, iar în jurul lui, în citoplasmă, organitele: în stânga și deasupra nucleului mitocondriile, centriolii și lizozomul, în dreapta aparatul Golgi, iar dedesubt reticulul endoplasmatic. Pentru evidențierea detaliilor, unele dintre organitele foarte mici sunt desenate la o scală mai mare. Limita și conținutul celulei Membrana plasmatică (membrana celulară) separă celula de mediul extern. În desen este învelișul care mărginește celula pe dinafară, întrerupt acolo unde a fost tăiată felia. Este alcătuită în principal din proteine și lipide, mai ales fosfolipide, așezate într-un singur strat dublu, după modelul de mozaic fluid din Figura 3.1. Este semipermeabilă: moleculele mici ($\ce{O2}$, $\ce{CO2}$ și apa) trec printre fosfolipide, dar moleculele mari nu trec cu ușurință. Menține forma celulei și controlează pasajul substanțelor în și din celulă. Citoplasma este o substanță semilichidă, fundamentală pentru celulă, care umple spațiul dintre membrană și nucleu. În ea au loc unele procese metabolice și sinteze proteice. Conține componente microscopice specializate numite organite („mici organe”), în care se desfășoară diverse funcții celulare. Nucleul Nucleul este cel mai mare component celular și există în toate celulele umane, cu excepția globulelor roșii. Este compus în principal din histone (un tip de proteine) și ADN, organizat în cromozomi, ale căror segmente funcționale sunt genele. Poziția, forma și mărimea lui variază de la un tip de celulă la altul (Figura 3.4). Prin felia tăiată din nucleu se văd: Învelișul nuclear, membrana care înconjoară nucleul. Este o structură membranară dublă, cu două straturi duble de fosfolipide, față de unul singur al membranei plasmatice. Menține forma nucleului și controlează pasajul substanțelor între nucleu și citoplasmă. Porii din înveliș, prin care mediul intern al nucleului comunică cu citoplasma. Nucleolul, o masă densă, cu suprafața neregulată, fără membrană, alcătuită din proteine și ARN. Desenul arată unul singur, dar manualul precizează că în nucleu sunt două sau mai multe astfel de mase. ARN-ul lor intervine în producerea subunităților ribozomilor, asamblate apoi în citoplasmă. Sinteza și transportul substanțelor Sub nucleu se întinde reticulul endoplasmatic, o rețea de membrane interconectate, formată din saci și canale. Pe unele porțiuni are atașați ribozomi, particule submicroscopice din proteine și ARN, desenate ca niște puncte. Ribozomii sunt corpusculii în care aminoacizii sunt combinați chimic pentru a forma proteine și se găsesc și liberi în citoplasmă. Reticulul endoplasmatic rugos, cu ribozomi, este sediul sintezei proteinelor. Reticulul endoplasmatic neted, fără ribozomi, găzduiește sinteza lipidelor și a membranei, precum și depozitarea calciului. În dreapta nucleului se află corpul Golgi (aparatul Golgi), alcătuit din mai mulți saci turtiți, de obicei curbați la capete. Sacii se unesc parțial între ei și formează vezicule asemănătoare unor picături, ca aceea desenată deasupra lor, între aparatul Golgi și nucleu. Aici proteinele și lipidele celulare sunt procesate și împachetate în vezicule înainte de a fi transportate spre destinația lor finală. Tot din sacii aparatului Golgi derivă lizozomul, desenat în partea de sus a feliei ca un sac rotund, cu conținut granular. Este o veziculă cu enzime de digestie, care degradează particulele nutritive pătrunse în celulă și pun la dispoziția celulei produșii finali. Energia celulei Mitocondriile sunt desenate de două ori, în stânga nucleului, ca saci alungiți cu o linie ondulată înăuntru, adică saci membranoși cu partiție interioară. În mitocondrie este eliberată cea mai mare parte a energiei provenind din alimente: se degradează glucide, lipide și proteine, iar energia este folosită pentru a forma molecule de ATP. Aceasta este o etapă importantă a respirației celulare, care este completă când oxigenul, provenit din aerul inspirat, se combină cu hidrogen și electroni ca să formeze apă. Fără oxigen, mitocondria produce insuficient ATP, iar fără ATP celulele mor. Pentru că sunt implicate în procesele energetice, mitocondriile mai sunt numite „generatoarele celulei”. Centriolii și vacuola Centriolii apar în două locuri, deasupra și în stânga nucleului, fiecare desenat ca un mănunchi scurt de tije paralele. Doi centrioli în formă de tijă alcătuiesc centrozomul, o structură nonmembranoasă care facilitează distribuția cromozomilor către celulele fiice în timpul reproducerii celulare și inițiază formarea cililor. În profaza mitozei, centriolii migrează spre polii opuși ai celulei (Figura 3.8). Vacuola este corpul rotund de pe marginea stângă a feliei tăiate, aproape de membrana plasmatică.

Fig. 3.6 · Biologie Barron's · p. 54
Activitatea enzimaticăFigura urmărește o enzimă de-a lungul unei singure reacții chimice, în patru desene care se citesc de la stânga la dreapta, în ordinea săgeților. Sub desene sunt trei explicații: prima corespunde primului desen, a doua celor două desene din mijloc, iar a treia ultimului. Pe parcurs vezi cum enzima prinde două molecule de substrat, le ține una lângă alta cât timp reacționează și eliberează apoi produsul, rămânând ea însăși neschimbată. Ce este o enzimă Compușii chimici nu se combină între ei automat și nici nu se degradează spontan. Ca să înceapă o reacție chimică, este nevoie de un aport de energie numit energie de activare, care poate fi termică sau chimică. Enzimele sunt catalizatori biologici, adică proteine care accelerează reacțiile chimice și scad cantitatea de energie de activare necesară, fără ca ele însele să se modifice. Nu sunt consumate în reacție, ci rămân disponibile pentru reacțiile care urmează. Fiecare enzimă catalizează o singură reacție, așa că într-o celulă există mii de enzime diferite, pentru mii de reacții chimice diferite. Cu câteva excepții, numele enzimelor se termină în „-ază”. Catalaza, de exemplu, degradează apa oxigenată (peroxidul de hidrogen) în apă și oxigen. Alte exemple sunt amilaza, hidrolaza, peptidaza și kinaza. Elementele desenului Enzima este forma mare, ca o jumătate de disc, din partea de jos a fiecărui desen. Are aceeași formă în toate cele patru desene, pentru că reacția nu o modifică. Zona activă este porțiunea cheie a enzimei, cea care interacționează cu substratul. În desen, ea corespunde celor două adâncituri de pe marginea de sus a enzimei, una rotunjită și una dreptunghiulară, arătate de aceeași etichetă. Legenda figurii o numește specifică: este locul în care se leagă o pereche de molecule de substrat, iar forma fiecărei adâncituri se potrivește cu partea de jos a uneia dintre cele două molecule. Substratul este substanța asupra căreia acționează enzima. Aici sunt două molecule de substrat, notate S1 și S2. S1 are partea de jos rotunjită, care intră în adâncitura din stânga, iar S2 are dedesubt un capăt dreptunghiular, care intră în cea din dreapta. Produsul (produsul final) este rezultatul reacției catalizate de enzimă. În ultimul desen, el este forma unică pe care săgeata verticală, notată „Produs”, o ridică de pe enzimă. Cum decurge reacția Substratul se leagă de enzimă. Săgețile groase arată cum S1 și S2 coboară spre zona activă, fiecare spre adâncitura care are forma lui. Substratul interacționează cu ajutorul enzimei. În al doilea desen, cele două molecule stau fixate una lângă alta în zona activă și se ating, dar o linie încă le desparte. Aici se vede rolul enzimei în reacție: ea asigură locul în care substanțele chimice pot interacționa. Se formează produsul. În al treilea desen linia a dispărut: cele două molecule s-au unit într-un singur compus, care stă încă în zona activă. Produsul final se detașează de enzimă. Compusul format părăsește zona activă, în direcția săgeții îndreptate în sus. Enzima rămâne cu ambele adâncituri goale, la fel ca în primul desen: nu a fost consumată și este liberă să participe la o altă reacție chimică. Viteza reacțiilor enzimatice De obicei, reacțiile enzimatice durează doar câteva milisecunde. Viteza lor depinde de mai mulți factori, printre care concentrația substratului, aciditatea și temperatura mediului. La temperaturi ridicate reacțiile au loc mult mai rapid, însă excesul de căldură poate modifica structura proteică a enzimei și poate duce la denaturarea ei, adică la pierderea structurii fizice. Enzimele și căile metabolice Enzimele conlucrează în cadrul căilor metabolice, secvențe de reacții chimice care au loc într-o celulă. Unele căi folosesc catabolismul, adică degradarea sau digestia moleculelor mari, complexe. Altele implică anabolismul, adică sinteza de molecule mari. Reacția din figură, în care două molecule de substrat se unesc într-un singur compus, este o reacție de sinteză. Enzimele nu lucrează însă doar în sinteze, pentru că și reacțiile de descompunere depind mult de ele. Pe lângă catalaza de mai sus, un exemplu este lipaza, care degradează grăsimile până la acizi grași și glicerol. Căile metabolice sunt descrise pe larg în capitolul 19.
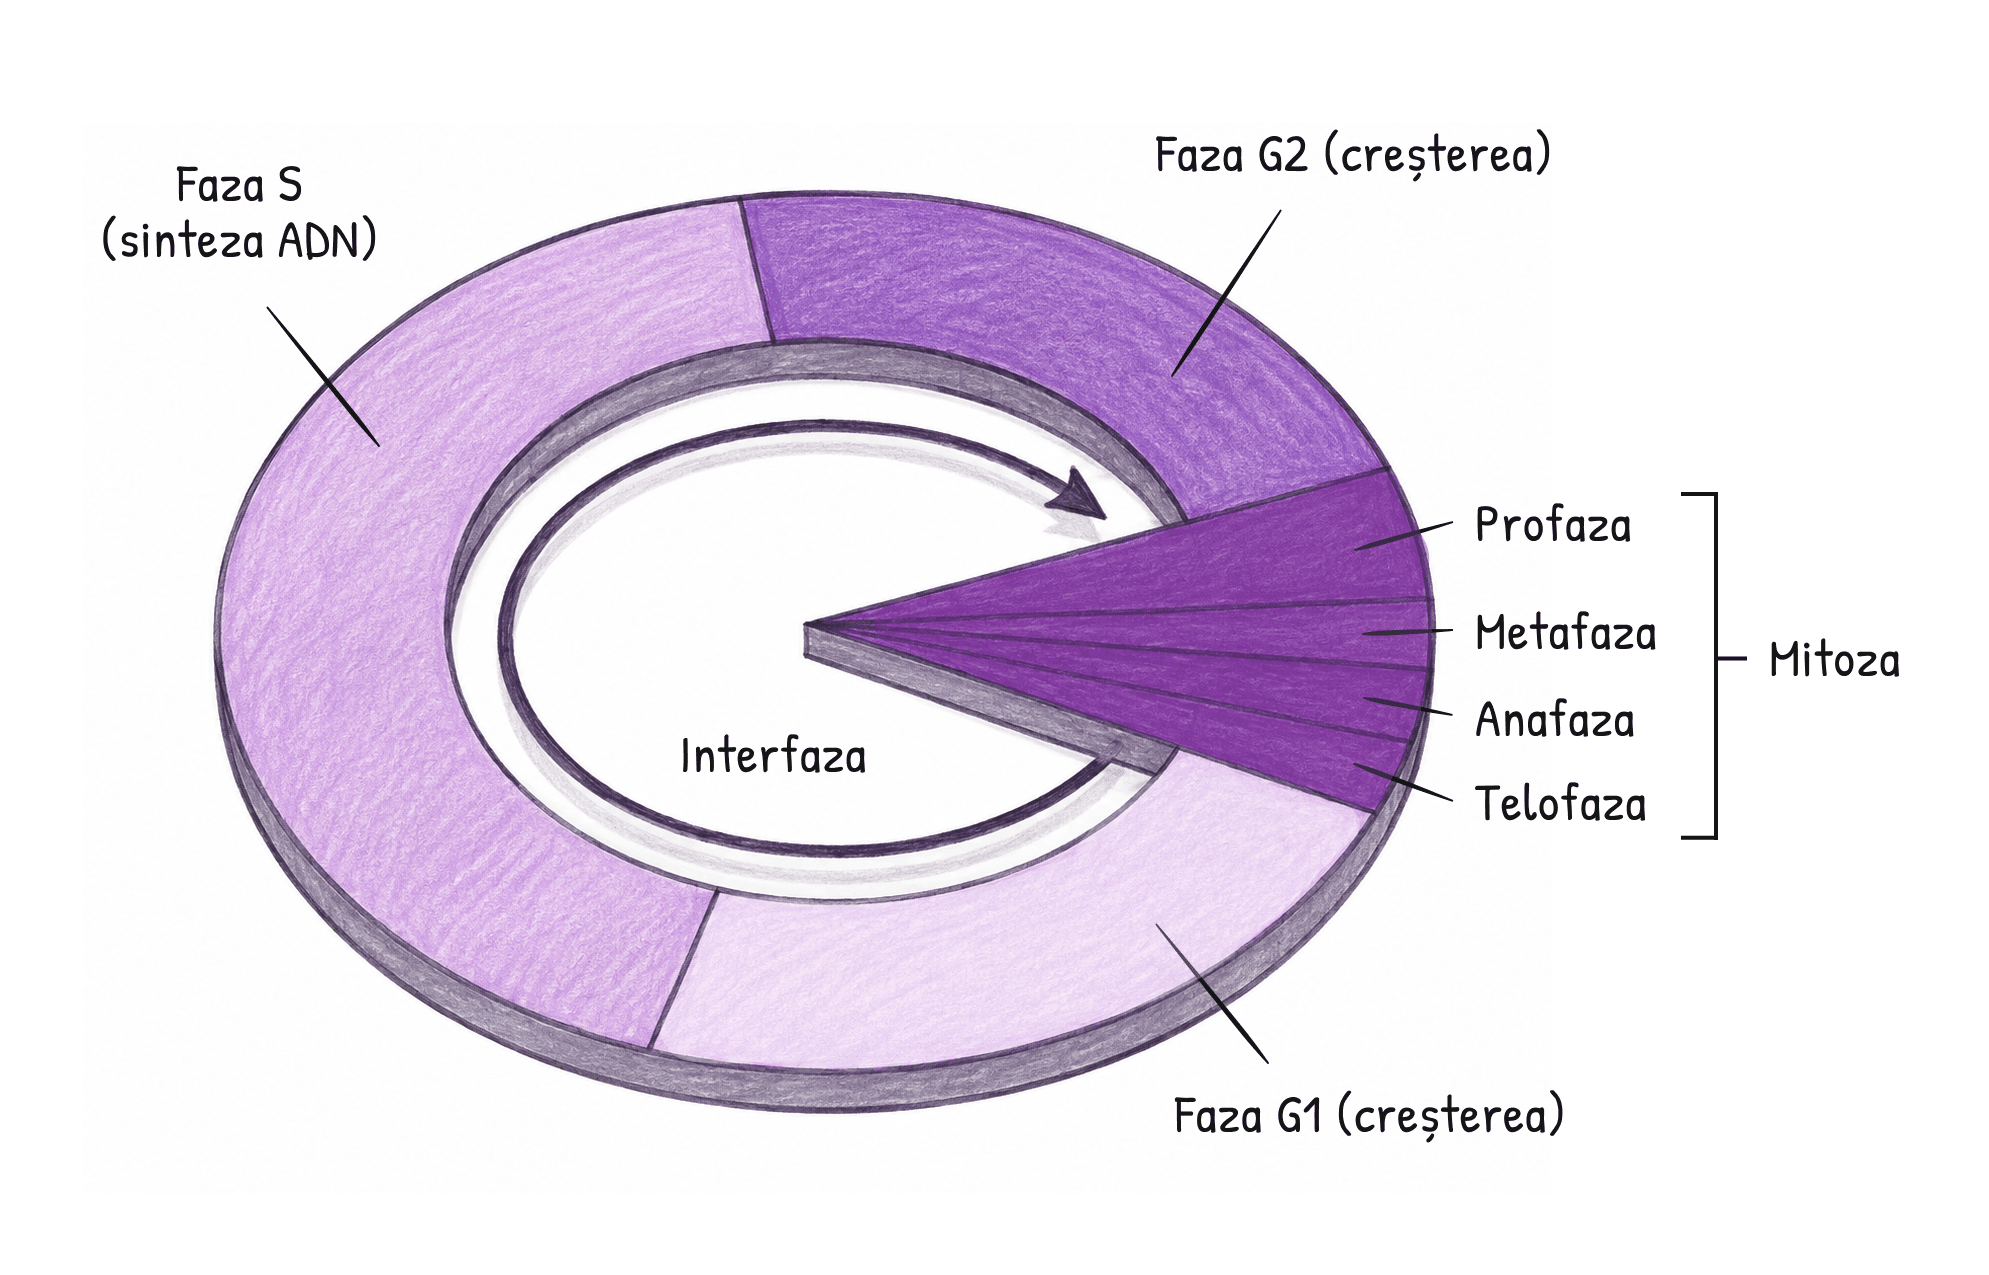
Fig. 3.7 · Biologie Barron's · p. 56
Ciclul celularFigura reprezintă ciclul celular, adică repetarea creșterii și reproducerii celulare, sub forma unui inel împărțit în sectoare. În golul din mijlocul inelului, o săgeată curbă, însoțită de cuvântul „Interfaza”, arată că inelul se parcurge în sensul acelor de ceasornic: ea pornește din dreptul fazei G1 (jos, în dreapta), ocolește pe lângă faza S (în stânga) și se oprește în dreptul fazei G2 (sus, în dreapta), cu vârful spre felia mitozei. O celulă pornește dintr-un punct al inelului, trece pe rând prin fiecare sector și ajunge înapoi de unde a plecat, cu deosebirea că între timp a devenit două celule. Cele două perioade majore Ciclul este împărțit în două perioade principale, ușor de deosebit în desen: Interfaza cuprinde cele trei sectoare mari și ocupă aproape tot inelul. Este perioada în care se desfășoară toate activitățile specifice unei celule. Tot în interfază are loc replicarea ADN-ului. Mitoza este felia îngustă din dreapta, care se întinde până în centrul inelului. Este perioada în care ADN-ul nuclear al celulei este împărțit în două celule fiice. Diviziunea efectivă a celulei se numește citokineză. Cele trei faze ale interfazei În ordinea indicată de săgeată: Faza G1 (creșterea) urmează după mitoză și este perioada activităților normale ale celulei. Celula sintetizează proteine structurale și enzime și crește în dimensiuni. Cromozomii se găsesc sub formă de cromatină despiralizată. În celulele umane există 46 de cromozomi, fiecare cu câte o cromatidă. Faza S (sinteza ADN): creșterea continuă, ADN-ul din nucleu se replică, iar cromozomii despiralizați încă nu sunt vizibili. Tot acum sunt sintetizate proteine și centrioli, structurile care, în profază, migrează spre polii opuși ai celulei. Fiecare cromozom este copiat cu acuratețe, astfel că, până la sfârșitul fazei S, rezultă câte două cromatide pentru fiecare cromatidă prezentă în G1: tot 46 de cromozomi, dar fiecare cu câte două cromatide, atașate la centromer. Mecanismul replicării ADN-ului este ilustrat în Figura 2.9. Faza G2 (creșterea): celula continuă să crească și să funcționeze, în timp ce se pregătește de mitoză. Proteinele se organizează pentru a forma o serie de filamente, numite fus de diviziune, alcătuite din microtubuli. Fusul este asamblat pentru fiecare mitoză și dezasamblat la finalul procesului. Materialul nuclear este încă sub formă de cromatină, dar aceasta începe să se condenseze. Din acest moment, mitoza poate începe. Cele patru faze ale mitozei Felia mitozei este împărțită în patru sectoare subțiri, așezate de sus în jos în ordinea în care sunt parcurse. Fazele, cu structurile implicate, sunt ilustrate în Figura 3.8. Profaza: cromozomii duplicați se spiralează, nucleul și nucleolul dispar, fusul este complet, iar cromozomii se deplasează spre centrul celulei. Metafaza: centromerii se aliniază în placa metafazică (ecuatorială). Anafaza: centromerii se clivează, iar cromatidele se deplasează către cei doi poli. Telofaza: cromozomii se despiralizează, se formează nucleul și nucleolul, fusul dispare, iar citokineza se finalizează. Citokineza și reluarea ciclului Citokineza nu are un sector propriu în desen. Ea se finalizează în telofază și constă în divizarea citoplasmei: la nivelul plăcii ecuatoriale se formează linia de clivaj prin contracția microfilamentelor, iar membrana celulară strangulează citoplasma, formând cele două celule fiice. Faza G1 urmează după mitoză, așa că fiecare celulă fiică intră în G1 și ciclul reîncepe. De ce contează ciclul celular Cu excepția a doar câtorva tipuri de celule mature, cum sunt globulele roșii, toate celulele corpului uman se divid, dar nu la fel de des: în tractul gastrointestinal frecvent, în sistemul nervos mai rar. Mitoza și citokineza permit organismului să crească și înlocuiesc celulele îmbătrânite sau deteriorate. Controlul mitozei este esențial, astfel încât ea să se producă doar când este nevoie: dacă se pierde, de obicei din cauza unei mutații ADN, poate apărea cancerul.
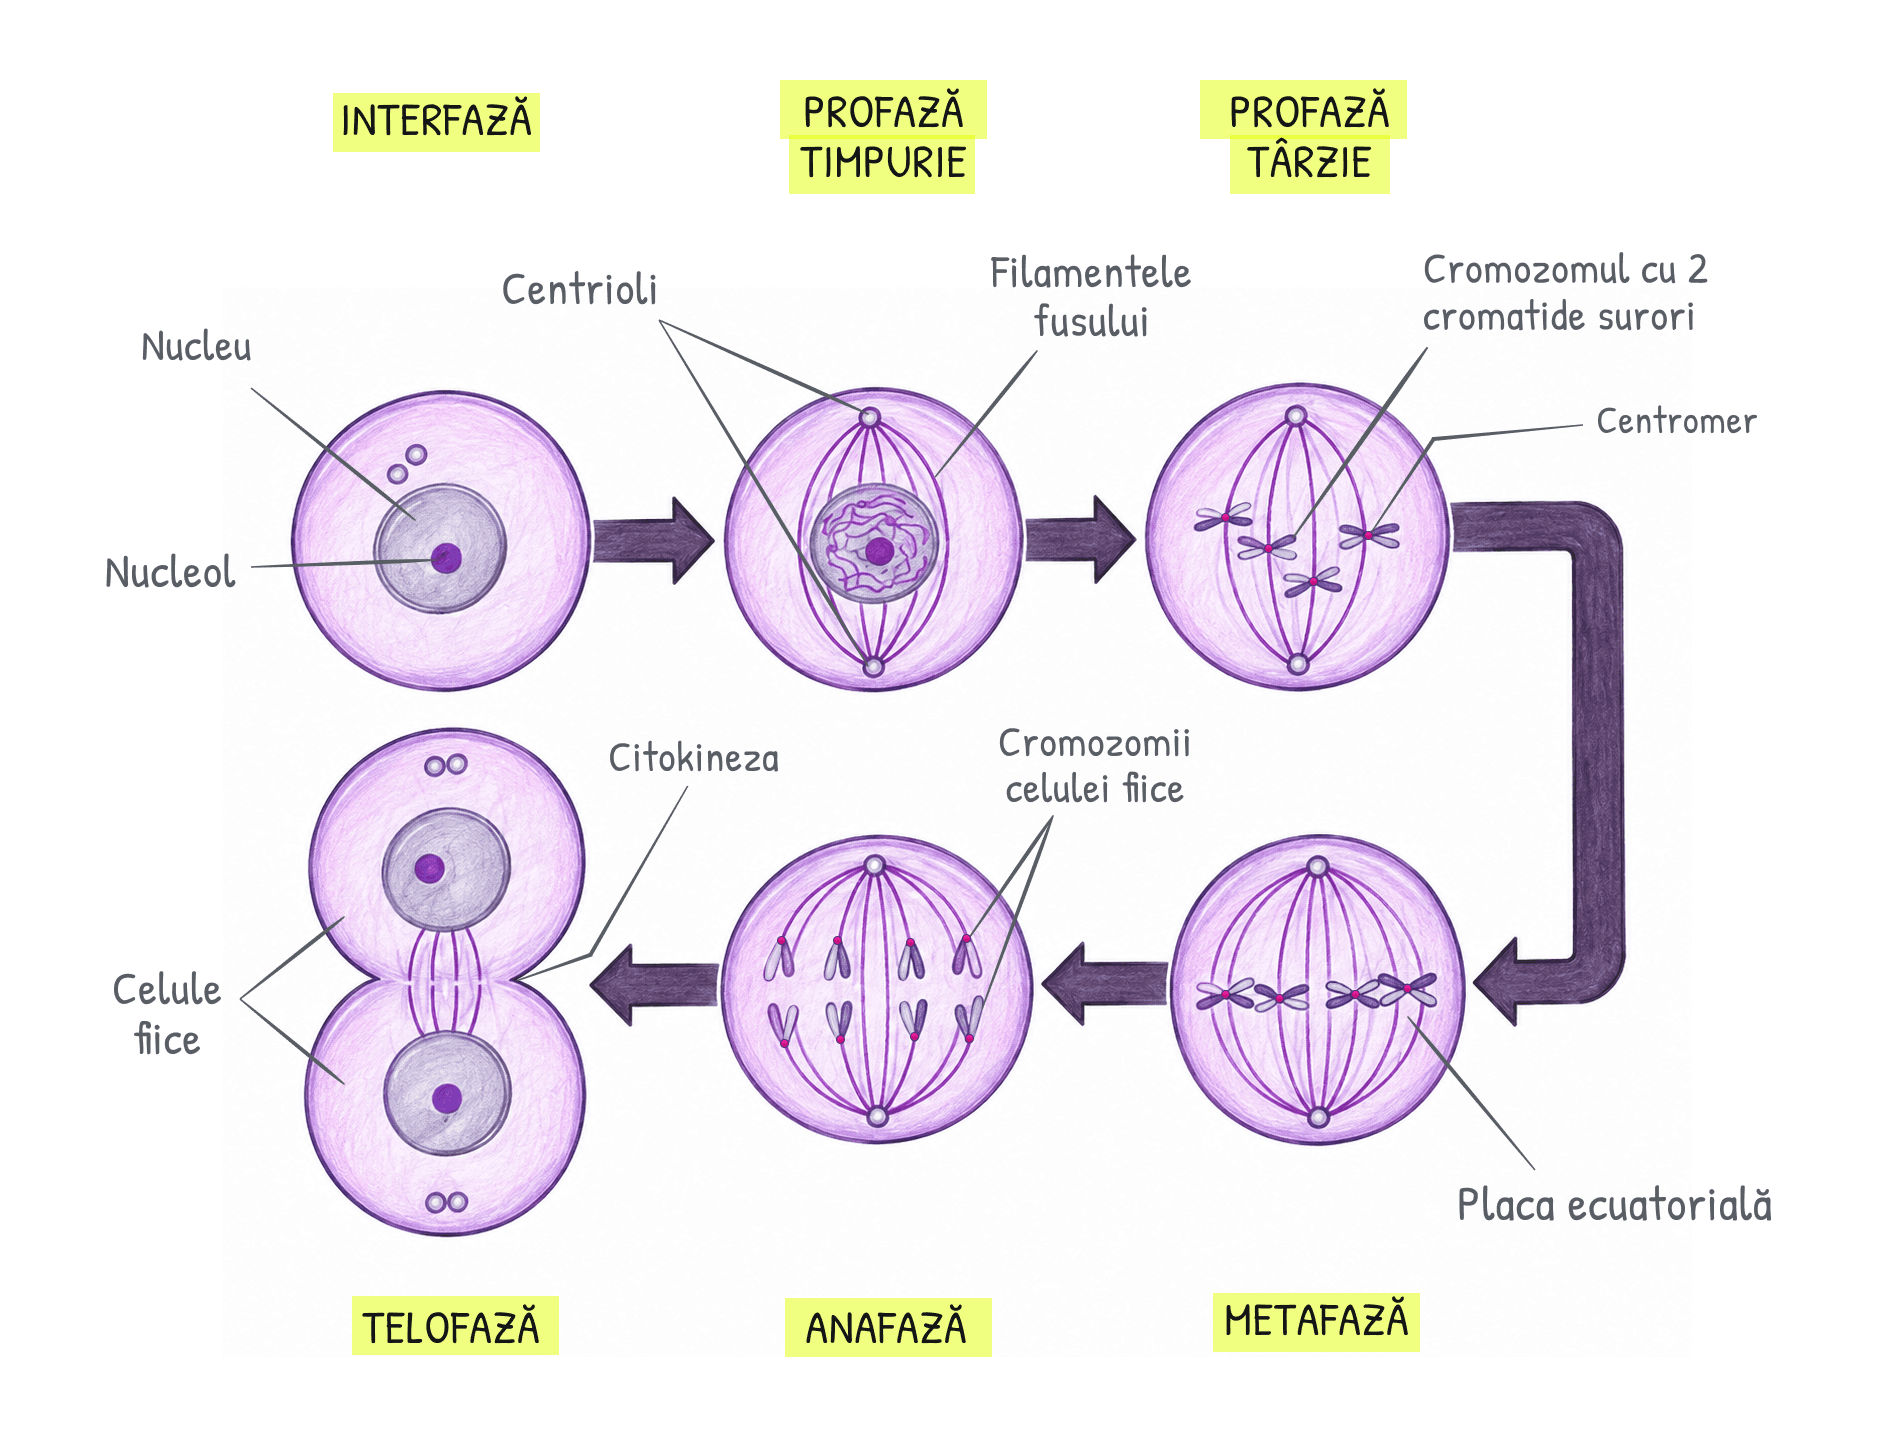
Fig. 3.8 · Biologie Barron's · p. 57
Procesul mitozei în celulele umaneFigura urmărește o celulă umană de-a lungul mitozei, perioada ciclului celular în care ADN-ul nuclear este împărțit în două celule fiice. În inelul ciclului celular din Figura 3.7, mitoza ocupă doar o felie îngustă, pe care figura de față o desface pe etape. Desenul se citește în sensul săgeților: de la stânga la dreapta pe rândul de sus, apoi, după săgeata cotită din dreapta, de la dreapta la stânga pe rândul de jos. Pentru claritate, sunt desenați doar câțiva cromozomi, nu toți cei 46 ai unei celule umane. Termenul „mitoză” derivă din latinescul „mito”, care înseamnă „filament”. Mitoza este un proces continuu, pe care oamenii de știință l-au împărțit, pentru comoditate, în patru faze: profază, metafază, anafază și telofază. Figura adaugă la început interfaza, din care celula pornește, și prezintă profaza în două momente. Interfaza În interfază, nucleul este delimitat de învelișul nuclear, o membrană dublă, desenată ca un contur dublu. Cromozomii din nucleu, alcătuiți din ADN și histone, sunt despiralizați și formează cromatina, o masă dispersată în care nu pot fi deosebiți unul de altul. În mijlocul nucleului se află nucleolul, un corpuscul dens, fără membrană, alcătuit din proteine și ARN, care conține materiale necesare formării ribozomilor. Lângă nucleu se văd cei doi centrioli, în formă de tijă, care alcătuiesc centrozomul. Acesta facilitează distribuția cromozomilor către celulele fiice. Chiar dacă nu se vede, celula s-a pregătit deja de diviziune. În faza S, ADN-ul s-a replicat, așa că fiecare dintre cei 46 de cromozomi are acum două cromatide, atașate la centromer. În faza G2, proteinele se organizează pentru a forma fusul de diviziune, ale cărui filamente, alcătuite din microtubuli, devin vizibile abia în profază. Profaza Profaza începe cu condensarea cromatinei și formarea de filamente vizibile. Fiecare filament cromozomial există în două copii, numite cromatide surori, unite într-o regiune numită centromer. Figura surprinde două momente ale acestei faze: Profaza timpurie: nucleul, cu învelișul și nucleolul lui, se mai vede, dar în interiorul lui cromatina a început să se condenseze în filamente ondulate. Centriolii au migrat spre polii opuși ai celulei, iar între ei se întind filamentele fusului. Odată ajunși la poli, centriolii sunt înconjurați de microtubuli radiari numiți aster, pe care desenul nu îi redă separat. Profaza târzie: nucleolul a dispărut, iar membrana nucleară s-a dezasamblat, așa că cromozomii apar direct printre filamentele fusului. Fiecare are forma unui „X”: este un cromozom cu 2 cromatide surori, unite la centromer. La nivelul centromerului se află kinetocorul, structura prin care cromatidele se atașează de filamentele fusului. Kinetocorii conțin o proteină motorie care asigură deplasarea cromozomilor prin celulă, iar aceștia pornesc spre centrul celulei. Metafaza Toate perechile de cromatide sunt aliniate în planul ecuatorial al celulei, la jumătatea distanței dintre poli, formând placa ecuatorială sau placa metafazică. Într-o celulă umană, aici sunt aliniate 92 de cromatide în 46 de cromozomi. Fiecare cromozom este conectat, la nivelul kinetocorului, cu filamentele fusului. În acest moment, cele două cromatide se separă una de cealaltă, iar fiecare dintre ele este numită, de acum, cromozom. Anafaza Centromerii se clivează, iar cromozomii se îndepărtează unul de celălalt, fiecare fiind tras de un filament al fusului spre unul dintre polii celulei. Pe măsură ce migrează, cromozomii iau forma literei „V”: sunt atașați de fus doar în regiunea de mijloc (centromerul), așa că mijlocul lor merge înainte, iar capetele, numite telomere, rămân în urmă. Spre fiecare pol se deplasează câte 46 de cromozomi, cromozomii celulei fiice. Telofaza Cromozomii ajung la polii opuși ai celulei, se despiralizează și se dispersează, formând din nou mase de cromatină. Fusul, asamblat pentru fiecare mitoză, se dezasamblează acum (din el au mai rămas doar câteva filamente, întrerupte la mijlocul celulei). Reapar nucleolii și se reface învelișul nuclear, așa că fiecare jumătate a celulei are din nou un nucleu cu nucleol. Tot în telofază se finalizează citokineza, diviziunea efectivă a celulei, numită și clivaj celular. Ea începe cu un șanț de clivare la nivelul plăcii ecuatoriale, care în desen apare ca strangularea din mijlocul celulei. Microfilamentele se contractă, iar membrana celulară strangulează citoplasma, care se divide în două. Rezultă două celule fiice, fiecare cu un set de 46 de cromozomi, cu propriul nucleu și cu proprii centrioli. Fiecare începe apoi un nou ciclu celular cu faza G1. Rolul mitozei Mitoza și citokineza permit organismului să crească prin formarea de noi celule și înlocuiesc celulele îmbătrânite sau deteriorate. De aceea, controlul mitozei este esențial. Când se pierde, de obicei din cauza unei mutații ADN, poate apărea cancerul, adică mitoze necontrolate și răspândirea celulelor canceroase prin organism.
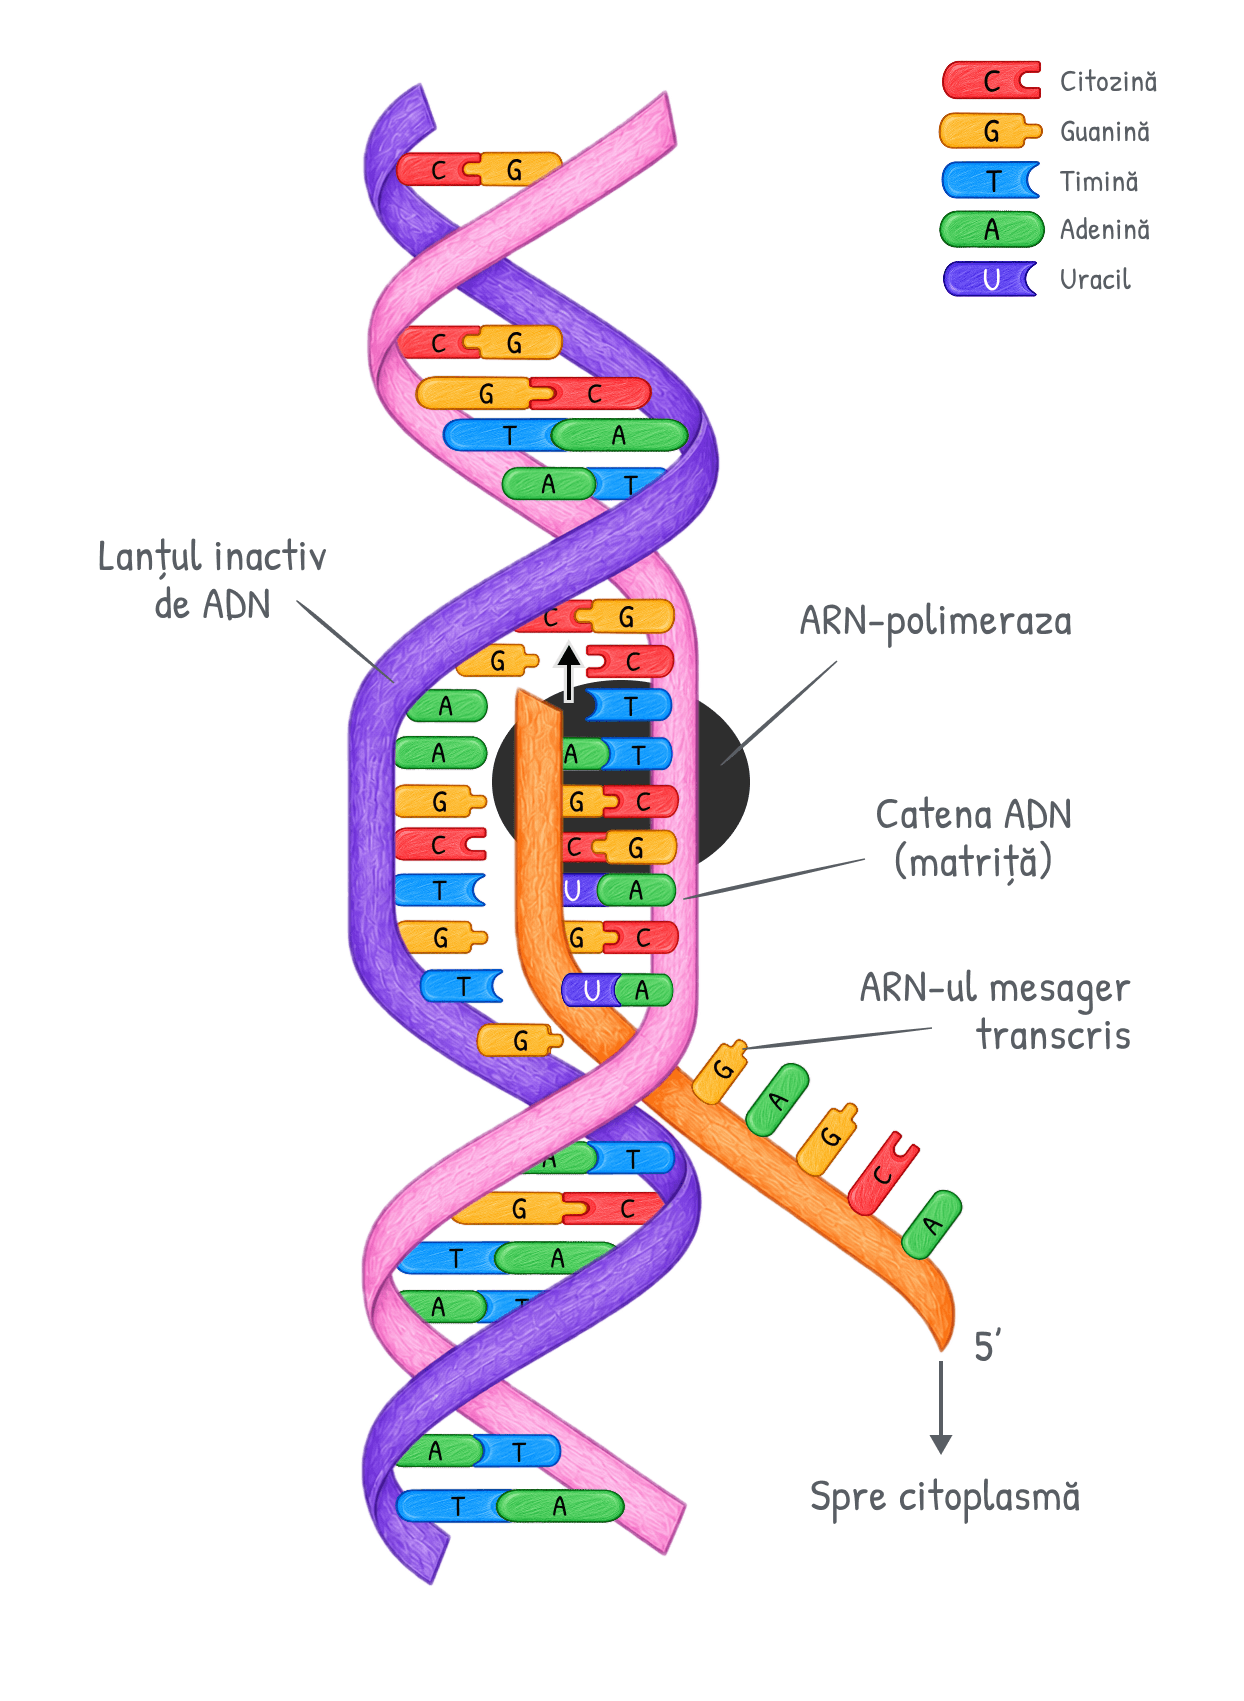
Fig. 3.9 · Biologie Barron's · p. 60
Transcripția: sinteza ARN-ului mesagerFigura arată transcripția, prima etapă a sintezei proteice. În acest proces, o catenă de ARN mesager (ARNm) se formează după secvența de baze complementare dintr-o catenă de ADN. Informația din ADN este astfel transcrisă pe o moleculă de ARN, care va duce mesajul genetic în citoplasmă, acolo unde se sintetizează proteinele. Dublul helix de ADN, a cărui structură este prezentată în Figura 2.8, este desenat vertical. Sus și jos, cele două catene sunt răsucite una în jurul celeilalte, iar bazele lor sunt împerecheate după regula din ADN: adenina cu timina, citozina cu guanina. La mijloc, catenele sunt desfăcute, iar acolo lucrează enzima care construiește ARNm. Săgeata de pe enzimă arată sensul în care aceasta se deplasează, în sus, iar ARNm deja format rămâne în urma ei, dedesubt. Ce se vede în desen Lanțul inactiv de ADN: catena violet, care în porțiunea desfăcută trece prin stânga. Rămâne dormantă: nu este citită, iar bazele ei stau neîmperecheate. Catena ADN (matriță): catena roz din dreapta, după care se citește informația. În porțiunea desfăcută, bazele ei sunt împerecheate cu bazele noului ARN, cu excepția celor din dreptul săgeții, care urmează abia să fie citite. ARN-polimeraza: discul întunecat de la mijloc. Este enzima care se leagă de ADN la locul unde gena va fi exprimată și se deplasează de-a lungul catenei-matriță, citind nucleotidele una câte una. ARN-ul mesager transcris: catena portocalie, nouă, care crește în urma enzimei. Porțiunea deja formată se desprinde de matriță și iese din helix în dreapta jos. Capătul ei este notat 5′, iar săgeata „Spre citoplasmă” arată încotro va pleca molecula. Legenda din colțul din dreapta sus dă culoarea fiecărei baze azotate. Timina apare doar pe catenele de ADN, iar uracilul doar pe ARNm, pentru că ARN-ul conține uracil în loc de timină. Cum decurge procesul ARN-polimeraza se leagă de una dintre catenele dublului helix, la locul unde gena va fi exprimată, iar cealaltă catenă rămâne dormantă. Enzima se deplasează de-a lungul catenei-matriță și citește nucleotidele una câte una. Sunt selectate nucleotidele disponibile cu baze complementare, care se așază astfel încât să formeze molecula de ARNm, după principiul complementarității bazelor azotate. Lanțul de ARNm se alungește până când se primește un semnal de terminare a procesului. Când sinteza este completă, molecula de ARNm trece printr-un por al membranei nucleare și ajunge în citoplasmă, la ribozomi. Între timp, molecula de ADN se răsucește la loc și formează din nou un dublu helix. Regula de împerechere ARN-ul seamănă cu ADN-ul, cu două excepții: conține glucida riboză în loc de dezoxiriboză, iar nucleotidele lui conțin baza azotată uracil în loc de timină. La împerechere se vede a doua diferență: noile nucleotide se așază după aceleași reguli ca în ADN, doar că în locul timinei apare uracilul. Citozină în ADN: în ARN este inserată guanină, și viceversa. Timină în ADN: în ARN este plasată adenină. Adenină în ADN: în ARN este inserat uracil. Perechile se pot verifica pe desen, în porțiunea desfăcută: în dreptul fiecărei adenine de pe matriță, ARNm are uracil, în dreptul timinei deja transcrise are adenină, iar citozinele și guaninele sunt împerecheate între ele. Dacă citești apoi, rând cu rând, în rândurile deja transcrise, bazele lanțului inactiv și pe cele ale ARNm, vei vedea aceeași succesiune, cu uracil în locul fiecărei timine. Nu e o coincidență: ambele catene sunt complementare cu aceeași matriță. Codonii Nucleotidele catenei de ARNm se citesc în grupe de câte trei, numite codoni. Un codon poate fi, de exemplu, CGA (citozină-guanină-adenină), CUC, AAA sau orice altă combinație a celor 4 nucleotide. Succesiunea codonilor este mesajul pe care ARNm îl duce la ribozomi, unde, în etapa următoare, translația (Figura 3.10) stabilește ordinea aminoacizilor din proteină. De reținut Manualul rezumă transcripția într-o singură frază: „Transcripția reprezintă sinteza de ARNm, utilizând secvența de baze a ADN-ului pentru a determina secvența ARNm.” Locul transcripției în ansamblul sintezei proteice (în nucleu, înaintea deplasării ARNm în citoplasmă și a translației la ribozom) este rezumat în Figura 3.11.

Fig. 3.10 · Biologie Barron's · p. 61
Translația: de la ARNm la lanțul proteicFigura arată translația, procesul prin care codul genetic este „decodificat” într-o secvență de aminoacizi din proteină. Este etapa sintezei proteice în care secvența de codoni a ARNm ghidează secvența de aminoacizi a proteinei. În Figura 3.11, care prezintă pe scurt întreaga sinteză proteică, translația la ribozom vine după transcripția din nucleu și după deplasarea ARNm în citoplasmă. Desenul surprinde un singur moment al unui proces aflat deja în desfășurare. Pornește de la banda orizontală de jos, molecula de ARNm, și de la ribozomul care o cuprinde. Săgețile de sub ARNm arată sensul în care înaintează ribozomul, spre dreapta. Moleculele de ARNt încărcate cu aminoacizi sosesc din dreapta sus, cea care și-a predat aminoacidul pleacă prin stânga, iar lanțul proteic în creștere se întinde deasupra ribozomului, spre stânga. Participanții ARNm (ARN-ul mesager) primește codul genetic al ADN-ului și îl transportă în citoplasmă. A fost sintetizat în nucleu, prin transcripție (Figura 3.9), apoi a trecut printr-un por al membranei nucleare și a ajuns la ribozomi. Bazele lui sunt expuse în seturi de câte trei, numite codoni. În figură se citesc, de la stânga la dreapta, codonii UAC, GGG, ACU și AGU. Ribozomul este masa rotunjită din jurul ARNm, în dreptul codonilor UAC și GGG. Ribozomii sunt particule citoplasmatice de ARN și proteine care leagă aminoacizii între ei pentru a forma proteine. ARNt (ARN-ul de transfer) se găsește liber în citoplasmă și transportă aminoacizii la ribozomi. Fiecare moleculă notată ARNt poartă la un capăt aminoacidul specific de care s-a atașat, notat AA, iar la celălalt un anticodon, o secvență de trei baze azotate. În dreapta sus așteaptă mai multe molecule încărcate, fiecare cu aminoacidul și anticodonul ei (de exemplu UAC sau UCA). Aminoacizii sunt formele notate AA, iar forme geometrice diferite (triunghi, pătrat, cerc, hexagon) marchează aminoacizi diferiți. Formele izolate, fără etichetă, care plutesc în jur sunt aminoacizi încă neatașați de vreun ARNt. Pentru sinteza proteică este necesară o rezervă de 20 de aminoacizi, care compun majoritatea proteinelor. Lanțul proteic în creștere este șirul de patru aminoacizi legați între ei care pornește de deasupra ribozomului spre stânga. Triunghiul și pătratul nu mai sunt prinse de niciun ARNt, iar cercul și hexagonul sunt încă ținute de cele două molecule de ARNt de pe ribozom. Legătura formată între doi aminoacizi se numește legătură peptidică (Figura 2.7), iar șirul care crește este numit și lanț peptidic. Potrivirea codon-anticodon Anticodonul unei molecule de ARNt este complementar cu un anumit codon de pe ARNm. În figură se vede regula după care se împerechează bazele: adenina cu uracilul și guanina cu citozina. ARNt cu anticodonul AUG este împerecheat cu codonul UAC, cel cu anticodonul CCC cu codonul GGG, iar ARNt care sosește, cu anticodonul UGA, este îndreptat de săgeata oblică spre codonul ACU. Această potrivire plasează fiecare aminoacid într-o anumită poziție, apoi aminoacidul este atașat lanțului proteic. Astfel, ordinea codonilor hotărăște ordinea aminoacizilor, iar codul genetic este translatat într-o secvență de aminoacizi a unei proteine. Cum înaintează procesul Procesul începe cu atașarea moleculei de ARNm la ribozom. Între timp, moleculele de ARNt se atașează de aminoacizii specifici pe care îi transportă la ribozomi. Când un codon al ARNm își întâlnește anticodonul de pe o moleculă de ARNt, bazele lor se împerechează. Următorul codon se împerechează cu anticodonul complementar al unui al doilea ARNt. Aminoacidul adus de acesta este poziționat lângă primul, iar primul aminoacid este legat de al doilea cu ajutorul unei enzime ribozomale. Prima moleculă de ARNt revine în citoplasmă pentru a căuta alt aminoacid. În figură, o astfel de moleculă, marcată „Eliberare”, pleacă prin stânga ribozomului, fără aminoacid. Ribozomul se deplasează pe ARNm cu un codon, iar un al treilea ARNt, cu aminoacidul său, leagă următorul codon. Ribozomul deplasează peptidul format din primii doi aminoacizi pentru a putea atașa al treilea aminoacid. Apoi al doilea ARNt pleacă și el, iar ribozomul înaintează cu încă un codon. Procesul continuă, adăugând lanțului peptidic câte un singur aminoacid, până când se întâlnește un codon stop. Există trei codoni stop. Ei nu codifică aminoacizi, ci anunță ribozomul să nu mai adauge aminoacizi când proteina este completă. După translație Odată sintetizată, proteina este îndepărtată din ribozom pentru a fi procesată în continuare. Ea poate fi modificată în aparatul Golgi și depozitată în vezicule secretoare înainte de a fi eliberată de celulă, poate fi trimisă lizozomilor ca enzimă digestivă sau poate fi folosită de celulă ca un component structural. Molecula de ARNm este degradată, iar nucleotidele ei se întorc în nucleu. Moleculele de ARNt așteaptă în citoplasmă noi aminoacizi, iar ribozomii, o nouă moleculă de ARNm, pentru a sintetiza o nouă proteină.
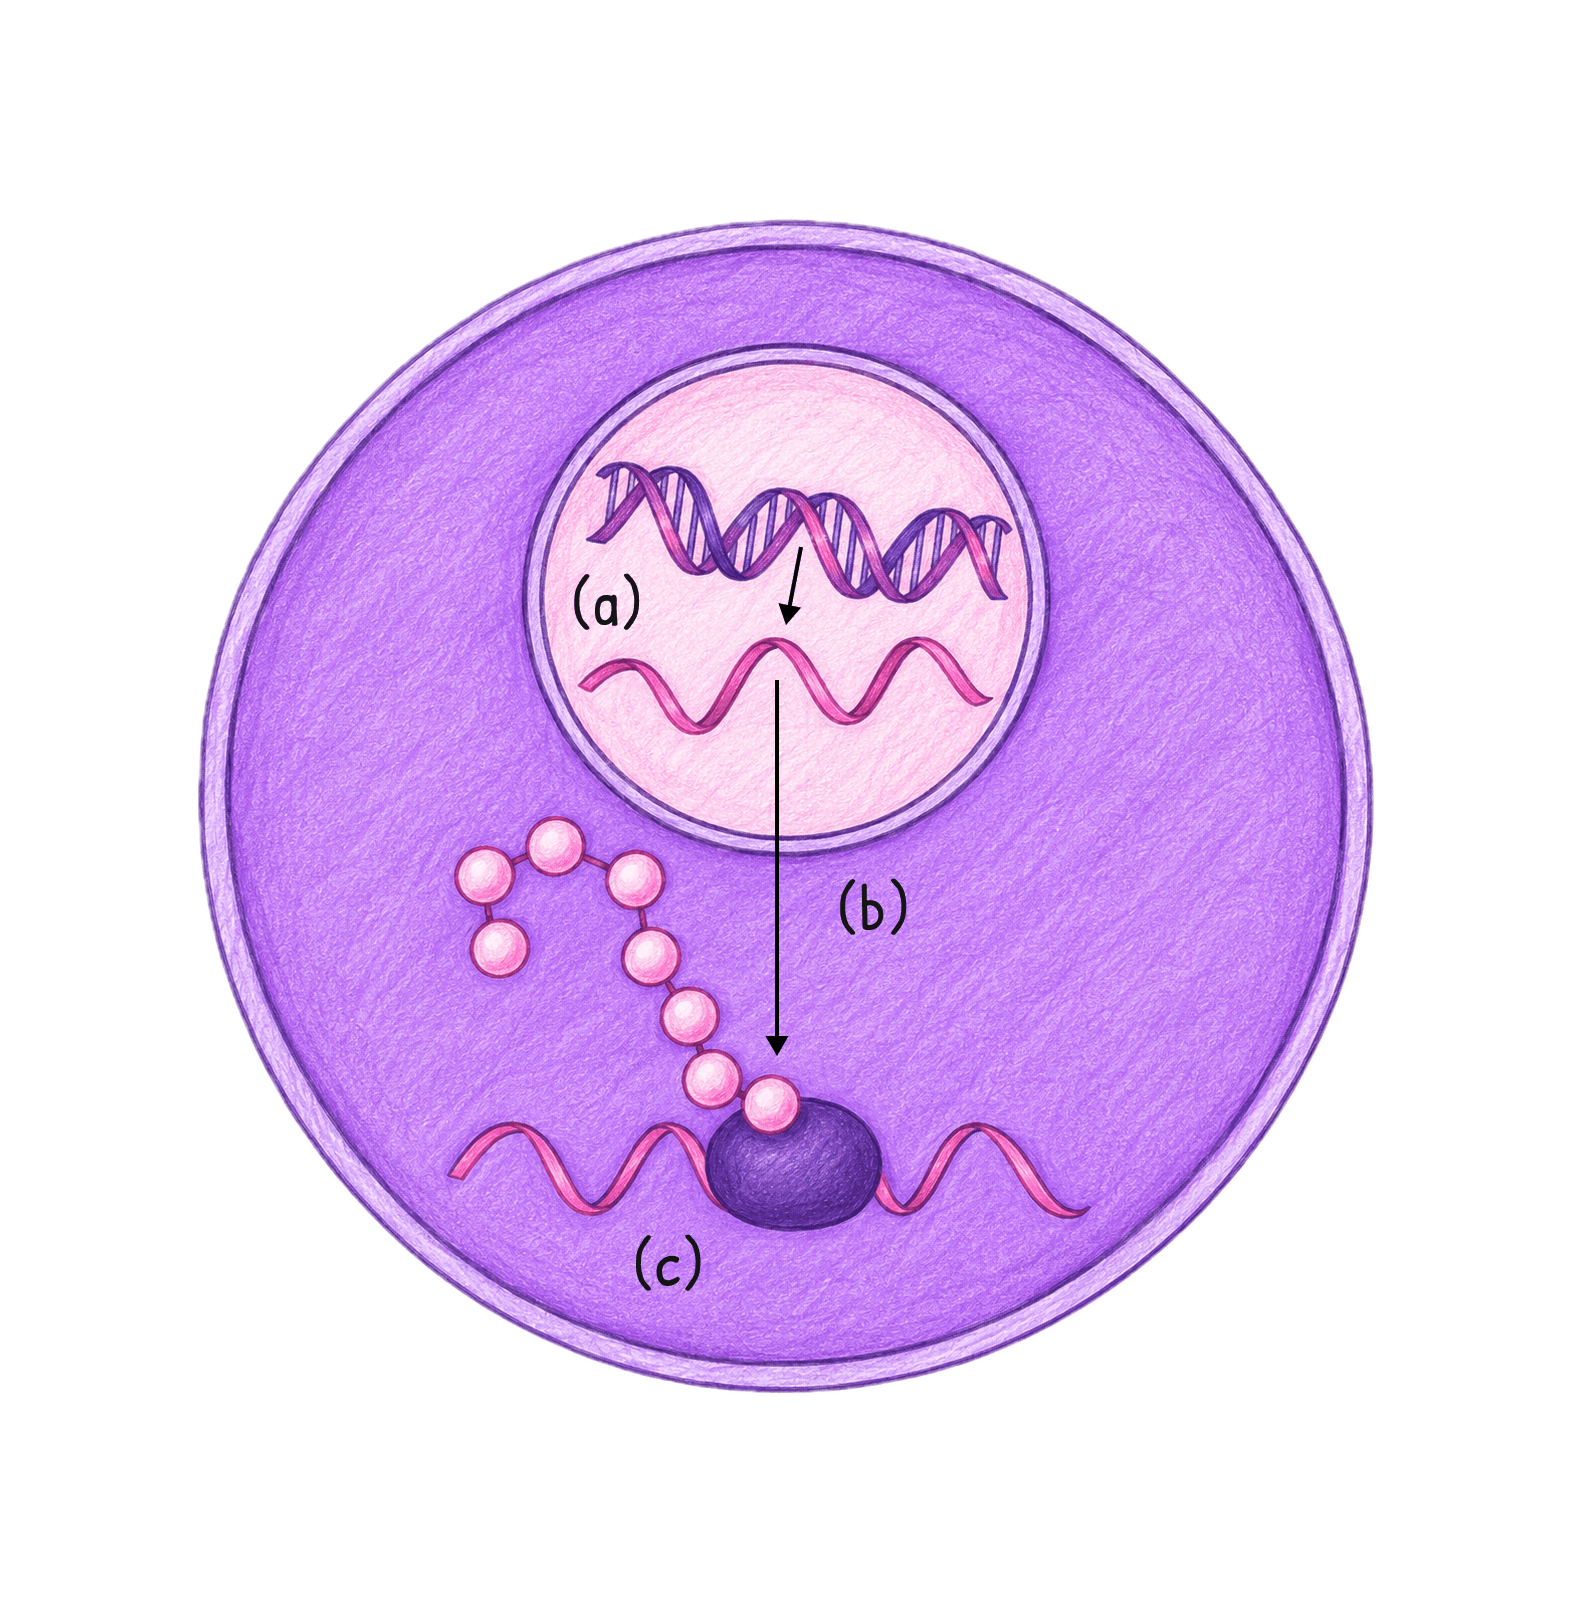
Fig. 3.11 · Biologie Barron's · p. 62
Prezentare generală a sintezei proteiceFigura adună într-o singură celulă întregul drum al sintezei proteice. Cea mai importantă componentă structurală a unei proteine este secvența în care sunt legați aminoacizii ei, iar această secvență este determinată de codul genetic, adică de ordinea bazelor azotate din ADN. ADN-ul se află în nucleu, dar proteinele se sintetizează în citoplasmă, iar legătura dintre cele două o face ARN-ul, care duce instrucțiunile ADN-ului până acolo. Cercul mare este celula, iar cercul mai mic, din partea de sus, este nucleul. Tot spațiul dintre conturul nucleului și cel al celulei reprezintă citoplasma. Citește figura de sus în jos, urmărind săgețile și literele (a), (b) și (c): transcripția în nucleu, deplasarea ARNm în citoplasmă și translația la ribozom. (a) Transcripția, în nucleu Sus, în nucleu, ADN-ul este desenat ca dublu helix. Săgeata scurtă care coboară din el reprezintă transcripția, prima etapă a sintezei proteice: folosind secvența de baze a ADN-ului, se sintetizează o catenă de ARNm, firul ondulat de sub helix. Enzima ARN-polimerază se leagă de una dintre catenele ADN, în locul unde gena urmează să fie exprimată (cealaltă catenă rămâne dormantă), și înaintează de-a lungul ei, citind nucleotidele una câte una. Nucleotidele ARNm sunt așezate după principiul complementarității bazelor azotate: în dreptul citozinei din ADN vine guanina și invers, în dreptul timinei vine adenina, iar în dreptul adeninei vine uracilul, pentru că ARN-ul conține uracil în loc de timină. Lanțul de ARNm crește până la primirea unui semnal de terminare. Nucleotidele lui se citesc în grupe de câte trei, numite codoni (de exemplu CGA, adică citozină, guanină, adenină). Procesul este prezentat în detaliu în Figura 3.9. (b) Deplasarea ARNm în citoplasmă Săgeata lungă pornește de la ARNm din nucleu, trece de conturul nucleului și coboară prin citoplasmă până la ribozom. Ea arată ce se întâmplă când sinteza ARNm este completă: molecula iese din nucleu printr-un por al membranei nucleare și ajunge la ribozomi. Porii membranei nucleare sunt chiar căile prin care interiorul nucleului comunică cu citoplasma. Între timp, ADN-ul se răsucește la loc și formează din nou un dublu helix. (c) Translația, la ribozom Jos, în citoplasmă, molecula de ARNm ajunsă aici este atașată de ribozom, corpusculul rotunjit în dreptul căruia se oprește săgeata. Translația este procesul prin care codul genetic este „decodificat” într-o secvență de aminoacizi, iar ea începe chiar cu această atașare. Secvența de codoni a ARNm ghidează secvența de aminoacizi a proteinei. Aminoacizii sunt aduși la ribozom de moleculele de ARNt, care nu sunt desenate în această figură. Fiecare ARNt poartă un aminoacid specific și are un anticodon, care se împerechează cu codonul complementar al ARNm. Aminoacidul nou adus este legat de cel dinaintea lui cu ajutorul unei enzime ribozomale. ARNt-ul care adusese aminoacidul precedent se îndepărtează și revine în citoplasmă să caute alt aminoacid, iar ribozomul se deplasează pe ARNm cu încă un codon. Așa crește lanțul de aminoacizi, șirul de cerculețe care pornește din ribozom și se încolăcește în sus, spre stânga. Lanțului i se adaugă câte un singur aminoacid, până se ajunge la unul dintre cei trei codoni stop. Aceștia nu codifică aminoacizi, ci anunță ribozomul să nu mai adauge alții, pentru că proteina este completă. Etapa este prezentată în detaliu în Figura 3.10. Ce se întâmplă apoi Proteina gata sintetizată este desprinsă de pe ribozom și procesată mai departe. Poate fi modificată în aparatul Golgi și păstrată în vezicule secretoare până când celula o eliberează, poate fi trimisă lizozomilor, unde servește ca enzimă digestivă, sau poate fi folosită de celulă ca material de structură. ARNm este degradat, iar nucleotidele lui se întorc în nucleu. Moleculele de ARNt așteaptă în citoplasmă noi aminoacizi de care să se lege, iar ribozomii sunt pregătiți pentru sosirea unei noi molecule de ARNm, pe baza căreia vor sintetiza o nouă proteină.
- 4ȚesuturilePaginile 73 - 87
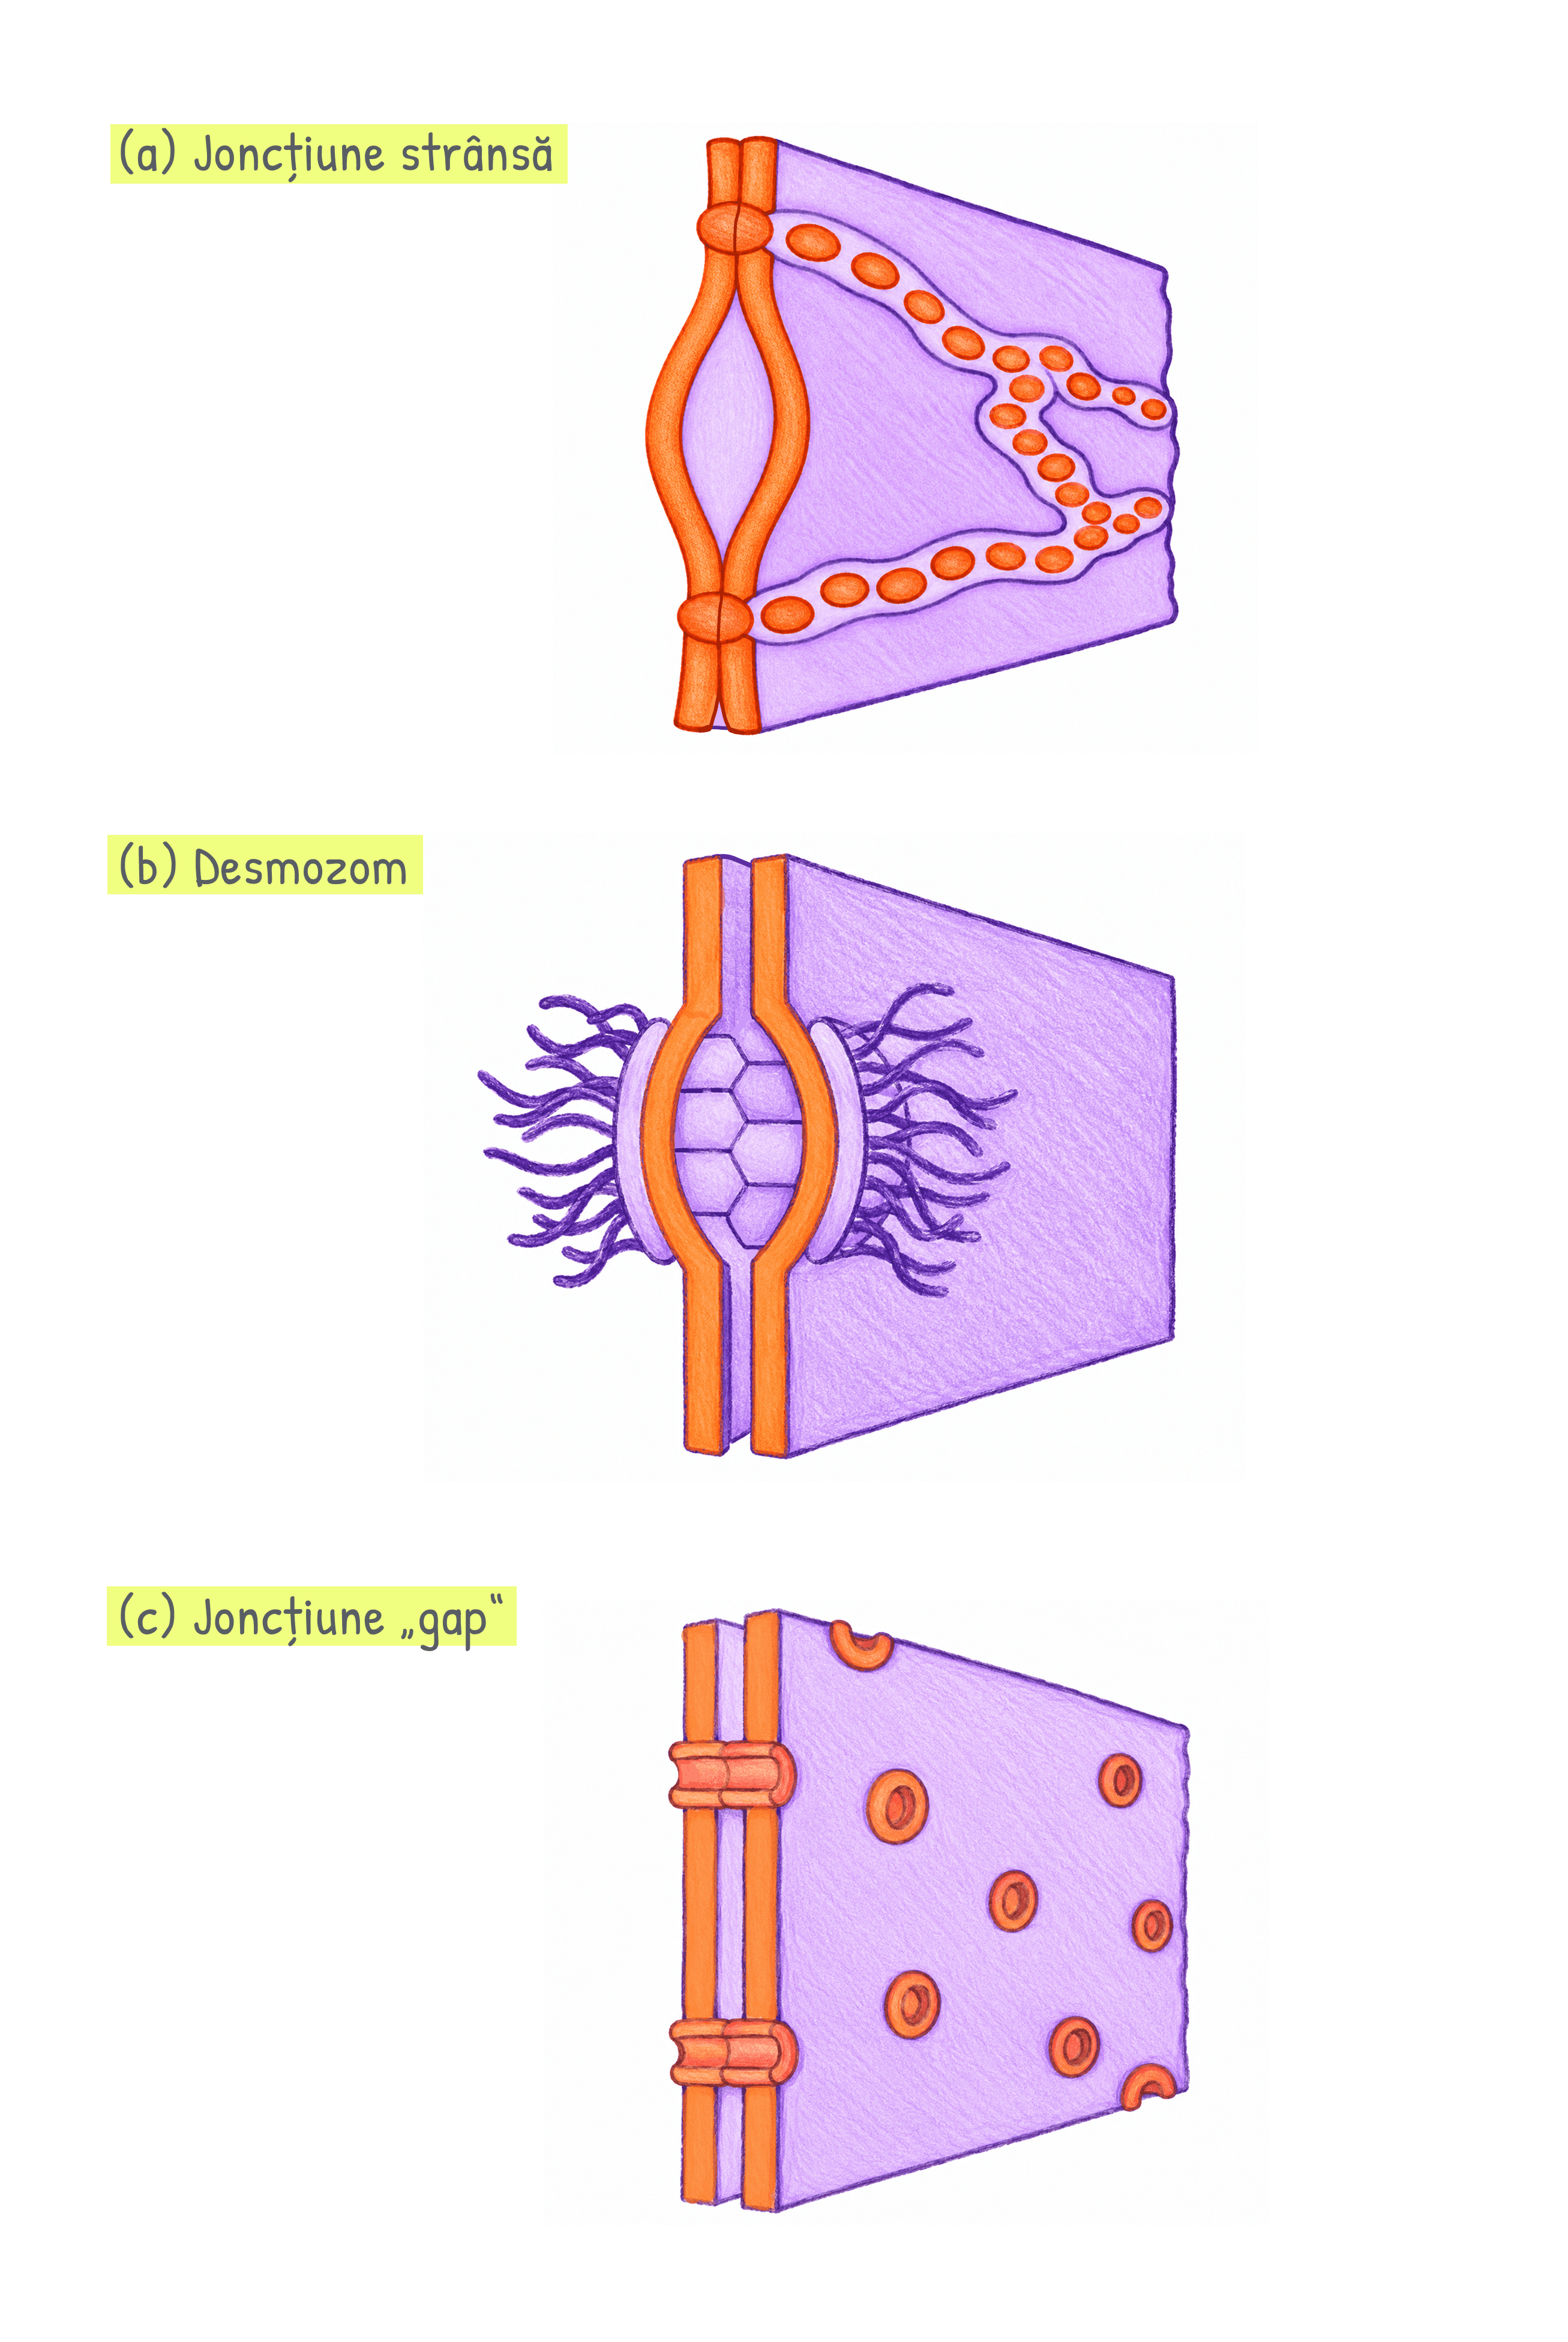
Fig. 4.1 · Biologie Barron's · p. 75
Joncțiunile celulare: strânse, desmozomi și „gap”Figura prezintă cele trei tipuri de joncțiuni care pot fi întâlnite între celulele țesuturilor umane. Fiecare panou arată două celule vecine, văzute în secțiune, cu membranele lor față în față, și, în plan, suprafața uneia dintre membrane. Ce diferă de la un panou la altul sunt structurile care leagă membranele și spațiul rămas între ele. (a) Joncțiunea strânsă Joncțiunile strânse se dispun de jur împrejurul celulelor, legându-le strâns de celulele învecinate. O astfel de joncțiune se formează în urma alipirii membranelor celulelor adiacente, prin cuplarea unor lipoproteine între ele în spațiul intercelular, care devine foarte redus. În figură, șirurile de joncțiuni strânse apar ca lanțuri de puncte care înconjoară celula, iar în locurile de fuziune spațiul extracelular dispare cu totul. Benzile de proteine izolează porțiuni ale membranei celulare și formează o barieră ce împiedică trecerea substanțelor printre celule. (b) Desmozomul Desmozomii sunt joncțiuni punctiforme între celule, cu rol de ancorare. Între membranele celulare alăturate rămâne un mic spațiu, de dimensiuni electronomicroscopice, cu o mărime normală, de 24 nm. Prin acest spațiu trec glicoproteine transmembranare (molecule proteice cuplate cu molecule glucidice), care unesc celulele între ele. Ele pornesc dintr-o porțiune îngroșată a fiecărei membrane, de care sunt ancorate, în interiorul celulei, filamente de cheratină. Desmozomii sunt joncțiuni aderențiale: structuri interconectate ce unesc membranele adiacente și cuplează strâns celulele între ele. (c) Joncțiunea „gap” (comunicantă) În cadrul acestui tip de joncțiune, între celule există căi de trecere tubulare și canale care permit trecerea ionilor și a moleculelor dintr-o celulă în alta. Canalele sunt formate din proteine membranare care străbat ambele membrane și spațiul intercelular, mult redus, de 2 nm. Pentru că ocupă întreaga grosime a membranelor, ele sunt proteine transmembranare, iar în membrana plasmatică proteinele transmembranare servesc tocmai drept canale pentru transportul membranar (Figura 3.1). Văzute din față, canalele apar ca pori pe suprafața membranei. Joncțiunile „gap” facilitează comunicarea electrică între celule. Apar în țesutul muscular neted și în cel cardiac, dar nu și în țesuturile epiteliale. În mușchiul cardiac, celulele sunt unite prin grupări specializate de joncțiuni „gap”, numite discuri intercalare, prin care impulsul electric ce declanșează contracția trece ușor de la o celulă la alta. În mușchiul neted unitar, fibrele unite prin joncțiuni „gap” se contractă ritmic, ca o unitate. Comparație Celulele epiteliale sunt de obicei strâns unite prin joncțiuni strânse și aderențiale. Cele trei tipuri se deosebesc prin ce fac cu spațiul dintre celule: joncțiunea strânsă îl desființează și îl transformă în barieră, desmozomul îl păstrează și îl traversează cu ancore, iar joncțiunea „gap” îl străbate cu canale deschise pentru comunicare.

Fig. 4.2 · Biologie Barron's · p. 77
Tipuri de țesuturi epitelialeFigura pune alături șase tipuri de țesuturi epiteliale, desenate ca mici blocuri de țesut văzute în spațiu și așezate pe două rânduri de câte trei. Fața din față a fiecărui bloc arată epiteliul în secțiune, cu celulele dispuse într-un singur strat sau în mai multe, iar fața de sus arată suprafața epiteliului privită de deasupra. Aceste țesuturi se găsesc în structura diferitelor organe ale corpului uman. În toate blocurile celulele stau lipite unele de altele. Celulele epiteliale sunt, de obicei, strâns unite între ele prin joncțiuni strânse și aderențiale (Figura 4.1). Sub celule se vede o bandă îngustă, nedenumită în figură, care marchează partea bazală a epiteliului, cea prin care acesta este ancorat de țesutul conjunctiv subiacent prin intermediul membranei bazale. Țesutul epitelial nu este vascularizat și primește substanțele nutritive din vasele sanguine ale acestui țesut conjunctiv. Cele două criterii după care se deosebesc Ca să recunoști un epiteliu în desen, te uiți la două lucruri: Forma celulelor. Celulele plate (turtite) se numesc celule pavimentoase, iar cele cubice și cele cilindrice sunt denumite ca atare. Numărul de straturi. Un epiteliu cu un singur strat de celule este un epiteliu simplu, iar unul cu două sau mai multe straturi este un epiteliu stratificat. Epiteliul care pare să aibă mai multe straturi, dar este alcătuit în realitate dintr-un singur rând de celule cu înălțimi diferite, se numește epiteliu pseudostratificat. Rândul de sus: cele trei epitelii simple Toate trei au un singur strat de celule. Le deosebește înălțimea celulelor, care crește de la stânga la dreapta. Epiteliul simplu pavimentos este blocul cel mai subțire, cu un singur strat de celule turtite, care, privite de sus, formează un mozaic de plăci mari, fiecare cu nucleul în mijloc. Căptușește vasele de sânge și pe cele limfatice, unde are denumirea de endoteliu, și cavitățile interne, unde se numește mezoteliu. Apare și în canalele de mici dimensiuni din majoritatea glandelor, în anumite părți ale tubilor renali și în porțiunile terminale ale sistemului respirator. Principalele lui funcții sunt protecția și absorbția. Epiteliul simplu cubic are celule de formă cubică, fiecare cu nucleul rotund dispus central. Apare în multe glande, în porțiunea secretoare și în ductele unora dintre ele, precum și într-o parte din tubii renali. Tot el alcătuiește epiteliul pigmentar al retinei și se mai găsește pe suprafața ovarului și pe fața anterioară a cristalinului. Are funcție de protecție și secreție. Epiteliul simplu cilindric are celule înalte, cu nucleii localizați în porțiunea bazală, deci mai aproape de bandă decât de suprafață. Căptușește tractul gastrointestinal și apare la nivelul trompelor uterine și al uterului, în unele porțiuni ale tractului respirator și în multe glande. Are funcție de protecție, secreție și absorbție. În epiteliul simplu cilindric al tractului digestiv apar și glande unicelulare sub formă de celule caliciforme, care secretă mucus. Rândul de jos: pseudostratificatul, stratificatul și uroteliul Toate cele trei blocuri par să aibă mai multe straturi de celule, dar la primul dintre ele impresia este înșelătoare. Epiteliul pseudostratificat cilindric pare stratificat pentru că nucleii apar la înălțimi diferite, iar unele celule se îngustează spre suprafață, altele spre bază. Toate celulele vin însă în contact cu membrana bazală, așa că, din punct de vedere structural, țesutul este alcătuit dintr-un singur strat de celule. Căptușește traheea și arborele bronșic superior, precum și porțiuni din ductele (canalele) sistemului reproducător și ale uretrei masculine. Funcțiile lui sunt protecția și secreția. Epiteliul stratificat pavimentos umple blocul cu numeroase straturi de celule mici, care devin tot mai turtite pe măsură ce se apropie de suprafață. Manualul îl descrie cu celule cubo-cilindrice la bază, cubice în stratul intermediar și pavimentoase la suprafață. Epidermul pielii este alcătuit din acest tip de țesut (Figura 5.2), iar straturile superficiale ale acestui epiteliu sunt uneori îmbibate cu o proteină dură, cheratina. Tapetează toate deschiderile organismului către exterior, precum gura, anusul, orificiile uretrei, ale urechilor și vaginul, și se găsește și în peretele esofagului. Funcția lui primordială este protecția, dar poate avea și rol de secreție și de absorbție limitată. Uroteliul (epiteliul tranzițional) are la suprafață celule mari și rotunjite, sub care se află mai multe straturi de celule alungite. Tapetează ureterele și vezica urinară, iar celulele lui își modifică forma ca reacție la distensie. Când vezica urinară este relaxată, poate prezenta 6-7 straturi de celule rotunjite, pe când în stare de distensie vezicală aceste celule se aplatizează. Celulele rotunjite de la suprafața blocului corespund, așadar, unei vezici relaxate. Principala lui funcție este protecția. Cele două epitelii stratificate care lipsesc din desen Epiteliul stratificat cubic este alcătuit din mai multe straturi de celule cubice. Căptușește canalele glandelor sudoripare și mai apare în tubii testiculari și în foliculii ovarieni. Funcția lui principală este protecția. Epiteliul stratificat cilindric este alcătuit din mai multe straturi de celule înalte. Este un țesut rar întâlnit în organism, prezent în uretra masculină, unde are rol de protecție. De reținut Epiteliile stratificate au mai multe straturi de celule, la fel ca uroteliul, pe când epiteliile simple și cel pseudostratificat sunt unistratificate.

Fig. 4.3 · Biologie Barron's · p. 80
Tipurile de glande exocrine pluricelulareFigura pune alături șase tipuri de glande exocrine pluricelulare, așezate pe două rânduri, ca să le poți compara dintr-o privire. Fiecare desen este o secțiune printr-o glandă. Sus se vede epiteliul de la suprafață, de unde glanda coboară în adâncime. Porțiunea secretorie se recunoaște după celulele ei mai mari, în timp ce restul peretelui este format din celule mici, înghesuite. Când compari desenele, urmărește două lucruri: dacă canalul este ramificat sau nu și ce formă are porțiunea secretorie, de tub (drept, încolăcit sau ramificat) ori de săculeț. Cheia clasificării: canalul O glandă pluricelulară este considerată simplă dacă ductul ei nu este ramificat, așa cum se întâmplă la cele patru glande din rândul de sus. Dacă glanda prezintă un canal de excreție ramificat, ea va fi numită compusă, ca cele două glande din rândul de jos. A doua deosebire ține de forma porțiunii secretorii: tubulară, când are formă de tub, și acinoasă, când are formă de acin, adică de săculeț. Rândul de sus: glandele simple Glanda tubulară simplă: unitatea secretoare este un tub drept care se deschide direct la suprafața epiteliului, fără canal excretor. Un exemplu îl reprezintă glandele intestinale. Glanda tubulară simplă încolăcită: tubul secretor este răsucit și se strânge ca un ghem la baza desenului, iar secreția este transportată la suprafață printr-un canal tubular neramificat. Așa arată glandele sudoripare. Glanda tubulară simplă ramificată: porțiunea secretorie tubulară prezintă ramificații, iar canalul poate lipsi. În desen, trei tuburi secretoare pornesc chiar de sub suprafață. Aici intră glandele gastrice și glandele uterine. Glanda acinoasă simplă ramificată (alveolară): porțiunea secretorie este formată din mai mulți acini (săculeți) situați de-a lungul unui canal secretor. În desen, la capătul canalului se grupează trei săculeți. Manualul dă ca exemplu glandele sebacee din piele. Rândul de jos: glandele compuse Glanda tubulară compusă: canalul se ramifică, iar ramurile lui se termină cu unități secretorii în formă de tuburi. Manualul dă ca exemple intestinul și testiculul. Glanda acinoasă compusă: canalul ramificat se termină cu unități secretorii în formă de săculeț. Exemplele manualului sunt glandele salivare submandibulară și sublinguală. Manualul mai descrie un al treilea tip de glandă compusă, pe care figura nu îl desenează: glanda tubulo-acinoasă, a cărei unitate secretorie este atât tubulară, cât și acinoasă. Exemplele sunt pancreasul și glanda parotidă. Așadar, dintre glandele salivare, glanda submandibulară și cea sublinguală sunt acinoase compuse, iar glanda parotidă este tubulo-acinoasă. Unde se încadrează aceste glande Toate glandele din figură sunt exocrine, adică își eliberează secreția prin intermediul unor canale, spre deosebire de glandele endocrine, care secretă hormoni direct în fluxul sanguin. Glandele exocrine se clasifică după numărul de celule care le alcătuiesc: cele unicelulare sunt alcătuite dintr-o singură celulă, iar celula caliciformă, care secretă mucină, este unicul exemplu din organismul uman. Toate celelalte sunt pluricelulare, ca cele din figură. Manualul le mai împarte după tipul de secreție (mucoasă, seroasă sau seromucoasă) și după tipul de activitate, în glande merocrine și holocrine, cele apocrine fiind un tip de glande merocrine (Figura 4.4).
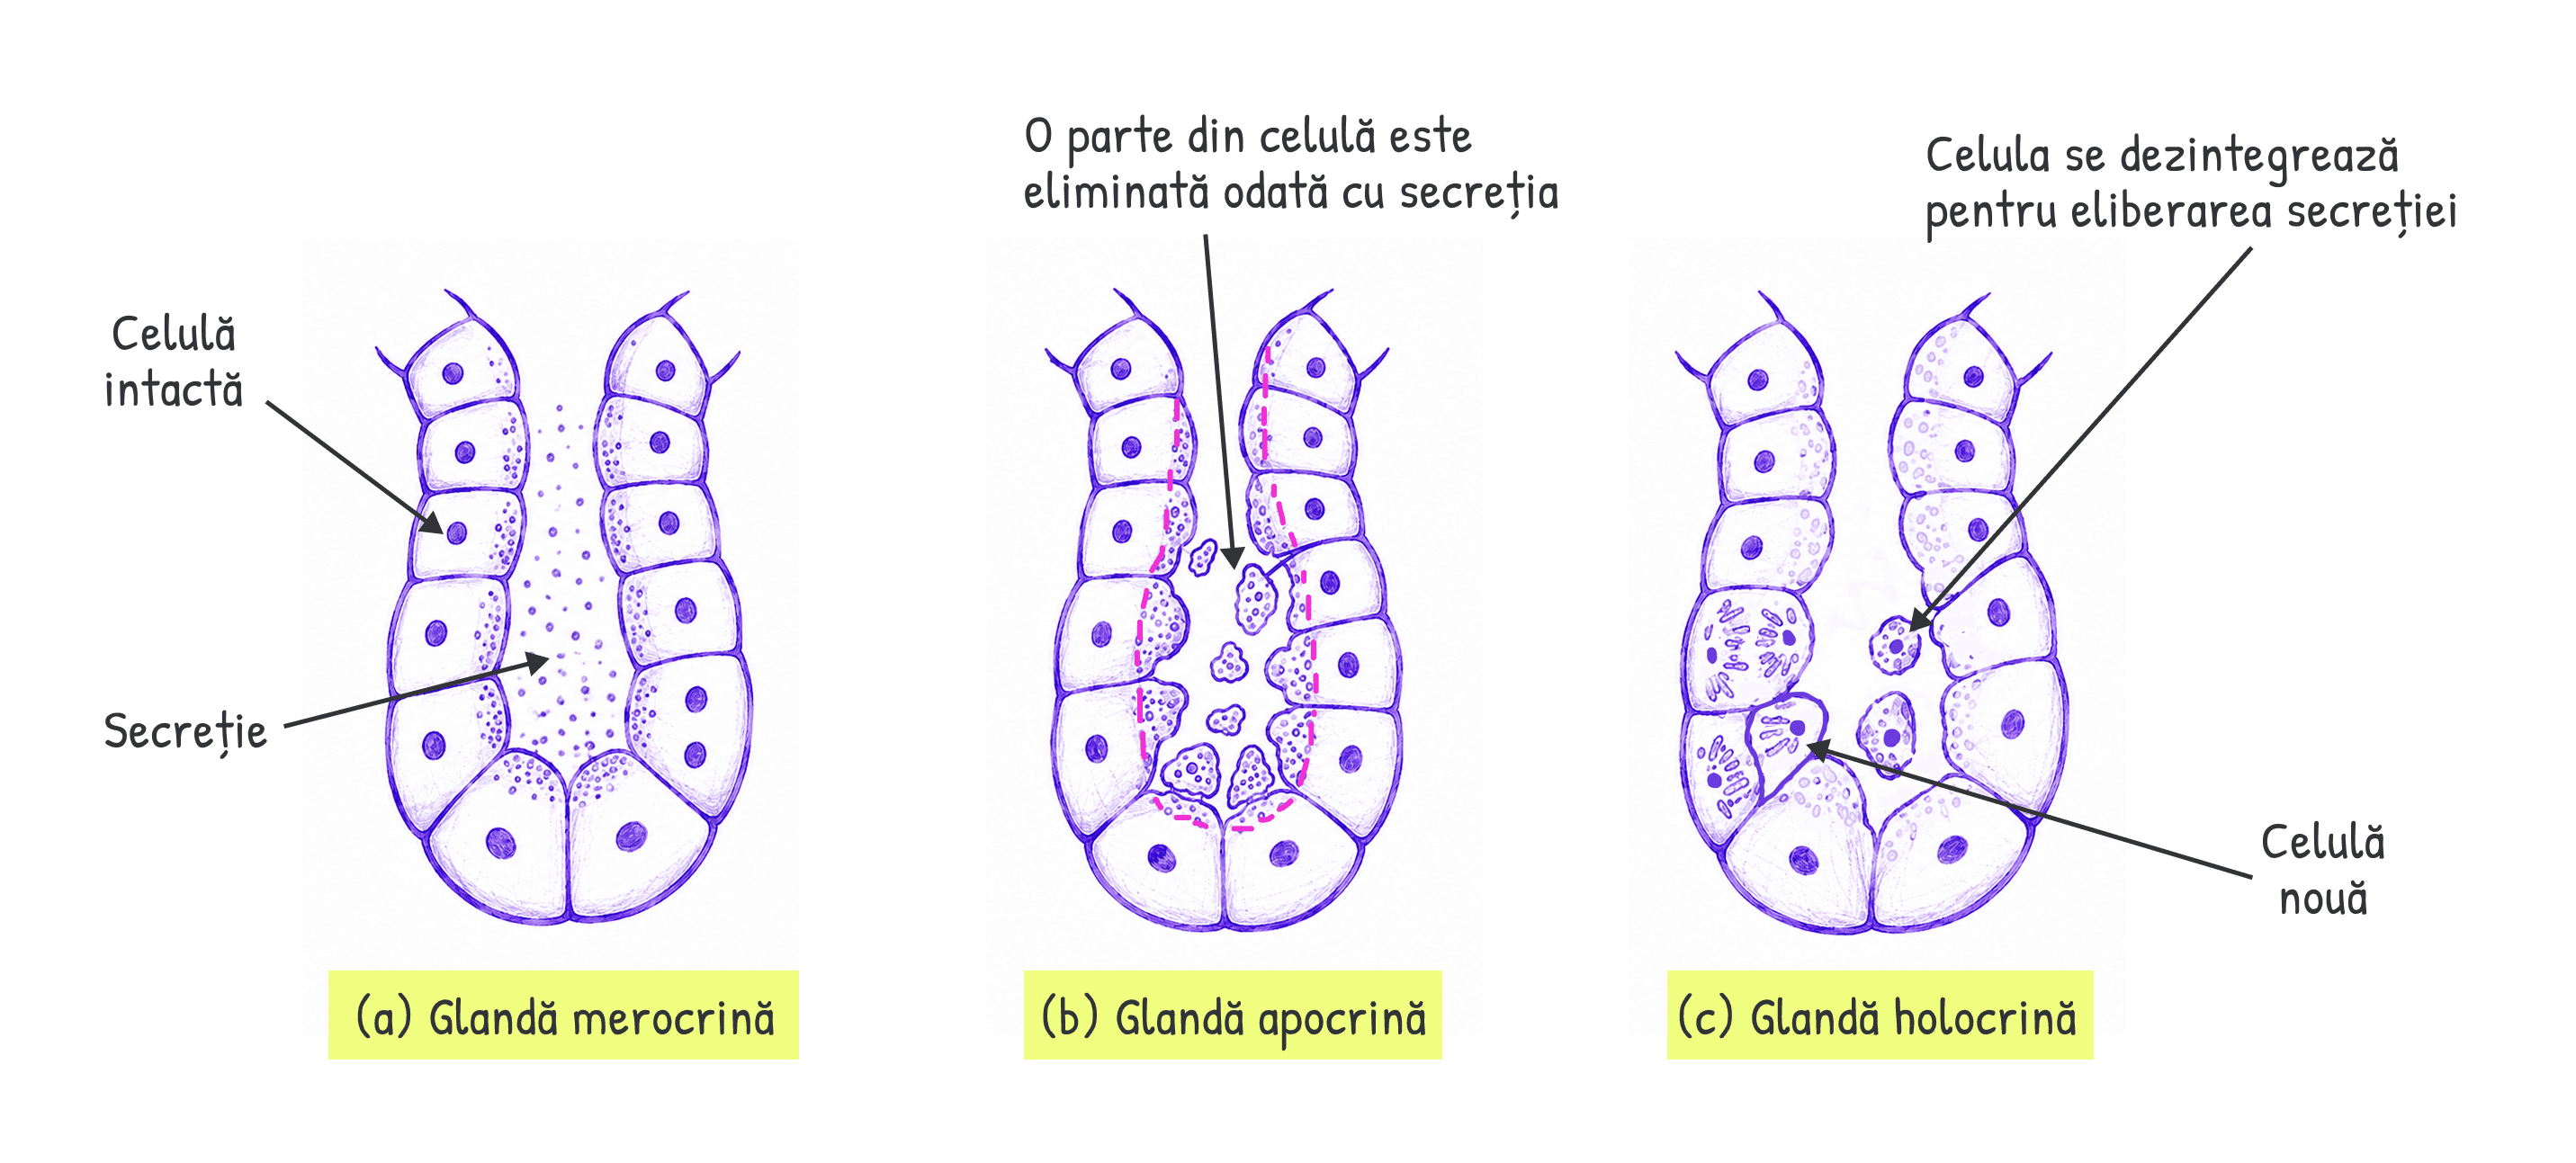
Fig. 4.4 · Biologie Barron's · p. 81
Glandele exocrine clasificate după activitate: merocrine, apocrine și holocrineFigura arată ce se întâmplă cu celula secretoare a unei glande exocrine atunci când își eliberează produsul. După acest criteriu, al tipului de activitate, manualul împarte glandele exocrine în glande merocrine și glande holocrine, iar glandele apocrine sunt un tip de glande merocrine. Desenul le așază pe toate trei una lângă alta, ca să le poți compara. Fiecare panou arată aceeași porțiune secretorie, în secțiune: un rând de celule cu nucleu, dispuse în formă de U în jurul unui spațiu central în care ajunge secreția. Citește desenele de la stânga la dreapta și urmărește cât din celulă pleacă odată cu secreția: nimic, o parte sau toată celula. (a) Glanda merocrină Celulele glandelor merocrine rămân intacte în timpul secreției: produsul lor difuzează în afara celulei, iar celula rămâne la locul ei, în peretele glandei. În desen, celula intactă arată la fel ca vecinele ei, întreagă și cu nucleul ei. Punctele fine adunate în spațiul central reprezintă secreția, singurul lucru care părăsește celulele. Manualul dă ca exemple glandele sudoripare și glandele salivare. (b) Glanda apocrină Despre glandele apocrine, manualul spune două lucruri care nu se potrivesc între ele: Capitolul 4 (textul care trimite la această figură): glandele apocrine sunt un tip de glande merocrine ale căror celule își eliberează secreția prin exocitoză, rămânând intacte. La exocitoză, o veziculă citoplasmatică delimitată de membrană fuzionează cu membrana celulară și își eliberează conținutul în afara celulei. Tot de exocitoză vorbește și legenda figurii. Capitolul 5 (glandele pielii): glandele sudoripare apocrine își eliberează secreția în ducte, dar în cursul acestui proces sunt eliminate și porțiuni din celulele secretoare, sub formă de vezicule. Desenul urmează a doua variantă. În celulele din jurul spațiului central, o linie întreruptă desparte partea dinspre spațiu de restul celulei, iar în spațiul central plutesc fragmente neregulate, fără nucleu, presărate cu aceleași puncte fine ca secreția. Eticheta arată că o parte din celulă este eliminată odată cu secreția, în timp ce nucleul și restul celulei rămân în perete. Exemplele date de manual sunt glandele ceruminoase (din canalul auditiv, unde produc cerumen), glandele mamare (glande apocrine specializate în secreția de lapte) și unele tipuri de glande sudoripare, cum sunt glandele sudoripare apocrine, aflate mai ales în zonele axilare și inghinale. (c) Glanda holocrină Glandele holocrine conțin celule care se dezintegrează pentru a-și elibera secreția, iar acest tip de secreție se numește secreție holocrină. Aici nu mai pleacă doar secreția sau o parte din celulă, ci celula întreagă. În desen, în spațiul central au ajuns celule rotunjite, cu nucleu și puncte fine, care nu mai fac parte din perete, iar eticheta arată că o astfel de celulă se dezintegrează pentru eliberarea secreției. Jos, în peretele din stânga, este marcată o celulă nouă, aflată încă în rândul celulelor secretoare. Ca exemplu, manualul dă glandele sebacee din piele, care secretă sebum, de obicei în interiorul foliculului pilos (Figura 5.3). Ele sunt clasificate drept holocrine tocmai pentru că secreția lor are loc prin dezintegrarea celulelor. Ce reții din comparație Toate trei sunt glande exocrine, adică își eliberează secreția prin intermediul unor canale, spre deosebire de glandele endocrine, care secretă hormoni direct în fluxul sanguin. Tipul de activitate este doar unul dintre criteriile după care manualul clasifică glandele exocrine, alături de numărul de celule, de formă (Figura 4.3) și de tipul de secreție produsă (mucoasă, seroasă sau seromucoasă). Aceeași glandă poate fi deci descrisă în mai multe feluri: glandele sebacee sunt, după formă, glande acinoase (alveolare) simple ramificate, iar după activitate, glande holocrine.
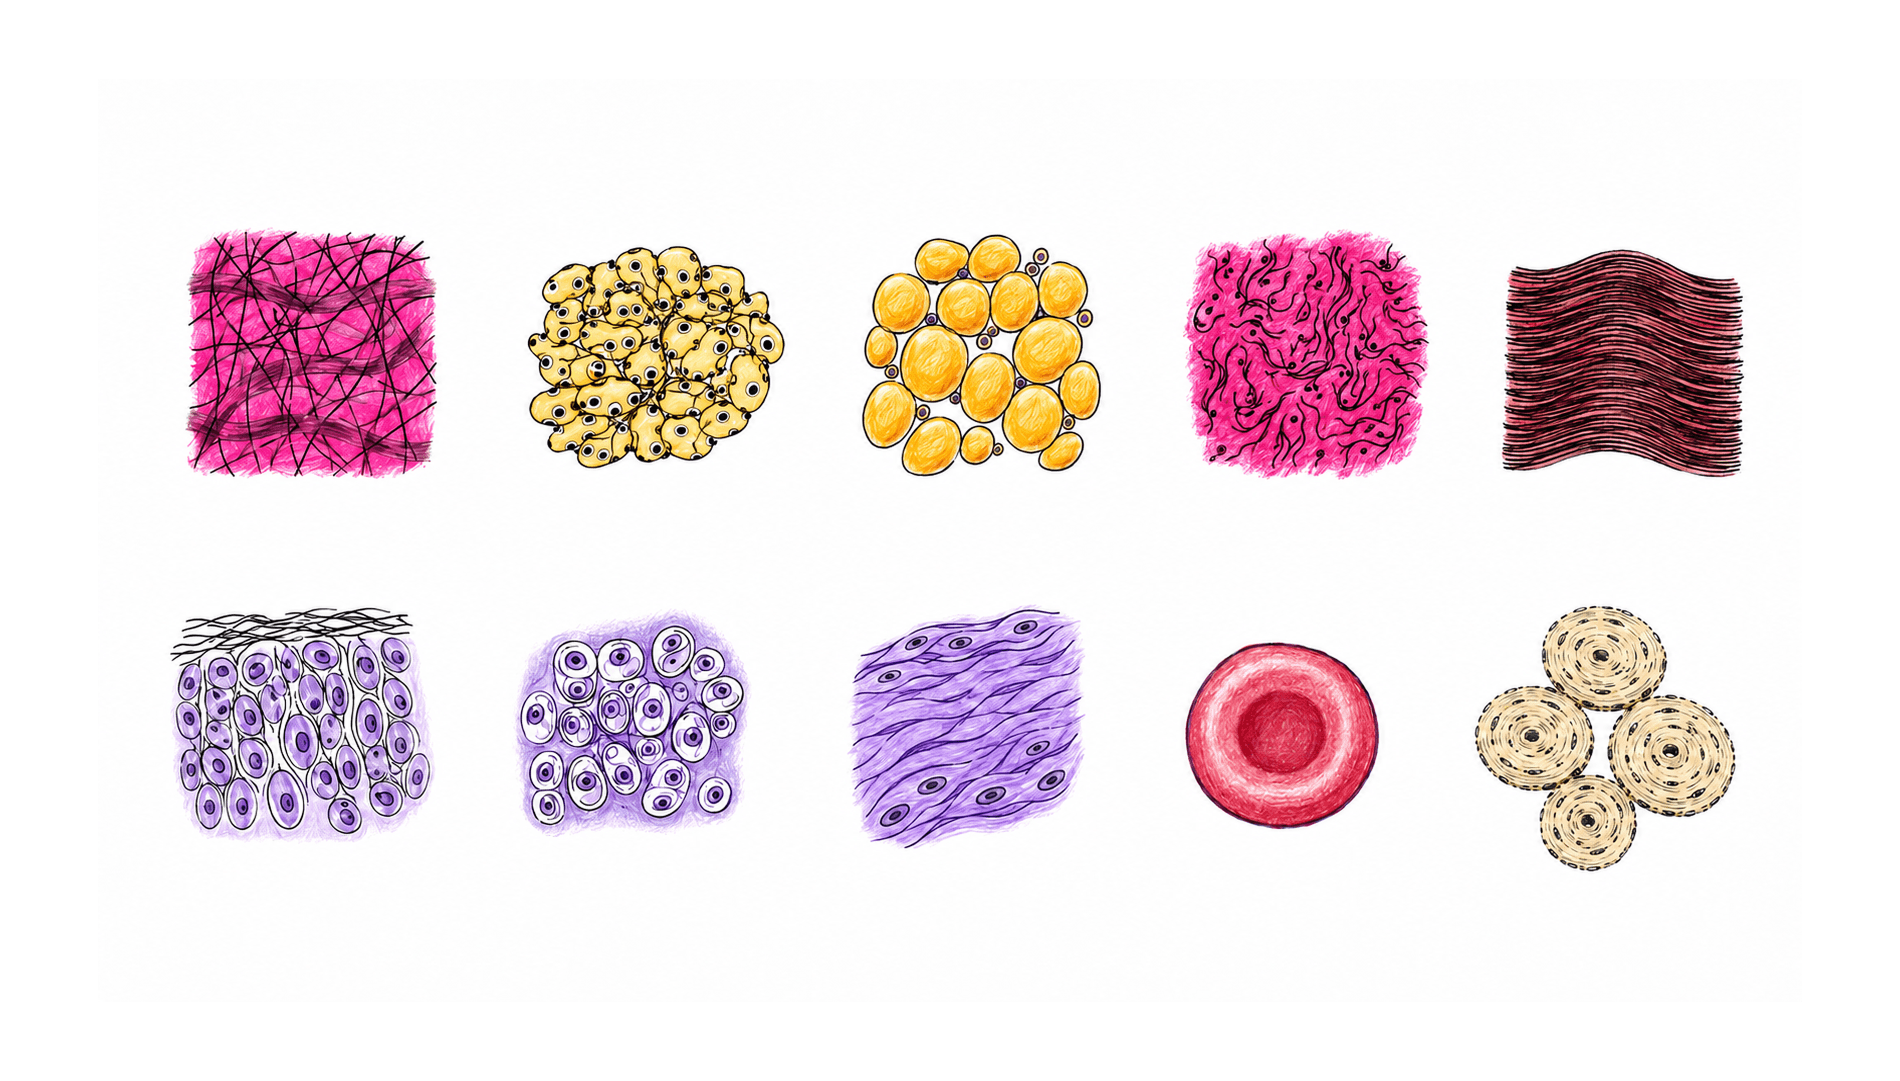
Fig. 4.5 · Biologie Barron's · p. 84
Tipurile de țesut conjunctivFigura adună la un loc tipurile de țesut conjunctiv întâlnite în organismul uman, fiecare desenat ca un mic fragment de țesut privit la microscop. Cele zece desene sunt așezate pe două rânduri de câte cinci: sus, țesutul conjunctiv propriu-zis, iar jos, cele trei tipuri de cartilaj, urmate de sânge și de os. Legenda figurii spune că aceste țesuturi diferă prin celulele pe care le conțin și prin substanța prezentă printre celule, așa că, atunci când compari desenele, urmărește cum sunt dispuse fibrele și cum arată celulele prinse între ele. Cele patru tipuri principale Țesutul conjunctiv este alcătuit în principal din substanțe intercelulare, produse de propriile lui celule. Manualul îl împarte în patru tipuri principale, după caracteristicile matricei (fibrelor) și ale substanței fundamentale, și toate apar în figură: Țesutul conjunctiv propriu-zis conține diverse tipuri de fibre, dispuse într-o substanță fundamentală semilichidă. Țesutul cartilaginos are o substanță fundamentală semidură, cartilajul, ce conține o matrice fibroasă. Țesutul osos are și el o matrice fibroasă, însă deosebit de dură. Sângele are o substanță fundamentală lichidă și este lipsit de matrice solidă, care poate însă apărea în urma coagulării. Rândul de sus: țesutul conjunctiv propriu-zis Variantele lui se deosebesc după tipul și dispunerea fibrelor: Lax (areolar): într-o matrice de fibre dispuse lax stau celule de mai multe tipuri, printre ele fibroblastul, care sintetizează fibrele. În desen, fibre groase și subțiri se încrucișează în toate direcțiile. Aici se găsesc fibre de colagen, foarte rezistente la rupere și flexibile, fibre elastice, care datorită elastinei se întind și revin rapid la forma inițială, și fibre de reticulină, subțiri și delicate, cu rol de suport. Reticulat: fibre delicate formează o rețea numită reticul, care susține celulele din splină, nodulul limfatic și ficat. Desenul arată un grup compact de celule, fiecare cu câte un nucleu mic. Adipos (gras): celulele acumulează picături de grăsime care împing citoplasma și nucleul spre periferie, sub forma unei benzi subțiri, fenomen care îi conferă celulei o formă de inel. În desen, picătura de grăsime umple aproape toată celula, iar nucleul se vede ca un punct mic, împins la marginea ei. Fibrele sunt relativ puține. Dens neordonat și dens ordonat, ultimele două desene, sunt formele țesutului conjunctiv dens, cu aceleași componente ca țesutul lax, dar cu fibrele elastice și de colagen dispuse mai dens. În cel neordonat, fibrele alcătuiesc fascicule cu traiecte aleatorii, de unde aspectul încâlcit. În cel ordonat, fibrele de colagen sunt aranjate în fascicule paralele, desenate ca niște valuri suprapuse. Rândul de jos: cele trei tipuri de cartilaj Cartilajul rezistă la tensiune datorită fibrelor de colagen și altor componente din substanța fundamentală, care are o consistență fermă, asemănătoare cu a cauciucului. Fibrele sunt produse de condroblaste, care rămân la un moment dat înglobate în ele și devin celule inactive, numite condrocite. Cartilajul nu conține vase de sânge. Cartilaj elastic: conține fibre flexibile, întretăiate și ramificate, iar prin aceste fibre elastice ramificate se deosebește de cartilajul hialin. În desen, condrocitele ovale sunt strânse unele lângă altele. Cartilaj hialin: cel mai răspândit țesut cartilaginos din organism și cel mai puțin rezistent. La microscop se observă condrocitele, dispuse în spații denumite lacune, ca în desen. Cartilaj fibros: cel mai rezistent tip de cartilaj, cu fibre dense de colagen și puțină substanță fundamentală. Fibrele formează fascicule subțiri, aproximativ paralele, care îi dau un aspect fibros granulos, iar printre ele se află condrocite. Sângele Al patrulea desen din rândul de jos arată o singură celulă sanguină, rotundă. Sângele este un tip aparte de țesut conjunctiv, pentru că substanța lui fundamentală este lichidă: celulele sunt înglobate în plasmă, care ține locul matricei. Plasma și elementele figurate, cele două componente majore ale sângelui, sunt prezentate în Figura 14.1. Osul Ultimul desen arată țesutul osos, cel mai dur țesut conjunctiv, alcătuit din celule, fibre de colagen și o substanță fundamentală densă, mineralizată. Se văd patru formațiuni rotunde, fiecare din inele concentrice în jurul unui mic cerc central. Ele corespund felului în care manualul descrie osul compact la microscopul optic: inele concentrice de țesut osos, organizate în sisteme numite osteoane, fiecare cu un canal central. Osteonul, unitatea structurală de bază a osului compact la adulți, este detaliat în Figura 6.3. La ce folosește tot acest țesut Țesutul conjunctiv are funcție de suport și leagă diverse alte tipuri de țesuturi între ele. În plus, oferă o zonă de trecere pentru vase sanguine și nervi și servește ca mediu de schimb pentru nutrimente, gaze și produse reziduale între celule și capilare. Substanța lui fundamentală este o barieră împotriva răspândirii microbilor, fiind locul în care se desfășoară procesele de apărare împotriva infecțiilor. Cele patru tipuri principale reapar, alături de țesutul epitelial, cel muscular și cel nervos, în recapitularea din Figura 4.6.

Fig. 4.6 · Biologie Barron's · p. 86
Recapitularea tipurilor de țesuturi din organismul umanFigura recapitulează tipurile de țesuturi din organismul uman. Țesuturile sunt grupări de celule cu caracteristici similare, care îndeplinesc funcții asemănătoare, iar în organism se găsesc patru tipuri fundamentale. Figura le așază unul sub altul, de sus în jos: epitelial, conjunctiv, muscular și nervos. În stânga, o coloană de text enumeră subtipurile și dă pentru fiecare un reper scurt (cum arată celulele, unde se găsesc, dacă sunt sub control voluntar), iar câte o paranteză marchează, pentru fiecare tip de țesut, grupul de text din stânga și grupul de desene din dreapta. Țesutul nervos are doar desenul, fără subtipuri. Țesutul epitelial Epiteliul acoperă suprafața corpului, căptușește cavitățile din interiorul lui și alcătuiește cele mai importante porțiuni ale glandelor. Coloana îi enumeră trei subtipuri: pavimentos (celule plate, uneori în straturi, ca în epiderm), cubic (celule cubice, ca în tubii renali) și glandular (celule secretoare cu sau fără duct, ca în glandele sudoripare). Primele șase desene sunt blocuri de epiteliu, aceleași pe care le găsești, cu numele lor, în Figura 4.2. Pe rândul de sus, de la stânga la dreapta: Epiteliul simplu pavimentos: un singur strat de celule turtite. Epiteliul simplu cubic: un strat de celule de formă cubică, cu nucleul dispus central. Epiteliul simplu cilindric: un strat de celule înalte, cu nucleii localizați în porțiunea bazală. Pe rândul de dedesubt, tot de la stânga la dreapta: Epiteliul pseudostratificat cilindric: pare să aibă mai multe straturi, dar este alcătuit dintr-un singur rând de celule cu înălțimi diferite, toate în contact cu membrana bazală. Epiteliul stratificat pavimentos: mai multe straturi de celule, cubo-cilindrice la bază și pavimentoase la suprafață. Din el este alcătuit epidermul pielii. Uroteliul (epiteliul tranzițional): mai multe straturi de celule rotunjite, care își modifică forma ca reacție la distensie. Coloana din stânga numește doar tipurile pavimentos și cubic, așa că nu fiecare bloc desenat are un subtip corespunzător în ea. Ultimele două desene arată epiteliul glandular, adică epiteliul specializat secretor al glandelor, în cele două variante din coloană: Glanda cu duct este un tub care coboară din stratul de celule de la suprafață și se lărgește la capăt. Celulele secretoare îi căptușesc peretele, iar porțiunea îngustă de sus, prin care secreția ajunge la suprafață, este ductul. Așa arată o glandă exocrină, care își eliberează secreția prin intermediul unor canale. Formele glandelor exocrine pluricelulare sunt detaliate în Figura 4.3. Glanda fără duct are celulele secretoare adunate în mici grupuri pe ramificațiile unui vas sanguin, fără niciun canal spre stratul de celule desenat deasupra. Așa arată o glandă endocrină (glandă fără canal excretor), care secretă hormoni direct în fluxul sanguin. Țesutul conjunctiv Țesuturile conjunctive au rol de suport și protecție și leagă între ele alte țesuturi. Sunt alcătuite din celule dispuse într-o rețea de fibre, numită matrice, iar materialul care înconjoară celulele se numește substanță fundamentală. Manualul descrie patru tipuri principale, clasificate după caracteristicile matricei și ale substanței fundamentale, și exact pe acestea le arată desenele: primele trei unul lângă altul, iar sângele dedesubt. Țesutul conjunctiv propriu-zis (celule și elemente de suport, ca în tendoane și ligamente): fibrele, benzi groase printre fire mult mai subțiri, se încrucișează și alcătuiesc matricea, iar printre ele se află o celulă conjunctivă. Substanța fundamentală este aici semilichidă. Cartilajul (celule înglobate într-o matrice fermă, flexibilă, ca în nas și în urechea externă): celulele cartilaginoase, ovale, stau adunate în cartilaj (matrice), o substanță fermă care nu conține vase de sânge. Osul (celule înglobate într-o matrice rigidă): celulele osoase, mici, sunt prinse în os (matrice), o substanță densă, mineralizată. Țesutul osos este cel mai dur țesut conjunctiv. Spre deosebire de cele din cartilaj, celulele osoase dispun de o bogată rețea vasculară, iar în desen este marcat și un vas sanguin. Sângele (celule înglobate într-o matrice lichidă): celulele sunt libere în plasmă (matrice). Sângele este un tip aparte de țesut conjunctiv tocmai pentru că substanța sa fundamentală este lichidă. El servește drept mediu de transport pentru nutrimente, gaze și produse reziduale. Diferitele tipuri de țesut conjunctiv, printre care și cele trei tipuri de cartilaj, sunt desenate separat în Figura 4.5. Țesutul muscular Țesutul muscular exercită forță și produce mișcare atunci când se contractă, iar celulele lui sunt alungite, ceea ce le facilitează funcția contractilă. Cele trei desene corespund subtipurilor din coloană: Mușchiul scheletic (fibre alungite striate, sub control voluntar), în stânga, este atașat de oase și se află sub control nervos conștient, de aceea se mai numește mușchi voluntar. Fibrele sunt paralele, iar striațiile transversale care le străbat îi dau și numele de mușchi striat. Mușchiul neted (fibre fusiforme, fără striații, fără control voluntar), în mijloc, are celule în formă de fus, fără striații, de unde îi vine și numele. Este asociat cu organele interne și se găsește, de exemplu, în pereții vaselor de sânge și ai tractului digestiv. Mușchiul cardiac (fibre striate ramificate, în mușchiul inimii), în dreapta, are fibre striate, ca mușchiul scheletic, dar ramificate. Se găsește în peretele inimii, iar celulele sale sunt unite prin discuri intercalare, grupări specializate de joncțiuni comunicante („gap”). Nucleii sunt marcați în toate cele trei desene: mai mulți de-a lungul fiecărei fibre scheletice, în mijlocul celulelor fusiforme ale mușchiului neted și în fibrele ramificate ale celui cardiac. Pe scurt, celulele mușchiului scheletic sunt striate și se află sub control voluntar, cele netede nu au striații, însă cele cardiace au, iar atât mușchiul neted, cât și cel cardiac sunt mușchi involuntari. Țesutul nervos Ultimul tip major de țesut are funcții legate de comunicare: recepționează stimuli, transmite și interpretează impulsuri nervoase. Este principalul component al sistemului nervos central și periferic. Desenul arată o singură celulă nervoasă. Partea ei lărgită, din stânga, este corpul celular, cu nucleul în interior. Din el pornesc mai multe prelungiri scurte, ramificate, și o singură prelungire lungă, spre dreapta, care se ramifică abia la capăt.
- 5Sistemul tegumentarPaginile 97 - 105

Fig. 5.1 · Biologie Barron's · p. 98
Structura pielii și a țesutului subcutanat în secțiuneFigura este o privire de ansamblu asupra pielii și a stratului subcutanat, desenate ca un bloc tăiat din corp. Fața de sus a blocului este suprafața pielii, din care ies firele de păr, iar fețele laterale arată secțiunea transversală. De sus în jos se succed epidermul, mai subțire, dermul, mai gros, și țesutul subcutanat (hipodermul). Primele două alcătuiesc pielea. Hipodermul este desenat împreună cu ele, dar nu face parte din piele, ci aparține țesuturilor subiacente. Prin straturi trec anexele pielii (firul de păr și glandele), receptorii, nervii și vasele de sânge. Epidermul Epidermul este un epiteliu stratificat pavimentos, fără vase de sânge și cu doar câteva terminații nervoase. Celulele lui se formează în profunzime, apoi urcă spre suprafață, acumulează cheratină și mor, așa că straturile se citesc cel mai ușor de jos în sus (le vezi mărite în Figura 5.2): Stratul bazal (germinativ), un singur rând de celule așezat pe membrana bazală, în care celulele se divid încontinuu. Stratul spinos, cu cheratinocite de aspect spinos, unite prin desmozomi. Stratul granulos, cu 3-5 rânduri de celule aplatizate, în care se formează cheratohialinul și cheratina. Stratul lucid, cu celule moarte, clare, care conțin eleidină. Stratul cornos, cu 25-30 de rânduri de celule moarte, plate, pline de cheratină, care se descuamează încontinuu. Desenul arată cinci straturi, ca în pielea groasă a palmelor și a tălpilor. Pielea subțire, care acoperă cea mai mare parte a corpului, are doar patru, fără stratul lucid. Dermul Limita dintre epiderm și derm este ondulată: dermul trimite spre epiderm prelungiri numite papile dermice, care formează creste ce ancorează cele două straturi. Cele două straturi comunică prin membrana bazală și sunt unite și prin elemente fibroase specializate și geluri polizaharidice, care împiedică intrarea în derm a moleculelor mari și a microorganismelor. Dermul are, la rândul lui, două straturi: Stratul papilar, imediat sub epiderm, conține țesut conjunctiv lax, areolar, cu macrofage, fibroblaste, receptori senzoriali și numeroase vase de sânge, care hrănesc epidermul. Stratul reticular, mai profund, conține glande sebacee și sudoripare, celule adipoase, vase de sânge cu diametru mai mare și fibre conjunctive cu multiple traiectorii. În partea lui de jos sunt desenate și fibrele elastice. Dermul îi dă pielii o mare parte din rezistența mecanică, o protejează împotriva leziunilor și este un rezervor de apă și electroliți. Țesutul subcutanat (hipodermul) Sub derm se află un țesut bogat în grăsime și în țesut areolar, numit și fascia superficială, care depozitează grăsime. În desen, partea lui de jos este ocupată de masele rotunjite ale țesutului adipos, cu rol de protecție mecanică, izolare termică și rezervă de energie. Firul de păr și glandele Anexele pielii provin din piele, mai ales din epiderm. Firul de păr are un ax, care iese în afara pielii, și o rădăcină, aflată într-un folicul pilos, o mică structură tubulară formată din celule epidermice care se extind în derm (detaliile sunt în Figura 5.3). Fiecare fir are asociate terminații nervoase și încă două structuri: Mușchiul erector al firului de păr este un mușchi neted care așază firul perpendicular pe piele în situații de stres și de frig intens. Glanda sebacee secretă sebum, de obicei în interiorul foliculului. Sebumul păstrează părul suplu și pielea moale și previne pierderile de apă în exces. Separat de firul de păr, glanda sudoripară apare ca un tub strâns în ghem, adânc în derm. Transpirația produsă de ea urcă prin ductul glandei sudoripare și iese la suprafață prin porul sudoripar, unde se evaporă și răcește corpul. Receptorii și nervii Receptorii senzitivi se află în derm, așa că stimulii trebuie să străbată epidermul ca să ajungă la ei. Desenul arată trei tipuri, pe care le regăsești în Figura 12.7: Terminațiile nervoase libere detectează durerea. Receptorii pentru durere se extind în epiderm și sunt stimulați mai ușor decât ceilalți. Corpusculul Meissner, așezat sus, chiar sub epiderm, detectează presiunile și vibrațiile ușoare. Corpusculul Pacini, o formațiune ovală din profunzimea dermului, recepționează presiunile și vibrațiile puternice. Prin fibre nervoase, receptorii sunt legați de nervul din partea de jos a desenului, prin care informația ajunge la sistemul nervos central. Vasele de sânge Jos, printre masele de țesut adipos, se văd capetele tăiate ale unei artere și ale unei vene. Sângele adus de arteră trece prin capilarele pielii și este colectat apoi de venă. Dermul este bogat vascularizat și inervat, iar din vasele lui primesc hrana celulele stratului bazal, singurele din epiderm care primesc nutrimente. Prin constricția vaselor și prin reducerea transpirației, pielea ajută la conservarea temperaturii corpului. Pielea ca barieră Manualul se sprijină pe acest desen ca să arate cum își îndeplinește pielea funcția de protecție, prin trei bariere: Suprafața pielii este o barieră fizică împotriva infecțiilor. Stratul impermeabil de cheratină din stratul extern al epidermului este o barieră împotriva substanțelor hidrosolubile. Membrana bazală a epidermului este o barieră mecanică pentru structurile de sub el. La acestea se adaugă melanina, sintetizată de melanocitele din stratul bazal, care protejează pielea împotriva razelor ultraviolete.
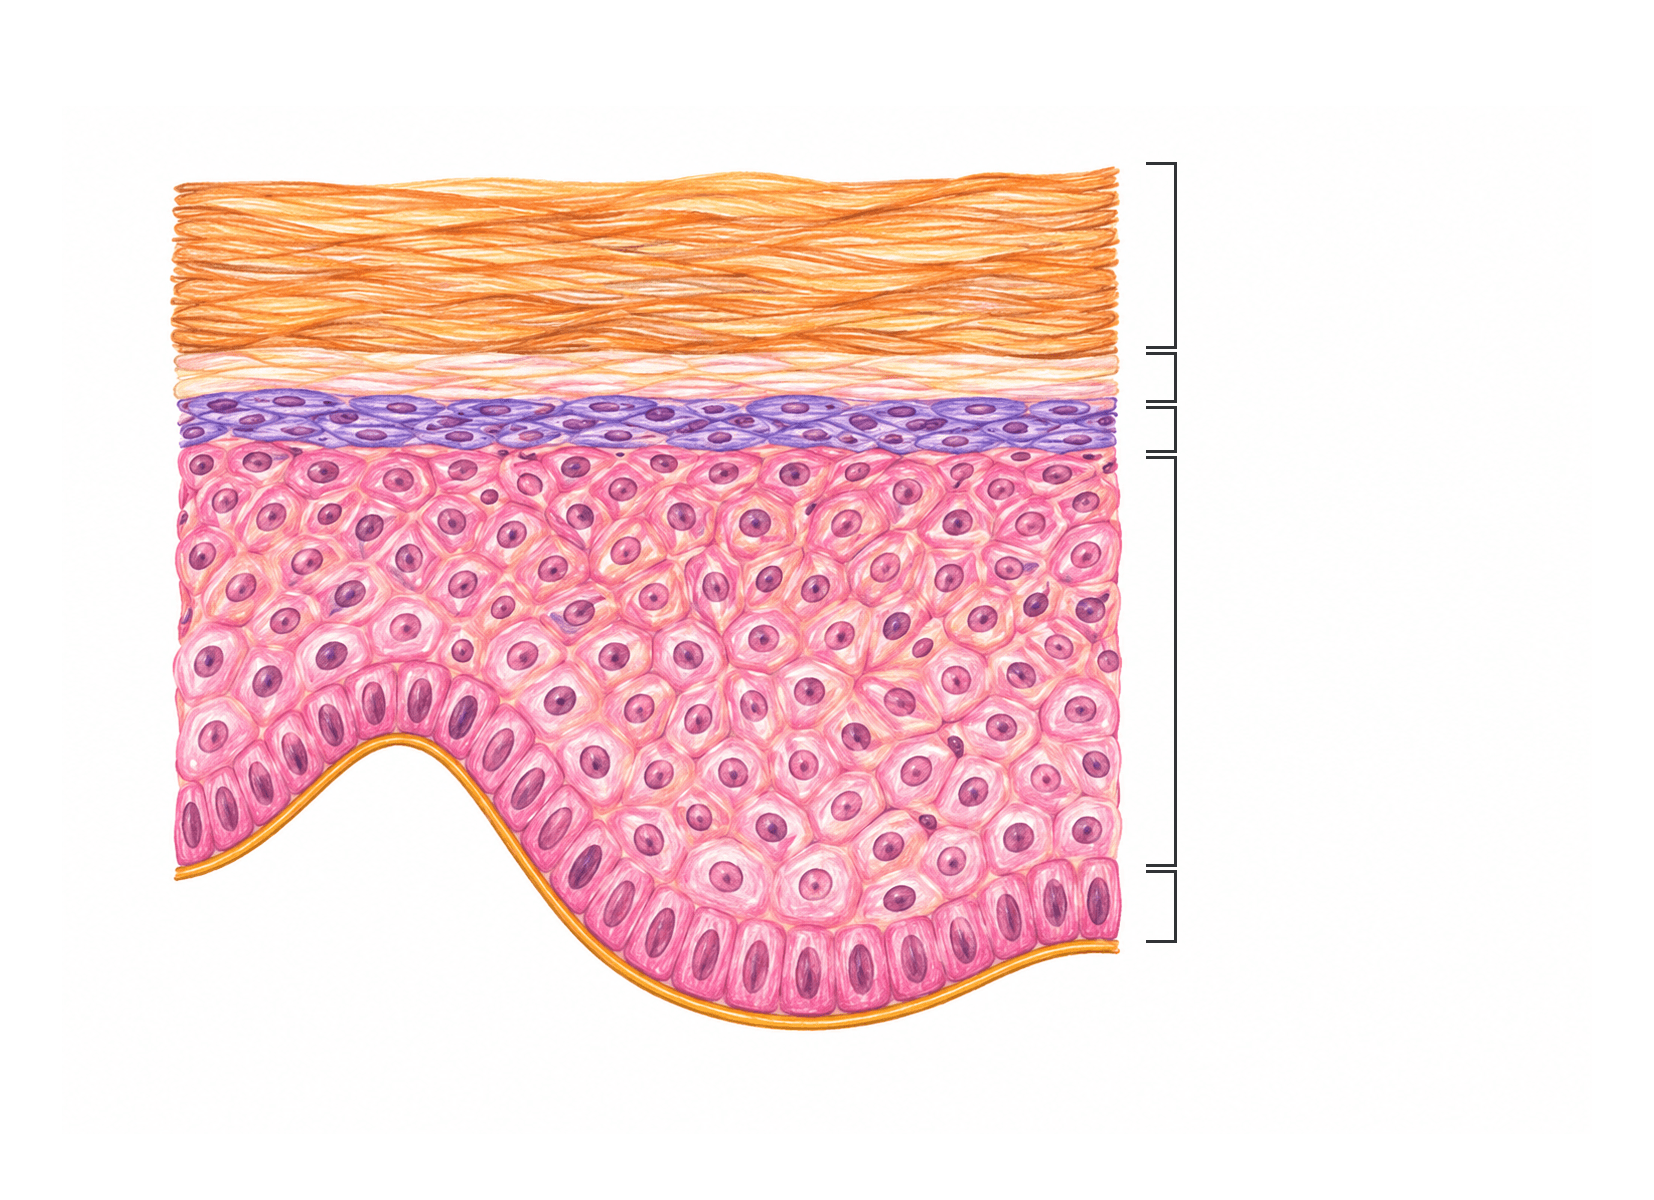
Fig. 5.2 · Biologie Barron's · p. 100
Straturile epidermuluiFigura arată o secțiune prin epiderm, stratul extern al pielii, mărită atât cât să se vadă celulele. Suprafața pielii este sus, profunzimea jos, iar parantezele din dreapta delimitează cele cinci straturi. Linia ondulată de la bază este membrana bazală, limita dintre epiderm și derm. Pentru că apare și stratul lucid, desenul reprezintă pielea groasă, cea de la nivelul palmelor și al tălpilor. În pielea subțire, care acoperă cea mai mare parte a corpului, stratul lucid lipsește, iar epidermul are doar patru straturi. Epidermul este alcătuit din epiteliu stratificat pavimentos (Figura 4.2), adică din mai multe straturi de celule strâns unite între ele. Nu conține vase sanguine, dar are câteva terminații nervoase. Desenul arată bine cum se schimbă forma celulelor de la bază spre suprafață: sunt cubo-cilindrice la bază, cubice în stratul intermediar și pavimentoase (turtite) la suprafață. Mai jos, straturile sunt luate de la cel mai profund spre suprafață, adică în ordinea în care le străbat celulele. Celulele produse în stratul bazal se apropie treptat de suprafața corpului, acumulează cheratină și mor, astfel încât celulele din epiderm sunt înlocuite de jos în sus. Stratul bazal (germinativ) Este stratul cel mai profund, așezat direct pe membrana bazală. În desen se vede ca un singur rând de celule cubice sau cilindrice, cu nuclei alungiți, care urmează ondulațiile membranei. Aici au loc frecvent diviziuni celulare, deci acesta este locul în care se produce regenerarea epiteliului, iar celulele nou formate migrează în stratul următor pe măsură ce se maturează. Celulele acestui strat sunt singurele din epiderm care primesc substanțe nutritive, prin intermediul vaselor sanguine din derm. Printre ele se numără: Melanocitele, care sintetizează melanina, pigmentul ce protejează pielea împotriva razelor solare ultraviolete. Cheratinocitele, tipul predominant de celule din epiderm, care produc cheratină pentru a impermeabiliza epidermul. Celulele Merkel, sensibile la atingere, care reprezintă un tip de receptor senzitiv. Celulele dendritice epidermice, care aparțin sistemului imunitar. Stratul spinos Urmează imediat deasupra stratului bazal și este cel mai gros din desen. Este alcătuit din multe cheratinocite cu aspect spinos pe preparatele histologice. „Spinii” sunt, de fapt, punctele în care celulele aderă între ele prin intermediul desmozomilor, joncțiuni cu rol de ancorare a celulelor (Figura 4.1). Cheratina este sintetizată aici de către cheratinocite, dar deocamdată se găsește în cantitate mică. Diviziunile celulare sunt mai puține decât în stratul bazal. Stratul granulos Este banda subțire de deasupra stratului spinos, formată din 3-5 rânduri de celule aplatizate. Granulele lor conțin cheratohialin, un produs preliminar în formarea cheratinei. Stratul conține atât cheratohialin, cât și cheratină, în cantități mari, iar pe măsură ce celulele mor, ele sunt înlocuite de cheratină și cheratohialin. Stratul lucid Este banda clară dintre stratul granulos și stratul cornos, care apare doar la nivelul pielii groase. Celulele sunt strâns unite și au citoplasma clară, iar cheratinocitele pe care le conține sunt în general moarte și nu au nuclei. Ele conțin eleidină, o substanță transparentă care se formează din cheratohialin și care se va transforma, în final, în cheratină. Stratul cornos Este stratul cel mai superficial, desenat ca un teanc de lamele suprapuse. Cuprinde 25-30 de rânduri de celule pavimentoase moarte, care se descuamează încontinuu, iar stratul este reînnoit tot timpul. Cheratina intracelulară înlocuiește aproape în totalitate citoplasma și impermeabilizează suprafața epiteliului. Stratul impermeabil de cheratină astfel format este o barieră împotriva substanțelor hidrosolubile, iar celulele formează și o barieră împotriva infecțiilor și a leziunilor mecanice. Cheratinocitele sunt unite între ele prin desmozomi, ceea ce conferă rezistență stratului. Îngroșarea stratului cornos apărută ca reacție la fricțiune se numește hipercheratoză și va duce la apariția calusului. Membrana bazală Este linia ondulată pe care se sprijină stratul bazal. Prin ea, epidermul este ancorat de derm, care este alcătuit din țesut conjunctiv. Membrana bazală este formată din materiale non-celulare: glicoproteine secretate de celulele epiteliale și o rețea de fibre de colagen care aparține țesutului conjunctiv. Prin intermediul ei, dermul comunică îndeaproape cu epidermul, iar în același timp ea este o barieră mecanică pentru protecția structurilor situate sub ea. Limita dintre epiderm și derm este ondulată (Figura 5.1). Dermul trimite înspre epiderm prelungiri numite papile dermice și formează creste ce contribuie la ancorarea celor două straturi. În desen, porțiunea din stânga, unde membrana bazală urcă spre suprafață, corespunde unei astfel de papile.

Fig. 5.3 · Biologie Barron's · p. 103
Firul de păr și structurile asociate luiFigura este o reprezentare schematică a firului de păr și a structurilor asociate lui, desenate într-un bloc de piele decupat. Din piele ies trei fire de păr, dar numai unul este desenat în întregime: blocul este secționat chiar prin el, așa că se văd deodată straturile pielii, rădăcina firului și foliculul care o adăpostește, până la bulbul din adâncul dermului. Firul, foliculul, glanda sebacee și mușchiul erector apar, la scară mai mică, și în privirea de ansamblu asupra pielii (Figura 5.1). Epidermul și dermul Epidermul este stratul extern al pielii, mai subțire și lipsit de vase sanguine. Sub el se află dermul, mai gros, bogat vascularizat și inervat, în care se găsesc foliculi piloși, glande sebacee, fibre musculare, receptori senzitivi și multe vase de sânge. Limita dintre cele două straturi este ondulată: dermul trimite spre epiderm prelungiri numite papile dermice, care formează creste ce contribuie la ancorarea lor. Firul de păr: axul și rădăcina Firul de păr este una dintre anexele pielii, structuri specializate care provin din piele, în special din epiderm. Un fir de păr constă dintr-un ax, care se extinde în exteriorul pielii, și o rădăcină, aflată în interiorul unui folicul pilos. În desen, rădăcina coboară până în bulb, iar axul iese prin epiderm deasupra suprafeței. Firele de păr se găsesc pe întreaga suprafață a corpului, cu excepția pleoapelor, palmelor, tălpilor și a buzelor. Au rol senzitiv și oferă o protecție limitată capului și pielii. Foliculul pilos Un folicul pilos este alcătuit dintr-o grupare de celule epidermice care se extind în derm, formând o mică structură tubulară. Foliculii piloși sunt așadar derivate ale epidermului, prezente în derm, iar rolul lor este să producă firul de păr. În desen, peretele tubului este dublu: teaca radiculară internă stă lipită de rădăcină, iar teaca radiculară externă o învelește pe cea internă, la limita cu dermul. Cele două teci coboară din epiderm de o parte și de alta a rădăcinii și alcătuiesc împreună foliculul, cu rădăcina firului în interiorul lui. Bulbul și papila La baza foliculului pilos se găsește o porțiune mai dilatată, numită bulb. În ea pătrund țesut conjunctiv, vase de sânge și nervi, care formează papila dermică, notată în figură papilă de țesut conjunctiv. Papila apare ca o mică ridicătură în fundul bulbului și furnizează substanțe nutritive firului de păr. Desenul arată și vasul sanguin din partea de jos a dermului, din care o ramură urcă în papilă. Nu confunda această papilă cu papilele dermice de la limita dintre derm și epiderm. Cum crește firul de păr Creșterea are loc în folicul, pornind din bulb: În bulb se găsesc celule ale stratului bazal, stratul profund al epidermului, în care au loc frecvent diviziuni celulare. Firul de păr rezultă din proliferarea acestor celule. Celulele nou formate le împing pe cele dinaintea lor de-a lungul foliculului, iar firul crește. Aceste celule se cheratinizează și mor, formând axul firului de păr. Axul se rupe în mod regulat, dar este înlocuit continuu prin creșterea care are loc în folicul. Celulele stratului bazal sunt hrănite de vasele sanguine din papilă. Dacă o iritație este însoțită de creșterea fluxului sanguin, creșterea părului va fi stimulată. Alopecia este afecțiunea rezultată din creșterea deficitară sau absența firului de păr. Poate fi provocată de factori genetici, leziuni ale scalpului, diverse boli, carențe alimentare, hormoni sau tratamente medicamentoase. Glanda sebacee și mușchiul erector Fiecare fir de păr este asociat cu o glandă sebacee, cu un mușchi erector al firului de păr și cu terminații nervoase, care nu sunt desenate. Glanda sebacee stă lângă folicul, chiar sub epiderm. Porțiunea ei secretorie, adenomerul, este desenată ca un grup de săculeți, iar un duct scurt o leagă de folicul. Aspectul corespunde tipului ei: glandele sebacee sunt glande alveolare (acinoase) simple ramificate, cu mai mulți acini în formă de săculeț dispuși de-a lungul unui canal (Figura 4.3). Sunt și glande holocrine, pentru că secreția are loc prin dezintegrarea celulelor (Figura 4.4). Sebumul pe care îl produc este eliberat de obicei în interiorul foliculului pilos. El conține în principal lipide și substanțe uleioase, păstrează părul suplu și pielea moale și flexibilă, previne pierderile de apă în exces și are proprietăți antibacteriene. Mușchiul erector al firului de păr este un mușchi neted atașat foliculului. În desen pornește de pe peretele foliculului și urcă oblic până sub epiderm, iar glanda sebacee se află în unghiul dintre el și folicul. Acest mușchi le permite firelor de păr să se așeze perpendicular pe piele în situații de stres și de frig intens. De la lanugo la pilozitatea terminală Formarea părului începe încă dinaintea nașterii, cu fire moi și foarte subțiri, numite lanugo, care apar pe pielea fătului. Cele mai multe dispar în perioada prenatală și sunt înlocuite după naștere cu fire mai rezistente, pigmentate. Firele mai groase, care apar la pubertate în zona axilară și în cea pubiană, se numesc pilozitate terminală.
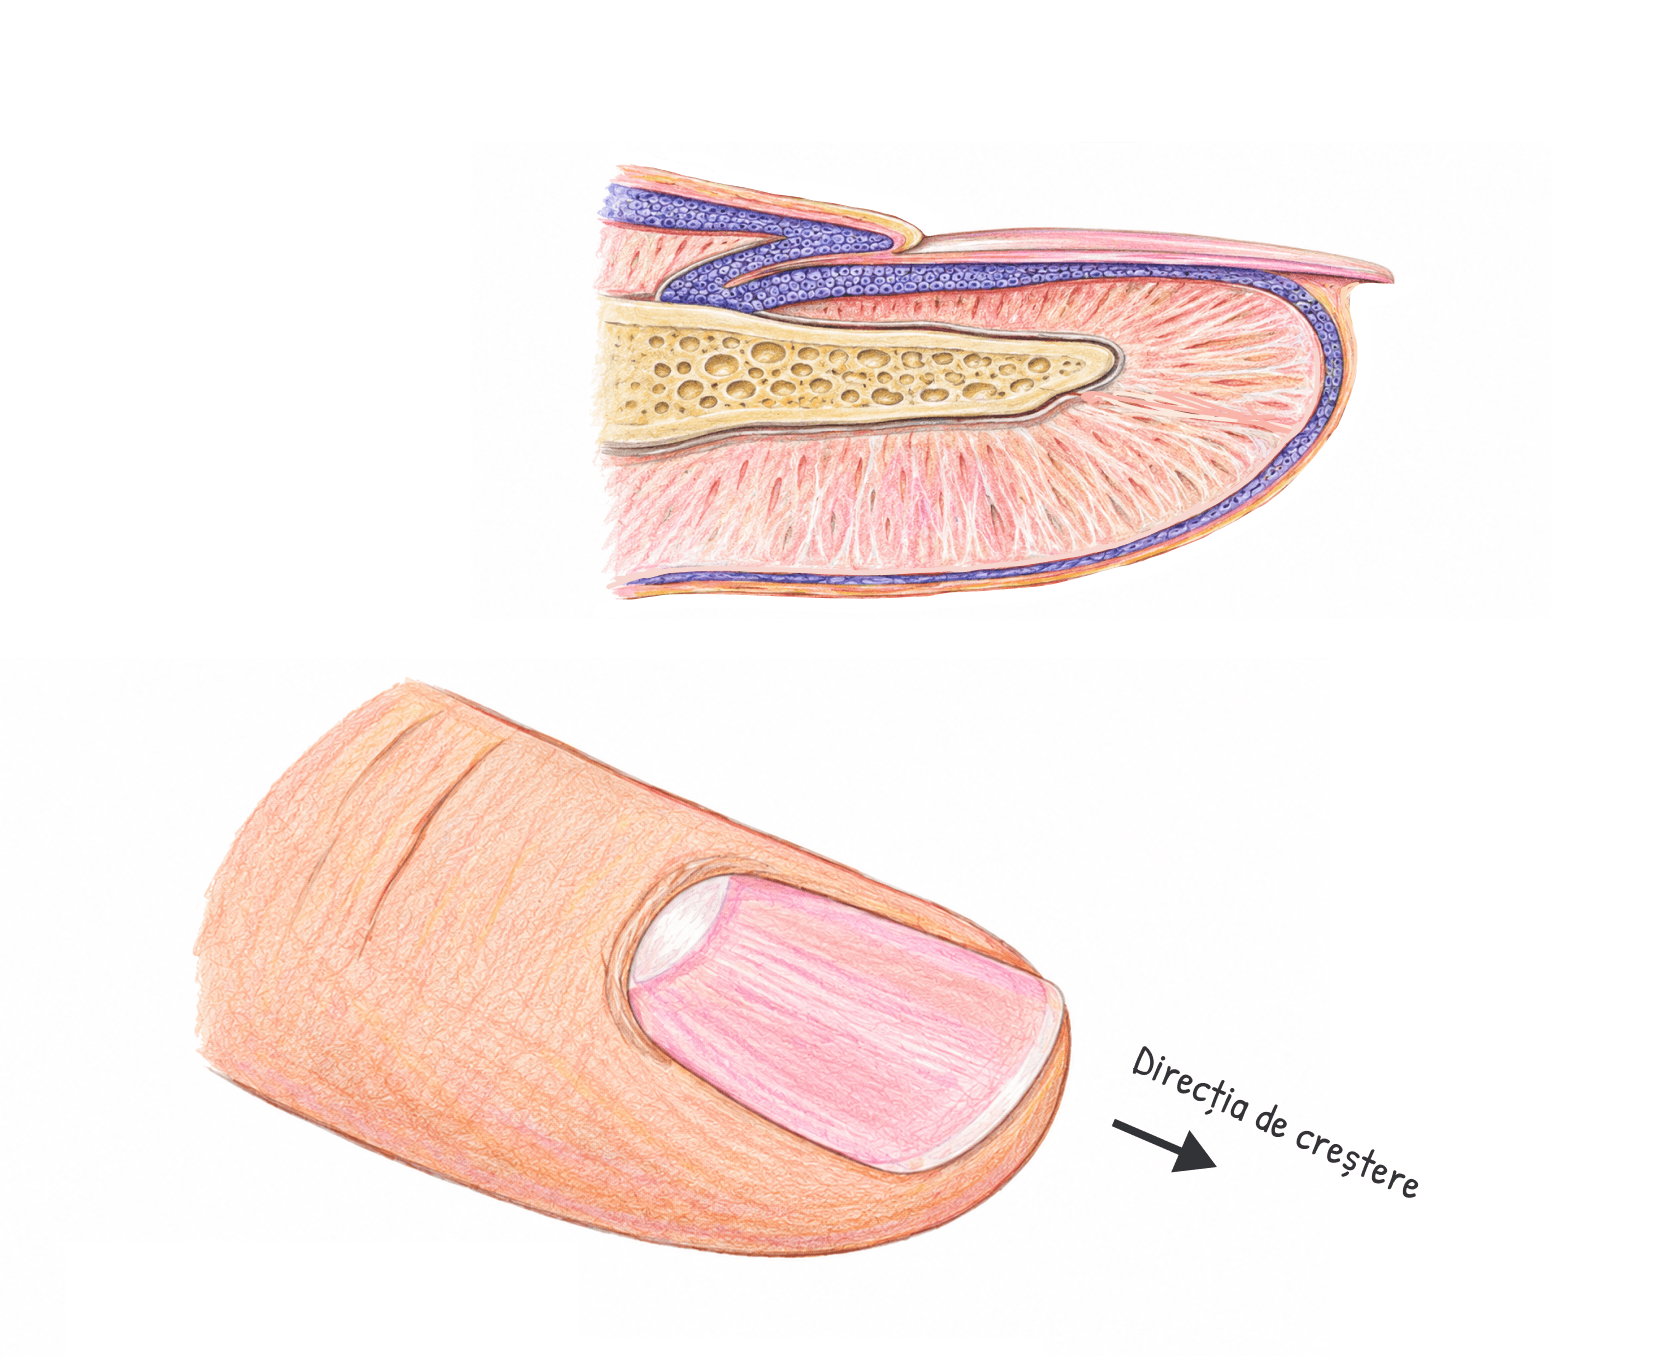
Fig. 5.4 · Biologie Barron's · p. 104
Structurile asociate unghiei unui degetFigura prezintă unghia, una dintre anexele pielii, în două desene ale aceluiași deget. Sus este o secțiune longitudinală prin vârful degetului, care taie unghia pe lungime și arată ce se află sub ea și în spatele ei. Jos, degetul este privit de deasupra, așa cum îți privești propria unghie, iar săgeata din dreapta arată direcția de creștere. Cuticula, lunula și hyponychium apar în ambele desene, pentru că sunt aceleași structuri văzute din două unghiuri. Ca să te orientezi, folosește termenii direcționali: proximal înseamnă mai aproape de locul în care membrul se atașează de trunchi, adică spre baza degetului, iar distal înseamnă mai departe de acest loc, adică spre vârful degetului. În ambele desene, baza unghiei este în stânga, iar vârful degetului în dreapta. Ce este unghia Unghiile sunt structuri cu rol de protecție, prezente la degetele de la mâini și de la picioare. Ele se formează prin multiplicarea celulelor dintr-un pliu al epidermului, înfundat în derm. Aceste celule se află sub cuticulă, la baza unghiei. Ele produc cheratină și, înainte să moară, o acumulează, iar cheratina va alcătui unghia sub forma unei plăci așezate pe un pat unghial ce conține vase de sânge. La capătul proximal, unghia este acoperită parțial de cuticulă, iar lângă cuticulă se află o zonă semicirculară, de culoare albicioasă, lunula. Secțiunea longitudinală (desenul de sus) Citește secțiunea de la stânga la dreapta, dinspre baza degetului spre vârf: Rădăcina unghiei este porțiunea proximală a plăcii, ascunsă sub pliul de piele de la baza unghiei. Aici se află celulele care se multiplică și formează unghia. Cuticula apare la vârful acestui pliu, acolo unde pielea se sprijină pe unghie și îi acoperă capătul proximal. Lunula este porțiunea plăcii care urmează imediat după cuticulă. Corpul unghiei este partea lungă a plăcii, rămasă la vedere, care se sprijină pe patul unghial. Hyponychium se află la capătul distal, sub vârful unghiei, acolo unde placa se desprinde de pielea vârfului degetului. Falanga distală este osul desenat sub unghie, în interiorul vârfului degetului. Falangele sunt oasele degetelor (la mână, degetul mare are două, iar fiecare dintre celelalte degete are trei), iar cea distală este cea din vârful degetului. Vederea de deasupra (desenul de jos) Privit de sus, degetul arată cum este încadrată placa unghiei: Cuticula mărginește baza unghiei, iar imediat după ea se vede arcul lunulei, cu forma sa de semicerc. Plica laterală unghială este pliul de piele care mărginește unghia pe latură, între marginea plăcii și conturul degetului. Patul unghial nu se vede din această poziție, pentru că îl acoperă placa. De aceea eticheta precizează „dedesubt”: structura indicată se află sub corpul unghiei. Hyponychium apare la capătul distal al unghiei, lângă vârful degetului. Marginea liberă este capătul distal al plăcii, opus cuticulei. Spre deosebire de baza unghiei, pe care o acoperă parțial cuticula, această margine nu este acoperită de piele. Săgeata „Direcția de creștere” este orientată dinspre baza unghiei spre marginea liberă. Asta se potrivește cu ce spune manualul: celulele care formează unghia se află la bază, sub cuticulă, așa că porțiunea nouă de unghie apare la rădăcină, iar placa înaintează spre vârful degetului. Unghia printre anexele pielii Sistemul tegumentar este alcătuit din piele și din anexe precum părul, unghiile și anumite glande, structuri care provin din piele, în special din epiderm. Rolul unghiilor este să protejeze vârfurile degetelor și să le confere rezistență structurală. Felul în care se formează unghia seamănă cu alte procese din același capitol. În stratul cornos al epidermului (Figura 5.2), celulele acumulează cheratină și mor pe măsură ce se apropie de suprafață. La firul de păr (Figura 5.3), celulele se înmulțesc în bulbul foliculului pilos, o grupare de celule epidermice care se extind în derm, apoi se cheratinizează și mor, formând axul firului de păr.
- 6Oasele și articulațiilePaginile 115 - 126
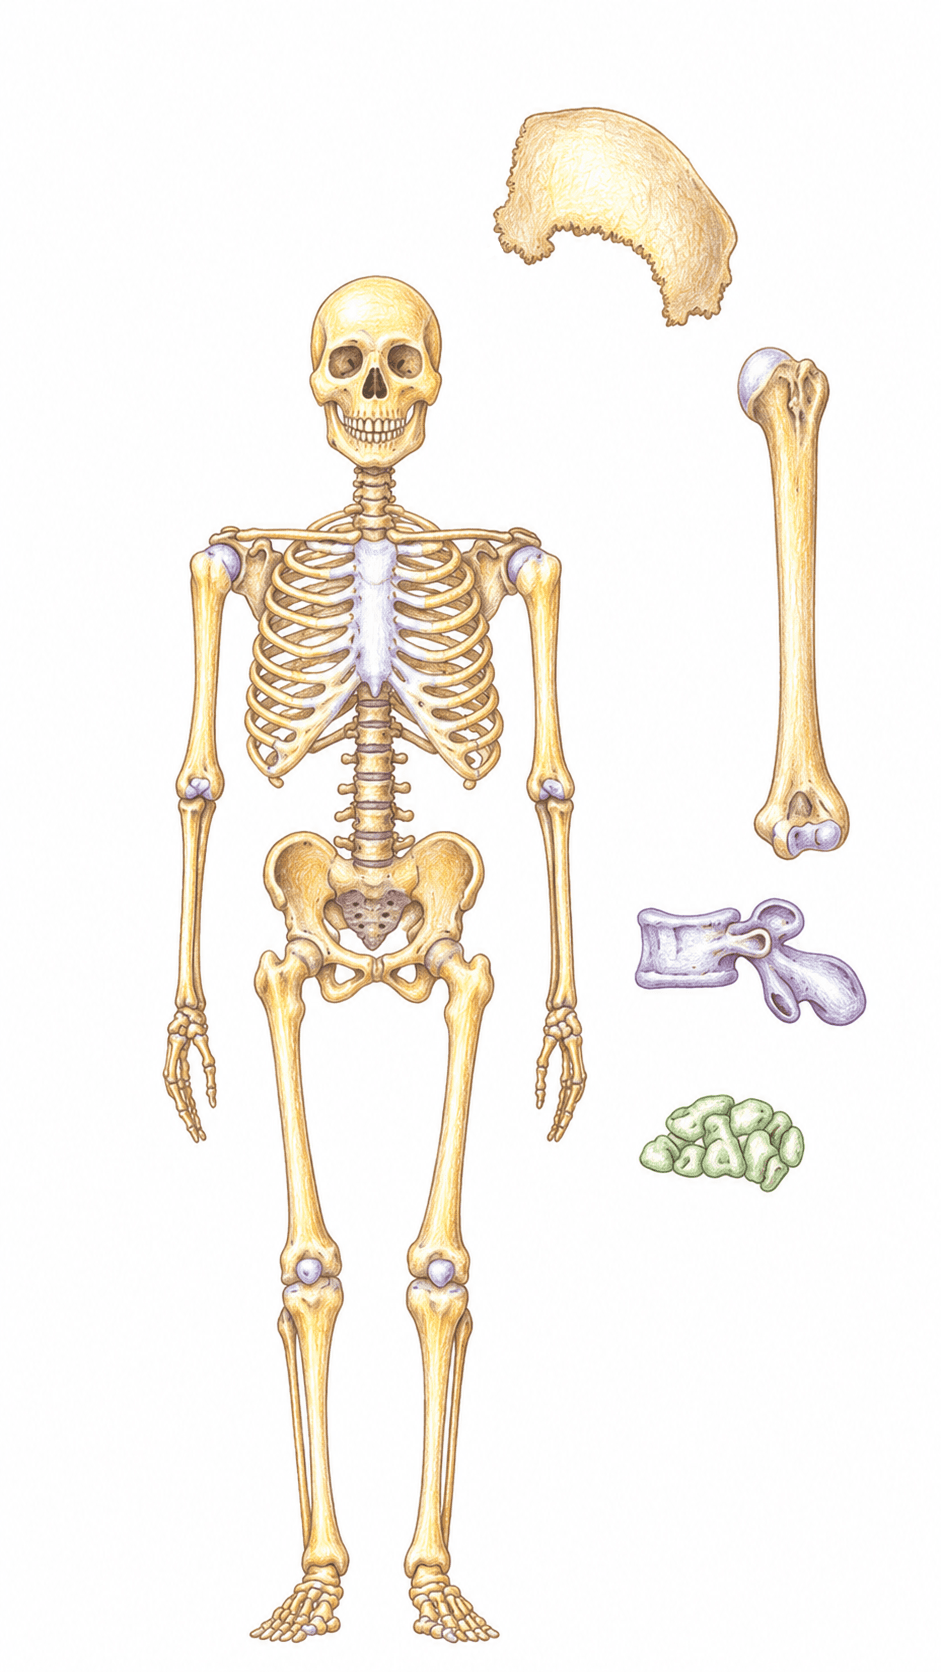
Fig. 6.1 · Biologie Barron's · p. 117
Cele patru tipuri de oase și localizarea lorFigura arată scheletul uman văzut din față și, în dreapta lui, câte un exemplu din fiecare dintre cele patru tipuri de oase, desenat mărit. Cele patru oase mărite sunt înșirate de sus în jos în aceeași ordine ca regiunile din care provin: craniul, brațul, coloana vertebrală și încheietura mâinii. Figura reunește astfel cele două criterii după care se clasifică oasele: forma (cum arată osul desenat alături) și localizarea în organism (unde se află el în schelet). Osul plat Exemplul ales este un os al craniului, o placă osoasă curbată. Oasele plate sunt alcătuite din două plăci subțiri de os compact, între care se află o regiune centrală de os spongios. Ele protejează organele de sub ele: țesuturile delicate ale encefalului (cum face osul craniului din figură) și ale organelor toracice. În plus, sunt locuri de atașare a mușchilor și oferă suprafețe întinse pe care se pot atașa tendoanele. Sunt plate majoritatea oaselor craniului, omoplații (scapulele), coastele, sternul și oasele pelvisului. Osul lung Figura folosește ca exemplu humerusul, osul brațului, care, alături de femur, este un os lung tipic. Un os lung are un ax, numit diafiză, și două capete, numite epifize, iar părțile lui sunt prezentate în detaliu în Figura 6.2. Oasele lungi servesc drept pârghii și se găsesc în membrele superioare, în cele inferioare și în degete. Osul neregulat Osul neregulat desenat este o vertebră. Oasele neregulate au forme variate, complexe: vertebrele au o formă rectangulară, dar și prelungiri cu aspect de contraforturi sau aripi. Aceste prelungiri servesc drept puncte de ancorare pentru tendoane și ligamente și întăresc legătura dintre oasele vecine. Oasele neregulate sunt locuri de atașare a mușchilor și au rol în articulații, adică în locurile în care oasele se întâlnesc. Tot neregulate sunt oasele wormiene, aflate la nivelul anumitor suturi craniene (articulațiile imobile, zimțate, dintre oasele cutiei craniene), și oasele sesamoide, aflate la nivelul articulațiilor, dintre care cele mai importante sunt patelele (rotulele). Oasele scurte Oasele scurte sunt ilustrate prin grupul de oase carpiene din încheietura mâinii. Au formă aproximativ cubică, apar în spații închise și suportă greutăți. Tot scurte sunt oasele gleznei (oasele tarsului). Oasele carpiene sunt 8, așezate în două rânduri a câte patru, iar dimensiunile lor mici și articulațiile dintre ele permit o mare flexibilitate a încheieturii mâinii. Clasificarea după localizare După locul pe care îl ocupă în organism, cele 206 oase ale corpului se împart în două grupe: Scheletul axial cuprinde oasele care formează axul central al organismului: oasele craniului, ale coloanei vertebrale, ale cuștii toracice și osul hioid, în total 80 de oase (Figura 7.1). Scheletul membrelor (periferic) cuprinde oasele membrelor superioare și inferioare, inclusiv ale mâinilor și picioarelor, precum și oasele care leagă membrele de scheletul axial, adică oasele centurilor pectorală și pelviană. Are în total 126 de oase (Figura 7.8). Aplicat celor patru exemple din figură, criteriul localizării le împarte în două perechi: osul craniului și vertebra aparțin scheletului axial, iar humerusul și oasele carpiene, scheletului membrelor.

Fig. 6.2 · Biologie Barron's · p. 118
Structura unui os lungFigura arată un os lung secționat pe lungime, așa cum sunt femurul și humerusul, exemplele tipice date de manual. Desenul taie osul în două ca să se vadă și interiorul lui. Privit de sus în jos, osul se împarte în regiuni de-a lungul axului: capătul de sus, porțiunea dreaptă din mijloc și capătul de jos. În aceeași secțiune se văd învelișurile osului, cele două tipuri de țesut osos, cu aspect diferit la capete față de mijloc, și cavitatea din interiorul axului. Osul lung este unul dintre cele patru tipuri de oase clasificate după formă (Figura 6.1). Oasele lungi servesc drept pârghie și se întâlnesc în componența membrelor superioare, inferioare și a degetelor. Regiunile osului Diafiza este porțiunea dreaptă, lungă a osului, adică axul lui. Epifizele sunt cele două capete, câte unul la fiecare extremitate, cel de sus rotunjit ca un cap, cel de jos lățit. Metafiza este joncțiunea dintre diafiză și epifiză. Când osul este în creștere, aici apare o zonă activă de cartilaj, placa epifizară, care nu are o etichetă proprie în desen. Osul crește în lungime pe seama depunerii de cartilaj la nivelul plăcii epifizare, fenomen care produce îndepărtarea capetelor osului. Ulterior, acest cartilaj este înlocuit cu țesut osos. După pubertate, zona de cartilaj se îngustează, iar când placa epifizară este complet osificată, creșterea osului în lungime încetează. Acest fenomen este controlat hormonal. Ce acoperă osul la exterior La extremitatea fiecărei epifize se află un strat subțire de cartilaj hialin, numit cartilaj articular. El furnizează o suprafață ce facilitează deplasarea fără frecare a oaselor adiacente, iar într-o articulație sinovială fiecare os este acoperit de un astfel de cartilaj. Acolo unde nu prezintă cartilaj articular, osul lung este acoperit cu un țesut conjunctiv numit periost, care îmbracă, spre exemplu, diafiza. În desen, cartilajul articular este stratul care îmbracă pe dinafară capetele osului, iar periostul este linia subțire ce mărginește diafiza la exterior. Periostul nu este doar un înveliș: din el iau naștere osteocitele. În forma lor inițială, osteocitele sunt osteoblaste foarte active, care produc colagenul și hidroxiapatita prezente în os. Osul compact și osul spongios Osul compact, dens și dur, acoperă la exterior diafiza și formează porțiunea externă a epifizelor. În interior, epifiza conține os spongios, alcătuit dintr-o rețea de structuri osoase întretăiate numite trabecule (travee). Printre travee se găsesc spații ce conțin măduvă roșie. După cum îi spune și numele, osul spongios este mai puțin dens decât cel compact, de aceea capetele osului apar poroase în desen, iar peretele diafizei apare plin. Osul compact mai este denumit și os lamelar. La examinarea microscopică prezintă osteoane, sisteme de inele concentrice de țesut osos, a căror structură este detaliată în Figura 6.3. Cavitatea medulară Deși la exterior diafiza este acoperită de os compact, pe dinăuntru ea este goală. Cavitatea centrală a osului se numește cavitate medulară și conține măduvă galbenă. În desen, ea ocupă mijlocul axului pe aproape toată lungimea lui, mărginită de peretele de os compact. Cavitatea este căptușită de o membrană subțire numită endost, nemarcată în desen, în care se află celule formatoare de os (osteoblaste) și celule ce remodelează osul (osteoclaste). Golul din diafiză vine din felul în care se formează oasele lungi, prin osificare endocondrală. Osteoblastele depun os compact de jur împrejurul unor tije de cartilaj hialin care au forma oaselor lungi. Osificarea continuă la suprafață, dar nu și în profunzime, astfel că interiorul rămâne sub forma unei cavități ce va conține măduva osoasă. De ce contează capetele osului În măduva osoasă roșie din oasele spongioase are loc hematopoieza, adică formarea celulelor sanguine: aici se formează hematiile, leucocitele și plachetele sanguine. Această măduvă este localizată în centrul multor oase, precum vertebrele sau sternul, dar și la capetele humerusului și femurului, adică în epifizele acestor oase lungi.

Fig. 6.3 · Biologie Barron's · p. 119
Structura histologică a osului: osteonulFigura prezintă structura histologică a osului, adică felul în care arată osul compact la microscop, și în special osteonul. Desenul se citește în trei pași. În dreapta sus este un os lung întreg, ca cel din Figura 6.2, pe care este marcată o mică porțiune din perete, aproape de capătul de sus. Săgeata care pleacă de acolo duce la blocul mare din mijloc, care este aceeași porțiune, mult mărită și secționată. Fața de sus a blocului arată osul tăiat transversal, iar fețele din față îl arată tăiat în lungime. Din bloc, o a doua săgeată urcă spre chenarul din stânga sus, unde un fragment al osteonului este prezentat în detaliu, pentru a se vedea structurile de mici dimensiuni. Straturile peretelui osos Blocul cuprinde toată grosimea peretelui, de la exterior spre interior: Periostul, în dreapta, este țesutul conjunctiv care acoperă osul lung acolo unde nu există cartilaj articular, de exemplu pe diafiză. În desen apare ca o foaie groasă, ușor desprinsă de os. Osul compact, dens și dur, ocupă aproape tot blocul. Mai este numit os lamelar și acoperă la exterior diafiza oaselor lungi. Osul spongios, în stânga, este alcătuit dintr-o rețea de structuri osoase întretăiate, numite trabecule (travee), printre care se găsesc spații ce conțin măduvă roșie. După cum îi spune și numele, este mai puțin dens decât osul compact. Osteonul Osteonul este unitatea structurală de bază a osului compact, la adulți. La microscopul optic, osul compact prezintă o serie de inele concentrice, intricate, de țesut osos, organizate în sisteme denumite osteoane. În desen le recunoști în două feluri: Pe fața de sus, tăiată transversal, osteoanele apar ca niște ținte rotunde: inele concentrice în jurul unui mic orificiu. Pe fețele din față, tăiate în lungime, apar ca niște coloane înalte, pe care inelele se văd ca benzi alungite. Orificiul din mijlocul fiecărei ținte este canalul central, care conține nervi și capilare sanguine. Desenul arată doar vasul sanguin din canalul central, ca un tub vertical care străbate blocul pe toată înălțimea lui. Prin vascularizație, osul se deosebește de cartilaj: celulele osoase dispun de o bogată rețea vasculară, în timp ce cartilajul nu conține vase de sânge. În jurul fiecărui canal central se găsesc lamelele osoase, adică inelele osteonului. Spațiile dintre osteoane conțin lamele interstițiale, care sunt, de fapt, osteoane incomplete. Manualul le descrie, dar figura nu le marchează. Aceleași inele concentrice apar și în desenul osului dintre tipurile de țesut conjunctiv din Figura 4.5. Canalele perforante Inelele concentrice ale unui osteon sunt străbătute de un sistem de canale, numite canale perforante, care conectează între ele canalele centrale și celulele osoase. În desen, canalele centrale sunt verticale, pe lungimea osului, iar cele perforante le leagă de-a curmezișul. Un canal perforant pleacă oblic din canalul central din stânga și urcă până la cel din mijlocul blocului. Un al doilea, orizontal, se vede jos, între canalul central din mijloc și cel de lângă periost. Detaliul din chenar Chenarul mărește micul pătrat desenat pe fața de sus a blocului, lângă canalul central al unui osteon. O parte din acest canal se vede și în chenar, în colțul din dreapta sus. Aici apar structurile de mici dimensiuni: Lamela este unul dintre inelele osteonului. Lamelele conțin lacunele, iar chenarul arată din ce sunt făcute. Matricea, fondul chenarului, este alcătuită din fibre de colagen în care sunt înglobate cristale de hidroxiapatită. Hidroxiapatita conferă duritate osului, iar fibrele de colagen sunt răspunzătoare de flexibilitatea acestuia. Lacunele sunt spațiile mici din lamele, în care se află osteocitele. În chenar, fiecare apare ca un spațiu în formă de stea, de la care pornesc canaliculele. Osteocitul este celula osoasă din interiorul unei lacune, desenat ca un corp oval, în mijlocul acesteia. Canaliculele sunt extensii de dimensiuni electronomicroscopice, desenate ca fire subțiri și ramificate. Ele unesc lacunele între ele, precum și cu canalul central. De unde vin osteocitele Osul este învelit de periost, din care iau naștere osteocitele. În forma lor inițială, ele sunt osteoblaste foarte active, care produc colagenul și hidroxiapatita prezente în os. Pe măsură ce sunt înglobate în osul format, devin osteocite, captive în țesutul osos pe care îl întrețin: hrănesc osul din jur și îndepărtează produșii reziduali. Caseta „De reținut” din manual rezumă rolurile celulelor osoase: osteoblastele formează osul, osteocitele îl întrețin, iar osteoclastele îl resorb.

Fig. 6.4 · Biologie Barron's · p. 121
Cele trei tipuri de articulații: sinartroza, amfiartroza și diartrozaArticulațiile sunt locurile în care se întâlnesc două sau mai multe oase, iar ramura anatomiei care le studiază se numește artrologie. Ele se clasifică după gradul de mișcare pe care îl permit, iar figura așază alături câte un exemplu din fiecare dintre cele trei tipuri. Panourile se citesc de la stânga la dreapta, în ordinea creșterii mobilității: sinartrozele sunt imobile, amfiartrozele sunt semimobile, iar diartrozele sunt pe deplin mobile. Ce merită urmărit în fiecare panou este ce anume se află între cele două capete osoase. Sinartroza Panoul din stânga arată un craniu văzut din lateral, cu un mic pătrat pe una dintre liniile care despart oasele lui. Săgeata duce de la pătrat la chenarul de deasupra, unde zona este mărită: marginile celor două oase se îmbucă în zigzag, iar între ele se vede o bandă îngustă de țesut conjunctiv fibros. Sinartrozele sunt articulații aproape sau total imobile. Ele sunt compuse din două capete osoase adiacente, separate de o cantitate redusă de țesut fibros, iar în unele cazuri oasele pot fi separate de un strat subțire de cartilaj. În craniu, sinartrozele se numesc suturi și sunt imobile. Ele apar între osul frontal și cele 2 oase parietale, între oasele parietale, precum și între oasele parietale și osul occipital. Manualul mai descrie două sinartroze, care nu apar în figură: Gomfoza, la locul de implantare a dintelui în alveolă, trebuie să fie imobilă. Sindesmoza unește diafizele a două oase lungi adiacente printr-o membrană fibroasă interosoasă. O astfel de sindesmoză leagă diafizele radiusului și ulnei, la nivelul antebrațului, și permite doar o mișcare minimă între cele 2 oase. Amfiartroza Panoul din mijloc arată o porțiune din coloana vertebrală, secționată pe lungime. În dreapta sunt corpurile vertebrale, suprapuse și despărțite prin discuri, iar în stânga se văd, tăiate oblic, apofizele spinoase ale acelorași vertebre (Figura 7.6). Pe acest panou sunt marcate o vertebră, adică unul dintre capetele osoase ale articulației, și discurile dintre vertebre, o dată cu numele țesutului din care sunt făcute, cartilajul fibros, și o dată cu numele structurii întregi, discul intervertebral. Amfiartrozele sunt articulații cu o mobilitate limitată. O amfiartroză constă din 2 capete osoase adiacente, separate de o cantitate mare de cartilaj. În corpul uman, ele se găsesc în 2 locuri importante: între vertebre, unde cartilajul are forma unui disc, și între cele 2 oase pubiene ale pelvisului. Discurile intervertebrale sunt compuse dintr-un fibrocartilaj care înconjoară un miez gelatinos. Ele absorb șocurile și egalizează presiunea dintre oasele adiacente în timpul mișcărilor, iar datorită flexibilității lor discrete permit o mișcare limitată, precum aplecarea înainte sau în lateral. Cartilajul fibros este cel mai rezistent tip de cartilaj: conține fibre dense de colagen, are o mare rezistență la tensiune și predomină în zonele care trebuie să suporte greutăți. Amfiartroza dintre oasele pubiene se numește simfiza pubiană și are o mobilitate foarte limitată. Și la nivelul ei se găsește cartilaj fibros. O altă amfiartroză poate fi articulația sacroiliacă, dintre osul sacru și osul iliac. Diartroza Ultimul panou arată în secțiune o articulație mobilă, așa cum se poate găsi în articulația șoldului: un cap osos rotunjit, așezat într-o scobitură a osului vecin, totul închis într-un înveliș. Diartrozele sunt articulații ce permit mișcări libere, în anumite cazuri foarte ample. Ele sunt alcătuite din două capete osoase cuprinse într-o cavitate denumită cavitate sinovială, motiv pentru care se mai numesc și articulații sinoviale. Suprafețele articulare ale oaselor nu sunt conectate una de cealaltă. Astfel de articulații apar la nivelul proceselor articulare ale vertebrelor, umărului, cotului, încheieturii mâinii, șoldului, genunchiului, gleznei și labei piciorului. Observă că vertebrele apar de două ori: între ele există amfiartroze, prin discuri, dar și diartroze, la nivelul proceselor articulare. Structurile marcate pe panou, dinspre exterior spre interior: Capsula articulară fibroasă învelește cele două capete osoase, iar în interiorul ei se află cavitatea sinovială. În anumite articulații, capsula se organizează sub formă de fascicule groase, care formează ligamentele. Membrana sinovială tapetează suprafața internă a capsulei, dar nu acoperă suprafețele articulare ale oaselor. Ea secretă un lichid vâscos, cu rol lubrifiant, numit lichid sinovial. Cavitatea articulară cu lichid sinovial este spațiul închis de capsulă, în care sunt cuprinse capetele osoase. În desen apare ca spațiul care înconjoară capul osos rotunjit, îngust acolo unde acesta se atinge de scobitura osului vecin și mai larg pe laturile lui. Conține lichidul secretat de membrana sinovială. Osul spongios formează interiorul ambelor oase, desenat ca o rețea cu multe spații. Este alcătuit din trabecule (travee) întrețăiate, printre care se găsesc spații cu măduvă roșie, și este mai puțin dens decât osul compact. La un os lung, osul spongios umple interiorul epifizelor, iar porțiunea lor externă este formată din os compact (Figura 6.2). Cartilajul articular nu este marcat pe figură, deși într-o articulație sinovială fiecare os este acoperit de el. Este un strat subțire de cartilaj hialin, aflat la extremitatea epifizei, care furnizează o suprafață ce facilitează deplasarea fără frecare a oaselor adiacente. Un capăt osos rotund articulat cu o suprafață concavă, ca în desen, formează o articulație sferoidală, tipul de diartroză care permite cele mai libere mișcări și care se găsește la umăr și la șold. Diartrozele se împart în mai multe tipuri, după componentele lor și după mișcările pe care le permit, prezentate în Figura 6.5. De reținut Sinartrozele sunt aproape imobile, amfiartrozele au o mobilitate limitată, iar diartrozele sunt cele mai mobile articulații. Ca să le deosebești, uită-te la ce se află între capetele osoase: o cantitate redusă de țesut fibros la sinartroze, o cantitate mare de cartilaj la amfiartroze și o cavitate sinovială la diartroze.
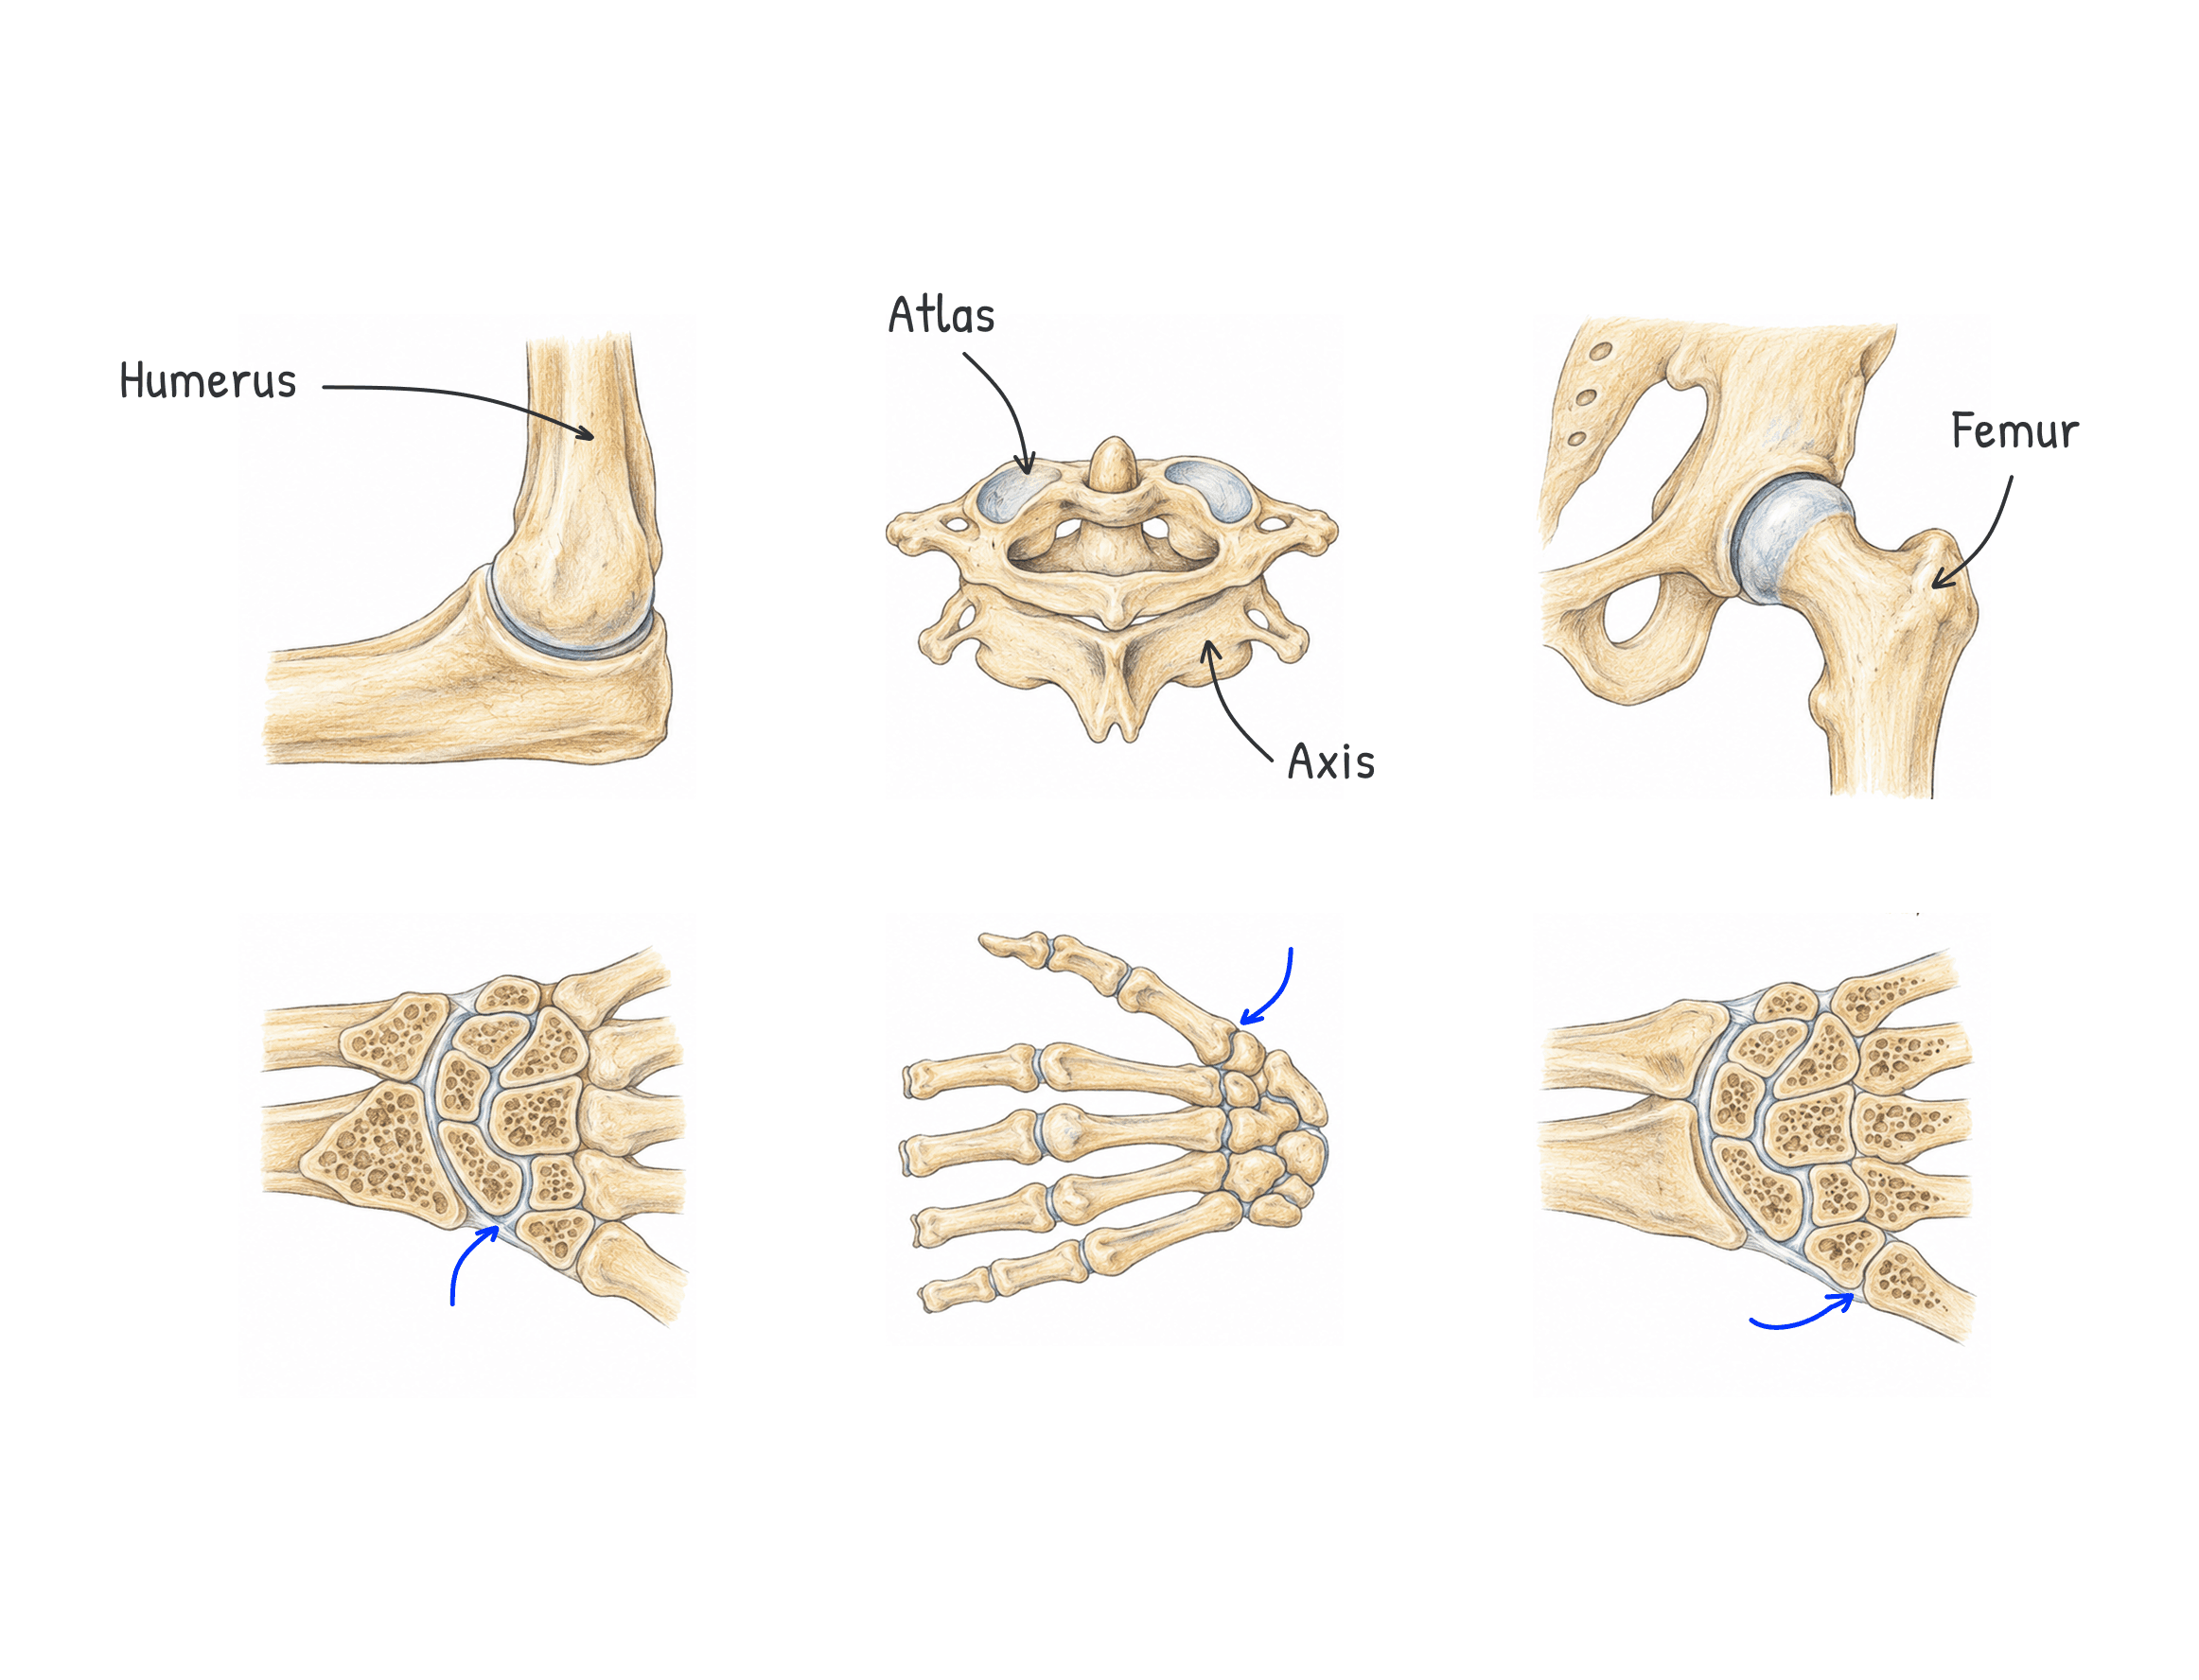
Fig. 6.5 · Biologie Barron's · p. 124
Cele șase tipuri de diartrozeFigura adună în șase panouri, pe două rânduri, cele șase tipuri de diartroze din Tabelul 6.2. Toate sunt articulații ce permit mișcări libere, iar ce le deosebește este forma suprafețelor articulare și, odată cu ea, mișcarea pe care o permit. În rândul de sus sunt trei articulații mari, la care desenul numește câteva oase: humerusul, atlasul și axisul, femurul. Rândul de jos arată mâna și încheietura ei, unde oasele sunt mici și multe, așa că în fiecare panou câte o săgeată indică o articulație anume. Articulația trohleară (în formă de scripete) Panoul din stânga sus arată cotul îndoit în unghi drept. Humerusul coboară vertical, iar capătul lui rotunjit se sprijină în suprafața concavă a ulnei, osul antebrațului care pleacă spre stânga. Într-o articulație trohleară, o suprafață în formă de scripete se articulează cu o suprafață concavă, iar mișcarea are loc într-un singur plan, în jurul unei singure axe, ca o balama. Exemplele din manual sunt cotul (între humerus și ulnă), genunchiul (între femur și tibie) și articulațiile interfalangiene. De altfel, unul dintre cei doi condili de la capătul inferior al humerusului se numește chiar trohlee (Figura 7.9). Articulația pivot Panoul din mijloc sus arată primele două vertebre ale gâtului, atlasul deasupra și axisul dedesubt. Mica proeminență care se ridică prin mijlocul atlasului este apofiza odontoidă (dintele) a axisului, care se orientează în sus și pătrunde în gaura vertebrală a atlasului. Într-o articulație pivot, suprafața cilindrică a unui os se rotește în interiorul unui inel format de osul opus, adică o suprafață arcuită se rotește în jurul unui pivot. Mișcarea permisă este rotația, iar exemplul din manual este chiar articulația dintre axis și atlas, pe care se bazează rotațiile capului. Articulația sferoidală Panoul din dreapta sus arată șoldul, unde capul rotund al femurului stă într-o cavitate a osului coxal, acetabulul. O articulație sferoidală se formează prin articularea unui capăt osos rotund cu o suprafață concavă, adică o suprafață convexă se articulează cu una concavă. Ea permite cele mai variate mișcări dintre toate articulațiile. Pe lângă șold, o astfel de articulație se găsește la umăr, unde capul humerusului se articulează cu cavitatea glenoidală a scapulei (numită și fosa glenoidă). Articulația condiloidă (elipsoidală) Panoul din stânga jos arată încheietura mâinii: în stânga se văd capetele celor două oase ale antebrațului, la mijloc oasele carpiene, iar în dreapta bazele metacarpienelor. Săgeata arată locul unde radiusul, osul mai gros de jos, de partea degetului mare, se articulează cu oasele carpiene. Aici, un condil de formă ovală este articulat cu o cavitate eliptică, iar mișcarea are loc în două planuri perpendiculare unul pe celălalt. Rotația nu este posibilă, dar restul mișcărilor, în majoritate, sunt permise. Articulația selară Panoul din mijloc jos arată scheletul întregii mâini, cu degetele spre stânga și degetul mare în sus. Săgeata arată baza degetului mare, unde metacarpianul lui se articulează cu osul trapez (os carpian). Într-o articulație selară, un os în formă de șa este articulat cu o suprafață de formă opusă: suprafețele osoase sunt concave, respectiv convexe, iar suprafața concavă a unui os se articulează cu suprafața convexă a celuilalt. Mișcările sunt aceleași ca la articulația condiloidă, dar mai libere, asemănătoare unui călăreț în șa. Și aici rotația este restricționată, iar împreună cu cea condiloidă, articulația selară este denumită articulație biaxială. Articulația plană Panoul din dreapta jos arată din nou încheietura mâinii, cu cele opt oase carpiene așezate pe două rânduri a câte patru, strânse unele lângă altele. Într-o articulație plană se articulează două suprafețe relativ plate, iar mișcările sunt de alunecare (non-axiale), în mai multe direcții, și de răsucire. Astfel de articulații apar între anumite oase carpiene, între unele oase tarsiene și între procesele vertebrale. Dimensiunile mici ale oaselor carpiene și articulațiile dintre ele dau încheieturii mâinii o mare flexibilitate. Ce au toate în comun Oricât de diferite ar fi ca formă, toate cele șase sunt diartroze, cele mai mobile articulații, numite și articulații sinoviale (Figura 6.4). Capetele osoase sunt acoperite de cartilaj articular și învelite de o capsulă fibroasă, tapetată pe dinăuntru de membrana sinovială, care secretă lichidul sinovial, cu rol lubrifiant. Mișcările permise de diartroze se produc sub acțiunea mușchilor scheletici și sunt prezentate imediat după, în Figura 6.6.
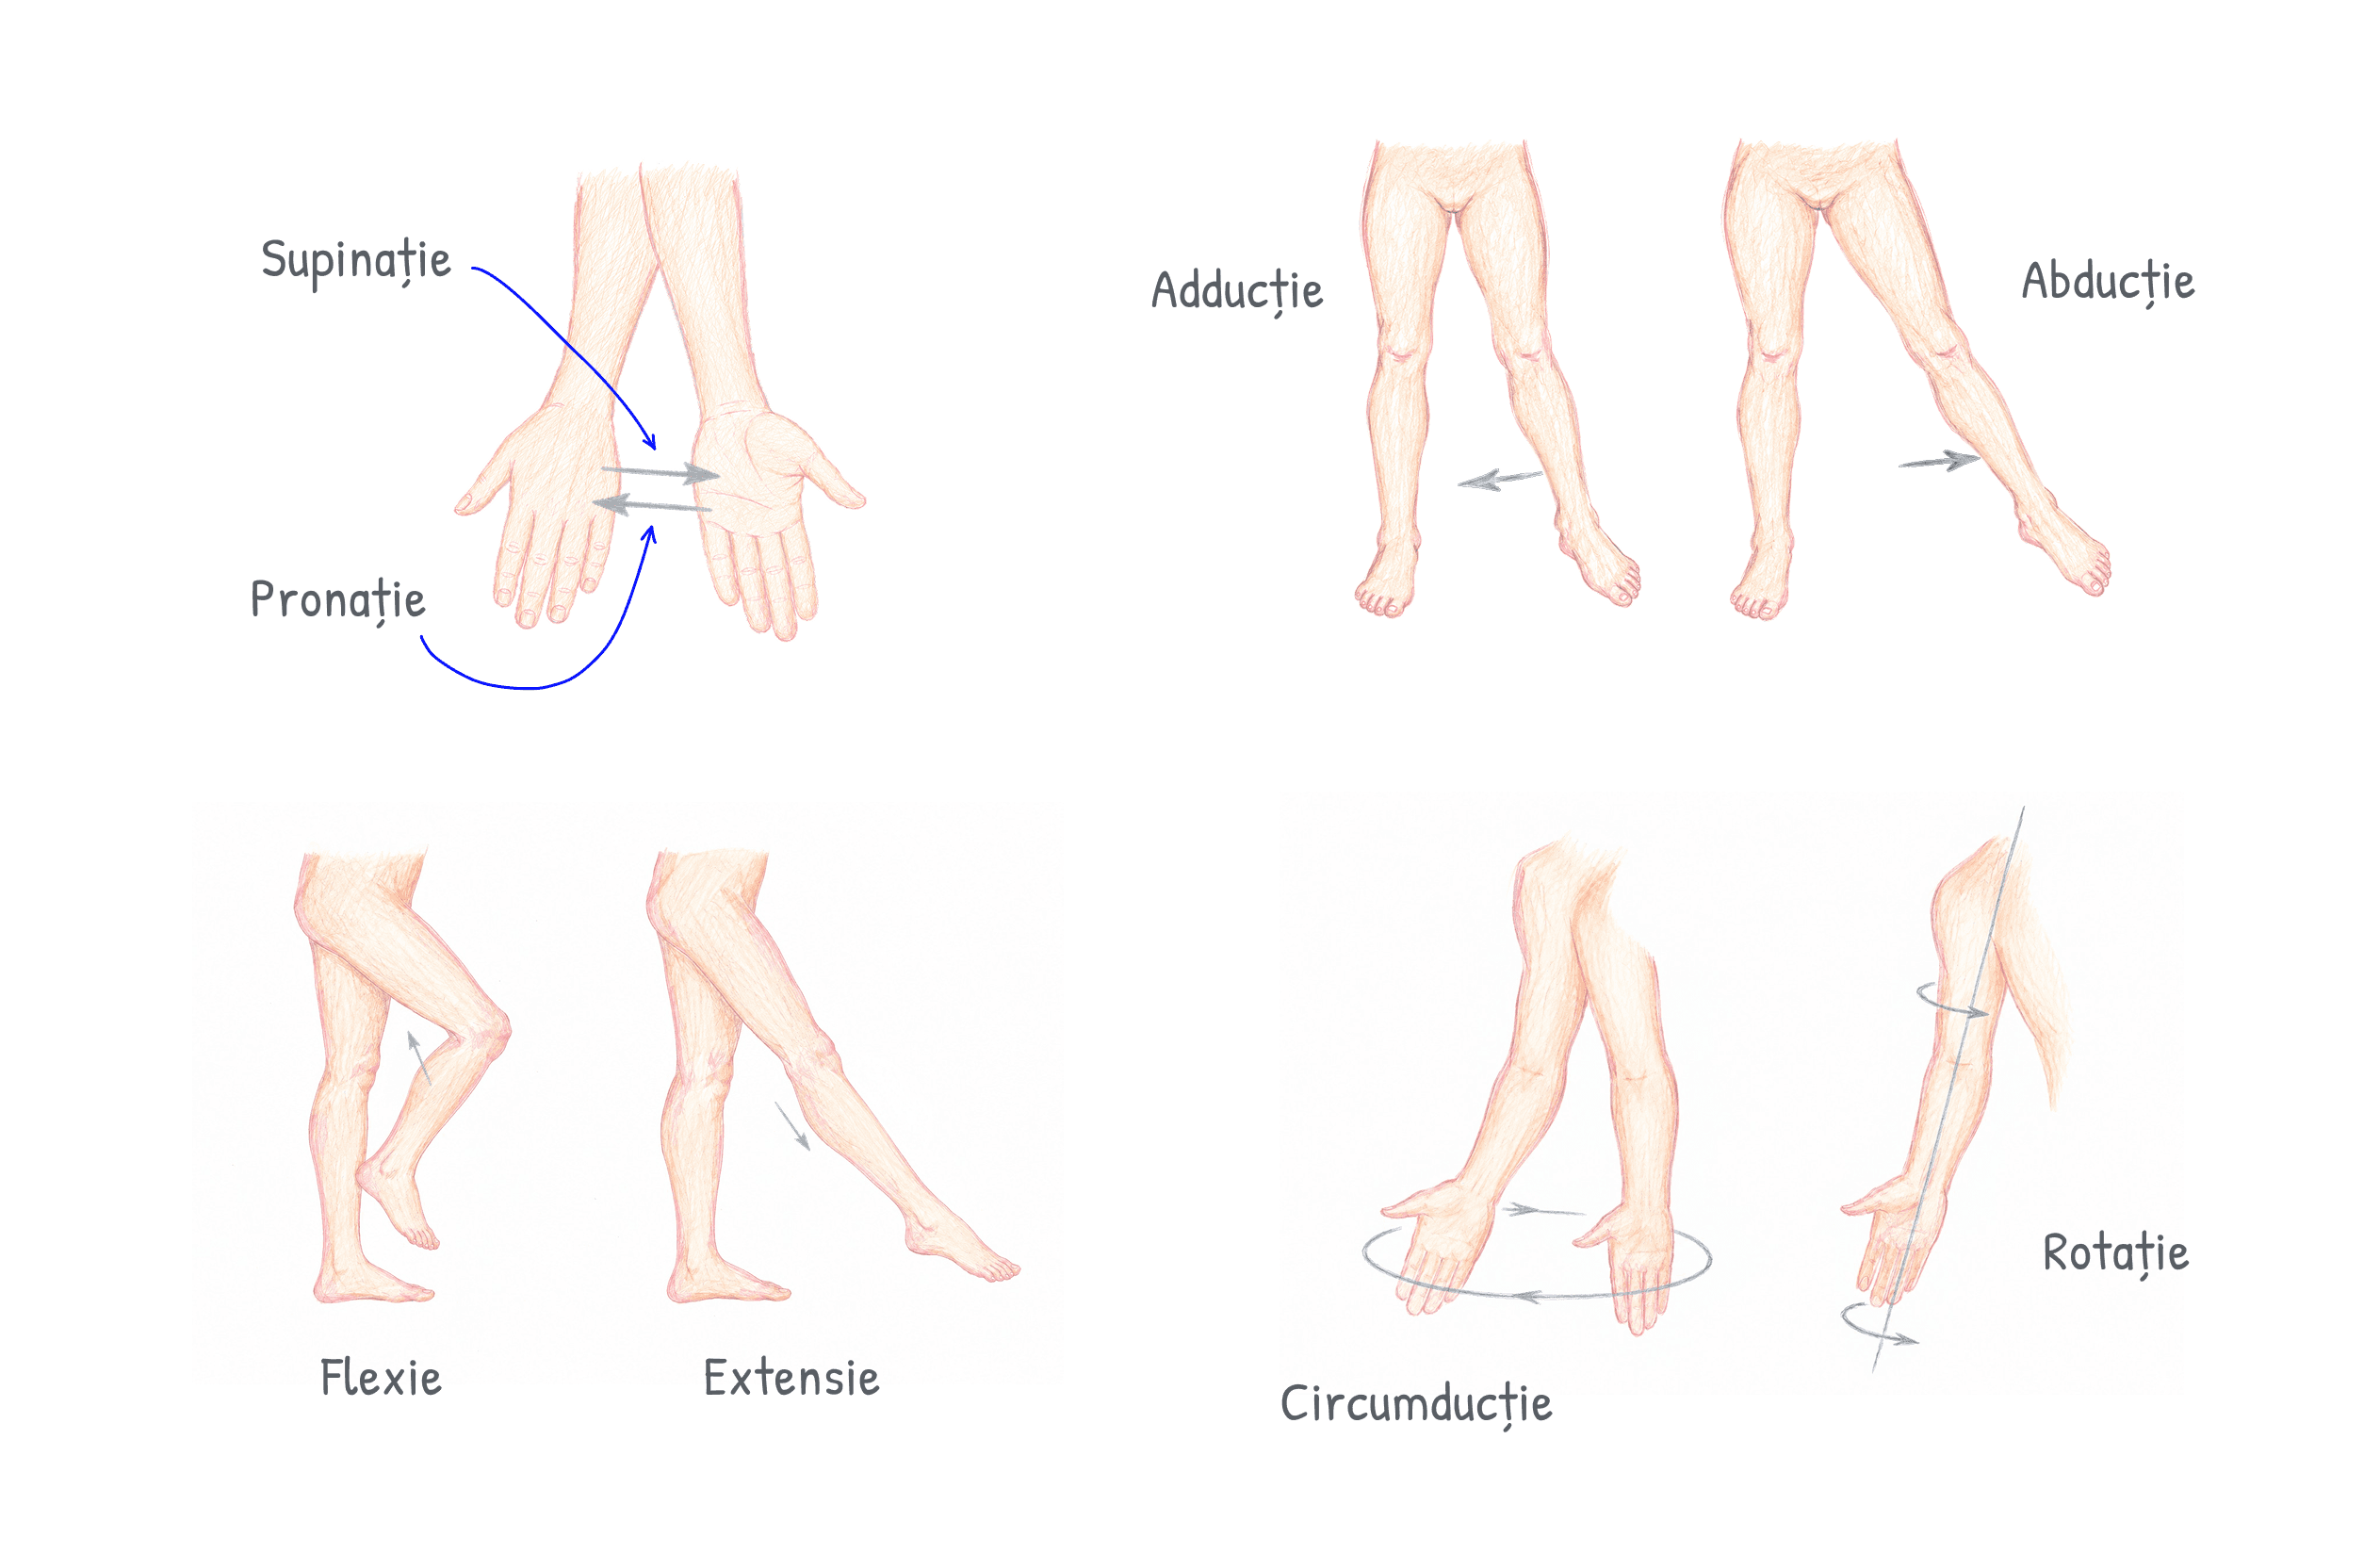
Fig. 6.6 · Biologie Barron's · p. 125
Mișcările posibile în articulațiile umaneFigura adună mișcările posibile în articulațiile umane, adică mișcările care au loc la nivelul diartrozelor, articulațiile pe deplin mobile ale corpului. Are patru grupuri de desene, fiecare cu numele a două mișcări. Trei grupuri arată câte o pereche de mișcări opuse, iar al patrulea, din dreapta jos, două mișcări diferite. Săgețile arată încotro se deplasează partea care se mișcă. Ca să recunoști o mișcare, urmărește ce se schimbă de la un desen la altul: orientarea palmei, distanța față de linia mediană a corpului sau unghiul dintr-o articulație. Mișcările din diartroze sunt produse de mușchii scheletici. În majoritatea cazurilor, mușchiul este atașat cu un capăt de partea fixă, imobilă, a articulației, iar cu celălalt, pe partea opusă, de partea ei mobilă. Contracția lui trage de partea mobilă și așa apare mișcarea articulară. Diartrozele se împart în mai multe tipuri și după mișcarea pe care o permit (Tabelul 6.2 și Figura 6.5), așa că nu orice diartroză permite toate mișcările din figură. Supinația și pronația În stânga sus, antebrațul și mâna sunt desenate în două poziții, cu palma orientată diferit. La încheietura mâinii, două săgeți de sens opus, marcate „Supinație” și „Pronație”, arată cele două sensuri în care se rotește antebrațul. Pronația este rotația antebrațului astfel încât palma să privească spre posterior. Manualul o numește o formă specială de rotație. Supinația este mișcarea opusă: antebrațul se rotește până când palma ajunge în poziție anatomică, privind spre anterior. În poziția anatomică, reperul acestor definiții, membrele superioare stau pe lângă corp, cu palmele înainte și policele orientat spre exterior (Figura 1.2). Adducția și abducția În dreapta sus, aceeași pereche de membre inferioare, văzută din față, este desenată de două ori. Un membru stă drept, iar celălalt este depărtat lateral și are pe gambă o săgeată. Adducția este apropierea unui membru de linia mediană a corpului. În desenul ei, săgeata arată spre celălalt membru, adică spre linia mediană. Abducția este îndepărtarea unui membru față de linia mediană. În desenul ei, membrul este și mai depărtat, iar săgeata arată în sens opus. Exemplul din manual folosește membrul superior: ridicarea brațului până la orizontală este o abducție, iar întoarcerea lui în poziția anatomică este o adducție. Flexia și extensia În stânga jos, membrele inferioare sunt văzute din profil, iar mișcarea are loc în genunchi. Flexia este mișcarea care micșorează unghiul dintre două oase ale unei articulații, pe scurt îndoirea articulației. În desenul ei, genunchiul este îndoit, iar săgeata arată gamba ridicându-se spre coapsă. Extensia este mișcarea opusă: unghiul dintre cele două oase crește, iar articulația se întinde. În desenul ei, membrul este întins înainte, iar săgeata arată gamba coborând și îndepărtându-se de coapsă. Manualul dă ca exemplu tocmai flexia genunchiului. Genunchiul, articulația dintre femur și tibie, este o articulație trohleară: mișcarea are loc într-un singur plan, ca la o balama. Circumducția și rotația În dreapta jos, ambele desene arată membrul superior, care se mișcă din umăr. Umărul este o articulație sferoidală, tipul de diartroză care permite cele mai libere mișcări. Circumducția: membrul superior este desenat în două poziții, iar în dreptul mâinii este trasată o săgeată în formă de cerc. Desenul arată că mâna, de la capătul membrului, descrie un cerc. Rotația este mișcarea unei părți a corpului în jurul unei axe, iar Tabelul 6.3 o precizează ca rotația unui os de-a lungul propriei axe. În desenul ei, membrul superior este străbătut pe lungime de o linie dreaptă, axa lui, iar două săgeți circulare, una în partea de sus a membrului și una sub mână, se înfășoară în jurul ei. Exemplul dat de manual este întoarcerea capului dintr-o parte în alta, ca atunci când spui „nu”. Rotația poate fi medială, spre linia mediană a corpului, sau laterală, în direcția opusă. Perechile de mișcări antagoniste Tabelul 6.3 așază mișcările articulare în perechi: fiecare acțiune are o acțiune antagonistă, de sens opus. În figură apar trei dintre ele: flexia cu extensia, abducția cu adducția și supinația cu pronația. Rotația formează în tabel o pereche proprie, rotația medială și rotația laterală. Manualul mai adaugă patru perechi, care nu sunt desenate aici: Elevația, ridicarea unei părți a corpului, de exemplu a umerilor, și depresia, coborârea ei. Protracția, împingerea spre înainte a unei părți a corpului, și retracția, retragerea ei spre înapoi, de exemplu a bărbiei. Flexia dorsală, îndoirea labei piciorului către tibie, și flexia plantară, îndoirea ei în direcția opusă, spre înapoi. Inversia, rotirea tălpii spre interior, și eversia, rotirea tălpii spre exterior.
- 7Sistemul ososPaginile 139 - 153

Fig. 7.1 · Biologie Barron's · p. 141
Oasele scheletului axial umanFigura prezintă un schelet uman întreg, văzut din față, pe care sunt marcate doar oasele scheletului axial, adică ale axului central al corpului. Scheletul axial complet este format din 80 de oase, iar cifrele din paranteze drepte, preluate din manual, arată numărul total de oase al fiecărei componente a scheletului. Totul pornește de la sistemul scheletal (osos) [206], care cuprinde toate oasele corpului. Manualul îl desparte în două ramuri, scheletul axial și scheletul membrelor, iar scheletul axial se desface mai departe în trei componente: craniul, cușca toracică și coloana vertebrală. Fiecare componentă are grupele ei de oase, iar acestea sunt marcate pe desen, fiecare la locul ei. Cele două mari categorii Corpul uman conține 206 oase, organizate într-o structură numită schelet. Din punct de vedere anatomic, scheletul este împărțit în două mari categorii: Scheletul axial [80] este compus din oasele axului central al corpului. În text, manualul le enumeră astfel: oasele cuștii toracice, ale coloanei vertebrale, ale craniului și osul hioid. Doar această ramură este împărțită mai departe, până la grupele de oase. Scheletul membrelor [126] este compus din oasele membrelor superioare și inferioare, precum și din oasele care atașează membrele la corp, numite centuri. Centura pectorală leagă brațele de cușca toracică, iar centura pelviană leagă oasele membrelor inferioare de sacru. Membrele sunt desenate și aici, dar nu sunt marcate. Oasele lor sunt numite în Figura 7.8. Craniul [29] Craniul prezintă două regiuni distincte: cutia craniană și oasele feței. Majoritatea oaselor craniului sunt plate și strâns legate între ele. Craniul văzut din față, cu oasele ambelor regiuni, apare în Figura 7.4. În figura de față, la craniu sunt socotite patru grupe: Cutia craniană [8] este marcată în partea de sus a capului. Cele 8 oase ale ei sunt osul frontal, cele două oase parietale, osul occipital, cele două oase temporale, osul sfenoid și osul etmoid, unite prin articulații imobile, zimțate, numite suturi. Prin foramen magnum, orificiul mare al osului occipital, encefalul se continuă cu măduva spinării. Oasele feței [14] formează masivul facial, pe care se atașează mușchii masticatori, și adăpostesc câteva din organele de simț ale capului: ochii, urechile și nasul. Manualul le descrie pe rând: oasele nazale, vomerul, cornetele nazale inferioare, oasele zigomatice, oasele lacrimale, maxilele, oasele palatine și mandibula. În afară de vomer și de mandibulă, toate sunt câte două, ceea ce dă cele 14 oase. Oasele urechii medii [6] sunt marcate în dreptul urechii. Fiecare ureche medie conține trei oase mici, numite oscioare (ciocanul, nicovala și scărița), deci câte trei de fiecare parte a capului. Hioidul [1] este marcat sub mandibulă, la nivelul gâtului. Este un os mic, arcuit, care permite atașarea mușchilor limbii și nu se articulează în mod direct cu niciun alt os. Cușca toracică [25] Cușca toracică este formată de stern și coaste, care împreună alcătuiesc o cutie protectoare. Detaliile ei se văd în Figura 7.7. Sternul [1] este osul așezat median, pe fața anterioară a toracelui. Are trei părți: manubriul, corpul și apofiza xifoidă. Coastele [24] pornesc din coloana vertebrală și înconjoară toracele. Adultul prezintă 12 perechi de coaste. Primele 7 perechi, coastele adevărate, se articulează direct cu sternul, iar următoarele 5 perechi, coastele false, nu se articulează direct cu el. Coloana vertebrală [26] Coloana vertebrală, denumită și șira spinării, se extinde descendent de la baza craniului și conține 26 de oase (Figura 7.5). Figura împarte cele 26 de oase în trei grupe: Vertebrele [24]: 7 cervicale (în regiunea gâtului), 12 toracice (în regiunea toracelui) și 5 lombare (în regiunea lombară). Până deasupra sacrului, ele sunt separate prin discuri intervertebrale. Sacrul [1], format prin fuziunea a 5 vertebre sacrale. Coccisul [1], format din fuziunea a 4 vertebre coccigiene. Cum se adună cele 80 de oase Fiecare cifră este suma celor din grupele ei: $8 + 14 + 6 + 1 = 29$ pentru craniu, $1 + 24 = 25$ pentru cușca toracică și $24 + 1 + 1 = 26$ pentru coloana vertebrală. Împreună, $29 + 25 + 26 = 80$ de oase axiale, iar $80 + 126 = 206$, adică toate oasele corpului. Caseta „De reținut” din capitol dă și regula de împărțire: oasele membrului superior și inferior sunt oase periferice, iar toate celelalte oase ale capului și trunchiului sunt axiale.

Fig. 7.2 · Biologie Barron's · p. 142
Craniul, vedere laterală: anatomia externă și internăFigura prezintă craniul văzut dintr-o parte, desenat de două ori. Craniul are două regiuni distincte, cutia craniană și oasele feței. În ambele panouri fața este orientată spre dreapta și ceafa spre stânga, așa că poți urmări aceleași oase de la un desen la altul. (a) Anatomia externă a craniului, vedere lateral-dreaptă: craniul întreg, privit din afară, cu suturile dintre oase, reperele osului temporal și mandibula. (b) Anatomia internă a craniului, secțiune sagitală cu vederea părții stângi: craniul este tăiat pe linia mediană, iar jumătatea stângă este privită dinspre interior. Oasele tăiate își arată grosimea, iar golurile din ele sunt sinusurile. Se văd și structurile de pe linia mediană a cavității nazale și fața internă a mandibulei. Oasele cutiei craniene Cutia craniană conține 8 oase, cele mai multe plate și strâns legate între ele. Osul frontal formează fruntea și porțiunea anterioară a calotei craniene. În secțiune i se vede sinusul frontal. Oasele parietale, plate și curbate, sunt unite între ele pe linia mediană și formează porțiunea posterioară a calotei craniene. Osul occipital formează partea posterioară a cutiei craniene. În secțiune, pe conturul lui din spate, se ridică protuberanța occipitală externă. Oasele temporale formează pereții laterali ai cutiei craniene și, parțial, baza acesteia. Osul sfenoid are forma unui fluture și formează partea anterioară a bazei interne a cutiei craniene. Din afară i se vede doar o porțiune mică, la tâmplă, în fața osului temporal. În secțiune, în aceeași zonă apare aripa mare a osului sfenoid, iar mai jos, în spatele cavității nazale, sinusul sfenoid. Osul etmoid separă cavitatea nazală de cutia craniană. Din afară se vede în peretele medial al orbitei, iar în secțiune apare lama perpendiculară a osului etmoid, o placă verticală pe linia mediană a cavității nazale, deasupra vomerului. Sinusul frontal și sinusul sfenoid sunt cavități în grosimea oaselor. Ele se deschid în cavitățile nazale, iar mucoasa lor continuă mucoasa nazală. Împreună cu cornetele nazale, sinusurile sunt porțiuni în care aerul este încălzit și încetinit. Suturile Oasele craniului sunt unite prin suturi, articulații imobile și zimțate, desenate ca linii în zigzag. Suturile sunt sinartroze, în care două capete osoase alăturate sunt separate de o cantitate redusă de țesut fibros (Figura 6.4). Manualul le localizează între osul frontal și cele 2 oase parietale, între cele două oase parietale și între oasele parietale și osul occipital. Pe desen sunt numite patru suturi: Sutura coronară unește osul frontal cu oasele parietale și coboară din creștet spre tâmplă. Sutura lambdoidă unește, în spate, oasele parietale cu osul occipital. Sutura scuamoasă, arcuită deasupra orificiului auditiv extern, unește osul temporal cu osul parietal. Sutura occipitomastoidă unește osul occipital cu osul temporal, jos, aproape de apofiza mastoidă. La nou-născuți oasele nu sunt încă unite, iar spațiile membranoase dintre ele se numesc fontanele („moalele capului”). Această dezvoltare incompletă îi permite cutiei craniene să se îngusteze ușor în timpul nașterii și să crească mult odată cu vârsta. După al doilea an de viață, fontanelele se osifică și suturile se formează complet. Reperele osului temporal Prin orificiul auditiv extern, numit în text și orificiul acustic extern, undele sonore pătrund în cutia craniană și ajung la urechea internă, aflată profund în osul temporal. Sub orificiu se află apofiza mastoidă, o protuberanță rotunjită de care se prind mulți dintre mușchii gâtului, și apofiza stiloidă, o proeminență ascuțită pentru mușchii faringelui și ai limbii. Spre înainte pornește apofiza zigomatică, bara subțire care se unește cu apofiza temporală a osului zigomatic și formează arcul zigomatic, la nivelul pomeților obrajilor. Tot pe osul temporal se află fosa mandibulară, depresiunea în care se articulează mandibula. Oasele feței Masivul facial este format din 14 oase, pe care se atașează mușchii masticatori. Oasele nazale fuzionează pe linia mijlocie și formează dosul nasului. Oasele lacrimale, cele mai mici oase ale feței, se găsesc la nivelul unghiului medial al ochiului. Șanțul lacrimal de pe ele permite scurgerea lacrimilor din orbită spre cavitatea nazală. Oasele zigomatice, situate sub orbite, sunt structuri de suport ale feței și formează parțial pomeții obrajilor. Maxilele sunt cele două oase sudate între ele pe linia mediană, numite impropriu „maxilarul superior”. Conțin sinusurile maxilare, de mari dimensiuni, și formează porțiunea anterioară a palatului dur. Oasele palatine formează porțiunea posterioară a palatului dur și participă la formarea planșeului și a pereților laterali ai cavității nazale. Vomerul, un os vertical, este component al septului nazal și împarte cavitatea nazală într-o cameră dreaptă și una stângă. În secțiune se vede sub lama perpendiculară a osului etmoid, deasupra palatului. Tot în secțiune, în spatele osului palatin, coboară de sub sinusul sfenoid apofiza pterigoidă, o proeminență osoasă subțire. Mandibula Maxilarul inferior, tot o denumire improprie, este un os în formă de potcoavă, mandibula, atașat de cutia craniană printr-o articulație de tip balama. Corpul ei poartă dinții de jos, iar spre spate urcă ramura mandibulară. Colțul dintre corp și ramură este unghiul mandibular. La fiecare extremitate, mandibula are câte un proces orientat cranial, cu două părți. Condilul mandibular, în spate, se articulează cu fosa mandibulară a osului temporal, chiar în fața orificiului auditiv extern. Apofiza coronoidă, în față, urcă pe sub arcul zigomatic și este locul de atașare a mușchilor masticatori. Scobitura dintre ele este incizura mandibulară. Pe fața externă a corpului se deschide foramenul mental, iar pe fața internă a ramurii, vizibilă doar în secțiune, foramenul mandibular. Un foramen este un orificiu într-un os, traversat de vase și nervi. Marginile maxilei și ale mandibulei în care stau înfipți dinții sunt procesele alveolare. Fiecare dinte este implantat în alveola lui printr-o gomfoză, o sinartroză care trebuie să fie imobilă. Celelalte fețe ale acelorași oase apar pe craniul privit de jos și de sus (Figura 7.3) și din față (Figura 7.4).
Fig. 7.3 · Biologie Barron's · p. 144
Cutia craniană: vedere inferioară și vedere superioarăFigura arată baza craniului din două direcții. Craniul are două regiuni, cutia craniană și oasele feței, iar cutia craniană conține 8 oase unite prin articulații imobile, zimțate, numite suturi. Aceleași oase, văzute din lateral și în secțiune sagitală, apar în Figura 7.2. În ambele panouri, partea din față a capului este sus, iar ceafa jos. (a) Vederea inferioară: mandibula a fost îndepărtată, așa că vezi craniul de dedesubt, cu șirul de dinți sus și cu foramen magnum jos. (b) Vederea superioară: calota craniană a fost îndepărtată, așa că vezi de sus baza internă a cutiei craniene, podeaua ei privită dinăuntru. Pe lângă oase, figura numește repere din grupele descrise în Tabelul 7.1: deschideri (găuri sau foramene, adică orificii situate într-un os, traversate de vase și nervi), depresiuni și procese (proeminențe). (a) Oasele feței, privite de dedesubt Jumătatea din față a panoului aparține oaselor feței: Maxilele, cele două oase sudate pe linia mediană, numite impropriu „maxilar superior”, se recunosc după dinții de sus, așezați în ele. Conțin sinusurile maxilare, de mari dimensiuni. Palatul dur, porțiunea osoasă cuprinsă între dinți, este unul dintre pereții care înconjoară cavitatea orală. Porțiunea lui anterioară este formată de maxile, prin apofiza palatină, iar cea posterioară de oasele palatine, care participă și la formarea planșeului și a pereților laterali ai cavității nazale. Vomerul se vede pe linia mediană, chiar în spatele palatului. Este un os vertical, component al septului nazal, care împarte cavitatea nazală într-o cameră dreaptă și una stângă. Osul zigomatic, situat sub orbită, susține fața și formează parțial pomeții obrajilor. Apofiza lui temporală se unește cu apofiza zigomatică a osului temporal și formează arcul zigomatic, bara osoasă vizibilă de fiecare parte a desenului. (a) Baza cutiei craniene, privită de dedesubt Jumătatea din spate aparține cutiei craniene: Aripa mare a osului sfenoid apare lateral, în spatele ultimilor dinți. Imediat în spatele ei se vede gaura ovală, un orificiu mic, oval. Osul temporal formează peretele lateral al cutiei craniene și, parțial, baza ei. Din el coboară apofiza stiloidă, proeminența ascuțită de care se atașează mușchii faringelui și ai limbii. Lateral se află apofiza mastoidă, protuberanța rotunjită de care se atașează mulți dintre mușchii gâtului. Amândouă stau sub orificiul acustic extern. Foramen magnum este orificiul mare al osului occipital, prin care encefalul se continuă cu măduva spinării. De o parte și de alta a lui se află cei doi condili occipitali, protuberanțe rotunjite prin care craniul se articulează cu partea superioară a coloanei vertebrale, mai exact cu fațetele atlasului, prima vertebră. Osul parietal apare doar ca margine, pe conturul craniului dinspre ceafă, pentru că face parte din calota craniană, partea de sus a cutiei. (b) Baza internă a cutiei craniene, privită de sus Pereții cutiei craniene, tăiați odată cu îndepărtarea calotei, formează un inel în jurul bazei. Parcurge desenul din față spre ceafă: Osul frontal, care formează fruntea și porțiunea anterioară a calotei craniene, ocupă partea din față. În mijlocul acestei regiuni, pe linia mediană, se află osul etmoid, care separă cavitatea nazală de cutia craniană. Din el se vede lama ciuruită, o lamă osoasă subțire, orizontală, prin ale cărei perforații fibrele nervilor olfactivi trec dinspre nas către encefal. Deasupra ei se ridică crista galli, o proeminență triunghiulară, verticală. Osul sfenoid, cel în formă de fluture, formează și el partea anterioară a bazei interne a cutiei craniene. Îl recunoști după aripile mici, care pornesc de lângă linia mediană spre lateral, și după șaua turcească, depresiunea în formă de șa din spatele lor, în care este așezată glanda hipofiză. Lateral urmează oasele temporale. Pe fața lor dinspre interior se deschide orificiul acustic intern, iar imediat în spatele lui, lângă foramen magnum, se află gaura jugulară. În spate se află osul occipital, cu foramen magnum în mijloc. Pe părțile laterale, spre ceafă, inelul aparține oaselor parietale. Cum oasele perechi apar pe ambele părți, în această vedere se regăsesc toate cele 8 oase ale cutiei craniene: frontalul, cele două parietale, occipitalul, cele două temporale, sfenoidul și etmoidul. Osul temporal, osul parietal și foramen magnum sunt marcate în ambele panouri, așa că le poți compara privite de jos și de sus. Mandibula, osul îndepărtat în panoul (a) Mandibula, osul în formă de potcoavă numit impropriu „maxilar inferior”, se atașează de cutia craniană printr-o articulație de tip balama: condilul mandibular se articulează cu fosa mandibulară a osului temporal. O vezi la locul ei în Figura 7.4.

Fig. 7.4 · Biologie Barron's · p. 145
Craniul, vedere anterioarăFigura arată craniul privit din față. Din acest unghi se văd ambele regiuni ale craniului: sus cutia craniană, cu fruntea și calota, iar dedesubt oasele feței, cu cele două orbite, deschiderea nazală dintre ele și dinții. Desenul este simetric: oasele pereche sunt marcate o singură dată, pe una dintre jumătăți, dar le găsești în oglindă și pe cealaltă. Oasele cutiei craniene Cutia craniană conține 8 oase, unite între ele prin articulații imobile, zimțate, numite suturi. Din față se văd șapte dintre ele. Lipsește doar osul occipital, care formează partea posterioară a cutiei craniene și apare în Figura 7.2. Osul frontal formează fruntea și porțiunea anterioară a calotei craniene și coboară până la marginea de sus a orbitelor. Oasele parietale, plate și curbate, formează porțiunea posterioară a calotei, așa că din față se vede doar câte o fâșie din ele, sus și lateral. Sunt unite între ele pe linia mediană, iar sutura dintre ele, sutura sagitală, este marcată în vârful calotei. Oasele temporale formează pereții laterali ai cutiei craniene și, parțial, baza ei. Fiecare se articulează cu mandibula, la nivelul fosei mandibulare. Osul sfenoid are forma unui fluture și formează partea anterioară a bazei interne a cutiei craniene. Din față apare în două locuri: pe peretele lateral al craniului, în afara orbitei, și în interiorul orbitei. Osul etmoid separă cavitatea nazală de cutia craniană, iar prin perforațiile lamei lui ciuruite trec fibrele nervilor olfactivi, dinspre nas către encefal (Figura 7.3). Din față se vede în partea medială a orbitei. Tot lui îi aparține cornetul nazal mijlociu, din cavitatea nazală. Oasele feței Masivul facial este format din 14 oase. Pe ele se atașează mușchii masticatori și tot ele oferă puncte de susținere și altor mușchi ai feței și ai capului. Aproape toate se văd în figură. Lipsesc doar oasele palatine, care formează porțiunea posterioară a palatului dur. Oasele nazale fuzionează pe linia mijlocie formând dosul nasului. Ocupă spațiul îngust dintre orbite, chiar deasupra deschiderii nazale. Oasele lacrimale, cele mai mici oase faciale, se găsesc la nivelul unghiului medial al ochiului, în partea medială a orbitei. Șanțurile de pe ele permit scurgerea lacrimilor din orbită către cavitatea nazală. Oasele zigomatice sunt situate sub orbite, reprezintă structuri de suport ale feței și formează parțial pomeții obrajilor. Apofiza temporală a fiecăruia se unește cu apofiza zigomatică a osului temporal, formând arcul zigomatic. Maxilele sunt două oase sudate între ele pe linia mediană, sub deschiderea nazală, și poartă dinții de sus. „Maxilarul superior” este o denumire improprie pentru ele. Conțin sinusuri de mari dimensiuni, numite sinusurile maxilare, și formează porțiunea anterioară a palatului dur. Mandibula este osul în formă de potcoavă al maxilarului inferior (tot o denumire improprie) și poartă dinții de jos. Este atașată de cutia craniană printr-o articulație de tip balama. La fiecare capăt are câte un proces orientat cranial: o parte a lui, condilul mandibular, se articulează cu fosa mandibulară a osului temporal, iar cealaltă, apofiza coronoidă, este locul de atașare a mușchilor masticatori. În deschiderea nazală Prin deschiderea nazală se vede cum este împărțită cavitatea nazală: Vomerul, un os vertical așezat pe linia mediană, este component al septului nazal și împarte cavitatea nazală într-o cameră dreaptă și una stângă. Cornetele nazale inferioare sunt două lame osoase de pe pereții laterali ai cavității nazale, câte una în fiecare cameră. Sunt oase de sine stătătoare, descrise de manual printre oasele feței. Cornetul nazal mijlociu al osului etmoid se vede în fiecare cameră, deasupra cornetului inferior. Nu este un os separat, ci o parte a osului etmoid, unul dintre oasele cutiei craniene. Cornetele și vomerul sunt acoperite de mucoasa nazală. Pe lângă cornetele mijlocii și inferioare, cavitatea nazală are și cornete superioare, nemarcate aici. Toate sunt extensii osoase care subîmpart cavitatea nazală în căi aeriene (Figura 17.2). La nivelul lor, aerul este încălzit și viteza lui este încetinită, pentru ca particulele să precipite și să dea naștere senzațiilor olfactive.

Fig. 7.5 · Biologie Barron's · p. 146
Coloana vertebrală: regiunile și curburile eiFigura prezintă coloana vertebrală, parte a scheletului axial, format din oasele axului central al corpului (Figura 7.1). Aceeași coloană este desenată de două ori, în interiorul conturului corpului. Panoul (a) o arată din față și răspunde la întrebarea „câte vertebre și unde”, iar panoul (b) o arată din lateral și răspunde la întrebarea „cum este curbată”. (a) Vedere anterioară: regiunile coloanei În vederea dinspre fața corpului, vertebrele sunt numerotate în stânga coloanei, iar în dreapta câte o paranteză încadrează fiecare regiune și îi dă numele. Numerotarea o ia de la capăt în fiecare regiune. Coloana vertebrală, numită și șira spinării, pornește de la baza craniului și coboară prin gât și trunchi. Conține 26 de oase, denumite vertebre, pe care le poți parcurge de sus în jos: Vertebrele cervicale, 7 la număr, se află în regiunea gâtului. Vertebrele toracice, 12 la număr, se află în regiunea toracelui. Vertebrele lombare, 5 la număr, se află în regiunea lombară. Sacrul (osul sacru) este format prin fuziunea a 5 vertebre sacrale, de aceea apare ca o singură piesă, de formă triunghiulară. Coccisul, piesa mică de la capătul de jos al coloanei, este format prin fuziunea a 4 vertebre coccigiene. Dacă aduni, 7 + 12 + 5 dau 24 de vertebre separate, iar împreună cu sacrul și coccisul ajungi la cele 26 de oase. Vertebrele variază în dimensiune și formă: pe desen, cele lombare sunt vizibil mai mari decât cele cervicale. Fiecare vertebră are un corp, un cilindru osos care susține greutatea și se opune forțelor de compresie exercitate în timpul mișcărilor. Discurile intervertebrale Între corpurile vertebrale se află discurile intervertebrale, care pe desen apar ca benzi subțiri între vertebre. Eticheta lor, din mijlocul figurii, trimite spre ambele panouri, pentru că discurile se văd și din față, și din lateral. Până deasupra sacrului, vertebrele sunt separate între ele prin astfel de discuri. Discurile sunt formate din cartilaj fibros, care înconjoară un nucleu central mai moale, gelatinos. Ele absorb șocurile și egalizează presiunea dintre vertebrele vecine în timpul mișcărilor. Tot ele dau coloanei flexibilitate, permițând o mișcare limitată, cum este aplecarea înainte sau în lateral. Articulația dintre două vertebre, în care cartilajul are forma unui disc, este o amfiartroză, adică o articulație semimobilă (Figura 6.4). O presiune excesivă poate face discul să bombeze spre exterior. Afecțiunea se numește hernie de disc și este extrem de dureroasă, pentru că discul bombat comprimă măduva spinării sau un nerv spinal, ceea ce produce o durere intensă și senzație de amorțeală. (b) Vedere laterală stângă: curburile coloanei Săgeata dublă de deasupra desenului te orientează: anterior, adică spre fața corpului, este în stânga, iar posterior, spre spate, este în dreapta. Vertebrele sunt numerotate din nou, de-a lungul marginii anterioare a coloanei, iar parantezele din stânga delimitează curburile. Din față coloana pare dreaptă, dar din lateral se văd patru curburi, numite după regiunile coloanei: Curbura cervicală: coloana este curbată anterior, iar pe desen porțiunea din dreptul gâtului se arcuiește spre stânga. Curbura toracică: coloana este curbată posterior, iar porțiunea din dreptul toracelui se arcuiește spre dreapta. Curbura lombară: coloana este din nou curbată anterior, spre stânga. Curbura sacrală: în dreptul sacrului, coloana este curbată posterior, spre dreapta. Curburile alternează așadar: anterior, posterior, anterior, posterior. Ele întăresc coloana vertebrală și îi cresc flexibilitatea. În vederea laterală se văd și părțile vertebrelor: corpurile formează marginea anterioară a coloanei, iar spre posterior se proiectează arcurile vertebrale și apofizele. Arcul vertebral se extinde în spatele corpului, înconjurând și protejând măduva spinării. Detaliile unei vertebre tipice apar în Figura 7.6. Curburi fiziologice și curburi patologice Cele patru curburi din panoul (b) sunt normale, fiziologice. De ele trebuie deosebite curburile patologice: Scolioza este o curbură laterală anormală a coloanei, adică o abatere spre una dintre părți, departe de linia mediană. S-ar vedea dintr-o vedere anterioară ca cea din panoul (a), unde coloana normală nu se abate nici spre stânga, nici spre dreapta. Cifoza (cocoașa) este exagerarea curburii posterioare toracice, cea care în panoul (b) se arcuiește spre dreapta. Lordoza este exagerarea curburii lombare, cea care în panoul (b) se arcuiește spre stânga.
Fig. 7.6 · Biologie Barron's · p. 147
Detaliile unei vertebre tipiceFigura arată în detaliu o vertebră tipică, unul dintre oasele care alcătuiesc coloana vertebrală (Figura 7.5). Vertebrele variază în dimensiune și formă, dar fiecare prezintă un corp și un arc vertebral, din care pornesc mai multe apofize. Desenul arată vertebra din două unghiuri: Vederea de sus a unei vertebre, desenul din stânga, ca și cum ai privi-o de deasupra. Corpul, care formează partea din față a vertebrei, este jos în desen, iar apofiza spinoasă, îndreptată spre spate, este sus. Între ele se deschide gaura vertebrală. Vederea laterală dreaptă a trei vertebre suprapuse, desenul din dreapta. Corpurile, despărțite de discuri, sunt în dreapta, iar arcurile cu apofizele lor, în stânga. Aici se vede ce se află între două vertebre vecine. Corpul și arcul vertebral Corpul este cilindrul osos al vertebrei, situat între discuri, care susține greutatea. Corpurile vertebrale se opun forțelor de compresie exercitate în timpul mișcărilor. În spatele corpului se întinde arcul vertebral, care înconjoară și protejează măduva spinării. Părțile lui laterale sunt formate de cei doi pediculi, cilindri osoși scurți care se desprind din corpul vertebral și se orientează spre posterior. În spate, arcul se închide prin cele două lamine, iar din mijlocul acestei porțiuni pornește apofiza spinoasă. Apofizele Apofiza spinoasă se află în apropierea liniei mijlocii. În vederea laterală, fiecare vertebră are câte una, înclinată în jos. Apofizele transverse stau de fiecare parte a liniei mijlocii. În vederea de sus sunt cele două „brațe” laterale ale vertebrei. Apofizele articulare superioare se ridică spre vertebra de deasupra. În vederea de sus sunt cele două mici proeminențe ale arcului, de o parte și de alta a apofizei spinoase. Apofizele articulare inferioare coboară spre vertebra de dedesubt și se văd doar în vederea laterală. Apofizele spinoase și transverse reprezintă locul de atașare a mai multor mușchi ai spatelui, dar și al ligamentelor care susțin coloana vertebrală. Aceeași funcție de susținere o au și apofizele articulare. În vederea laterală se vede cum apofiza articulară inferioară a unei vertebre coboară până lângă apofiza articulară superioară a vertebrei de dedesubt. La nivelul acestor apofize (procese) articulare apar diartroze, articulații care permit mișcări libere. Cele două orificii, ușor de confundat Gaura vertebrală (foramenul vertebral) se află în interiorul unei singure vertebre, delimitată în față de corp, iar lateral și în spate de arcul vertebral. Găurile vertebrelor suprapuse formează canalul vertebral, prin care trece măduva spinării. Aceasta este un cordon de țesut nervos, lung de aproximativ 45 cm la adult, care continuă encefalul și se termină în apropierea discului dintre prima și a doua vertebră lombară (Figura 11.3). Foramenul intervertebral apare între două vertebre alăturate. Pediculii prezintă incizuri la nivelul marginilor lor care, împreună cu incizurile pediculilor vertebrelor adiacente, formează aceste orificii. Nervii cu originea la nivelul măduvei spinării trec prin ele și se distribuie către țesuturi. În vederea laterală, foramenul se vede în spatele corpurilor, între vertebra de sus și cea din mijloc. Discul intervertebral Până deasupra sacrului, vertebrele sunt separate între ele prin discuri intervertebrale, așezate între corpuri. Discurile sunt formate din cartilaj fibros, cu un nucleu central mai moale, absorb șocurile și permit flexibilitatea coloanei vertebrale. Legătura dintre două vertebre prin disc este o amfiartroză, o articulație cu mobilitate limitată, care permite mișcări precum aplecarea înainte sau în lateral (Figura 6.4). Așadar, vederea laterală arată două feluri de legături între vertebrele vecine: amfiartroza dintre corpuri și diartrozele dintre apofizele articulare. Hernia de disc O presiune excesivă poate determina bombarea spre exterior a discului, afecțiune numită hernie de disc. Vederea laterală te ajută să înțelegi de ce este extrem de dureroasă: discul stă chiar în fața canalului vertebral și lângă foramenele intervertebrale, așa că, bombând, comprimă măduva spinării sau un nerv spinal. Rezultă o durere intensă și senzație de amorțeală.
Fig. 7.7 · Biologie Barron's · p. 148
Cușca toracică, vedere anterioarăFigura arată cușca toracică privită din față, cu sternul pe linia mediană și coastele dispuse simetric de o parte și de alta. Urmărește desenul de sus în jos: la baza gâtului apar primele două vertebre toracice, sub ele vine sternul, cu manubriul, unghiul sternal, corpul și apofiza xifoidă, iar de o parte și de alta se desfășoară coastele, fiecare prelungită spre stern prin cartilajul ei costal. Cartilajele, inclusiv discurile dintre vertebre, sunt desenate în albastru deschis, ca să se deosebească de os. Sub apofiza xifoidă cușca se deschide și se văd ultimele vertebre toracice și primele lombare, iar din coloană pornesc coastele 11 și 12, scurte și terminate liber. În partea de sus, de fiecare parte, sunt desenate și clavicula și scapula, oasele centurii pectorale, care conectează brațele de cușca toracică fără să facă parte din ea. Cușca toracică este formată de stern și coaste, care împreună alcătuiesc o cutie protectoare. Atât sternul, cât și coastele sunt oase plate: au două plăci subțiri de os compact, cu os spongios între ele, iar oasele de acest tip protejează organele toracice, printre care plămânii. În total, cușca are 25 de oase, un stern și 24 de coaste, și este, cum spune și legenda, „parte a scheletului axial”, alături de craniu, coloana vertebrală și osul hioid (Figura 7.1). Sternul și cele trei părți ale lui Sternul este compus din trei părți, pe care le recunoști pe desen de sus în jos: Manubriul este porțiunea superioară, cu formă de scut. Pe marginea lui de sus se vede la mijloc incizura jugulară (suprasternală), iar lateral de ea incizura claviculară, în care se prinde clavicula. Clavicula, desenată dar nemarcată în figură, este osul în formă de tijă care atașează scapula de partea superioară a sternului. Imediat sub clavicule, de manubriu se prinde prima pereche de coaste. Corpul, de forma unei lame de pumnal, este așezat central și este atașat de coaste. Este cea mai lungă dintre cele trei părți. Locul în care manubriul se unește cu corpul se vede ca o linie transversală și se numește unghi sternal. Apofiza xifoidă este partea inferioară, vârful mic și ascuțit în care se termină sternul. Coastele: adevărate, false și flotante Adultul prezintă 12 perechi de coaste. În desen le poți număra de sus în jos, de la prima pereche, ascunsă în parte de claviculă, până la ultimele două, scurte, rămase lângă coloană. Manualul le împarte după legătura lor cu sternul: Coastele adevărate sunt primele 7 perechi. Se numesc așa pentru că se articulează direct cu sternul, prin intermediul cartilajelor costale hialine. Coastele false sunt următoarele 5 perechi, de la coasta 8 la coasta 12, și nu se articulează direct cu sternul. Coastele 8, 9 și 10 prezintă cartilaje costale, dar acestea fuzionează cu cartilajul coastei 7. Coastele flotante sunt coastele 11 și 12, adică ultimele două perechi de coaste false. Nu prezintă cartilaj și nu se atașează sternului. În desen sunt mai scurte și se termină liber, departe de stern. Reține, așadar, că orice coastă flotantă este și coastă falsă, dar nu și invers. Tot de aici vine și legenda figurii: zece perechi de coaste sunt atașate de cartilajele costale (cele 7 perechi adevărate și coastele 8, 9 și 10), iar două perechi sunt coaste flotante. Manualul mai numește fațete capetele plate ale coastelor, pe care figura nu le marchează. Cartilajele costale și spațiile intercostale Cartilajele costale sunt benzile de cartilaj hialin prin care coastele se leagă de stern, în partea din față a cuștii. Acest tip de articulație asigură flexibilitate coastelor și amortizează șocurile exercitate asupra cuștii toracice. Spațiul intercostal este spațiul dintre două coaste alăturate. Aici se află mușchii respiratori numiți mușchi intercostali externi. În timpul inspirației, contracțiile lor ridică coastele în sus și înspre exterior, iar diafragma se contractă și coboară, astfel că volumul toracelui crește mult (Figura 17.6). Vertebrele care se văd Coloana vertebrală se află în spatele cuștii, așa că, privită din față, porțiunea ei toracică este aproape în întregime acoperită de stern. Deasupra manubriului, la baza gâtului, se văd T1 și T2, iar sub apofiza xifoidă, în deschiderea dintre coastele de jos, apar T11, T12, L1 și L2. Litera din fața numărului arată regiunea: T vine de la vertebrele toracice, 12 la număr, din regiunea toracelui, iar L de la cele lombare, 5 la număr, care urmează imediat sub ele (Figura 7.5). În desen, coastele 11 și 12 pornesc din coloană chiar în dreptul vertebrelor T11 și T12, în timp ce din L1 și L2 nu mai pornește nicio coastă.
Fig. 7.8 · Biologie Barron's · p. 149
Scheletul membrelorFigura arată un schelet uman întreg, văzut din față, pe care sunt marcate de data aceasta oasele scheletului membrelor. Este perechea figurii despre scheletul axial (Figura 7.1) și folosește același desen: craniul, coloana vertebrală și cușca toracică se văd și aici, dar nu sunt marcate. Oasele marcate formează patru grupe, deosebite prin culoarea markerilor: centura pectorală, membrele superioare, centura pelviană și membrele inferioare. În manual, lângă numele fiecărui os este tipărit, între paranteze drepte, numărul total de oase al acelei componente, socotit pentru ambele părți ale corpului. Mai jos, aceste cifre apar după numele fiecărui os și al fiecărei grupe. Cele două mari categorii ale scheletului Corpul uman conține 206 oase, organizate într-o structură numită schelet, sau sistem scheletal (osos). Din punct de vedere anatomic, scheletul este împărțit în două mari categorii: Scheletul axial [80] cuprinde oasele axului central al corpului: oasele cuștii toracice, ale coloanei vertebrale, ale craniului și osul hioid. Scheletul membrelor [126] cuprinde oasele membrelor superioare și inferioare, precum și oasele care atașează membrele la corp. Aceste oase de legătură se numesc centuri: centura pectorală conectează brațele de cușca toracică, iar centura pelviană conectează oasele membrelor inferioare la sacru. Centura pectorală [4] Centura pectorală este compusă din scapulă și claviculă, câte una de fiecare parte a corpului: Clavicula [2] este un os în formă de tijă, care atașează scapula de partea superioară a sternului. În desen se vede în partea de sus a toracelui, întinsă între stern și umăr. Scapula [2] este un os mare, triunghiular, atașat de scheletul axial prin intermediul mușchilor și al ligamentelor. Capătul ei lateral, îngust, formează o cavitate numită fosa glenoidă, prin care scapula se articulează cu osul brațului. Mușchii care se inseră pe scapulă și pe claviculă conectează oasele membrului superior de scheletul axial. Membrele superioare [60] De la umăr spre degete, oasele fiecărui membru superior se înșiruie astfel (cifrele sunt pentru ambele membre): Humerusul [2], osul brațului. Sus se articulează cu scapula la nivelul fosei glenoide, iar jos, la nivelul cotului, cu cele două oase ale antebrațului. Radiusul [2] și ulna [2], oasele antebrațului. Ulna este osul situat medial (de partea degetului mic), iar radiusul este osul lateral (de partea degetului mare). Oasele carpiene [16], oasele mici ale încheieturii mâinii, cu care radiusul și ulna se articulează distal. Sunt 8 la fiecare mână, așezate în două rânduri a câte patru. Oasele metacarpiene [10], câte 5 la nivelul fiecărei palme, numerotate de la 1 la 5. Se articulează cu oasele carpiene și cu falangele. Falangele [28], oasele degetelor. Degetul mare are două falange, iar fiecare dintre celelalte degete are 3, deci 14 la fiecare mână. Împreună: $2 + 2 + 2 + 16 + 10 + 28 = 60$ de oase. Centura pelviană [2] Centura pelviană este alcătuită din cele două oase coxale, numite și oasele pelvisului, câte unul de fiecare parte. Ele formează bazinul, care conține organele din abdomenul inferior, și se articulează cu osul sacru prin intermediul unui țesut conjunctiv fibros. Fiecare os coxal este format din fuziunea a trei oase: ilion, ischion și pubis. Structura centurii pelviene este prezentată în detaliu în Figura 7.10. Membrele inferioare [60] Și aici, oasele se înșiruie de sus în jos, de la coapsă până la degete: Femurul [2], osul coapsei, cel mai mare și mai rezistent os al corpului. Se articulează la nivelul centurii pelviene prin acetabul. Patela (rotula) [2], la nivelul căreia femurul întâlnește oasele gambei. Tibia [2], sau „fluierul piciorului”, mai mare și situată în partea medială a gambei, și fibula [2], osul mai subțire, aflat în partea laterală. Oasele tarsiene [14], câte 7 la fiecare picior, care formează glezna. Oasele metatarsiene [10], câte 5 la fiecare picior, numerotate de la 1 la 5. Se articulează cu tarsienele și se unesc cu falangele. Falangele [28], oasele degetelor de la picioare. Au aceeași așezare ca la mână: două la degetul mare și câte 3 la fiecare dintre celelalte degete. Împreună: $2 + 2 + 2 + 2 + 14 + 10 + 28 = 60$ de oase. Cum se adună cele 126 de oase Cele patru grupe dau împreună totalul din legenda figurii: $4 + 60 + 2 + 60 = 126$ de oase. Dintre ele, 120 aparțin membrelor propriu-zise, iar 6 sunt oasele centurilor. Adăugând cele 80 de oase ale scheletului axial, se obține $126 + 80 = 206$, adică toate oasele corpului. Fiecare membru, împreună cu centura lui, este prezentat în detaliu în Figura 7.9 și în Figura 7.11.
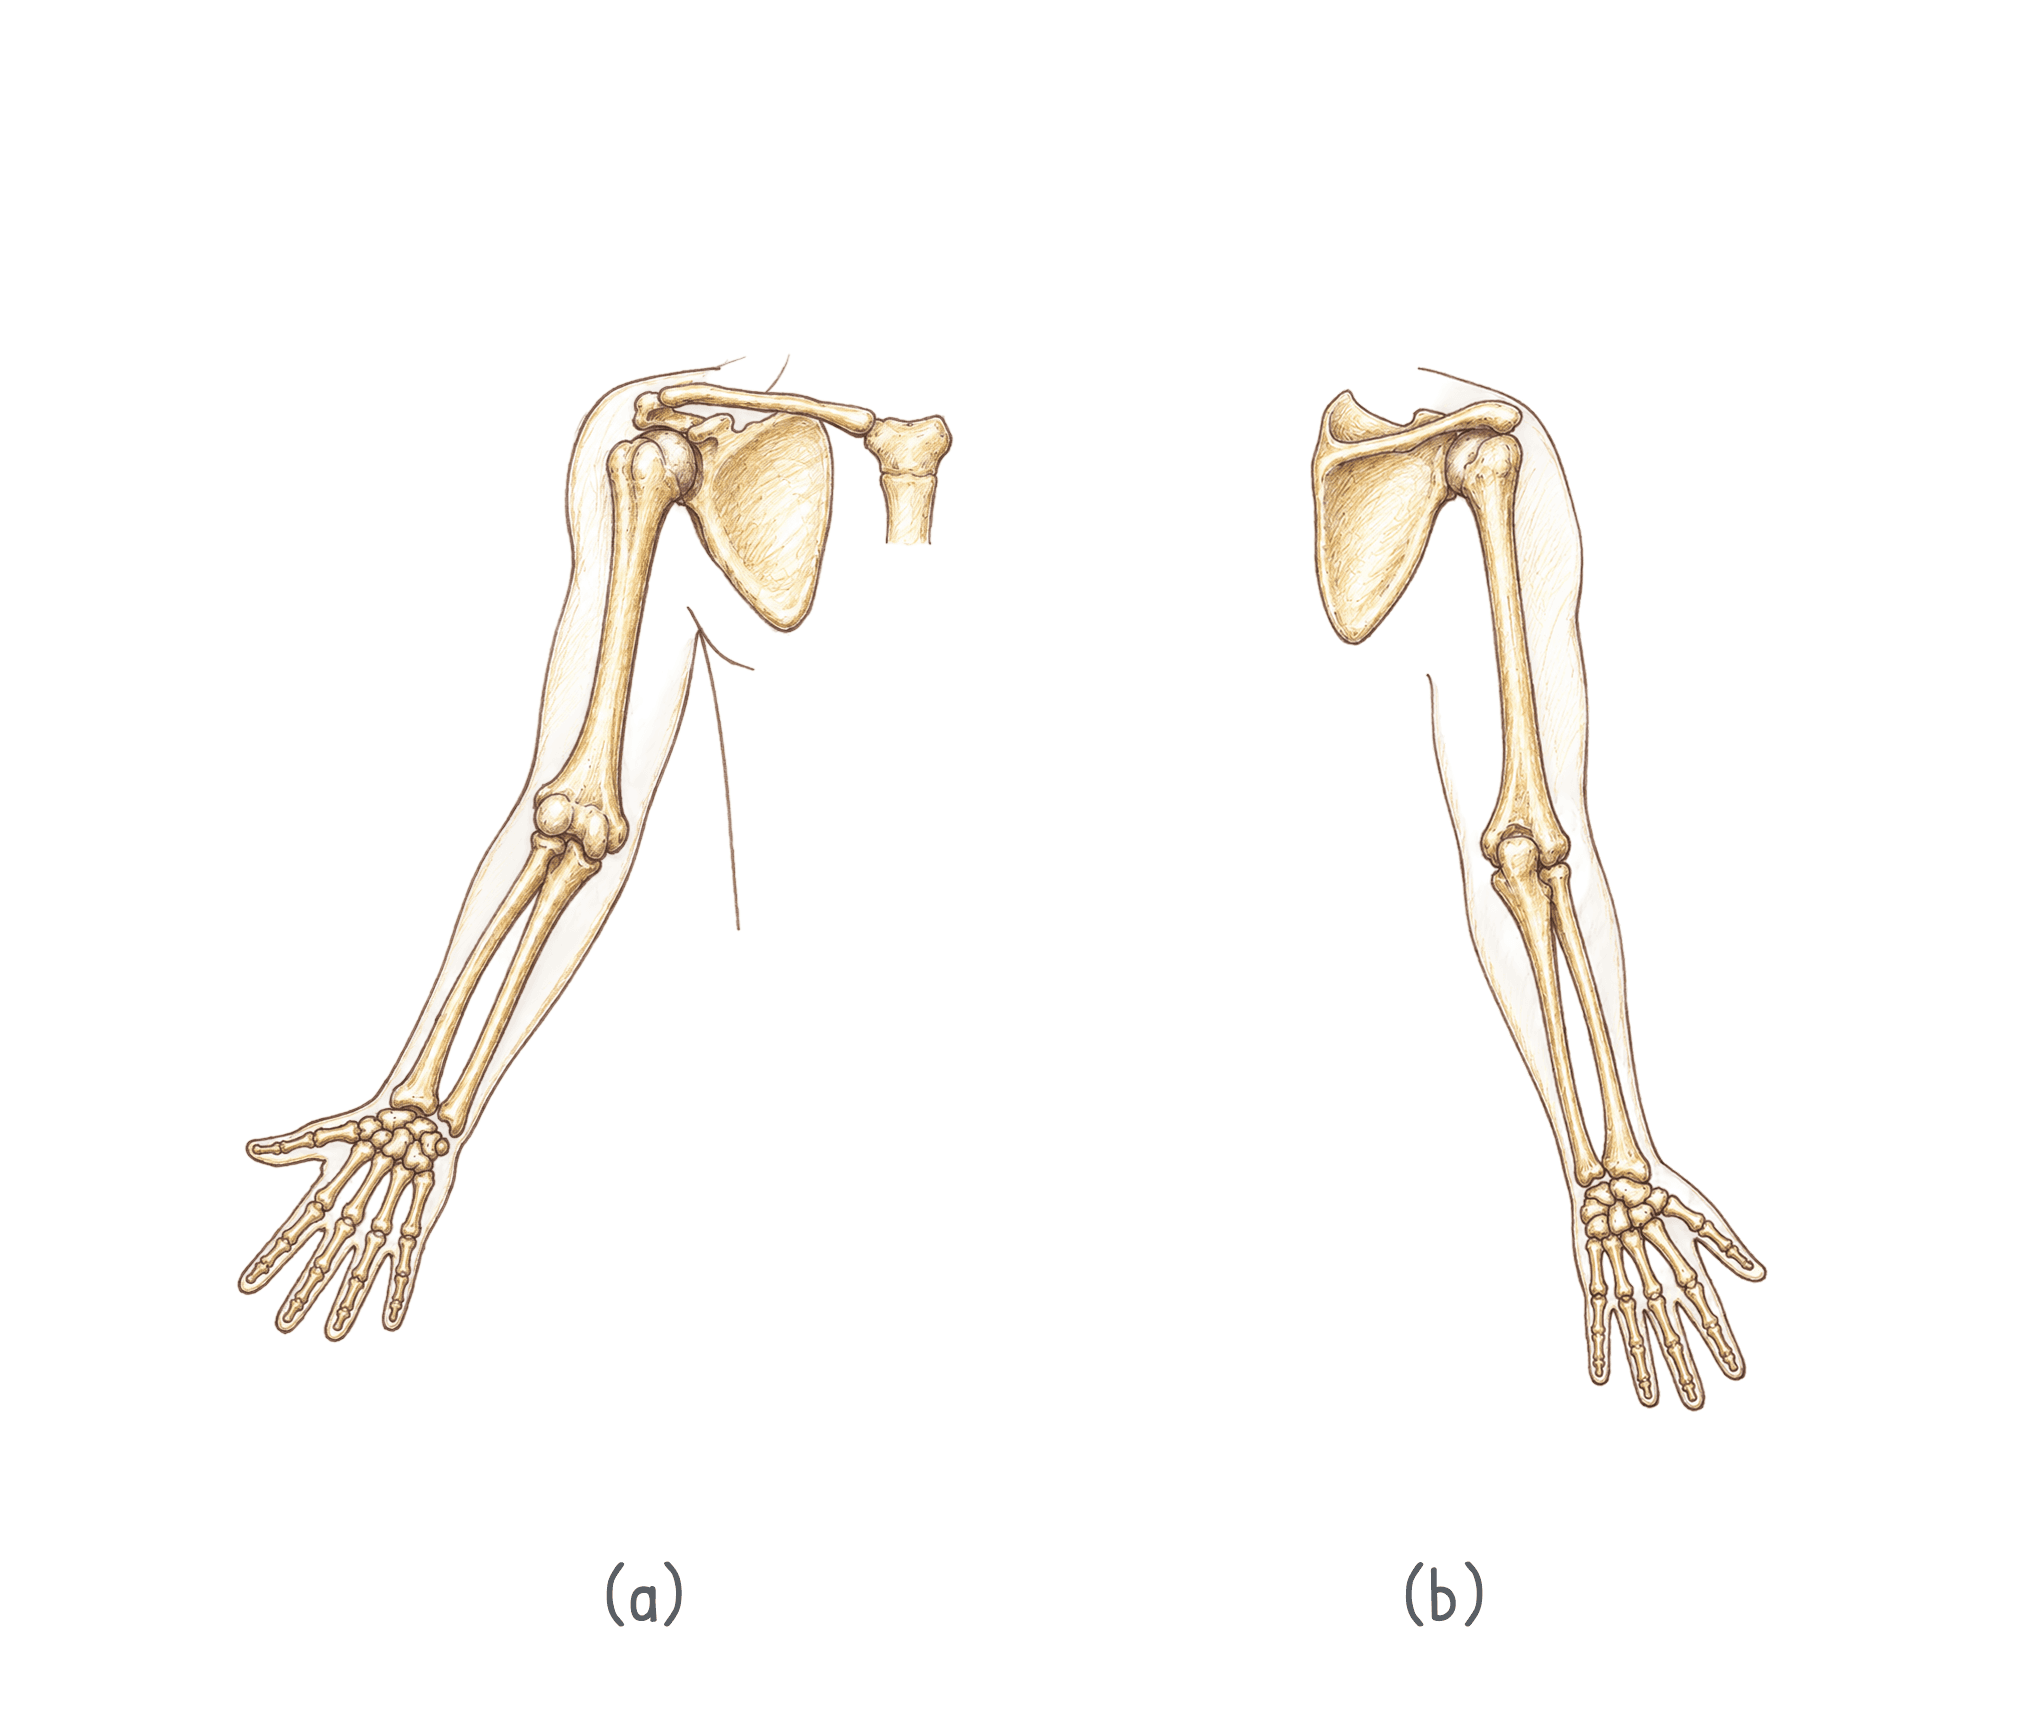
Fig. 7.9 · Biologie Barron's · p. 150
Membrul superior drept și centura pectoralăFigura prezintă oasele membrului superior drept și ale centurii pectorale, prin care membrul este atașat de corp. Ele fac parte din scheletul membrelor, compus din oasele membrelor superioare și inferioare, precum și din oasele care atașează membrele la corp. Același membru este desenat de două ori, ca să vezi oasele atât din față, cât și din spate. În ambele vederi, el este în poziția anatomică: atârnă pe lângă corp, cu policele (degetul mare) orientat spre exterior. Cum te orientezi (a) Vederea anterioară arată membrul din față, cu structurile importante pentru articulații și inserții musculare. Linia mediană a corpului este în dreapta desenului, unde se vede, sus, o mică porțiune din stern. Partea medială este deci spre dreapta, iar cea laterală, cu policele, spre stânga. (b) Vederea posterioară arată același membru din spate, așa că orientarea se inversează: partea medială este spre stânga, iar cea laterală, cu policele, spre dreapta. Aici scapula apare la stânga capului humerusului, iar epicondilul medial în stânga cotului. Humerusul, ulna, radiusul și tuberculul mare sunt marcate în ambele vederi. Centura pectorală Centura pectorală este compusă din claviculă și scapulă. Mușchii care se inseră pe aceste oase conectează oasele membrului superior de scheletul axial. Clavicula este un os în formă de tijă, care atașează scapula de partea superioară a sternului. Capătul ei dinspre umăr, extremitatea acromială, se unește cu acromionul scapulei în articulația acromio-claviculară. Capătul dinspre stern, extremitatea sternală, se unește cu sternul în articulația sterno-claviculară. Scapula este un os mare, triunghiular, atașat de scheletul axial prin intermediul mușchilor și al ligamentelor. Pe suprafața ei posterioară, vizibilă în vederea (b), se află o porțiune osoasă numită spina scapulei (în figură, spina scapulară). Spina se continuă cu acromionul, care formează o proeminență la nivelul umărului, și cu apofiza coracoidă, vizibilă în vederea (a). Ambele procese reprezintă arii de inserție musculară. Fosa glenoidă este cavitatea formată de capătul lateral, îngust, al scapulei, prin intermediul căreia scapula se articulează cu osul brațului. În vederea (b), ea este marcată chiar în locul în care capul humerusului întâlnește scapula. Humerusul, de sus în jos Osul brațului, care se articulează cu scapula la nivelul cavității glenoide, se numește humerus. La extremitatea superioară are un cap neted și rotund, iar sub el două mici protuberanțe, tuberculul mare și tuberculul mic, zone de inserții musculare. Depresiunea dintre ele, nemarcată în figură, se numește șanțul intertubercular. Aproape de mijlocul osului se află tuberozitatea deltoidiană (în text, tuberozitatea deltoidă), o rugozitate în forma literei „V”, care reprezintă zona de inserție a mușchiului deltoid. La extremitatea inferioară se găsesc doi condili, trohleea și capitulum, la nivelul cărora se articulează oasele antebrațului, ulna și radiusul. În vederea (a), capitulum este pe partea laterală, deasupra capului radial, iar trohleea medial față de el, deasupra ulnei. Deasupra condililor se află epicondilul medial și epicondilul lateral, care servesc pentru inserții musculare. Tot aici sunt două depresiuni. În fosa coronoidă, aflată între epicondili, pătrunde apofiza coronoidă a ulnei, iar fosa olecraniană este destinată olecranului ulnei. Figura o arată pe prima pe fața anterioară a humerusului, iar pe a doua pe fața posterioară. Antebrațul Humerusul se articulează la nivelul cotului cu cele două oase ale antebrațului: Ulna este osul situat medial, de partea degetului mic. Se articulează cu humerusul la nivelul apofizei coronoide, de dimensiuni mai mici, și al olecranului, care este mai mare, formând cotul. Radiusul este osul lateral, de partea degetului mare. Se articulează cu humerusul la nivelul capului radial. Textul mai amintește trei detalii nemarcate în figură. Tuberozitatea radială proximală este o zonă de inserții musculare. Procesul stiloid, de la capătul distal al radiusului, primește ligamentele încheieturii mâinii. Membrana interosoasă conectează marginile interosoase ale radiusului și ulnei. Mâna Radiusul și ulna se articulează distal cu oasele încheieturii mâinii, după care urmează oasele palmei și ale degetelor: Oasele carpiene sunt 8 oase mici ale încheieturii mâinii, așezate în două rânduri a câte patru. Se numesc pisiform, semilunar, piramidal, osul cu cârlig (hamatum), capitat, scafoid, trapez și trapezoid. Dimensiunile lor mici și articulațiile dintre ele permit o mare flexibilitate a încheieturii mâinii. Oasele metacarpiene sunt cele 5 oase ale palmei, numerotate de la 1 la 5. Se articulează cu oasele carpiene și, la rândul lor, cu falangele. Falangele sunt oasele degetelor. Degetul mare are două falange, iar fiecare dintre celelalte degete are 3 falange. Câte oase are membrul superior Figura 7.8 numără oasele întregului schelet al membrelor: cele două membre superioare au împreună 60 de oase, iar centura pectorală 4 (două clavicule și două scapule). Unui singur membru superior îi revin deci un humerus, o ulnă, un radius, 8 oase carpiene, 5 metacarpiene și 14 falange, adică 30 de oase.
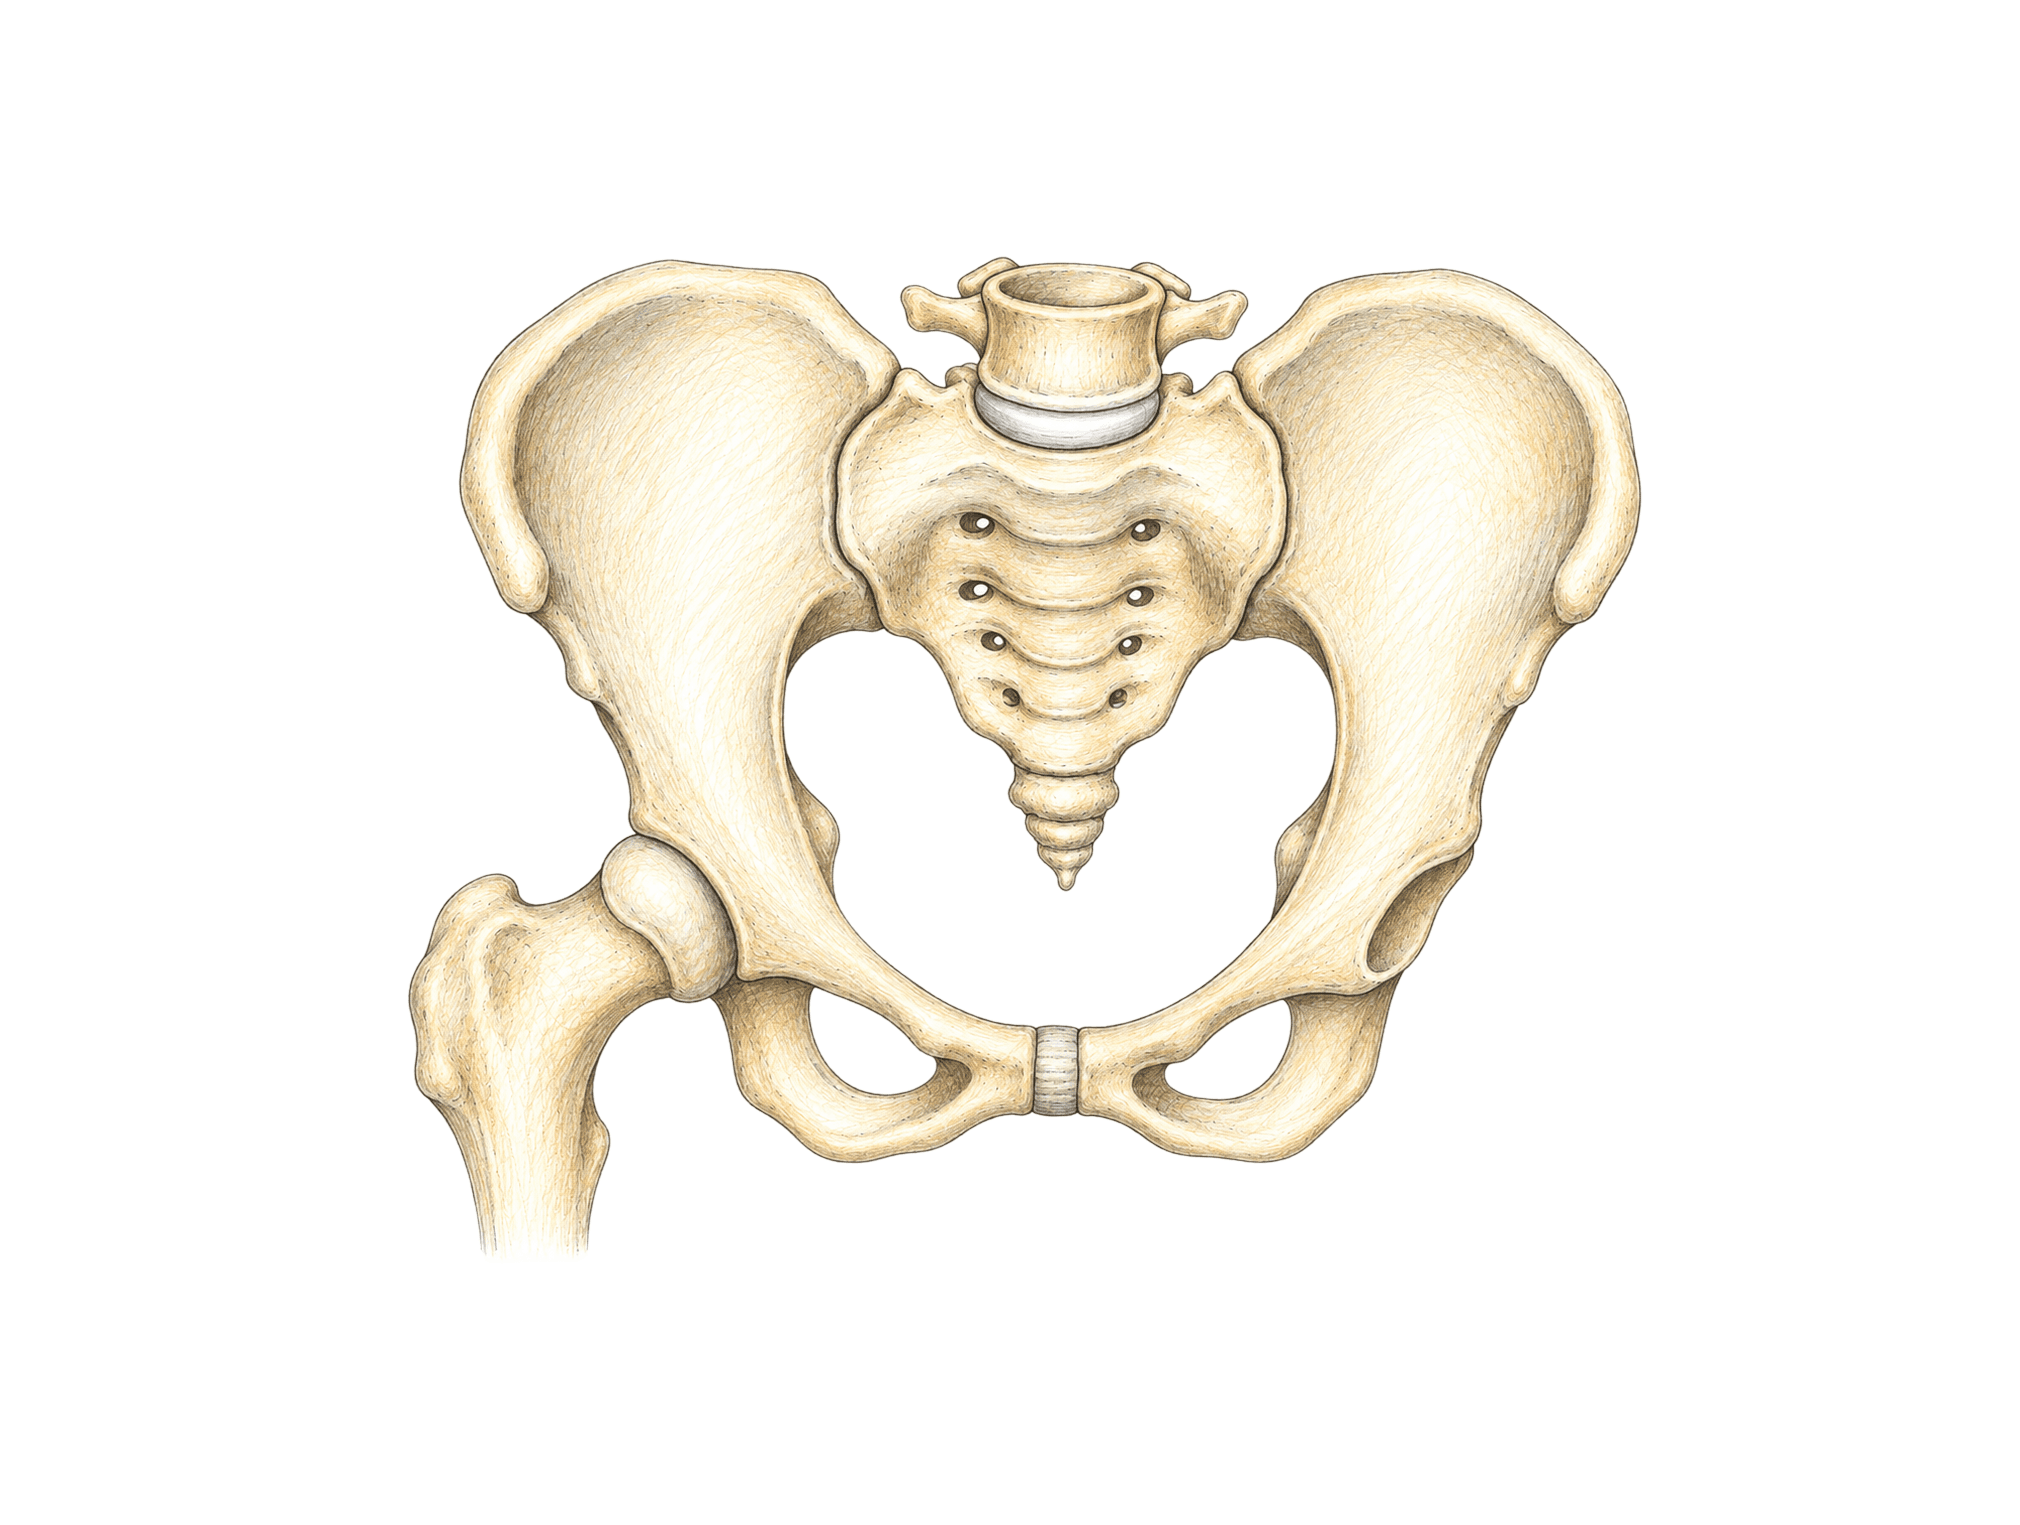
Fig. 7.10 · Biologie Barron's · p. 151
Structura centurii pelvieneFigura arată centura pelviană văzută din față, împreună cu partea de jos a coloanei vertebrale. Centura pelviană este formată din cele două oase coxale, numite și oasele pelvisului. Ea face parte din scheletul membrelor, fiind una dintre cele două centuri care conectează membrele la scheletul axial: leagă oasele membrelor inferioare de sacru (Figura 7.8). Împreună, oasele coxale formează bazinul, în care se află organele din abdomenul inferior. Pornește citirea de pe linia mediană, unde se succed, de sus în jos, ultima vertebră lombară, sacrul și coccisul, apoi urmărește cele două oase coxale, de o parte și de alta. Pentru că bazinul este văzut din față, osul coxal drept apare în stânga desenului, cu capul femurului așezat în acetabulul lui, iar osul coxal stâng apare în dreapta, unde nimic nu îl acoperă. Pe cel din dreapta se urmăresc cel mai bine reperele osului coxal: creasta și spinele iliace, acetabulul, gaura obturată și tuberozitatea ischiadică. Cele trei oase ale osului coxal Fiecare os coxal s-a format prin fuziunea a trei oase: Ilionul este partea superioară, liberă și lărgită a pelvisului, aripa lată din partea de sus a desenului. Marginea lui se numește creasta iliacă. Pe marginea din față a ilionului se văd două proeminențe, spina iliacă antero-superioară, la capătul din față al crestei, și, sub ea, spina iliacă antero-inferioară. Pubisul este partea osului coxal din partea de jos a bazinului, dinspre linia mediană, unde cele două oase pubiene se unesc în simfiza pubiană. Ischionul este partea inferioară a osului coxal, cea pe care ne sprijinim când ședem. Fiecare ischion are o proeminență largă, rugoasă, tuberozitatea ischiadică, de care se atașează ligamentele și mușchii membrului inferior. Deasupra ei, manualul mai descrie o protuberanță ascuțită, spina ischiadică, pe care desenul nu o etichetează. Nu o confunda cu spinele iliace, care se află pe ilion. Acetabulul și gaura obturată Cele trei oase se întâlnesc într-o zonă cavitară în formă de cupă, acetabulul, cu care se articulează capul rotund al femurului, osul coapsei. În stânga jos se vede chiar porțiunea superioară a femurului, cu capul intrat în acetabul, iar pe partea opusă acetabulul este liber și i se vede forma de cupă (Figura 7.11). Sub acetabul, între corpurile pubisului și ischionului, se deschide gaura obturată, un orificiu larg prin care trec unii nervi și unele vase de sânge către membrul inferior. Este cel mai larg foramen al scheletului. Sacrul, coccisul și ultima vertebră lombară Piesele de pe linia mediană nu aparțin centurii pelviene. Ele fac parte din coloana vertebrală, deci din scheletul axial (Figura 7.5). De sus în jos: Corpul celei de-a 5-a vertebre lombare este cilindrul osos al ultimei vertebre lombare. Ca orice corp vertebral, susține greutatea. Sacrul, format prin fuziunea a 5 vertebre sacrale, este osul triunghiular prins între cele două oase coxale. Marginea lui de sus, pe linia mediană, chiar sub vertebra lombară, este marcată ca promontoriu sacral. Coccisul, format din fuziunea a 4 vertebre coccigiene, este piesa mică și ascuțită de sub sacru, cu care se termină coloana. Articulațiile bazinului Articulația sacroiliacă, câte una de fiecare parte a sacrului, este locul în care ilionul se articulează cu sacrul, în regiunea posterioară a bazinului. Aici oasele coxale se leagă de sacru prin intermediul unui țesut conjunctiv fibros. Manualul o dă și ca exemplu posibil de amfiartroză, adică de articulație cu mobilitate limitată. Simfiza pubiană este articulația de pe linia mediană în care fuzionează cele două oase pubiene. Este o amfiartroză, cu o mobilitate foarte limitată. Pelvisul mare și pelvisul mic Trei etichete nu numesc oase, ci regiuni ale bazinului: Pelvisul mare sau fals este partea largă de sus, cuprinsă între cele două ilioane. Marginea pelvisului mic sau adevărat este conturul în formă de inel care pornește de la sacru, trece pe marginile interioare ale oaselor coxale și se închide în față, la simfiza pubiană. Ea desparte pelvisul mare de pelvisul mic, cavitatea pelviană numită și micul bazin. Apertura pelviană este deschiderea înconjurată de această margine. Pe desen, prin ea se văd partea de jos a sacrului și coccisul. Pelvisul feminin și cel masculin Imediat după figură, manualul compară pelvisul feminin cu cel masculin (Tabelul 7.2). La femeie, simfiza pubiană este flexibilă și permite creșterea diametrelor pelvisului, ceea ce ușurează pasajul fetusului prin canalul genital în timpul nașterii. Tot la femeie: Oasele pelvisului sunt mai ușoare și mai subțiri, iar gaura obturată și acetabulul sunt mai mici și mai îndepărtate între ele decât la bărbați. Cavitatea pelviană este mai largă, mai scurtă și mai încăpătoare, iar distanțele dintre spinele ischiadice și tuberozitățile ischiadice sunt mai mari. Sacrul este mai larg, iar curbura sacrală este mai arcuită posterior. Coccisul este mult mai flexibil.

Fig. 7.11 · Biologie Barron's · p. 153
Membrul inferior drept și centura pelvianăFigura arată membrul inferior drept, împreună cu bazinul de care se prinde, desenat de două ori: (a) în vedere anterioară, cu structurile importante pentru articulații și inserții musculare, și (b) în vedere posterioară. Osul coxal, sacrul, femurul, tibia și fibula apar în ambele panouri, pentru că sunt aceleași oase văzute din două direcții, așa că sunt marcate în fiecare dintre ele. Celelalte structuri sunt marcate într-un singur panou: patela, condilii femurului, tuberozitatea tibiei, maleola laterală și oasele piciorului în (a), iar condilii tibiei, capul fibulei și maleola medială în (b). Pentru orientare, parcurge figura de sus în jos, de la capătul proximal al membrului, cel dinspre trunchi, spre capătul distal, la degete. Medial înseamnă aproape de linia mediană a corpului, iar lateral, departe de ea. În (a) privești membrul din față, așa că partea medială, cea dinspre sacru, este în dreapta. În (b) îl privești din spate, iar partea medială ajunge în stânga. Centura pelviană și sacrul Centura pelviană este alcătuită din cele două oase coxale, care formează bazinul și conectează oasele membrelor inferioare la sacru. Figura arată osul coxal drept. Fiecare os coxal provine din fuziunea a trei oase, ilion, ischion și pubis, care se întâlnesc formând o zonă cavitară în formă de cupă, acetabulul. Oasele coxale se articulează cu sacrul prin intermediul unui țesut conjunctiv fibros: în regiunea posterioară, ilionul formează cu sacrul articulația sacroiliacă (Figura 7.10). Sacrul, desenat pe partea medială a osului coxal, nu face parte din centură. Este format prin fuziunea a 5 vertebre sacrale și aparține coloanei vertebrale, deci scheletului axial. Legătura membrului inferior cu scheletul axial urmează astfel drumul femur → os coxal → sacru. Femurul și patela Femurul, osul coapsei, este cel mai mare și mai rezistent os al corpului. Porțiunea lui superioară are un cap femural rotund, de dimensiuni mari, care se articulează cu acetabulul, un gât și două proeminențe, trohanterul mare și trohanterul mic, de care se atașează mușchii membrelor inferioare și ai feselor. Figura nu le marchează, dar le găsești la capătul de sus al femurului, lângă osul coxal. La capătul distal, femurul are două protuberanțe rotunjite, condilul medial și condilul lateral, care se articulează cu condilii tibiali. În vederea anterioară, condilul medial este în dreapta genunchiului, iar cel lateral în stânga. În fața lor se vede patela (rotula), osul mic și rotund la nivelul căruia femurul întâlnește oasele gambei. Oasele gambei Tibia, sau „fluierul piciorului”, este osul mai mare și se situează în partea medială a gambei. Capătul ei de sus prezintă un condil medial și unul lateral, care se articulează cu condilii femurali. În vederea posterioară, condilul medial este în stânga, iar cel lateral în dreapta. Pe marginea anterioară a tibiei, sub genunchi, se găsește tuberozitatea tibiei (în figură, tuberozitate tibială), locul de inserție a ligamentului patelar. La nivelul gleznei, tibia are o proeminență numită maleola medială, care prezintă multiple inserții ligamentare. Manualul pomenește aici și șanțul maleolar, un șanț pentru pasajul vaselor, care nu este marcat în figură. Fibula este osul mai subțire, aflat în partea laterală a gambei. Capătul ei de sus, capul fibulei, este marcat în vederea posterioară, chiar sub condilul lateral al tibiei. La capătul distal se află maleola laterală, de care, de asemenea, se atașează ligamente. Glezna are deci câte o maleolă de fiecare parte: cea medială aparține tibiei, iar cea laterală fibulei. Oasele piciorului Glezna este formată din 7 oase tarsiene: talus, calcaneu, navicular, cuboid, cuneiform medial, cuneiform intermediar și cuneiform lateral. Tarsienele se articulează cu metatarsienele (de la 1 la 5), iar acestea se unesc, la rândul lor, cu oasele degetelor, numite falange. Degetul mare are două falange, iar fiecare dintre celelalte degete are 3, la fel ca degetele mâinii din Figura 7.9. Câte oase are membrul inferior Figura 7.8 numără oasele ambelor membre inferioare: 60 în total, dintre care 14 oase tarsiene, 10 metatarsiene și 28 de falange, la care se adaugă cele 2 oase coxale ale centurii pelviene. Unui singur membru, ca cel din figură, îi revin deci 30 de oase, fără osul coxal.
- 8Țesutul muscularPaginile 167 - 179
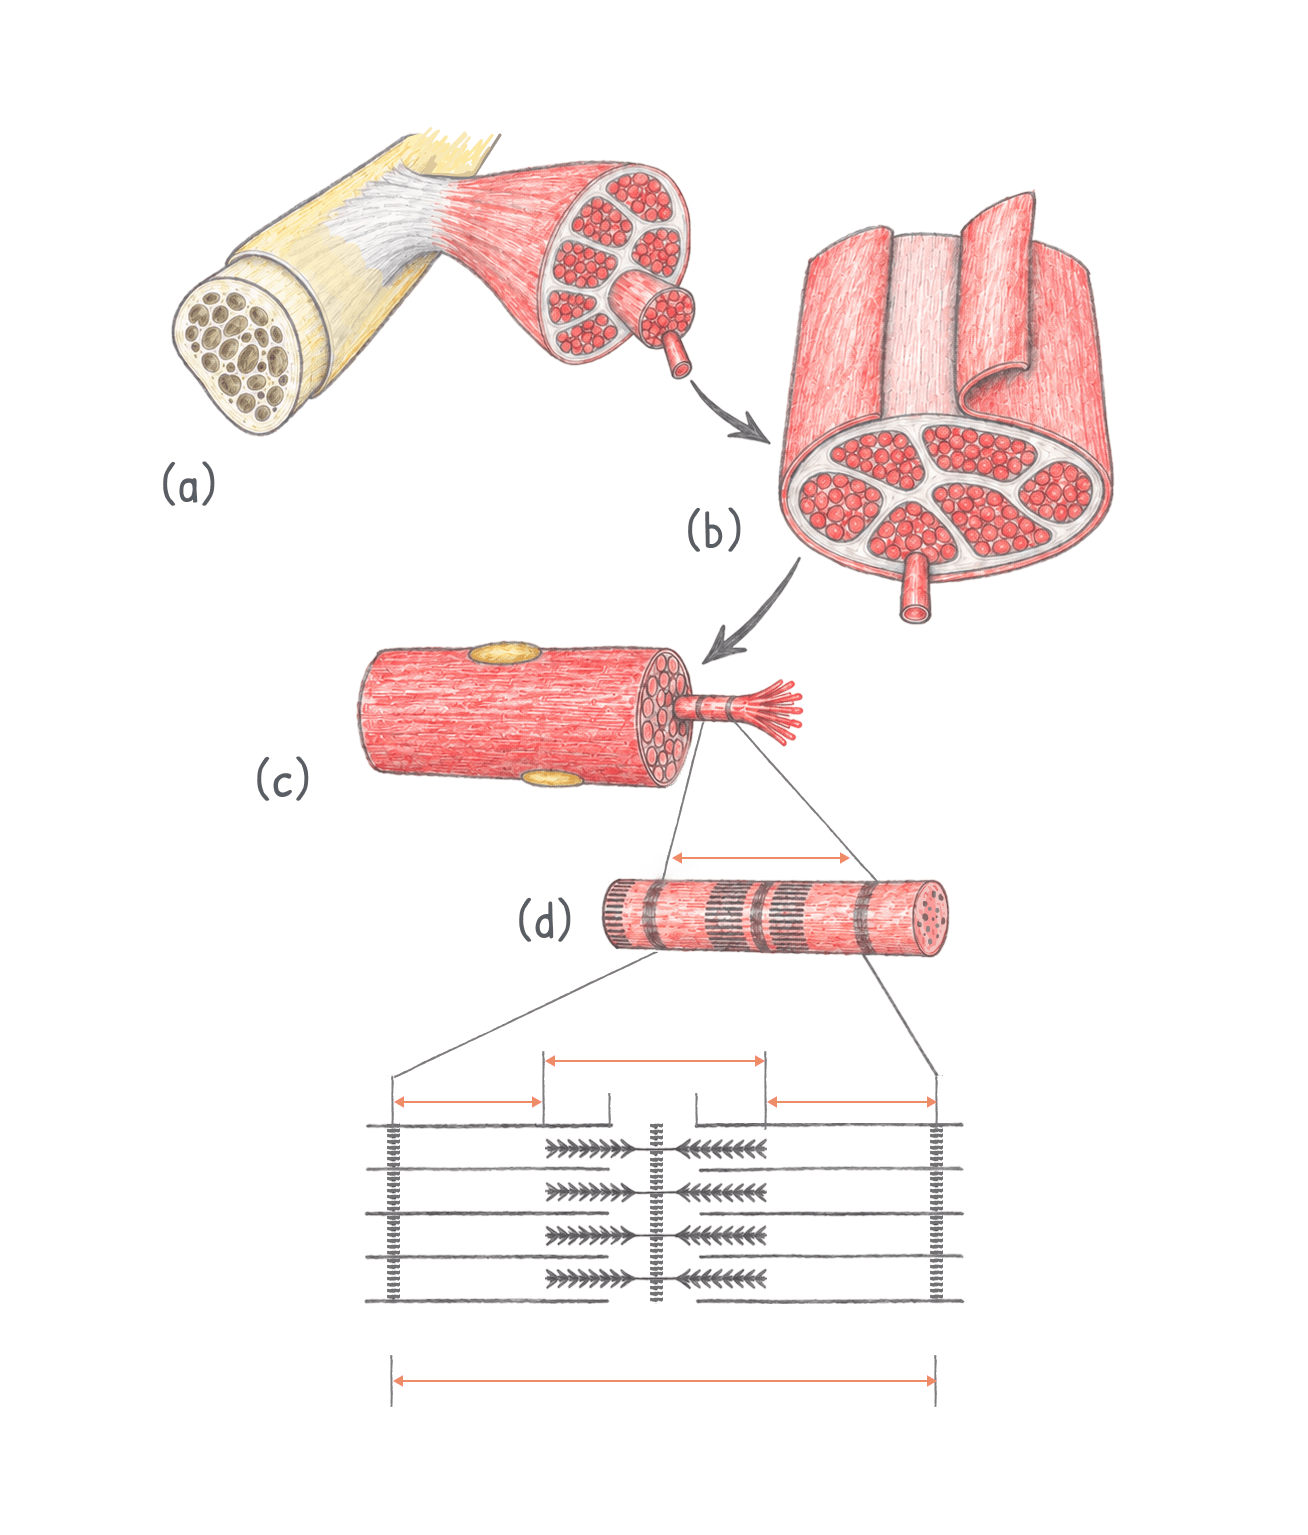
Fig. 8.1 · Biologie Barron's · p. 170
Structura mușchiului striat scheletic: de la mușchi la sarcomerFigura urmărește structura mușchiului striat scheletic de la organul întreg până la sarcomer, unitatea lui funcțională, în patru imagini tot mai mărite. Se pornește de la mușchiul prins pe os (a), se trece la o secțiune transversală prin mușchi (b), apoi la o singură fibră (celulă) musculară (c) și, în final, la un sarcomer mărit (d), desfășurat dedesubt într-o schemă a filamentelor. Săgețile care leagă primele trei imagini și liniile care coboară spre (d) și spre schemă arată, de fiecare dată, ce porțiune este mărită în imaginea următoare. (a) Mușchiul prins pe os Panoul arată o secțiune la nivelul corpului mușchiului, așezat pe un os desenat ca un cilindru secționat. Mușchii striați scheletici sunt inserați pe oase, iar unitatea mușchi-țesut osos asigură mișcările corpului. Mușchiul striat scheletic este organul format dintr-un număr mare de fibre musculare. Porțiunea lui care conține fibrele se numește gaster (sau corp). Pe fața secționată se văd fasciculele de fibre, iar unul dintre ele iese puțin în afară. Tendonul atașează mușchiul de os. Se formează din endomisium, perimisium, epimisium și fascie, care se continuă dincolo de corpul mușchiului. În desen pornește din capătul mușchiului și se întinde pe suprafața osului. Periostul osului este țesutul conjunctiv care acoperă un os lung acolo unde acesta nu prezintă cartilaj articular, de exemplu la nivelul diafizei (Figura 6.2). În desen este învelișul subțire de la suprafața osului, pe care se întinde tendonul. (b) Secțiune transversală prin mușchi Secțiunea evidențiază numeroase fibre (celule) musculare, organizate în fascicule. Celulele țesutului muscular striat scheletic sunt separate și învelite de straturi de țesut conjunctiv, care se văd aici de la exterior spre interior: Fascia și epimisium învelesc întreg mușchiul. În desen, fascia este foaia desprinsă și răsfrântă în afară, iar epimisium formează marginea exterioară a secțiunii, chiar sub ea. Stratul extern al fasciei, fascia superficială, conține o cantitate mare de țesut adipos la persoanele obeze. Perimisium învelește un pachet de fibre, adică un fascicul muscular. În secțiune, el este peretele care delimitează fiecare grup de fibre. Endomisium învelește fiecare fibră musculară în parte și se vede în interiorul fasciculelor, între fibrele alăturate. Din secțiune iese în afară o singură fibră musculară, pe care a doua săgeată o arată mărită în panoul (c). (c) Fibra musculară Fibra musculară este unitatea structurală a țesutului muscular, o celulă cu formă alungită. În mușchiul scheletic, fiecare celulă musculară este, în realitate, un set de zeci sau sute de celule fuzionate. Fibra este desenată cu un capăt secționat, ca să se vadă ce conține: Nucleii sunt mulți și așezați la periferia fibrei, spre deosebire de mușchiul neted și de cel cardiac, ale căror fibre au un singur nucleu, central. Legenda precizează că fibra desenată are trei nuclei. Sarcolema este membrana celulară a fibrei musculare. Când acetilcolina se leagă de receptorii de pe ea, ionul de sodiu pătrunde în interiorul celulei. Miofibrilele sunt filamentele filiforme din interiorul fibrei, vizibile ca niște cercuri mici pe fața secționată. Fiecare fibră conține un set de 4-20 de miofibrile, fiecare având 1-2 μ lățime și până la 100 μ lungime. Ele se află în citoplasma fibrei, numită și sarcoplasmă, unde se găsesc și numeroase mitocondrii ce furnizează ATP ca sursă de energie pentru contracția lor. Filamentele sunt structurile și mai fine din care este alcătuită o miofibrilă. În desen, o miofibrilă iese din capătul fibrei, iar vârful ei este destrămat pentru a le arăta. (d) Sarcomerul, benzile și zonele lui Miofibrilele sunt organizate de-a lungul axului lor longitudinal în unități mai mici, numite sarcomere, fiecare având aproximativ 2 μ lungime. Sarcomerul este unitatea funcțională a mușchiului striat scheletic, iar distribuția lui repetitivă îi conferă mușchiului aspectul striat caracteristic. Panoul (d) mărește o bucată din miofibrila ieșită în afară, cu dungile ei transversale, iar săgeata desenată deasupra ei cuprinde porțiunea dintre două linii Z, adică un sarcomer. La capătul tăiat se văd, în secțiune, filamentele groase și subțiri, cele două tipuri de miofilamente, așezate paralel între ele. Liniile care coboară din panoul (d) duc la schema de jos, în care același sarcomer este desfășurat: Filamentele groase (miozină) sunt compuse dintr-un tip de proteină numită miozină. Ele ocupă mijlocul sarcomerului, fără să ajungă la liniile Z. Filamentele subțiri (actină) sunt formate dintr-o proteină numită actină. Sunt ancorate la nivelul liniei Z și se întind spre mijlocul sarcomerului, printre filamentele groase. Linia Z este zona în care filamentele de actină din două sarcomere adiacente se întrepătrund. Sarcomerul se întinde de la o linie Z la următoarea. Banda I este banda largă, clară, pe care linia Z o împarte în două jumătăți egale. În dreptul ei, desenul arată numai filamente subțiri. Fiecare sarcomer are câte o jumătate de bandă I la ambele capete. Banda A este banda largă și densă din mijlocul sarcomerului, formată prin suprapunerea filamentelor de miozină, printre care se găsesc filamente de actină. Zona H împarte banda A în două jumătăți egale și conține doar filamente de miozină, fără filamente de actină. Repetiția benzilor A și I determină aspectul striat din miofibrilele mușchilor striați. Ce urmează Activitatea musculară are loc în sarcomere. În timpul contracției, cele două seturi de filamente de actină sunt trase de-a lungul filamentelor de miozină, unul spre celălalt, prin mecanismul de glisare al filamentelor (Figura 8.2). Sarcomerele se scurtează pe măsură ce crește gradul de suprapunere a filamentelor de miozină cu cele de actină, iar la contracția maximă zona H dispare și banda I scade foarte mult.

Fig. 8.2 · Biologie Barron's · p. 172
Mecanismul de glisare al filamentelor în contracția muscularăFigura urmărește mecanismul de glisare al filamentelor pe două sarcomere alăturate, în trei momente: relaxate (a), în timpul contracției (b) și în contracție maximală (c). Barele verticale sunt liniile Z. Sarcomerul, unitatea funcțională a mușchiului striat scheletic, este porțiunea dintre două linii Z vecine, așa că cele trei linii Z din fiecare panou delimitează două sarcomere. Liniile orizontale simple care pornesc din liniile Z sunt filamentele subțiri de actină. Printre ele, în mijlocul fiecărui sarcomer, stau filamentele groase de miozină, acoperite pe cele două jumătăți cu mici liniuțe oblice. Liniuțele sunt capetele moleculelor de miozină, înclinate în lateral ca într-o balama. Coborând de la un panou la altul, urmărește cum se apropie liniile Z și cum se strâng spațiile dintre filamente. (a) Relaxat În repaus, cele două seturi de filamente subțiri ale unui sarcomer sunt separate, iar vârfurile lor nu se întâlnesc în mijloc. Pe acest panou se citesc cel mai ușor reperele sarcomerului. Desenul le notează când pe unul, când pe celălalt dintre sarcomere, dar fiecare sarcomer le are pe toate: Linia Z este zona în care se întrepătrund filamentele de actină din două sarcomere adiacente, de aceea din fiecare linie Z pornesc filamente subțiri în ambele sensuri. Filamentele subțiri sunt ancorate la nivelul ei. Banda I este banda largă și clară pe care linia Z o împarte în două jumătăți egale. În desen, ea cuprinde linia Z din mijloc și filamentele subțiri de o parte și de alta a ei, până la capetele filamentelor groase. Banda A este banda largă și densă din mijlocul sarcomerului, formată prin suprapunerea filamentelor de miozină, printre care se găsesc filamente de actină. Se întinde pe toată lungimea filamentelor groase. Zona H împarte banda A în două jumătăți egale și conține doar filamente de miozină, fără filamente de actină. În desen este spațiul dintre vârfurile filamentelor subțiri, larg în repaus. Aceleași repere apar pe un singur sarcomer, mărit, în Figura 8.1. (b) În timpul contracției Când mușchiul se contractă, cele două seturi de filamente subțiri ale fiecărui sarcomer alunecă unul spre celălalt, în timp ce filamentele de miozină rămân pe loc. Săgețile groase de deasupra filamentelor arată sensul alunecării: din ambele părți, spre mijlocul sarcomerului, înspre zona H. Filamentele subțiri trag după ele liniile Z în care sunt ancorate, iar distanța dintre liniile Z scade. Față de panoul (a), vârfurile filamentelor subțiri s-au apropiat, zona H s-a îngustat, iar banda I s-a micșorat. (c) Contracție maximală Filamentele subțiri venite din cele două părți ale sarcomerului au trecut unele pe lângă altele și se suprapun în mijlocul lui. Liniile Z au ajuns aproape de capetele filamentelor groase, iar cele două sarcomere au lungimea lor minimă. Zona H a dispărut, banda I s-a redus foarte mult, iar fibra musculară este contractată. Manualul rezumă totul într-o idee de reținut: în mușchii scheletici contractați, sarcomerele se scurtează pe măsură ce crește gradul de suprapunere a filamentelor de miozină cu cele de actină. Cum se produce alunecarea Fiecare filament de miozină este înconjurat de filamente subțiri, așa că, în timpul contracției, capetele miozinei pot veni în contact cu actina. Ele devin punți între cele două tipuri de filamente și aplică un impuls puternic, ca o vâslă care împinge apa, trăgând filamentele de actină spre zona H. Punțile se comportă ca niște enzime care desfac molecula de adenozin trifosfat (ATP) în adenozin difosfat (ADP) și un grup fosfat anorganic, iar fiecare punte parcurge un ciclu: ATP-ul se leagă de receptorul enzimatic de pe capul miozinei și este descompus, iar ADP-ul și fosfatul rămân legate de cap. Energia eliberată activează capul miozinei în poziție armată, iar între el și filamentul de actină se formează o legătură slabă. Legătura slabă determină eliberarea ADP-ului și a fosfatului. Capul se leagă apoi puternic de actină și, în același timp, înaintează, dând impulsul care face filamentul de actină să alunece de-a lungul celui de miozină. O nouă moleculă de ATP se leagă de capul miozinei, actina este eliberată, iar ciclul se reia rapid cât timp persistă stimulul neuronal și există ATP disponibil. Când alunecarea are loc simultan în milioane de sarcomere din mii de fibre musculare, mușchiul se scurtează și se contractă. Punțile se pot forma doar după ce ionii de calciu, legați de troponină, fac tropomiozina să elibereze locurile de cuplare de pe actină (Figura 8.3). Relaxarea Când impulsurile nervoase încetează, calciul este pompat înapoi în cisternele terminale, tropomiozina acoperă din nou locurile de cuplare de pe actină, iar punțile dintre filamente se rup. Filamentele de actină glisează spre exterior, iar sarcomerul revine la lungimea de repaus din panoul (a).
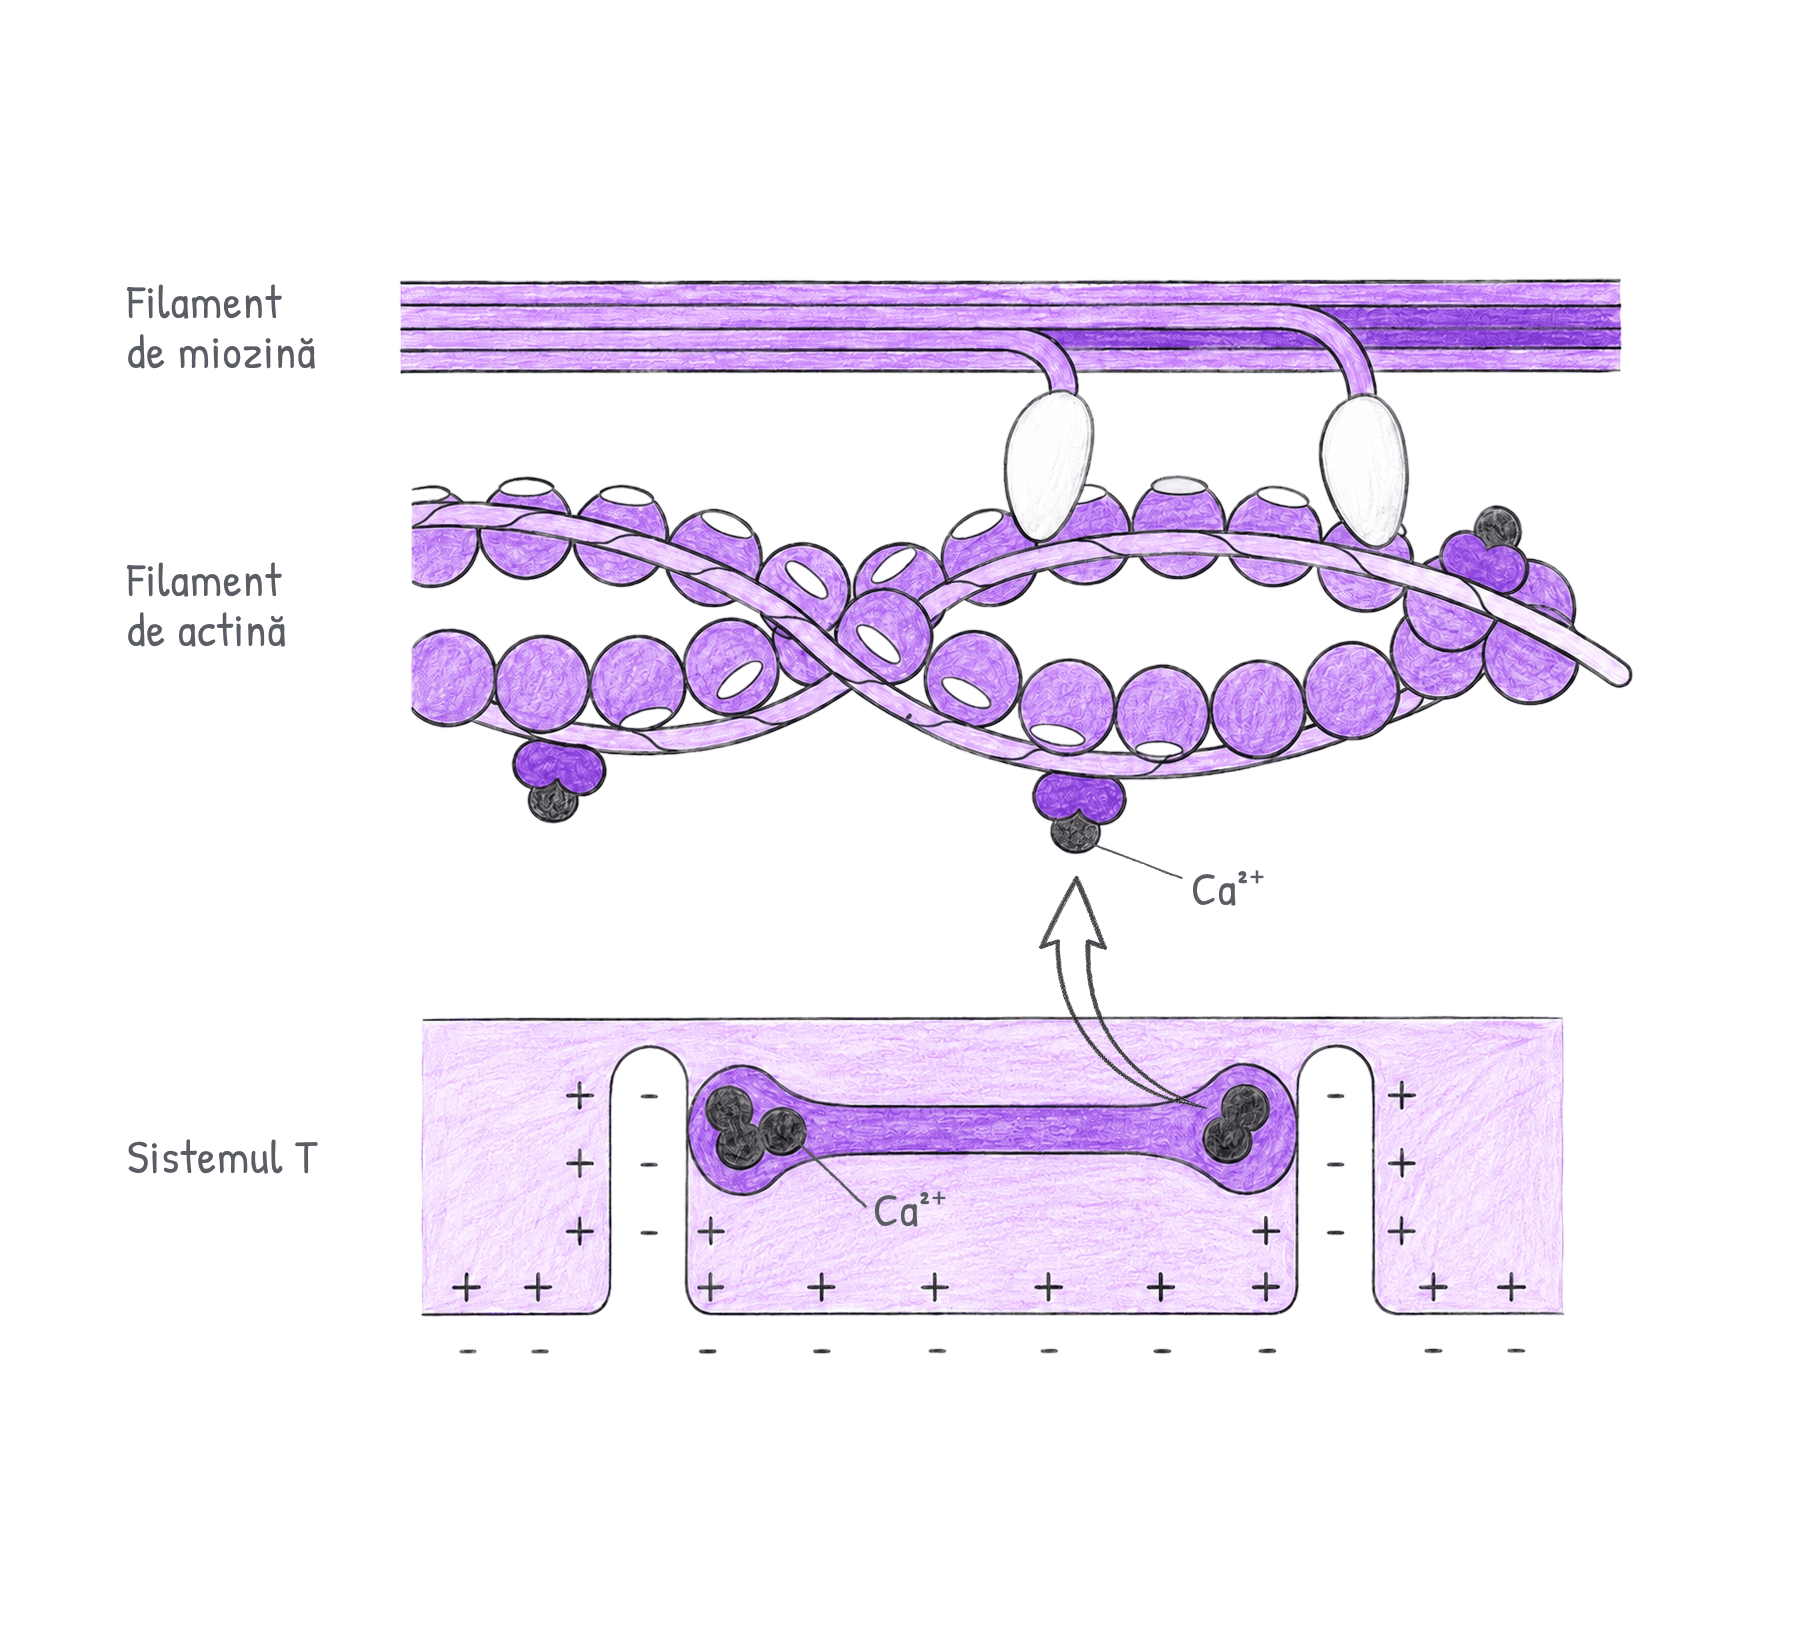
Fig. 8.3 · Biologie Barron's · p. 174
Inițierea contracției: troponina, tropomiozina și calciulFigura arată, foarte mărit, ce se petrece într-un sarcomer al fibrei musculare atunci când începe contracția. Desenul de sus surprinde locul în care un filament gros, de miozină, și un filament subțire, de actină, ajung în contact (poziția lor în sarcomer se vede în Figura 8.1). Desenul de jos, intitulat „Sistemul T”, prezintă o porțiune din fibră, cu membrana ei și cu depozitele de calciu. Săgeata curbată care urcă de la desenul de jos spre cel de sus urmărește drumul ionilor de calciu, așa că figura se citește cel mai bine de jos în sus. Filamentul de miozină Filamentul de miozină este banda striată din partea de sus. Din el coboară spre actină două capete ale miozinei, capetele globulare care, în contracție, au rol de punți între filamentele de actină și cele de miozină. Pe capul miozinei este marcat locul de cuplare a ATP-ului, receptorul enzimatic de care se leagă molecula de ATP. Punțile de miozină se comportă ca niște enzime: desfac ATP-ul în ADP și un grup fosfat anorganic, iar energia eliberată activează capul miozinic în poziție armată. Filamentul de actină și proteinele lui Filamentul de actină este format din două lanțuri răsucite într-un helix, desenate ca două șiruri de subunități globulare. Locul de formare a punților de legătură este punctul de pe actină în care se prinde capul miozinei, desenat ca o pată albă pe o subunitate globulară. Pete asemănătoare se văd pe multe dintre subunități, iar în legendă ele apar ca „locurile de cuplare ale actinei”. Tropomiozina are moleculele așezate în șanțul helixului, desenate ca două panglici subțiri care se răsucesc odată cu filamentul. În mușchiul relaxat, ea acoperă locurile de cuplare și împiedică astfel legarea capetelor miozinei de actină. Troponina se găsește la intervale regulate de-a lungul filamentului de actină: în desen apar trei complexe de troponină, fiecare cu câte un ion de calciu prins de el. Troponina se leagă atât de tropomiozină, cât și de actină și de ionii de calciu. Sistemul T și depozitele de calciu Cele două canale înguste care pornesc de la marginea de jos a desenului și pătrund în fibră sunt tubii transversali (tubii T), invaginări ale membranei celulare (sarcolemei). Marginea de jos a desenului este, așadar, chiar sarcolema. Tubii T sunt situați în dreptul joncțiunilor A-I, iar manualul îi descrie ca pe un alt tip de rezervor de calciu, prin care calciul poate pătrunde din spațiul extracelular. Între cei doi tubi se află o structură alungită, cu capetele umflate și pline cu ioni de calciu. Aceste capete, alăturate tubilor T, sunt cisternele terminale, din care, după legendă, este eliberat calciul. Textul adaugă că, în repaus, calciul este pompat permanent în afara celulei sau în reticulul sarcoplasmic, reticulul endoplasmic neted specializat al celulei, de unde este eliberat la contracție. Punctele închise la culoare marcate $\ce{Ca^2+}$ sunt ionii de calciu: jos sunt adunați în cisternele terminale, iar sus, după drumul arătat de săgeată, sunt prinși de troponină. Cum decurge procesul Pe scurt, acetilcolina face ca fibra să elibereze calciu în sarcoplasmă, iar calciul permite miozinei să se cupleze cu actina și să producă contracția. Impulsul nervos ajunge la joncțiunea neuromusculară și determină eliberarea acetilcolinei (Figura 8.4). Aceasta se leagă de receptorii de pe sarcolemă, iar ionii de sodiu, ținuți în repaus la o concentrație scăzută prin transport activ, pătrund în celulă. Intrarea sodiului produce o activitate electrică de-a lungul fibrei, iar impulsul se transmite prin tubii T în profunzimea ei. Ca urmare, tubii T și reticulul sarcoplasmic eliberează rapid ionii de calciu în sarcoplasmă. Calciul difuzează din depozite, scăldând filamentele de miozină, și se leagă de situsurile de pe moleculele de troponină. Complexul format își schimbă forma. Pentru că troponina este legată de tropomiozină, tropomiozina își schimbă și ea poziția și eliberează locurile de cuplare ale actinei. Capetele miozinei se atașează de actină și formează punți de legătură. Urmează impulsul puternic: filamentele de actină glisează spre interior, de-a lungul celor de miozină (Figura 8.2), iar fibra se scurtează. Când se eliberează cantități mari de calciu, se pot forma mai multe legături cu troponina, iar contracțiile pot fi mai numeroase și mai puternice. La relaxare, drumul se parcurge invers Relaxarea începe când impulsurile nervoase încetează. Colinesteraza descompune acetilcolina, sarcolema și tubii T revin la starea de repaus, iar eliberarea calciului din reticulul sarcoplasmic se oprește. Enzimele pompează calciul înapoi în cisternele terminale, iar transportul activ al ionilor de calciu în tubii T și în reticulul sarcoplasmic folosește energie din ATP. Odată cu retragerea calciului, troponina revine la configurația de repaus, tropomiozina acoperă din nou locurile de cuplare de pe actină, iar filamentele de actină glisează spre exterior, până când sarcomerul își recapătă lungimea de repaus. De aceea, mușchii care nu se mai pot aproviziona cu ATP rămân contractați. Un exemplu este rigor mortis, starea în care, după moarte, celulele musculare rămân contractate.

Fig. 8.4 · Biologie Barron's · p. 175
Unitatea motorie: relația dintre sistemul nervos și sistemul muscularFigura ilustrează relația dintre sistemul nervos și sistemul muscular. Mușchiul striat scheletic se contractă, de regulă, numai când este stimulat de un impuls nervos, iar desenul urmărește drumul acestui impuls de la măduva spinării până la fibrele musculare. Pornește din stânga sus, unde măduva spinării este desenată în secțiune. Din ea pleacă spre dreapta un nerv, care duce axonii a doi neuroni motori. La capătul nervului, cei doi axoni se despart și se ramifică pe fibrele musculare care ies din mușchi. În centru, mușchiul este tăiat transversal, iar în partea de jos se îngustează și se prinde de un os. Drumul impulsului nervos Corpul celular al neuronului motor se află în măduva spinării, care, împreună cu encefalul, alcătuiește sistemul nervos central, centrul de control al întregului organism. Neuronii care conduc impulsuri către fibrele musculare se numesc neuroni motori (eferenți). Ei transmit mesajele sistemului nervos central către mușchi, inimă și glande. Axonul neuronului motor este prelungirea lungă prin care impulsurile sunt transmise dinspre corpul celular. Axonii neuronilor motori părăsesc măduva spinării prin rădăcinile nervoase ventrale, care transmit comenzi spre mușchii scheletici (Figura 11.3). Nervul se formează prin reunirea axonilor mai multor neuroni, numiți uzual fibre nervoase. Pe desen, axonii celor doi neuroni motori merg împreună prin același nerv și se despart abia la capătul lui, aproape de mușchi. Axonul terminal la nivelul joncțiunii neuromusculare este capătul unei ramificații a axonului, acolo unde aceasta ajunge la o fibră musculară. Fiecare neuron se ramifică spre fibrele mușchiului, iar aceste ramificații microscopice se numesc terminații axonale. Joncțiunea neuromusculară este compusă dintr-o singură fibră musculară și terminația unei singure celule nervoase. Cele două membrane sunt foarte apropiate, dar nu se ating, rămânând separate printr-un spațiu plin cu lichid, numit fantă sinaptică. Când impulsul nervos ajunge la joncțiunea neuromusculară, în fanta sinaptică este eliberată acetilcolina. Ea traversează fanta și stimulează membrana fibrei musculare. Impulsul inițiat astfel în fibră se propagă pe toată suprafața ei și declanșează în interior o serie de evenimente care culminează cu contracția. Etapele din interiorul fibrei, cu ionii de calciu, troponina și tropomiozina, sunt prezentate în Figura 8.3. Când impulsurile nervoase încetează, mușchiul se relaxează. Cele două unități motorii Neuronul motor, împreună cu toate fibrele musculare pe care le stimulează, constituie o unitate motorie. Pe desen se observă două. Axonul unității motorii 2 se ramifică spre partea de sus a mănunchiului de fibre, iar cel al unității motorii 1 spre partea de jos, așa că fiecare unitate are propriul neuron și propriile fibre. Un singur neuron poate stimula până la 100 de fibre musculare, însă numărul de fibre deservite de un neuron motor este variabil. Un mușchi are mai multe unități motorii. Mușchiul și fibrele lui Celulele mușchiului scheletic sunt de obicei foarte lungi și se numesc fibre musculare. Ele sunt grupate în fascicule, iar un număr mare de fibre formează organul numit mușchi. Pe secțiunea transversală a mușchiului se văd fasciculele, iar din secțiune se desprinde mănunchiul de fibre pe care se ramifică axonii. În partea de jos, mușchiul se îngustează și se continuă cu tendonul, care îl atașează de os. Prin contracție, mușchii mișcă părțile scheletului de care sunt atașați. Organizarea mușchiului, de la fascicule până la sarcomer, este prezentată în Figura 8.1. Răspunsul gradual Fibra musculară individuală răspunde după legea „tot sau nimic”. Ea se contractă numai după ce un impuls depășește o anumită intensitate prag și se răspândește apoi în întreaga celulă. Peste acest prag, creșterea intensității, ratei și duratei impulsului produce o contracție doar cu puțin mai puternică. Cu alte cuvinte, fibra se contractă fie complet, fie deloc. Mușchiul, ca întreg, nu se supune acestei legi, ci are un răspuns gradual, adică un răspuns variabil, dependent de numărul de fibre musculare care se contractă. Când un număr mare de neuroni conduc impulsuri la un mușchi, se contractă mai multe fibre, iar când sunt stimulate numai câteva fibre, contracția mușchiului este slabă. Pe desen, dacă ambii neuroni motori conduc impulsuri, se contractă fibrele ambelor unități motorii, deci mai multe fibre decât atunci când lucrează unul singur.
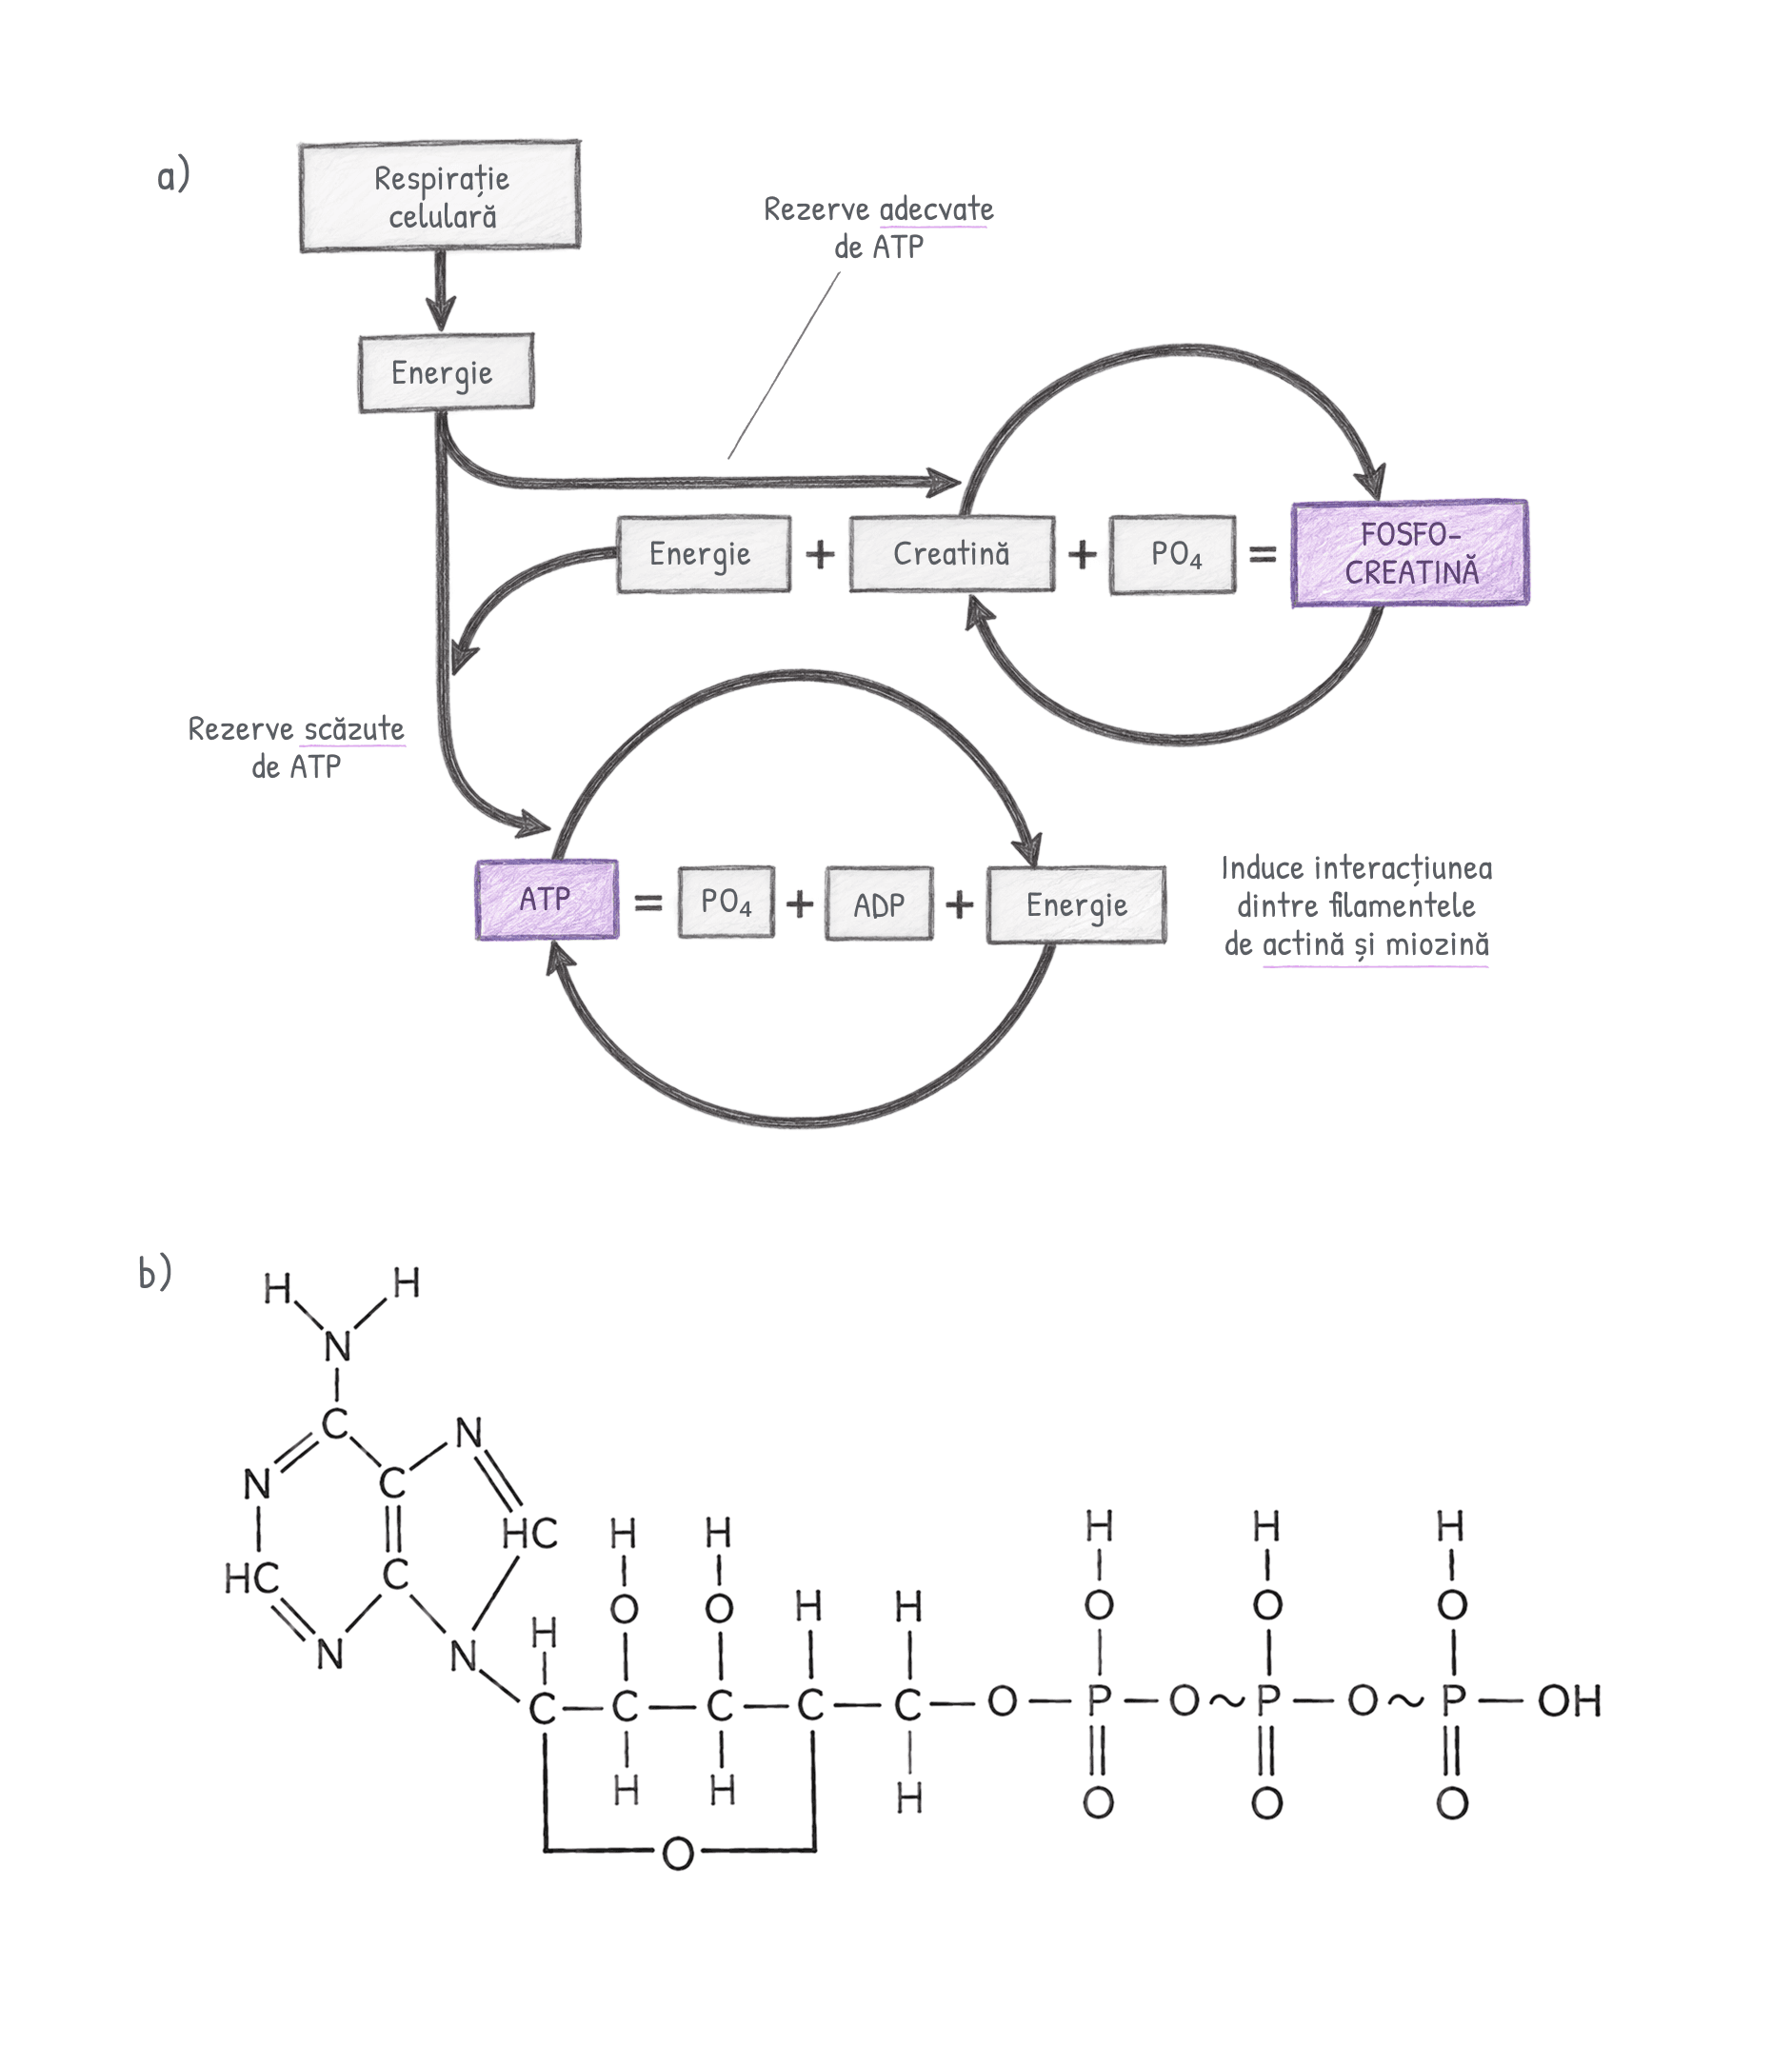
Fig. 8.5 · Biologie Barron's · p. 177
Conversia energetică în celulele musculare: fosfocreatina și ATP-ulFigura arată de unde vine energia pentru contracția musculară: din ATP. Panoul (a) urmărește drumul acestei energii, de sus în jos, de la caseta respirație celulară până la filamentele de actină și miozină. Cele două cercuri sunt reacții scrise pe câte un rând și parcurse de săgeți în ambele sensuri: arcul de sus într-un sens, arcul de jos în sens invers. Panoul (b) arată structura chimică a ATP-ului, molecula care poartă energia. (a) Cele două ramuri ale energiei Din caseta respirație celulară, o săgeată coboară spre caseta energie. Reacțiile respirației celulare care furnizează ATP au loc în citoplasmă și în mitocondrii, iar în fibra musculară mitocondriile sunt numeroase și așezate lângă filamentele subțiri și groase. Pentru a se finaliza, aceste reacții au nevoie de oxigen. Sub caseta energie, drumul se desparte, iar desenul scrie lângă fiecare ramură când este urmată: Rezerve adecvate de ATP: săgeata orizontală duce energia în cercul de sus, unde se formează fosfocreatina. Când celula are destul ATP, energia este pusă deoparte sub această formă. Rezerve scăzute de ATP: săgeata care coboară duce energia în cercul de jos, unde servește la refacerea ATP-ului. Rezervele de ATP din fibra musculară sunt limitate, de aceea ATP-ul trebuie regenerat în permanență din ADP și grupări fosfat. Cercul fosfocreatinei Rândul care traversează cercul de sus se citește energie + creatină + $\ce{PO4}$ = fosfocreatină (creatin fosfat). Pe arcul de sus, creatina și gruparea fosfat se unesc, cu energia primită, în fosfocreatină. Fosfocreatina conține legături fosfat cu nivel energetic ridicat și este un depozit de energie celulară. Arcul de jos se întoarce de la fosfocreatină la creatină, adică depozitul este folosit. Din caseta energie a rândului pleacă o săgeată care coboară și se unește cu ramura rezervelor scăzute de ATP. Așa arată desenul ce spune textul: când ATP-ul este epuizat, fosfocreatina eliberează energie, transferând fosfatul unei molecule de ADP, ca să regenereze ATP-ul. Fosfocreatina este una dintre sursele de regenerare a ATP-ului. Cercul ATP-ului Rândul cercului de jos se citește ATP = $\ce{PO4}$ + ADP + energie, iar cele două arce îl parcurg în sensuri opuse: Arcul de sus, de la ATP spre energie, este scindarea ATP-ului. O face ATP-aza, o enzimă din capetele filamentelor de miozină, care desface ATP-ul în ADP și grupări fosfat și eliberează energia din moleculă. Locul de cuplare a ATP-ului pe capul miozinei se vede în Figura 8.3. Textul din dreapta spune la ce folosește energia: induce interacțiunea dintre filamentele de actină și miozină, adică activitatea actino-miozinică ce determină contracția musculară (Figura 8.2). Arcul de jos, de la energie înapoi la ATP, este refacerea moleculei: ADP-ul și gruparea fosfat se leagă din nou, la fel cum se reîncarcă o baterie. Energia necesară sosește pe ramura rezervelor scăzute de ATP, direct de la respirația celulară sau din fosfocreatină. (b) Structura chimică a ATP-ului Panoul de jos desenează atom cu atom molecula de adenozin-trifosfat (ATP), o nucleotidă din ARN cu grupări fosfat suplimentare. Se citește de la stânga la dreapta (Figura 19.1 arată aceeași moleculă, cu părțile denumite): Adenina, în stânga, este baza azotată, o bază purinică cu două inele de atomi de carbon și azot și o grupare $\ce{NH2}$ în vârf. Printr-un atom de azot, ea se leagă de primul atom de carbon al ribozei. Riboza, la mijloc, este o pentoză, adică o glucidă cu 5 atomi de carbon. Inelul ei este închis de atomul de oxigen desenat dedesubt, iar ultimul atom de carbon o leagă de fosfați. Cele trei grupări fosfat, în dreapta, sunt construite fiecare în jurul unui atom de $\ce{P}$, iar lanțul se termină cu o grupare $\ce{OH}$. Legăturile prin care se prind a doua și a treia grupare fosfat nu sunt desenate cu o linie, ci cu semnul \~. Ele sunt legăturile cu nivel energetic ridicat din legenda figurii: când sunt scindate, se eliberează energie pentru activitatea celulei musculare. ATP-aza (adenozin-trifosfataza) desprinde ultima grupare fosfat și o eliberează ca ion fosfat. Rămâne ADP (adenozin-difosfat), iar energia este eliberată. Este chiar reacția de pe arcul de sus al cercului ATP-ului. Când rezervele se epuizează Când un mușchi este extrem de activ, rezervele de ATP și de fosfocreatină se pot epuiza. Atunci metabolismul glucidic devine sursa de energie a celulei musculare, prin respirația celulară din vârful schemei. Dacă mușchiul se contractă intens câteva minute, oxigenul nu mai ajunge destul de repede, iar celula depinde de ATP-ul din faza anaerobă a respirației celulare. Glicoliza anaerobă furnizează două molecule de ATP pentru fiecare moleculă de glucoză scindată, iar când rezerva de oxigen a celulei este epuizată, acidul piruvic rezultat este convertit în acid lactic. Acumularea lui aduce oboseala musculară extremă și datoria de oxigen. Oxigenul suplimentar cerut de această datorie servește, printre altele, la resinteza ATP-ului prin respirație celulară și la formarea fosfocreatinei, adică la refacerea celor două rezerve din schemă.
- 9Sistemul muscularPaginile 191 - 208

Fig. 9.1 · Biologie Barron's · p. 193
Mușchii superficiali ai feței anterioare a corpuluiFigura arată mușchii superficiali ai feței anterioare a corpului, adică mușchii cei mai apropiați de suprafața corpului, cei care se văd primii când privim corpul din față. Corpul stă vertical, cu membrele superioare ușor depărtate de trunchi și cu palmele înainte, policele spre exterior, ca în poziția anatomică. Doar capul este întors din profil, așa că mușchii feței se văd din lateral. Majoritatea mușchilor apar de ambele părți ale corpului, dar fiecare este marcat o singură dată. Termenii de mai jos au sensul din poziția anatomică: medial înseamnă mai aproape de linia mediană a corpului, iar lateral, mai departe de ea. Vederea din spate a aceluiași corp este Figura 9.2. Origine, inserție și aponevroze Majoritatea mușchilor scheletici sunt relativ lungi și înguști, iar cele două capete ale lor se prind, cu câteva excepții, de oase. Capătul atașat printr-un tendon de un os care rămâne relativ fix este originea. Capătul prins de osul pe care mușchiul îl mobilizează este inserția. În general, originea se află mai aproape de linia mediană decât inserția: deltoidul, de exemplu, pornește de pe claviculă și acromion și se prinde pe humerus, osul pe care îl mișcă. Tendoanele sunt prelungiri ale țesutului conjunctiv care învelește fibrele musculare și au forma unor cilindri sau benzi, lungi de la sub 2 cm până la peste 30 cm. Unii mușchi se prind prin tendoane plate și subțiri, ca niște teci, numite aponevroze, iar uneori aponevroza se atașează la fascia altor mușchi, nu la un os. Manualul trimite chiar la această figură când spune că aponevrozele sunt frecvente la mușchii care acoperă trunchiul. Un exemplu este oblicul extern, care se inseră printr-o aponevroză pe linia albă și pe pubis (Figura 9.11). Capul și gâtul Mușchii feței mobilizează sarcini relativ mici, așa că mulți dintre ei nu au nevoie de tendoane puternice. Se află în fascia superficială, pornesc din ea sau de pe oasele feței și se prind adesea de piele. Patru dintre mușchii desenați aici țin de cei șase mușchi ai mimicii, numiți mușchi cutanați pentru că sunt fixați de piele. Frontal: pe frunte. Împreună cu occipitalul formează mușchiul epicranian, care ridică sprânceana. Orbicularul ochiului: inelul din jurul ochiului, care închide pleoapa. Zigomatic: pe obraz, trage în sus colțul gurii, ca într-un zâmbet. Orbicularul gurii: înconjoară orificiul cavității orale și închide buzele, producând țuguierea lor. Maseter: nu este un mușchi al mimicii, ci face parte din cele patru perechi de mușchi puternici ai masticației, care se inseră pe mandibulă. Pornește de pe arcul zigomatic al temporalului și de pe osul zigomatic și ajută la închiderea gurii. Sternocleidomastoid: banda oblică de pe partea laterală a gâtului, de la stern și claviculă la apofiza mastoidă a temporalului. Înclină capul lateral și spre torace, iar cei doi mușchi ai perechii produc împreună flexia capului. Umărul și toracele Trapez: mușchi lat și triunghiular al spatelui. Din față i se vede doar marginea dintre gât și umăr. Mobilizează centura pectorală și întregul membru superior. Deltoid: acoperă umărul. Este un abductor major al brațului și produce și flexia și extensia lui. Pectoral mare: mușchiul mare și triunghiular al peretelui toracic anterior. Adduce brațul și formează o bună parte din peretele anterior al axilei. Dințat anterior: mușchi lat și zimțat de pe partea laterală a toracelui, ai cărui zimți se văd sub marginea pectoralului mare. Trage spre exterior scapula și membrul superior. Deltoidul și pectoralul mare au acțiuni opuse: deltoidul face abducția brațului, iar pectoralul mare, împreună cu dorsalul mare de pe spate, adducția. Când deltoidul abduce brațul, pectoralul mare și dorsalul mare îi sunt antagoniști. Peretele abdominal Peretele anterior al abdomenului nu are oase care să-l protejeze, așa că straturi largi și subțiri de mușchi ajută la susținerea viscerelor abdominale și la flexia trunchiului. Pe mijloc, de la apofiza xifoidă la simfiza pubiană, coboară linia albă, formată mai ales din țesut conjunctiv, fără mușchi, nervi sau vase mari de sânge. Drept abdominal: mușchi lung și lat, ca o bandă, așezat de fiecare parte a liniei albe. În desen i se văd segmentele transversale. Leagă creasta pubiană de apofiza xifoidă, comprimă cavitatea abdominală și ajută la flexia coloanei vertebrale. Oblic extern: mușchi superficial și întins, ca o fâșie, pe partea laterală a abdomenului. Coboară de pe ultimele opt coaste în jos și medial și comprimă peretele abdominal. Membrul superior Biceps brahial: cel mai superficial mușchi al brațului, cu două capete de origine pe scapulă. Se inseră pe radius, flectează antebrațul la cot și produce supinația lui. La umăr permite flexia membrului superior. Brahial: stă sub biceps, de aceea în desen se vede doar o fâșie îngustă pe marginea laterală a brațului, deasupra cotului. Pornește de pe fața anterioară a humerusului, se inseră pe ulnă și flectează antebrațul la nivelul cotului. Brahioradial: pe marginea laterală a antebrațului, de la humerus la radius. Flectează și el antebrațul la nivelul cotului. Toți trei sunt flexori ai antebrațului, un exemplu bun pentru ideea că o mișcare este produsă de mai mulți mușchi care lucrează împreună. Mișcarea opusă, extensia antebrațului, o face tricepsul brahial de pe fața posterioară a brațului, vizibil în Figura 9.2. Bicepsul brahial este agonistul mișcărilor de la cot, iar tricepsul este antagonistul lui. Coapsa Tabelul 9.1 împarte coapsa în trei compartimente: anterior, medial și posterior. Din față se văd primele două. Compartimentul posterior, cu flexorii gambei, apare în Figura 9.2. Compartimentul anterior este ocupat de grupul cvadriceps femural, cea mai mare parte a masei musculare de pe fața anterioară a coapsei. Din cei patru mușchi ai lui sunt marcați trei: dreptul femural, pe mijlocul coapsei, vastul lateral, pe partea laterală, și vastul medial, pe partea medială, deasupra genunchiului. Al patrulea, vastul intermediar, nu este marcat. Dreptul femural pornește de pe ilion, iar ceilalți de pe femur. Fibrele tuturor converg spre patelă, vizibilă la genunchi, și se inseră pe tuberozitatea tibială prin tendonul patelar. Toți patru fac extensia gambei, iar dreptul femural produce și flexia coapsei. Compartimentul medial cuprinde grupul adductorilor (adductorul mare, scurt și lung, dintre care este marcat doar cel lung), gracilisul și croitorul. Adductorii și gracilisul pornesc de pe osul pubis și produc adducția coapsei. Croitorul, lung și îngust, traversează oblic fața anterioară a coapsei, de la spina iliacă antero-superioară la fața medială a tibiei. Flectează coapsa și rotește gamba medial. Pe partea laterală, imediat sub șold, se află tensorul fasciei late, care pornește de pe spina iliacă antero-superioară a ilionului și se inseră pe tibie. Gamba Cei mai importanți mușchi ai gambei pornesc de pe oasele gambei, iar mulți se inseră pe oasele piciorului. Pe fața anterioară: tibialul anterior, așezat lateral, lângă tibie, produce inversia piciorului și flexia lui dorsală. Mai jos, spre gleznă, este marcat extensorul lung al degetelor. Pe fața laterală: peronierul lung pornește de pe porțiunea superioară a fibulei și se inseră pe cuneiformul medial și pe primul metatarsian. Produce eversia piciorului și flexia plantară. Pe fața posterioară: gastrocnemianul și, sub el, solearul. Din față li se vede doar marginea, pe partea medială a gambei. Împreună formează tricepsul sural, care dă forma moletului și se inseră prin tendonul ahilian comun pe calcaneu. Ambii produc flexia plantară a piciorului, iar gastrocnemianul flectează și gamba. Mușchii lucrează în grupe Majoritatea mișcărilor corpului rezultă din acțiunile complexe ale unor grupe de mușchi: flexori, extensori, rotatori și alții. Mușchii cu acțiunea cea mai directă și mai puternică într-o mișcare sunt agoniștii (prim motorii), iar cei care acționează în opoziție cu ei sunt antagoniștii. În timp ce agonistul se contractă pentru a produce mișcarea, antagonistul se relaxează ca s-o permită. Tot așa, cvadricepsul face extensia gambei, iar ischiogambierii de pe fața posterioară o flectează. Pentru abducție, adducție, flexie și celelalte mișcări, manualul recomandă recapitularea mișcărilor articulare din capitolul 6 (Figura 6.6).

Fig. 9.2 · Biologie Barron's · p. 194
Mușchii superficiali ai feței posterioare a corpuluiFigura arată același corp ca Figura 9.1, dar văzut din spate, cu mușchii superficiali ai feței posterioare. Corpul este desenat întreg, cu brațele ușor depărtate de trunchi, iar mușchii apar simetric pe cele două jumătăți, așa că fiecare structură se poate urmări și în stânga, și în dreapta. Manualul grupează trei dintre mușchii coapsei sub numele de flexori ai gambei și folosește figura pentru a arăta că majoritatea mișcărilor corpului rezultă din acțiunile complexe ale unor grupe de mușchi: flexori, extensori, rotatori și alții. Capul și gâtul Din această regiune, figura arată doar doi mușchi. Occipitalul acoperă partea posterioară a capului și formează, împreună cu frontalul din vederea anterioară, mușchiul epicranian, unul dintre mușchii mimicii, care ridică sprânceana. Sternocleidomastoidul se vede din spate doar ca o fâșie îngustă pe partea laterală a gâtului. Pornește de pe stern și claviculă și urcă spre apofiza mastoidă a osului temporal. Cei doi sternocleidomastoizi, acționând împreună, produc flexia capului. Spatele și umărul Aceasta este fața pe care mușchii spatelui se văd cel mai bine. O vedere mai apropiată a lor apare în Figura 9.4. Trapezul este un mușchi lat și triunghiular. Cei doi trapezi acoperă împreună partea de sus a spatelui, întinzându-se de la osul occipital și de la vertebre până la claviculă și scapulă. Tabelul 9.1 îi atribuie extensia membrului superior. Dorsalul mare (marele dorsal) acoperă partea de jos a spatelui și urcă spre humerus printr-un tendon lat. Extinde brațul și este antagonistul pectoralului mare. Deltoidul acoperă umărul și se vede și din față, și din spate. Este un abductor major al brațului și produce, de asemenea, flexia și extensia lui. Oblicul extern este un mușchi al peretelui abdominal, din care se vede aici doar porțiunea laterală, pe flanc, sub marginea dorsalului mare. Pornește de la ultimele opt coaste inferioare, se întinde în jos și medial și comprimă peretele abdominal. Membrul superior Tricepsul brahial ocupă fața posterioară a brațului și este antagonistul bicepsului brahial: bicepsul flectează antebrațul, tricepsul realizează extensia. Grupul extensorilor și al flexorilor carpului este masa musculară a antebrațului. Flexia încheieturii mâinii este realizată de flexorul radial și de flexorul ulnar al carpului, iar extensia de extensorul radial lung, extensorul radial scurt și extensorul ulnar al carpului. Acești mușchi permit, de asemenea, abducția și adducția încheieturii. Extensorul degetelor, de pe fața posterioară a antebrațului, este unul dintre mușchii lungi ai antebrațului ale căror tendoane se întind înspre încheietura mâinii și apoi înspre degete. Astfel de mușchi servesc ca flexori și extensori puternici ai degetelor. Membrul inferior Fesierul mare este cel mai voluminos mușchi al fesei și realizează extensia membrului inferior în articulația șoldului. Bicepsul femural, semitendinosul și semimembranosul formează grupul de pe fața posterioară a coapsei, pe care textul manualului îl numește mușchii ischiogambieri. Pornesc de pe tuberozitatea ischiadică (bicepsul femural are și un cap scurt, cu originea pe corpul femurului) și se inseră pe oasele gambei. Toți trei extind coapsa și flectează gamba. Mușchii posteriori ai coapsei apar în detaliu în Figura 9.8. Gastrocnemianul se află pe fața posterioară a gambei, iar desenul îl arată ca două mase alăturate. Produce în principal flexia plantară a piciorului, dar flectează și gamba. Împreună cu solearul, aflat sub el, formează tricepsul sural, care dă forma moletului. Tendonul calcanean (tendonul ahilian) este tendonul comun prin care tricepsul sural se inseră pe calcaneu, un os tarsian. Agoniști și antagoniști Citită împreună cu vederea anterioară, figura arată perechile de mușchi care se opun unul altuia: bicepsul brahial și tricepsul brahial la cot, cvadricepsul și mușchii ischiogambieri la genunchi, deltoidul pe de o parte și pectoralul mare împreună cu dorsalul mare pe de altă parte, la umăr. În timp ce agonistul se contractă pentru a produce mișcarea dorită, antagonistul se relaxează pentru a permite această mișcare.
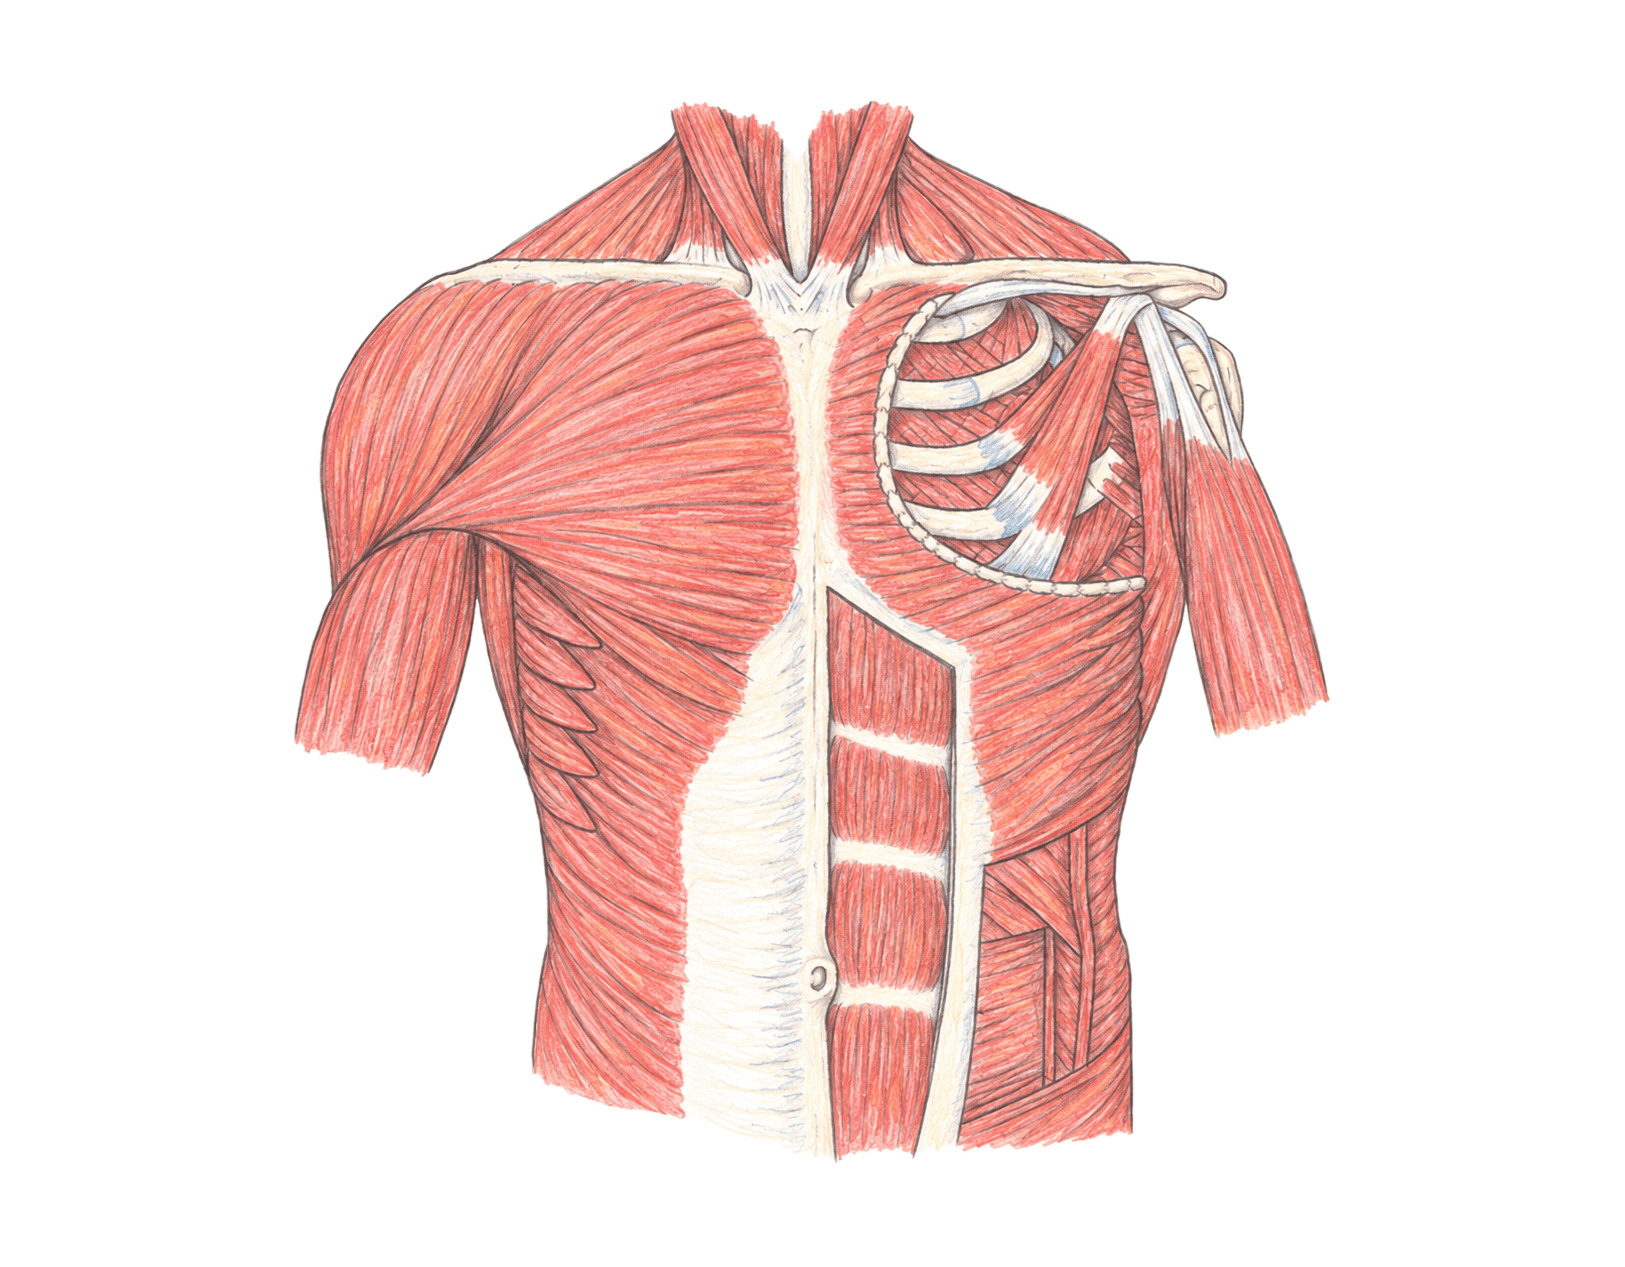
Fig. 9.3 · Biologie Barron's · p. 196
Cei mai importanți mușchi ai feței anterioare a toraceluiFigura este un detaliu al peretelui toracic anterior, decupat din vederea de ansamblu a corpului (Figura 9.1). Desenul nu este simetric, și tocmai asta îl face util: pe una dintre jumătăți pectoralul mare este păstrat întreg, cu fibrele lui în evantai care converg spre humerus, iar pe cealaltă jumătate a fost îndepărtat, lăsând la vedere coastele și mușchiul mai mic de sub el. Așa se văd, în același desen, și planul superficial, și cel de dedesubt. Mușchii umărului Mișcările umărului implică și mișcările scapulei, osul numit și omoplat. Mai mulți mușchi se atașează de scapulă, dar numai câțiva dintre ei sunt considerați importanți. Dințatul anterior este un mușchi lat, zimțat, situat în partea laterală a toracelui. Digitațiile lui se prind pe suprafața externă a primelor nouă coaste, iar inserția este pe suprafața costală a scapulei. Trage spre exterior scapula și membrul superior. Trapezul apare aici doar cu marginea lui superioară, la baza gâtului. Este un mușchi lat, triunghiular, situat la nivelul spatelui, care mobilizează centura pectorală și întreaga extremitate superioară. Pectoralul mare este unul dintre mușchii mari, triunghiulari ai peretelui toracic anterior. Adduce brațul și formează o parte semnificativă a peretelui anterior al axilei. Pectoralul mic este mușchiul mai mic, triunghiular, situat sub pectoralul mare, motiv pentru care se vede numai pe jumătatea disecată. Coboară umărul. Deltoidul acoperă umărul, la marginea desenului. Este abductor major al brațului. Gâtul și peretele abdominal Două etichete ies din regiunea toracelui. Sus, sternocleidomastoidul coboară oblic pe partea laterală a gâtului spre stern și spre claviculă. Jos, oblicul extern continuă peretele în jos și medial, dinspre coastele inferioare spre linia albă și pubis. Cine trage încotro Cei trei mușchi mari ai umărului din această figură se împart clar după mișcare. Deltoidul realizează mișcarea de abducție a brațului, în timp ce pectoralul mare și dorsalul mare, de pe fața posterioară (Figura 9.4), realizează mișcarea de adducție a brațului. Dințatul anterior lucrează altfel: nu mișcă humerusul, ci scapula, trăgând-o spre exterior.

Fig. 9.4 · Biologie Barron's · p. 197
Cei mai importanți mușchi ai feței posterioare a umăruluiFigura este un detaliu al spatelui și al umărului văzute din spate, decupat din vederea de ansamblu (Figura 9.2). Ca și în cazul toracelui, desenul este disecat asimetric: pe o jumătate trapezul și deltoidul sunt păstrați, pe cealaltă au fost îndepărtați pentru a lăsa la vedere mușchii de dedesubt. Coloana vertebrală, desenată pe mijloc, este linia de la care se măsoară toate pozițiile. Mușchii care mișcă brațul Deltoidul este mușchiul care acoperă umărul. Are originea pe acromion și pe claviculă și inserția pe humerus. Este abductor major al brațului și produce de asemenea flexia și extensia lui. Atunci când acționează ca abductor, antagoniștii lui sunt pectoralul mare și dorsalul mare. Marele dorsal acoperă partea de jos a spatelui. Are originea pe apofizele mai multor vertebre toracice și inserția, printr-un tendon lat, pe creasta tuberculului mic. Extinde brațul și acționează ca antagonist al pectoralului mare. Rotundul mic și rotundul mare apar sub marginea deltoidului, ca două benzi întinse de la marginea scapulei spre humerus. Mușchii care mișcă scapula Mișcările umărului implică și mișcările scapulei, osul numit și omoplat, iar mai mulți mușchi se atașează de ea. Trapezul este cel mai întins dintre ei: lat și triunghiular, cu originea pe osul occipital și pe apofizele mai multor vertebre și cu inserția pe claviculă și pe scapulă. Mobilizează centura pectorală și întreaga extremitate superioară și rotește scapula astfel încât, în timpul abducției brațului, fosa glenoidă să se orienteze în sus. Sub el, pe jumătatea disecată, se văd ridicătorul scapulei, care coboară dinspre regiunea cervicală spre unghiul superior al scapulei, și romboidul mare, întins între coloana vertebrală și marginea medială a scapulei. Extensorii capului Două etichete din partea de sus numesc mușchi ai cefei, nu ai umărului. Spleniusul capului este cel mai important extensor al capului, iar semispinalul capului îl asistă. Amândoi își au originea pe vertebrele superioare și inserția pe osul occipital sau temporal. Alături de mușchiul longissimus, ei sunt și mușchi ai gâtului, asociați capului.

Fig. 9.5 · Biologie Barron's · p. 199
Mușchii anteriori ai umărului și brațuluiFigura prezintă mușchii de pe fața anterioară a umărului și a brațului drept, de la umăr (sus) până la cot (jos). În stânga desenului se află partea laterală a membrului, rotunjită de deltoid, iar în dreapta, lângă braț, se vede scapula, cu marginea ei medială. Urmărește fiecare mușchi de la un capăt la altul. Capătul prins de un os relativ fix, mai apropiat de linia mediană a corpului, este originea, iar cel prins de osul pe care mușchiul îl mobilizează, mai îndepărtat de linia mediană, este inserția. Oasele din desen Pe lângă mușchi, desenul arată cele două oase ale centurii pectorale. Clavicula, un os în formă de tijă, traversează partea de sus a figurii și atașează scapula de partea superioară a sternului, care nu apare în desen. Scapula, numită și omoplat, este osul mare, triunghiular, din dreapta brațului, iar fața ei anterioară este acoperită de subscapular. Latura ei dinspre linia mediană a corpului este marginea medială. Pe fața posterioară, scapula are o porțiune osoasă, spina scapulei, care se continuă cu acromionul (proeminența umărului) și cu apofiza coracoidă, ambele arii de inserție musculară. Capătul ei lateral, îngust, formează fosa glenoidă, cavitatea prin care scapula se articulează cu humerusul, osul brațului. Mușchii care se inseră pe claviculă și pe scapulă leagă membrul superior de scheletul axial. Reperele osoase pe care se prind acești mușchi sunt desenate în Figura 7.9. Mușchii umărului Mișcările umărului implică și mișcările scapulei, de care se prind mai mulți mușchi. În figură apar trei dintre ei: Trapezul este un mușchi lat, triunghiular, al spatelui, așa că din față se vede doar porțiunea lui care coboară dinspre gât spre claviculă. Își are originea pe osul occipital și pe vertebrele cervicale și toracice și se inseră pe claviculă și pe scapulă (spina și acromionul). Mobilizează centura pectorală și întreaga extremitate superioară și rotește scapula astfel încât, în timpul abducției brațului, fosa glenoidă să se orienteze în sus (elevație). Este inervat de nervul accesor și de câțiva nervi cervicali. Deltoidul este mușchiul care acoperă umărul. Pornește de pe claviculă și de pe scapulă (spina și acromionul) și se inseră pe tuberozitatea deltoidă, o rugozitate în formă de „V” aflată aproape de mijlocul humerusului. De aceea, în desen, se îngustează în jos, spre mijlocul brațului. Este un abductor major al brațului și produce, de asemenea, flexia și extensia brațului. Este inervat de nervul axilar. Subscapularul acoperă fața anterioară a scapulei, iar fibrele lui se strâng dinspre marginea medială spre umăr. Trapezul și deltoidul se văd și din spate, în Figura 9.4. Mușchii brațului Mușchii brațului produc atât mișcări ale umărului, cât și ale antebrațului. Manualul descrie patru, iar cei trei de pe fața anterioară apar în figură: Bicepsul brahial este cel mai superficial mușchi al brațului și îi ocupă fața anterioară. La origine are două capete, ambele pe scapulă: capul lung, cel lateral, de lângă deltoid, și capul scurt, cel medial. Tabelul 9.2 trece ca origini tuberculul supraglenoidal și apofiza coracoidă, fără să precizeze de pe care pornește fiecare cap. Mai jos, capetele se unesc, iar mușchiul se inseră pe radius (tuberozitatea proximală) și, în parte, pe țesutul conjunctiv al antebrațului. Are, așadar, două origini și două inserții. Bicepsul mobilizează două articulații. La cot produce flexia antebrațului, apropiind mâna de umăr, și supinația (rotația antebrațului astfel încât palma să fie îndreptată spre anterior). La umăr permite flexia extremității superioare. Este inervat de nervul musculocutanat. Coracobrahialul este localizat anterior, în partea de sus a brațului, lângă capetele bicepsului. Se întinde de la scapulă la humerus și intervine în flexia și adducția brațului. Brahialul rămâne sub biceps, care este cel mai superficial, așa că în desen se vede doar la capătul de jos al brațului, de o parte și de alta a bicepsului, deasupra cotului. Își are originea pe jumătatea distală a feței anterioare a humerusului și se inseră pe tuberozitatea proximală a ulnei. Flectează antebrațul la nivelul cotului și este inervat tot de nervul musculocutanat. Al patrulea mușchi al brațului, tricepsul brahial, este un mușchi voluminos al porțiunii posterioare a brațului, cu inserția pe olecranul ulnei. De aceea nu apare aici, dar îl găsești în Figura 9.2. Agoniști și antagoniști Bicepsul brahial este agonistul (prim motor) al mișcărilor de la nivelul cotului: flectează antebrațul, în timp ce antagonistul lui, tricepsul brahial, realizează extensia. Cât timp agonistul se contractă ca să producă mișcarea, antagonistul se relaxează ca să o permită. La umăr, deltoidul realizează abducția brațului, iar antagoniștii lui, pectoralul mare și dorsalul mare, realizează adducția.

Fig. 9.6 · Biologie Barron's · p. 200
Mușchii antebrațului, ai încheieturii mâinii și ai degetelorFigura arată același antebraț din două direcții: (a) vedere anterioară, cu palma spre noi, și (b) vedere posterioară, cu dosul mâinii spre noi. În ambele panouri, degetul mare și radiusul sunt spre marginea exterioară a figurii, iar degetul mic și ulna spre mijlocul ei. Cel mai simplu mod de a citi figura este să compari cele două fețe: pe cea anterioară stau mai ales flexorii, pe cea posterioară extensorii. De la braț la antebraț Mulți dintre mușchii brațului se continuă pe antebraț, iar figura îi prinde în dreptul cotului. În panoul anterior coboară bicepsul brahial, care la nivelul cotului produce flexia și supinația antebrațului. Lângă el, de o parte și de alta, se vede brahialul, care flectează antebrațul la nivelul cotului. Partea de pe braț a acestor doi mușchi apare în Figura 9.5. În panoul posterior coboară tricepsul brahial, care se inseră pe olecranul ulnei și realizează extensia antebrațului la nivelul cotului. Bicepsul brahial este agonistul mișcărilor de la nivelul cotului, iar tricepsul brahial este antagonistul lui: în timp ce agonistul se contractă pentru a produce mișcarea, antagonistul se relaxează ca să o permită. (a) Vedere anterioară: flexorii și pronatorul Flexorul radial al carpului și flexorul ulnar al carpului realizează flexia la nivelul încheieturii mâinii, la care contribuie și mulți alți mușchi. Flexorul ulnar se vede în ambele panouri, de fiecare dată pe latura dinspre degetul mic. Flexorul superficial al degetelor și flexorul profund al degetelor, marcați în partea de jos a antebrațului, sunt, așa cum le spune numele, flexori ai degetelor. Fac parte dintre mușchii antebrațului ale căror tendoane se întind înspre încheietura mâinii și apoi înspre degete. Pe palmă se văd tendoanele care pornesc spre fiecare deget. Pronatorul rotund, imediat sub cot, produce pronația și flexia antebrațului. Brahioradialul, întins pe marginea laterală, își are originea la marginea laterală a humerusului, se inseră pe suprafața laterală a radiusului și flectează antebrațul la nivelul cotului. Palmarul lung este marcat sus, pe latura medială, imediat sub cot. Manualul nu îl descrie. Mușchii flexori formează o masă musculară, iar o parte dintre ei își au originea pe epicondilul medial al humerusului. Humerusul, osul brațului, apare doar în acest panou, pe partea medială a cotului, cea pe care se află epicondilul medial. Pronația și supinația Pronația este rotația antebrațului astfel încât palma să privească spre posterior, iar supinația este mișcarea opusă, care aduce palma în poziție anatomică, privind spre anterior (le vezi desenate în Figura 6.6). Pronatorul rotund și pronatorul pătrat rotesc antebrațul înspre linia mediană. Supinația o produc bicepsul brahial și supinatorul, care își are originea pe epicondilul lateral al humerusului și inserția în regiunea superioară a radiusului. Pronatorul pătrat și supinatorul nu sunt desenați. (b) Vedere posterioară: extensorii Extensorul radial lung al carpului (în figură, „Extensor lung radial al carpului”) și extensorul ulnar al carpului realizează extensia încheieturii mâinii, alături de extensorul radial scurt al carpului, care nu este desenat, și de alți mușchi. Extensorul degetelor și extensorul degetului mic sunt, după nume, extensori ai degetelor. Pe dosul mâinii se văd tendoanele care pornesc spre fiecare deget. Abductorul lung al policelui, jos, pe latura degetului mare, este după nume un abductor al policelui (degetul mare). Extensorii își au originea în parte pe epicondilul lateral al humerusului. Împreună, flexorii și extensorii încheieturii permit, pe lângă flexie și extensie, și abducția și adducția acesteia. Oasele antebrațului și ale mâinii Oasele se văd doar pe alocuri, printre mușchi (întregi le găsești în Figura 7.9): Radiusul, osul lateral al antebrațului (de partea degetului mare), se vede în ambele panouri la încheietura mâinii. Ulna, osul medial (de partea degetului mic), se vede în panoul anterior la încheietura mâinii, iar în cel posterior la cot, în dreptul olecranului. Oasele carpiene sunt 8, așezate în două rânduri a câte patru. Dimensiunile lor mici și articulațiile dintre ele dau încheieturii o mare flexibilitate. Oasele metacarpiene sunt 5, numerotate de la 1 la 5, la nivelul palmei. Falangele sunt oasele degetelor: degetul mare are două, iar fiecare dintre celelalte degete are 3. Mâna și degetele Mâna, inclusiv degetele, poate executa mișcări de flexie, extensie, adducție și abducție. Mișcarea degetelor este realizată de mai mulți flexori și extensori, iar abducția degetelor este permisă de mușchii interosoși dorsali, care nu sunt desenați. La mișcările fiecărui deget contribuie și tendoanele mușchilor lungi ai antebrațului, care se inseră pe degete și sunt acoperite de tecile sinoviale. La baza policelui există niște mușchi scurți ce îi permit acestuia să atingă vârfurile fiecăruia dintre celelalte degete, proprietate numită opozabilitate, caracteristică omului. Degetul mic are și el mușchi scurți, care adâncesc palma astfel încât policele și degetul mic să se poată atinge.
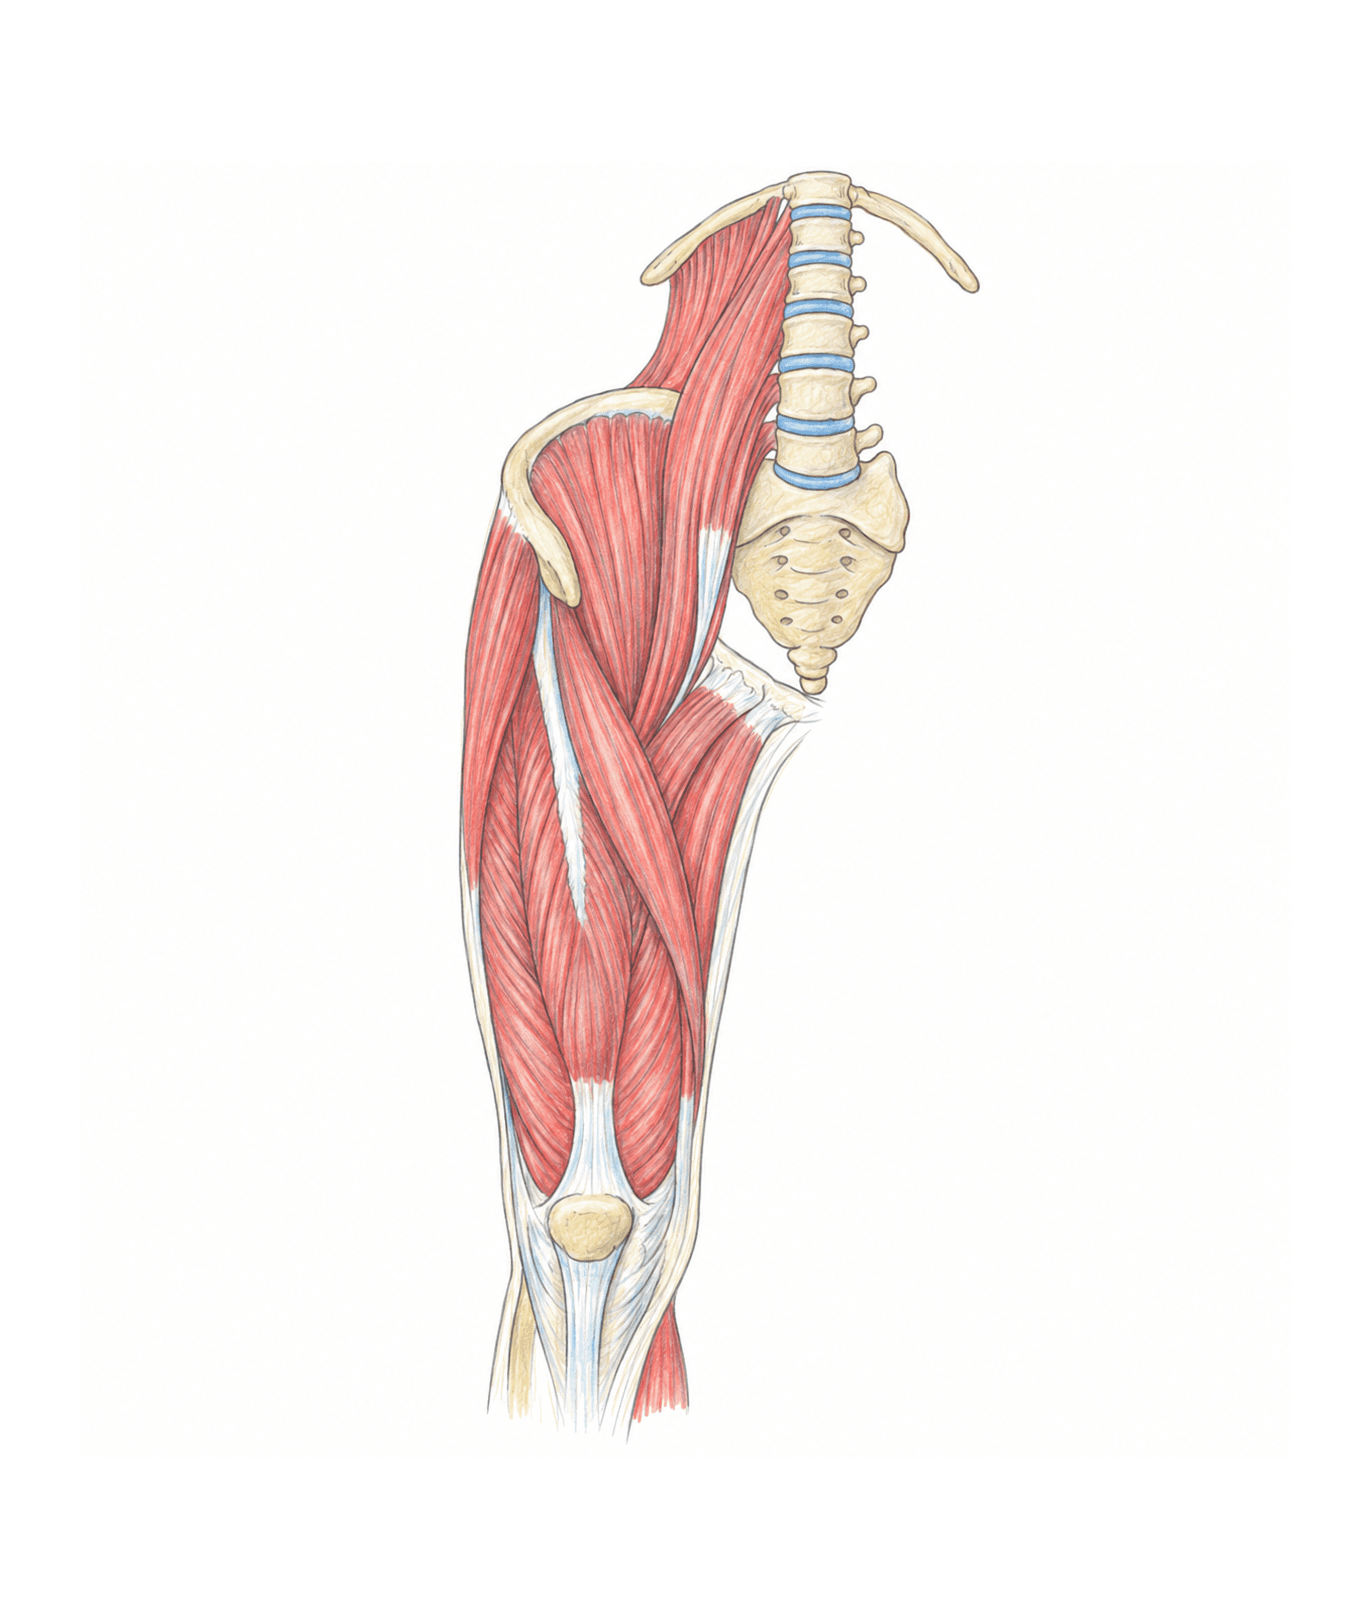
Fig. 9.7 · Biologie Barron's · p. 201
Mușchii anteriori ai pelvisului și ai coapseiFigura arată, din față, legătura dintre scheletul axial și coapsă: partea de jos a coloanei, pelvisul și mușchii care coboară de pe ele până la genunchi. Manualul o așază alături de vederea din spate a aceleiași coapse (Figura 9.8), așa încât cele două se citesc împreună. Reperele osoase desenate în partea de sus, vertebra toracică XII, coasta XII, vertebra lombară V, creasta iliacă și spina iliacă antero-superioară, nu sunt decorative: ele sunt exact locurile din care pornesc mușchii desenați mai jos. Legătura cu trunchiul Spre deosebire de extremitatea superioară, extremitatea inferioară a corpului este unită de trunchi printr-un număr mai mic de mușchi. Cel mai important dintre ei este iliopsoasul, numele dat sub un singur termen mușchiului psoas mare și mușchiului iliac. Psoasul mare își are originea pe corpurile vertebrelor lombare, apoi trece prin pelvis pentru a ajunge la nivelul coapsei, unde se inseră pe trohanterul mic al femurului. Mușchiul iliac pornește din fosa iliacă a ilionului și se inseră în același loc. Împreună produc flexia coapsei la nivelul articulației șoldului, iar psoasul mare flectează și trunchiul. Cvadricepsul femural Fața anterioară a coapsei este ocupată aproape în întregime de grupul muscular cvadriceps femural. Cei patru mușchi ai lui sunt dreptul femural, vastul lateral, vastul medial și vastul intermediar, ultimul acoperit de ceilalți și nemarcat în desen. Dreptul femural își are originea la nivelul ilionului, iar ceilalți trei pe femur. Fibrele aparținând celor patru mușchi converg și se inseră la nivelul patelei și al tuberozității tibiale, prin tendonul patelar, continuat în jos de ligamentul patelar. Toți patru sunt extensori ai gambei. Croitorul și adductorii Croitorul este mușchiul lung și îngust care traversează oblic coapsa, de la spina iliacă antero-superioară la suprafața medială a tibiei. Se întinde între articulația șoldului și cea a genunchiului și determină mișcarea ambelor articulații: flectează coapsa și rotește gamba medial. Poartă și numele de sartorius, pentru că permite încrucișarea picioarelor. Pe fața medială a coapsei se află grupul adductorilor, format din adductorul mare, adductorul scurt și adductorul lung. Toți își au originea pe osul pubis și inserția la nivelul femurului și produc adducția coapsei. De reținut Mușchiul cvadriceps produce extensia gambei, în timp ce mușchii ischiogambieri, desenați în figura alăturată, flectează gamba. Cele două grupe sunt antagoniste la nivelul genunchiului.
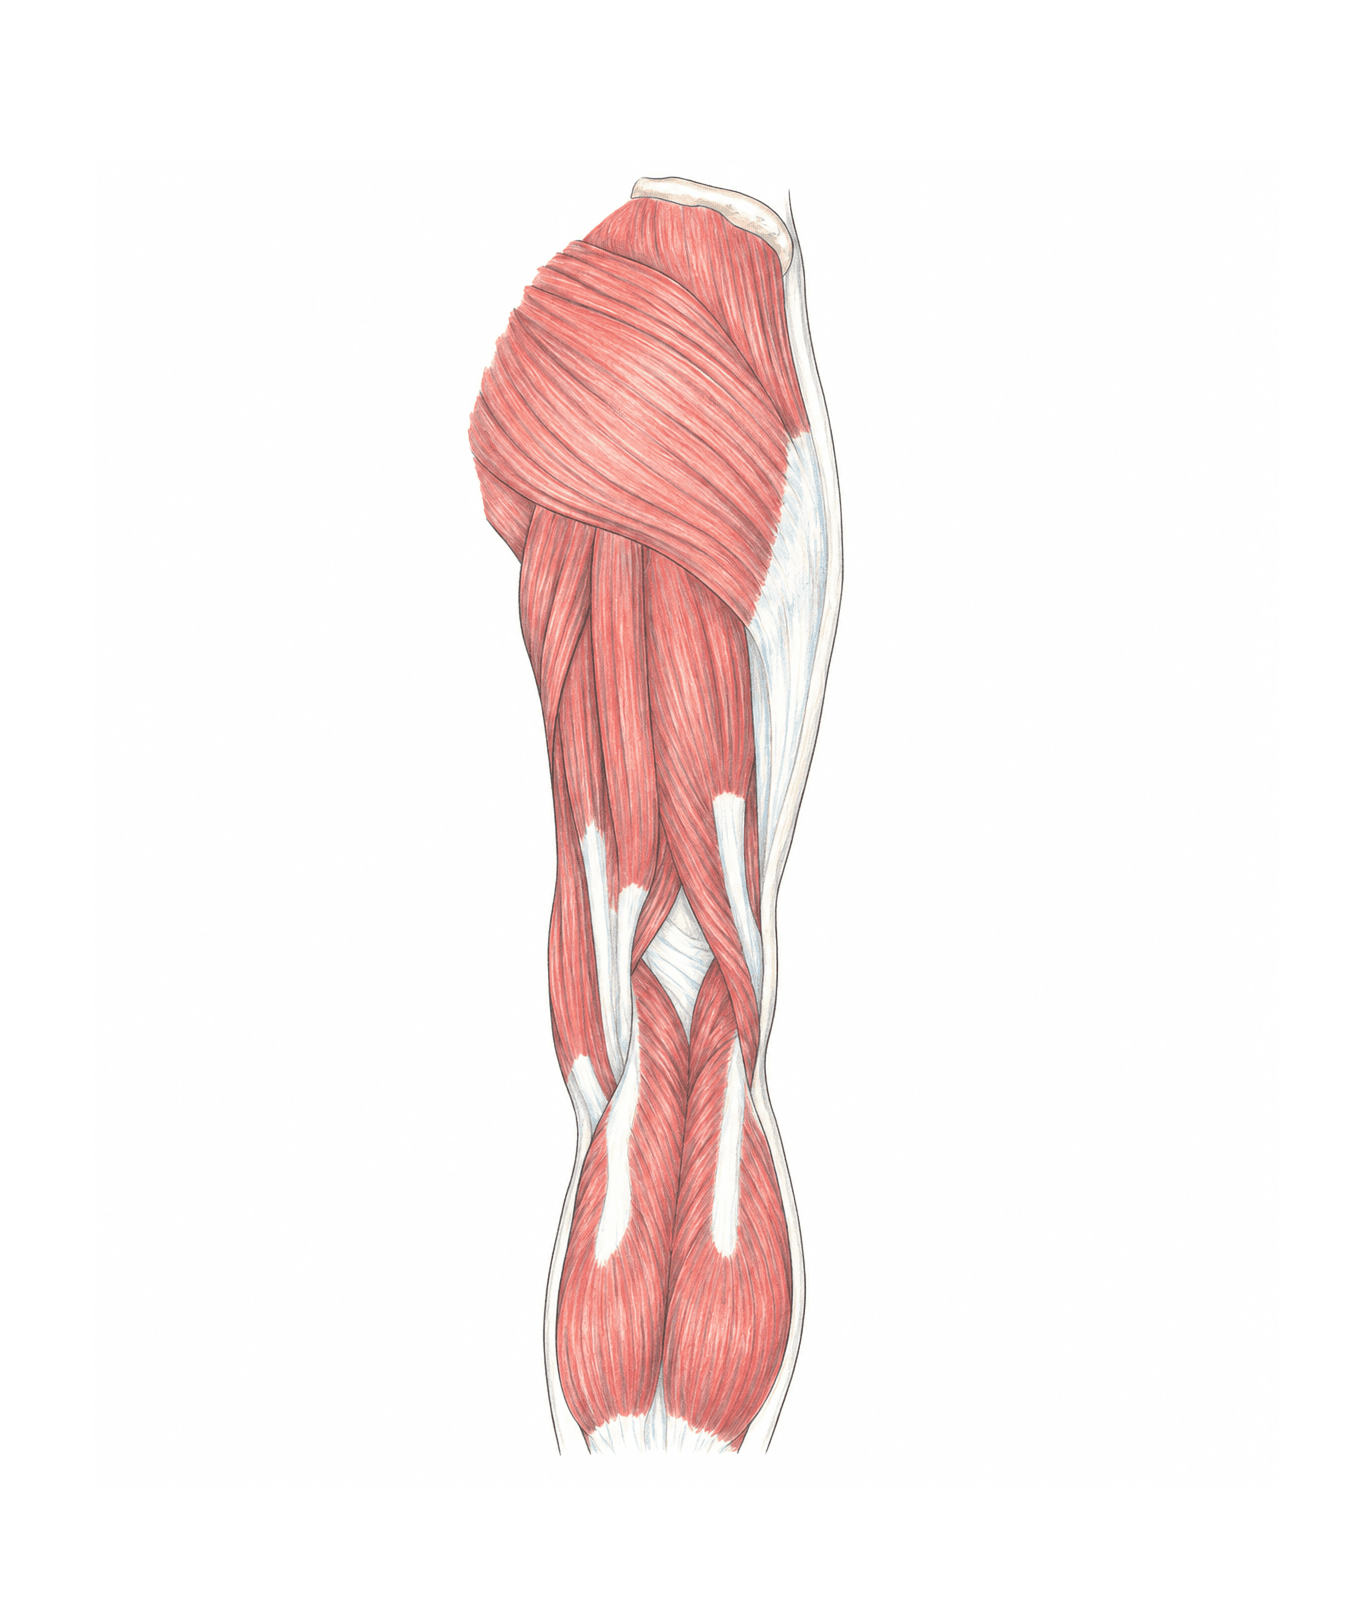
Fig. 9.8 · Biologie Barron's · p. 201
Mușchii posteriori ai coapsei drepteFigura arată coapsa dreaptă văzută din spate, de la creasta iliacă până la molet, și este perechea vederii anterioare de pe aceeași pagină (Figura 9.7). Marginea din stânga a desenului este cea dinspre linia mediană a corpului, așa că acolo se află mușchii mediali, iar structurile laterale se văd pe marginea din dreapta. Desenul pune alături, pe același membru, cele trei grupe care mișcă șoldul și genunchiul. Mușchii feselor Fesierul mare este cel mai voluminos mușchi al fesei și ocupă partea de sus a desenului. Își are originea pe sacru, pe coccis și de-a lungul suprafeței posterioare a ilionului și se inseră pe femur, realizând extensia membrului inferior în articulația șoldului. Între creasta iliacă și marginea lui superioară apare fesierul mijlociu, cu originea pe suprafața laterală a ilionului și inserția pe trohanterul mare al femurului, care abduce coapsa și o rotește medial. Al treilea mușchi al grupului, fesierul mic, are aceeași origine și inserție ca fesierul mijlociu și nu se vede în desen. Mușchii ischiogambieri Sunt mușchii care ocupă fața posterioară a coapsei și, toți trei, pleacă de la ischion și ajung sub genunchi, trecând astfel peste două articulații. Semimembranosul are originea pe tuberozitatea ischiadică și se inseră la capătul proximal al tibiei. Extinde coapsa și flectează gamba. Semitendinosul este un mușchi lung, asemănător unei benzi, între ischion și capătul proximal al tibiei. Este denumit astfel pentru că la jumătatea coapsei devine tendinos și se continuă apoi sub forma unui tendon lung, asemănător unei corzi. Flectează gamba, o rotește înspre medial și extinde coapsa. Bicepsul femural are două capete, marcate separat în figură. Capul lung are originea pe tuberozitatea ischiadică, iar capul scurt pe corpul femurului. Se inseră pe capul fibulei, extinde coapsa, flectează și rotește lateral gamba. Restul coapsei Pe marginea dinspre linia mediană se văd mușchii compartimentului medial: gracilisul, adductorul mare din grupul adductorilor și marginea croitorului, care vine dinspre fața anterioară. Pe marginea opusă coboară tensorul fasciei late, iar sub el se ghicește vastul lateral acoperit de fascie, adică mușchiul cvadricepsului văzut prin fascia care îl îmbracă. Jos de tot, coapsa se continuă cu gastrocnemianul. De reținut Mușchiul cvadriceps, de pe fața anterioară, produce extensia gambei, în timp ce mușchii ischiogambieri, de pe fața din această figură, flectează gamba.
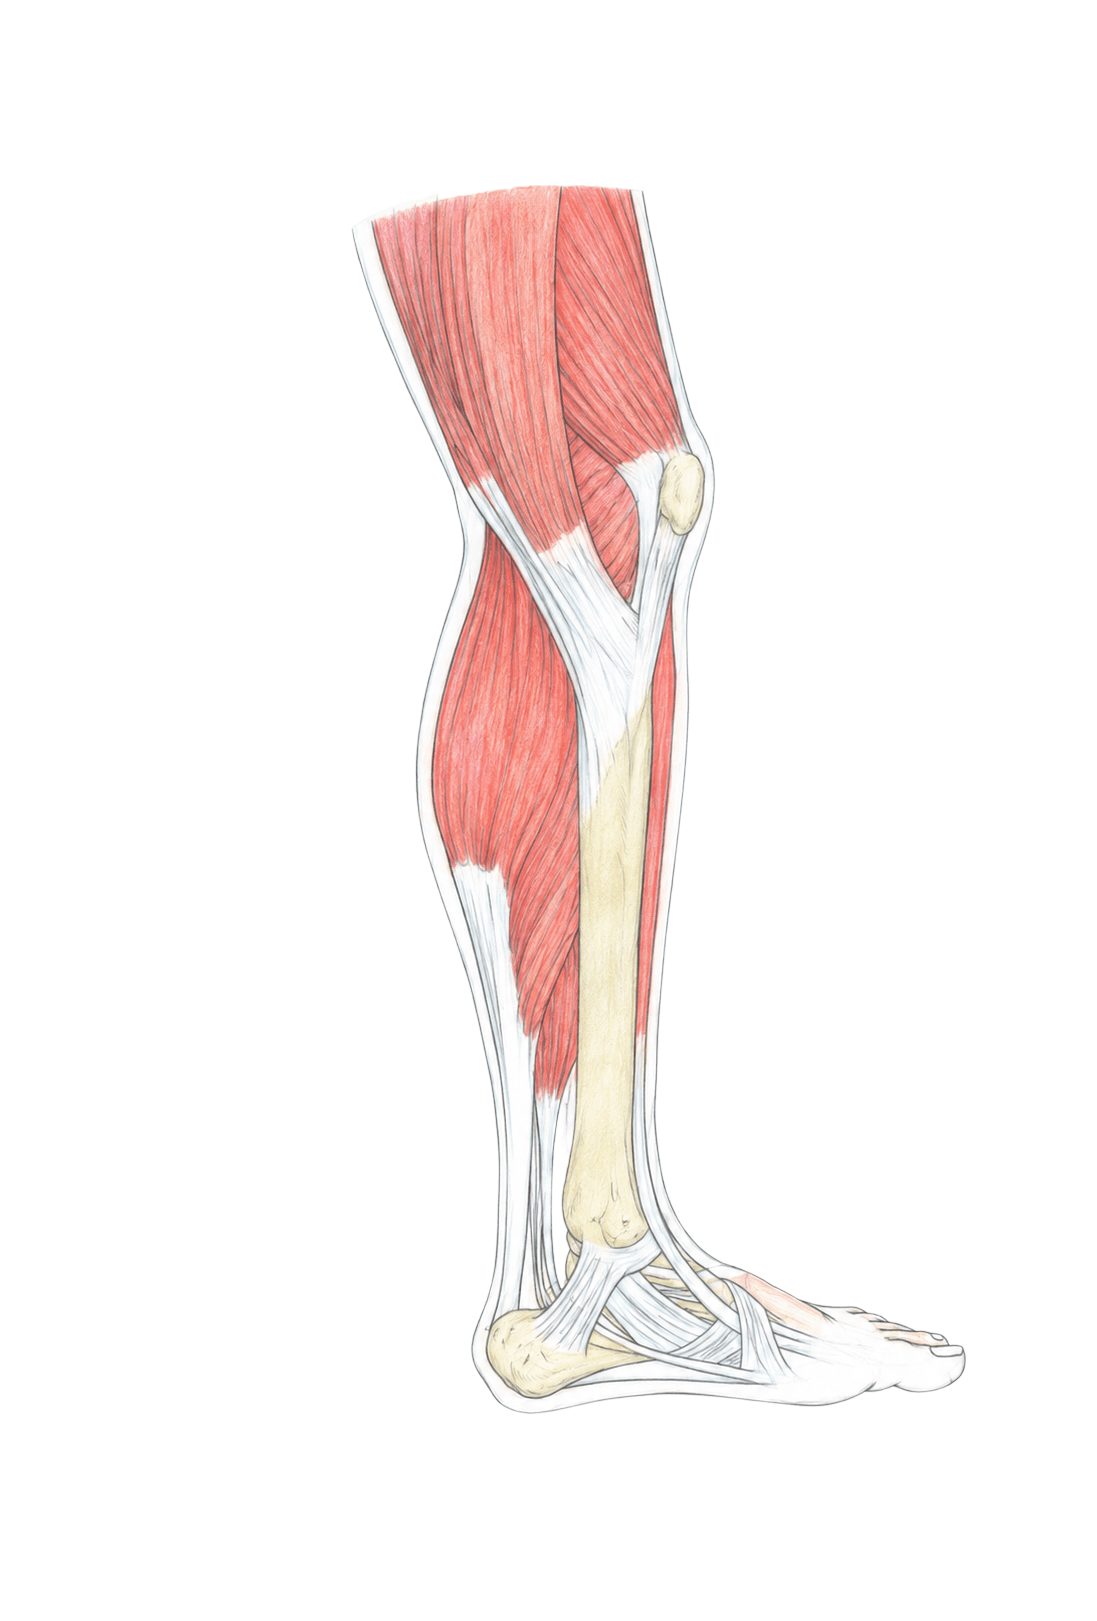
Fig. 9.9 · Biologie Barron's · p. 203
Mușchii feței mediale a gambei drepteFigura privește piciorul drept dinspre linia mediană a corpului, adică din partea dinspre celălalt picior, și cuprinde partea de jos a coapsei, genunchiul, gamba și laba piciorului. În desen, fața posterioară este spre stânga, cu mușchii moletului și cu tendonul ahilian, iar fața anterioară spre dreapta, cu tibia și cu tibialul anterior, în aceeași parte în care privesc degetele piciorului. Rostul acestei vederi este să arate legătura dintre coapsă și gambă: se vede unde se termină mușchii care vin de sus și unde încep cei care mișcă piciorul. Ce vine dinspre coapsă Patru mușchi ai coapsei ajung în desen până sub genunchi. Croitorul și gracilisul coboară spre suprafața medială a tibiei, iar semimembranosul și semitendinosul, doi dintre mușchii ischiogambieri, ajung la capătul proximal al tibiei (Figura 9.8). Vastul medial, din grupul cvadricepsului, se oprește mai sus și își trimite fibrele spre patelă, de unde ligamentul patelar coboară mai departe spre tibie. Mușchii gambei Cei mai importanți mușchi ai gambei își au originea pe oasele gambei, iar mulți dintre ei se inseră pe oasele piciorului. Tibialul anterior se află pe fața anterioară a gambei, în imediata vecinătate a tibiei. Produce inversia piciorului, adică întoarce talpa înăuntru, și flectează dorsal piciorul, ridicându-l în sus. Gastrocnemianul se află pe fața posterioară, cu originea pe condilii medial și lateral ai femurului. Se arcuiește peste articulațiile genunchiului și gleznei, iar principala lui acțiune este flexia plantară. Flectează de asemenea gamba. Solearul se află sub gastrocnemian, cu originea pe tibie și pe fibulă. Permite și el flexia plantară a piciorului. Flexorul lung al degetelor și tibialul posterior sunt doi mușchi mai profunzi, ale căror tendoane coboară pe fața medială a gleznei, pe sub retinaculul flexorilor, spre talpa piciorului. Tendonul comun Perechea de mușchi constituită din gastrocnemian și solear este denumită triceps sural. Tricepsul sural dă forma moletului și se inseră prin tendonul ahilian comun pe osul calcaneu, exact așa cum se observă în această figură. Manualul îi mai spune tendonului și calcanean. Ce se întâmplă la gleznă La nivelul articulației gleznei se produc două mișcări importante, flexia și extensia. De asemenea, au loc inversia și eversia, mișcări laterale care se produc îndeosebi între oasele tarsiene. Mușchii piciorului au o dispoziție similară cu a mușchilor mâinii: există mulți mușchi mici pe suprafața plantară, iar tendoanele sunt așezate în rânduri, fiecare deget prezentând tendoane ce se întind de-a lungul feței plantare.

Fig. 9.10 · Biologie Barron's · p. 206
Cei mai importanți mușchi ai capuluiMușchii capului realizează mișcările feței și permit masticația și mișcările oculare. Figura îi arată pe cei mai importanți pe un cap văzut din profil, cu fața spre dreapta, desenat astfel încât să se vadă mușchii de sub piele. Mușchii din desen formează trei grupe: doi dintre cei patru mușchi ai masticației, cei șase mușchi ai mimicii și, pe gât, sternocleidomastoidul. Mai mulți dintre ei (frontalul, orbicularul ochiului, zigomaticul, orbicularul gurii, maseterul și sternocleidomastoidul) apar, la scară mică, și pe imaginea de ansamblu a corpului din Figura 9.1. Ce au aparte mușchii feței Mușchii feței diferă de ceilalți mușchi ai corpului prin faptul că mobilizează sarcini relativ mici. De aceea, mulți dintre ei nu au nevoie de tendoane puternice, ca mușchii extremităților. În plus, mușchii faciali există în fascia superficială: își au originea în această fascie sau pe oasele feței și se inseră frecvent pe piele sau în țesutul conjunctiv subiacent. Mușchii masticației Patru perechi de mușchi puternici mișcă mandibula și realizează masticația. Toți se inseră pe mandibulă, iar în figură se văd primii doi: Temporalul acoperă ca un evantai partea laterală a craniului, deasupra urechii. Își are originea pe osul temporal și poate fi palpat la nivelul tâmplei atunci când gura este încleștată. Contribuie la închiderea gurii. Maseterul ocupă partea din spate a obrazului, între ureche și buccinator, și coboară până la marginea mandibulei. Își are originea pe arcul zigomatic al temporalului și pe osul zigomatic și contribuie și el la închiderea gurii. Ceilalți doi nu sunt desenați. Pterigoidul medial, care se inseră pe suprafața internă a ramurii mandibulei, acționează asemănător cu primii doi. Pterigoidul lateral mișcă mandibula în sens lateral și produce protruzia ei, ajutând la deschiderea gurii. Mușchii mimicii Șase mușchi joacă un rol esențial în realizarea expresiilor faciale (mimicii), și toți șase apar în figură. Unii sunt mușchi pereche, alții neperechi. Sunt în general mușchi foarte subțiri și se numesc mușchi cutanați, datorită fixării lor la piele și poziției lor față de aceasta. Majoritatea își au originea pe suprafața craniului și pe fascie. Epicranianul are două porțiuni: frontalul, pe frunte, și occipitalul, pe partea din spate a craniului. Între ele, peste creștet, se întinde aponevroza epicraniană. Aponevrozele sunt, după manual, tendoane plate și subțiri, sub forma unor teci. Mușchiul epicranian ridică sprânceana. Orbicularul ochiului, inelul de fibre din jurul ochiului, închide pleoapa. Zigomaticul coboară oblic, de sub ochi, spre colțul gurii. Când se contractă, colțul gurii este tracționat în sus, cum se întâmplă în cazul unui zâmbet. Buccinatorul ocupă obrazul, între maseter și orbicularul gurii. Orbicularul gurii înconjoară orificiul cavității orale și închide buzele, producând țuguierea acestora. Platisma se întinde ca o foaie subțire peste gât, sub mandibulă. Când se contractă, unghiul gurii este tracționat în jos, deci în sens opus față de zigomatic. Sternocleidomastoidul și mișcările capului În partea de jos a desenului, sternocleidomastoidul coboară oblic, din spatele urechii spre partea din față a gâtului. Este un mușchi foarte important al gâtului, localizat pe partea lui laterală. Are originea pe stern și pe suprafața superioară a claviculei și se inseră pe apofiza mastoidă a osului temporal. Înclină capul lateral și înspre torace, iar perechea de sternocleidomastoizi, acționând împreună, produce flexia capului. Mișcările cele mai importante ale capului sunt flexia, extensia și rotația, prin care se indică negația. Cei mai importanți flexori ai capului sunt mușchiul lung al gâtului, mușchiul lung al capului și mușchiul drept anterior al capului. Cei mai importanți extensori sunt mușchiul splenius al capului, asistat de semispinalul capului și de mușchiul longissimus. Niciunul dintre aceștia nu este numit în figură, dar spleniusul și semispinalul capului apar în Figura 9.4. Orbicularul ochiului nu mișcă globul ocular Imediat după figură, manualul descrie și mușchii ochiului, care nu apar în desen. Mușchii extrinseci mișcă globul ocular, iar printre ei se află cei patru mușchi drepți. Mușchii intrinseci, ca mușchiul ciliar, modifică forma cristalinului și produc dilatarea și constricția pupilei. Orbicularul ochiului din figură este altceva: un mușchi al mimicii, care închide pleoapa.
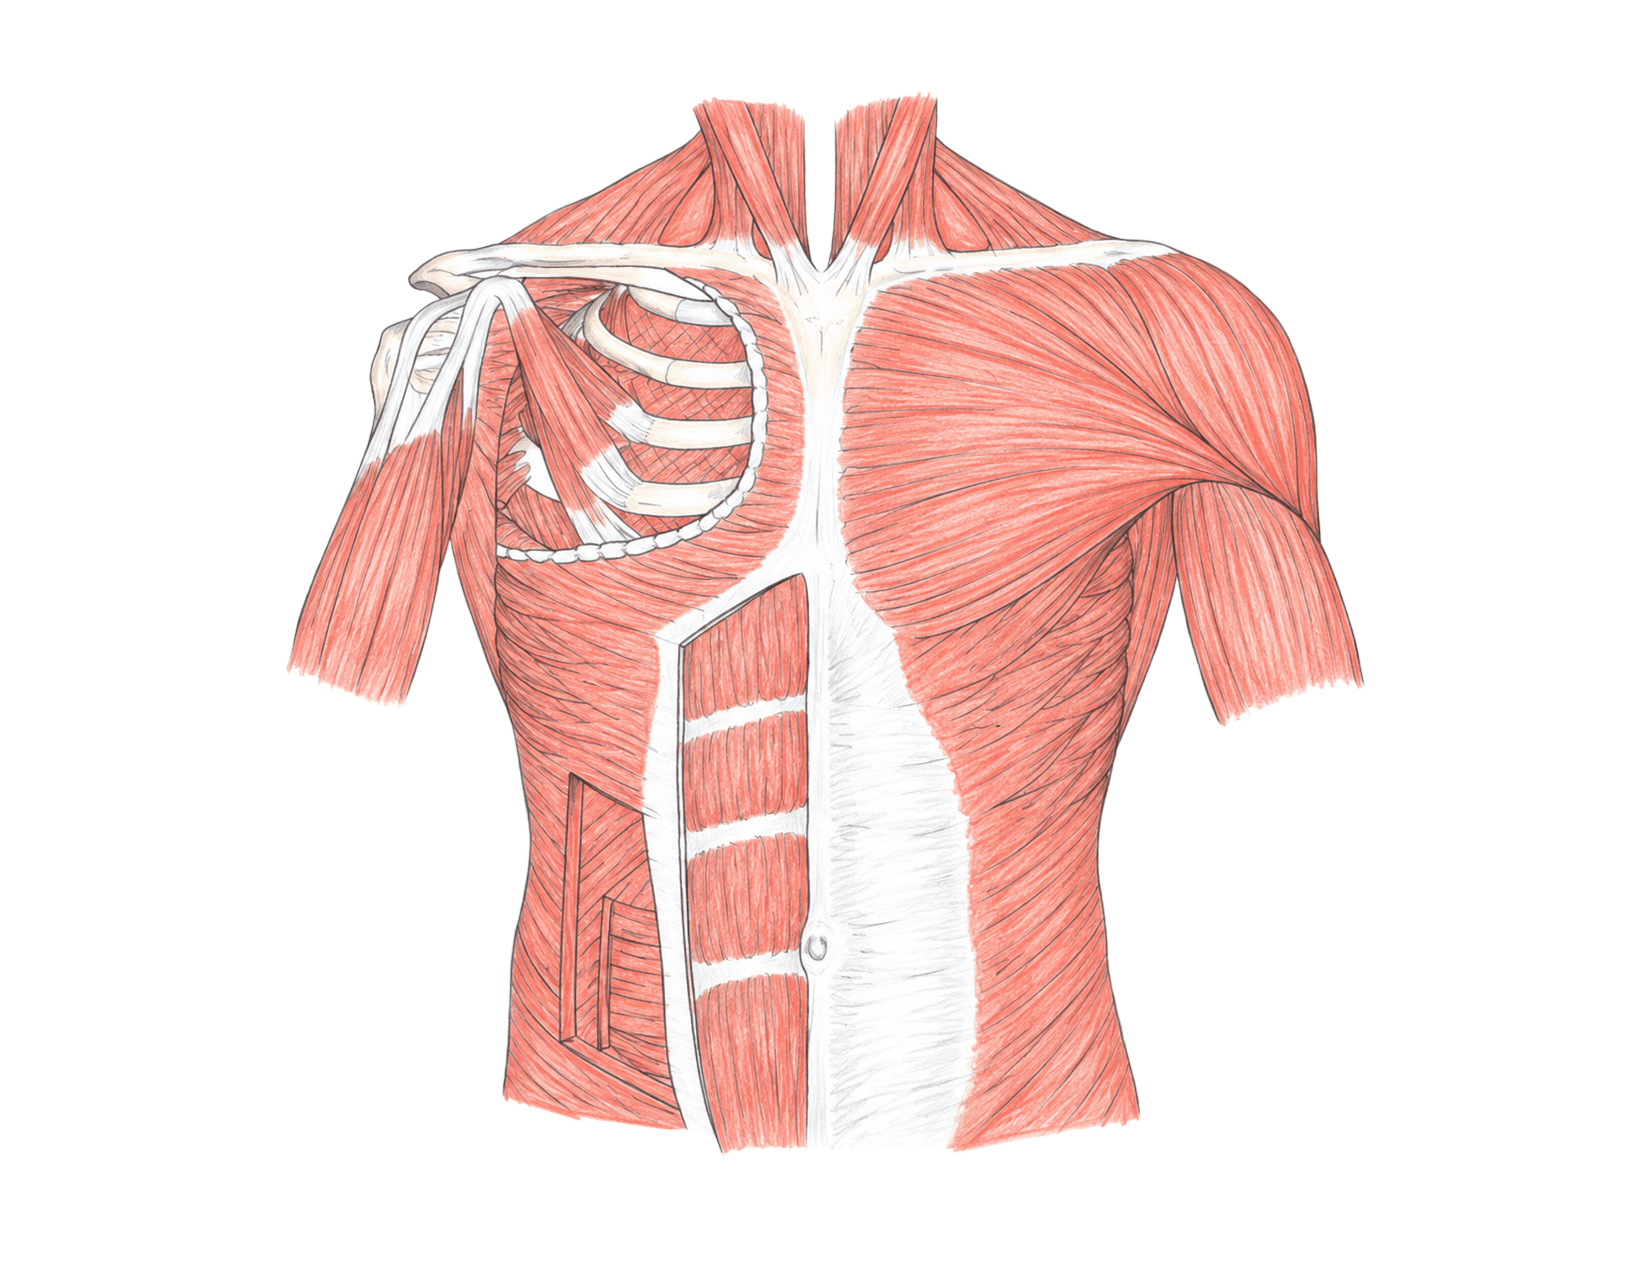
Fig. 9.11 · Biologie Barron's · p. 207
Cei mai importanți mușchi ai peretelui abdominalPeretele anterior al cavității abdominale este format dintr-o zonă extinsă ce nu conține oase protectoare. În locul lor se găsesc straturi întinse și subțiri de mușchi, care ajută la conținerea viscerelor abdominale și la flexia trunchiului. Figura arată exact acest lucru: pe o jumătate a desenului straturile au fost desfăcute unul câte unul, ca niște ferestre tăiate din ce în ce mai adânc, iar pe cealaltă jumătate peretele este lăsat întreg, cu oblicul extern și aponevroza lui. Linia mediană Pe mijloc se întinde linia albă, de la apofiza xifoidă la simfiza pubiană. Este constituită în principal din țesut conjunctiv, fără mușchi, nervi sau vase mari de sânge, și este locul în care se întâlnesc aponevrozele mușchilor lați ai abdomenului. De o parte și de alta a ei se află dreptul abdominal, un mușchi lung, lat, asemănător unei benzi. El leagă oasele pubiene de coaste și de stern și, împreună cu alți mușchi abdominali, comprimă cavitatea abdominală, ajutând și la flexia coloanei vertebrale. Originea lui este pe creasta pubiană, iar inserția pe apofiza xifoidă. Cele trei straturi laterale Lateral de dreptul abdominal se află trei mușchi suprapuși, iar figura îi arată în ordinea în care i-ai întâlni tăind dinspre suprafață spre profunzime. Oblicul extern este superficial și extins, asemănător unei fâșii, și pornește de la ultimele opt coaste inferioare, întinzându-se în jos și medial. Se inseră printr-o aponevroză pe linia albă și pe pubis și comprimă peretele abdominal. Oblicul intern constituie stratul mijlociu. Fibrele lui au o direcție aproape perpendiculară față de cele ale oblicului extern, diferență vizibilă în desen. Are originea pe creasta iliacă și inserția pe cartilajele coastelor inferioare, dar și pe linia albă și pe creasta pubiană. Transversul abdominal este cel mai profund dintre cei trei. Are originea pe coastele inferioare și pe apofizele vertebrelor lombare și inserția pe linia albă și pe creasta pubiană. Funcția lui este de a contracta peretele abdominal. Legătura cu respirația Transversul abdominal contribuie la expirația forțată prin împingerea diafragmei în sus. De altfel, în timpul expirației sunt implicați toți mușchii din această figură: oblicul intern, oblicul extern, transversul abdominal și dreptul abdominal. Cu toate acestea, expirația este în general un proces pasiv, ce urmează relaxării mușchilor inspiratori.

Fig. 9.12 · Biologie Barron's · p. 208
Mușchii profunzi ai pelvisului femininFigura arată pelvisul feminin privit de sus, ca și cum am scoate organele pelviene și ne-am uita în bazin, spre podeaua lui. Partea posterioară a corpului este sus, unde se află sacrul, iar partea anterioară este jos, la simfiza pubiană. Mușchii pelvisului contribuie la formarea pereților și a planșeului pelvian, iar desenul arată atât pereții, de jur împrejur, cât și planșeul, la mijloc, străbătut pe linia mediană de trei canale. Oasele bazinului Pe margine se văd oasele de care se prind mușchii. Fiecare os coxal este format prin fuziunea a trei oase: ilion, ischion și pubis. Ilionul este partea superioară, lărgită, a pelvisului. El formează aripile late din stânga și din dreapta desenului. Sacrul se află în spate, pe linia mediană. Ilionul se articulează cu el în articulația sacroiliacă, câte una de fiecare parte. Coccisul, ultima porțiune a coloanei vertebrale, se vede pe linia mediană, sub sacru. Spina ischiadică este protuberanța ascuțită a ischionului care iese în relief pe peretele lateral. Simfiza pubiană este articulația în care oasele pubiene fuzionează pe linia mediană, în partea anterioară. Pentru că pelvisul din figură este feminin, câteva dintre aceste repere au particularități față de bărbat: sacrul este mai larg, coccisul este mult mai flexibil, distanțele dintre spinele ischiadice sunt mai mari, iar simfiza pubiană este flexibilă și permite creșterea diametrelor pelvisului în timpul nașterii. Oasele centurii pelviene sunt prezentate în Figura 7.10. Planșeul pelvian: ridicătorul anal și coccigianul Dintre mușchii care formează planșeul pelvian, manualul îi evidențiază pe doi dintre cei mai importanți: ridicătorul anal și coccigianul. Amândoi susțin organele pelviene. Mușchiul ridicător anal este un mușchi pereche, cu originea pe pereții pelvisului, la nivelul pubisului și al ilionului. În desen se vede de o parte și de alta a liniei mediane și are două porțiuni, ale căror nume amintesc de aceste origini: Mușchiul iliococcigian, porțiunea laterală, pornește de pe peretele lateral al bazinului. Mușchiul pubococcigian, porțiunea medială, vine din partea anterioară, dinspre pubis, și trece pe lângă uretră, vagin și canalul anal. Mușchiul de pe o parte se inseră pe cel de pe partea opusă, formând pe linia mediană un rafeu, în care fibrele musculare se împletesc. Posterior, rafeul se termină sub forma unei bandelete care se inseră pe coccis. Manualul trimite la figură exact în acest punct: bandeleta este fâșia de pe linia mediană dintre canalul anal și coccis, spre care converg fibrele ridicătorului anal din ambele părți. Mușchiul coccigian, etichetat în figură mușchiul ischiococcigian, este un mușchi mic, în formă de evantai, care asistă ridicătorul anal. Are originea pe spina ischionului și se inseră pe coccis, ajutând la susținerea organelor pelviene. În desen, evantaiul lui ocupă partea posterioară a planșeului, între spina ischiadică și coccis. Mușchii de pe pereții bazinului Alți doi mușchi etichetați sunt desenați pe pereții bazinului, iar manualul nu îi descrie în text. Mușchiul piriform se află în partea posterioară, lângă sacru, cu fibrele întinse spre peretele lateral. Mușchiul obturator intern se întinde pe peretele lateral, în fața spinei ischiadice, iar imediat lângă el se vede o mică deschidere, canalul obturator. Canalele care străbat planșeul Pe linia mediană, planșeul este străbătut de trei canale, desenate în secțiune. Dinspre coccis spre simfiza pubiană, ele sunt: Canalul anal, unul dintre ultimele segmente ale intestinului gros. Rectul se continuă cu canalul anal, care se deschide la exterior prin anus. Vaginul, un canal fibromuscular de aproximativ 9 cm, care se întinde de la colul uterin la orificiul vaginal. Este adesea numit canalul de naștere. Uretra, tubul care conduce urina de la baza vezicii la exterior. La femei este poziționată ventral față de vagin și are aproximativ 5 cm lungime. În partea anterioară a planșeului, între cele două oase pubiene și chiar în spatele simfizei pubiene, se întinde diafragma urogenitală, o placă pe care o străbate uretra. Deschiderile exterioare ale celor trei canale, orificiul uretral, orificiul vaginal și anusul, se văd din afară în Figura 23.4.
- 10Țesutul nervosPaginile 223 - 235

Fig. 10.1 · Biologie Barron's · p. 225
Cele două componente principale ale sistemului nervos umanFigura arată unde se află, în corp, cele două componente principale ale sistemului nervos. Corpul este desenat din spate, iar sistemul nervos este pus în evidență pe toată întinderea lui: pe linia mediană, structurile sistemului nervos central, iar de o parte și de alta, nervii care ies din măduva spinării și se ramifică spre trunchi și spre membre. Acolada din stânga grupează cele două organe ale sistemului nervos central, iar liniile din dreapta indică nervii periferici. I. Sistemul nervos central (SNC) SNC este compus din encefal și măduva spinării și servește drept centru de control al întregului organism. În desen, acestea sunt cele două structuri așezate pe axul median: encefalul, adăpostit în cutia craniană, și măduva spinării, care coboară din el prin coloana vertebrală. Anumite componente ale SNC integrează informațiile primite și determină reacțiile adecvate. II. Sistemul nervos periferic (SNP) SNP este alcătuit din receptorii aflați în organele de simț și din nervii care asigură comunicarea dintre SNC și organele de simț. În figură, el este tot ce pornește din axul median înspre restul corpului: perechile de nervi care ies din măduva spinării, se ramifică și ajung la trunchi și la membre. SNP conține 12 perechi de nervi cranieni și 31 de perechi de nervi spinali. El informează SNC despre modificarea condițiilor din interiorul organismului și de la suprafața acestuia, iar ulterior transmite răspunsul SNC către mușchi sau glande, care vor ajusta aceste condiții. Cele două sensuri în care circulă informația Nervii desenați aici sunt de două tipuri, după sensul în care merge mesajul: Nervii senzoriali sau aferenți (însemnând „înspre”) aduc mesajele provenite de la receptorii organismului spre SNC. Nervii motori sau eferenți (însemnând „dinspre”) transmit mesajele SNC către mușchi sau către alte organe, care răspund astfel stimulilor. Porțiunile motorii ale SNP sunt subîmpărțite în componenta somatică, care controlează mușchii scheletici, și componenta autonomă (vegetativă), care controlează mușchii involuntari (mușchii netezi și mușchiul cardiac) și glandele. La rândul ei, componenta autonomă are două tipuri de nervi motori: nervii simpatici, care transportă impulsuri către organe și determină reacții la situații de stres, precum reacția „fight or flight” („luptă sau fugi”), și nervii parasimpatici, care asigură o stare relaxată organismului și stimulează digestia.

Fig. 10.2 · Biologie Barron's · p. 226
Neuronii și celulele gliale din sistemul nervos centralFigura pune față în față aceleași tipuri de celule în două regiuni ale sistemului nervos central: în panoul (a), în substanța cenușie a encefalului și a măduvei spinării, iar în panoul (b), în substanța albă. În ambele desene celulele sunt desenate una lângă alta, așa cum stau în țesut, și printre ele trece câte un capilar. Comparându-le, se vede că în substanța cenușie domină corpul celular al neuronului, cu prelungirile lui, pe când în substanța albă apar mai ales prelungiri secționate, unele îmbrăcate în mielină. Cele două tipuri de celule ale sistemului nervos În sistemul nervos există două tipuri unice de celule: neuronii, sau celulele nervoase, care primesc și transmit semnale biochimice, și celulele gliale, care au funcție de suport. Numărul celulelor gliale din sistemul nervos este aproximativ de 10 ori mai mare decât al neuronilor. Celulele gliale mai poartă și numele generic de nevroglii. (a) Substanța cenușie Neuronul este celula cea mai mare din desen, în dreapta, cu numeroase prelungiri pornind din corpul celular. El este unitatea structurală și funcțională a sistemului nervos, iar structura lui amănunțită este în Figura 10.3. Astrocitul are prelungiri citoplasmatice alungite, ce îi conferă o formă stelată. Prelungirile lui se lipesc de capilar: astrocitele contribuie la formarea barierei hematoencefalice (sânge-encefal), care previne sau încetinește accesul substanțelor nedorite în țesutul cerebral, și ajută și la izolarea țesutului nervos lezat. Microglia este o celulă glială mică, dispersată în encefal și în măduva spinării, desenată aici în stânga, cu ramificații fine. Aceste celule acționează în cazul inflamațiilor sau al leziunilor, devenind mobile și fagocitând microorganismele care au invadat țesutul nervos. Oligodendrocitul, desenat jos, își înfășoară prelungirile în jurul prelungirilor neuronilor, formând teci alcătuite dintr-un material lipidic numit mielină. Capilarul este vasul care străbate țesutul printre celule, cel de care astrocitele își lipesc prelungirile. (b) Substanța albă Aici sunt desenate mai ales prelungirile neuronilor, văzute în secțiune sau din lateral: Axonul apare îmbrăcat în straturile emise de oligodendrocit. Mielina este teaca formată din aceste straturi. Ea este răspunzătoare pentru culoarea substanței albe din encefal și din măduva spinării. Axonul amielinic este prelungirea rămasă fără teacă. În sistemul nervos central se găsesc atât axoni mielinici, cât și axoni amielinici, iar fibrele mielinice conduc rapid impulsurile nervoase, pe când cele amielinice le conduc mai lent. Astrocitul, oligodendrocitul și capilarul apar și în acest panou, semn că aceleași celule gliale însoțesc neuronii în ambele substanțe. De reținut În SNC, teaca de mielină este sintetizată de oligodendrocite, iar în SNP de către celulele Schwann, care se înfășoară în jurul prelungirilor neuronilor localizați în afara sistemului nervos central (Figura 10.4).

Fig. 10.3 · Biologie Barron's · p. 227
Cele trei tipuri de neuroni: multipolar, bipolar și pseudounipolarFigura prezintă, unul lângă altul, cele trei tipuri de neuroni deosebite după structură. Neuronul este unitatea structurală și funcțională a sistemului nervos, o celulă specializată în recepționarea și transmiterea informației, iar neuronii se deosebesc între ei prin prelungirile pe care le prezintă. De la stânga la dreapta, numărul prelungirilor care pleacă din corpul celular scade: numeroase la neuronul multipolar din stânga, două la cel bipolar din mijloc și una singură, care apoi se ramifică, la cel pseudounipolar din dreapta. Detaliile structurii unui neuron sunt prezentate pe desenul neuronului multipolar. În celelalte două desene se recunosc aceleași elemente: corpul celular cu nucleul și organitele lui, precum și prelungirile învelite în mielină. Neuronul multipolar (desenul din stânga) Neuronii multipolari au numeroase prelungiri scurte, numite dendrite, și o singură prelungire lungă, numită axon. Mulți neuroni din SNC aparțin acestei categorii. Dendritele sunt prelungirile foarte ramificate care pleacă în toate direcțiile din corpul celular. Ele sunt specializate în recepționarea impulsurilor nervoase și în transmiterea lor către corpul celular, iar suprafața lor prezintă mii de formațiuni spinoase, prin care realizează joncțiuni cu alți neuroni sau cu receptori senzoriali. Axonul face drumul invers: prin el, impulsurile sunt transmise dinspre corpul celular. Corpul celular Corpul celular reprezintă doar un mic procent din volumul total al celulei. În citoplasma lui se văd: Nucleul, ovalul mare din mijloc, care conține cromozomii, alcătuiți din ADN și histone. Mitocondriile, micile formațiuni ovale cu linii fine desenate în interior. În ele se eliberează cea mai mare parte a energiei provenite din alimente, folosită pentru a forma molecule de $\ce{ATP}$, motiv pentru care mai sunt numite „generatoarele celulei”. Corpii Nissl, micile formațiuni curbate răspândite prin citoplasmă. Sunt un organit caracteristic pentru neuron, alcătuit din reticul endoplasmatic rugos, în care se sintetizează proteine. În corpul celular se mai găsesc și alte organite, precum aparatul Golgi și lizozomii, pe care figura nu le numește (Figura 3.5). Axonul și teaca de mielină Axonul pornește dintr-o porțiune îngroșată a corpului celular, numită con de emergență, care în desen face trecerea dintre corpul celular și axon. Citoplasma din interiorul axonului se numește axoplasmă, iar membrana sa, axolemă. În desen, axonul este învelit aproape pe toată lungimea de teaca de mielină, care apare ca un șir de segmente alungite. Teaca izolează axonul și este compusă în principal din mielină, o substanță lipidică de culoare albă. Mielina izolează reacțiile electrochimice care conduc impulsurile nervoase de-a lungul axonilor. Fibrele mielinice conduc rapid impulsurile, pe când cele amielinice le conduc mai lent. Teaca este sintetizată în SNC de oligodendrocite (Figura 10.2) și în SNP de celulele Schwann (Figura 10.4), care se înfășoară în jurul prelungirilor neuronilor. Partea ei externă se numește neurilemă și are rol în regenerarea neuronilor lezați. Porțiunile scurte de axon rămase neînvelite între două segmente corespund nodurilor lui Ranvier, spațiile dintre două celule Schwann succesive (sau dintre două prelungiri succesive ale oligodendrocitelor) în care axonul nu prezintă mielină. La capătul distal, axonul se termină prin mii de ramificații microscopice, numite terminații axonale, pe care desenul le arată ca fire subțiri, fără mielină. Terminațiile prezintă dilatări, numite butoni terminali, care apar ca mici umflături la vârful lor. La nivelul butonilor, neuronii eliberează substanțe chimice denumite neurotransmițători, care transmit impulsurile nervoase de la neuron la mușchi, glande sau alți neuroni. Neuronul bipolar (desenul din mijloc) Neuronii bipolari au un axon și o singură dendrită. În desen, corpul celular este alungit, iar cele două prelungiri pleacă din capetele lui opuse, una în sus și una în jos. Amândouă apar învelite de mielină: teaca de mielină poate înconjura atât axonii, cât și dendritele. Neuronii bipolari se găsesc în retină, în urechea internă și în mucoasa olfactivă. Neuronul pseudounipolar (desenul din dreapta) Neuronii pseudounipolari au o singură prelungire, care se divide pentru a forma o dendrită și un axon. În desen, corpul celular rotunjit se află sus, iar prelungirea lui unică, scurtă, coboară și se desface în două ramuri orientate în sensuri opuse, spre stânga și spre dreapta, ambele învelite de mielină. Majoritatea neuronilor senzoriali, cei care transmit informația dinspre receptori înspre SNC, sunt pseudounipolari. Cât de lung poate fi un axon Diametrul axonului este microscopic, dar lungimea sa poate atinge peste un metru. De exemplu, axonii care pornesc din porțiunea inferioară a măduvei spinării și ajung la nivelul labei piciorului pot avea o lungime de până la 1,2 m. Deseori, axonii mai multor neuroni, denumiți uzual fibre nervoase, se reunesc alcătuind nervi.
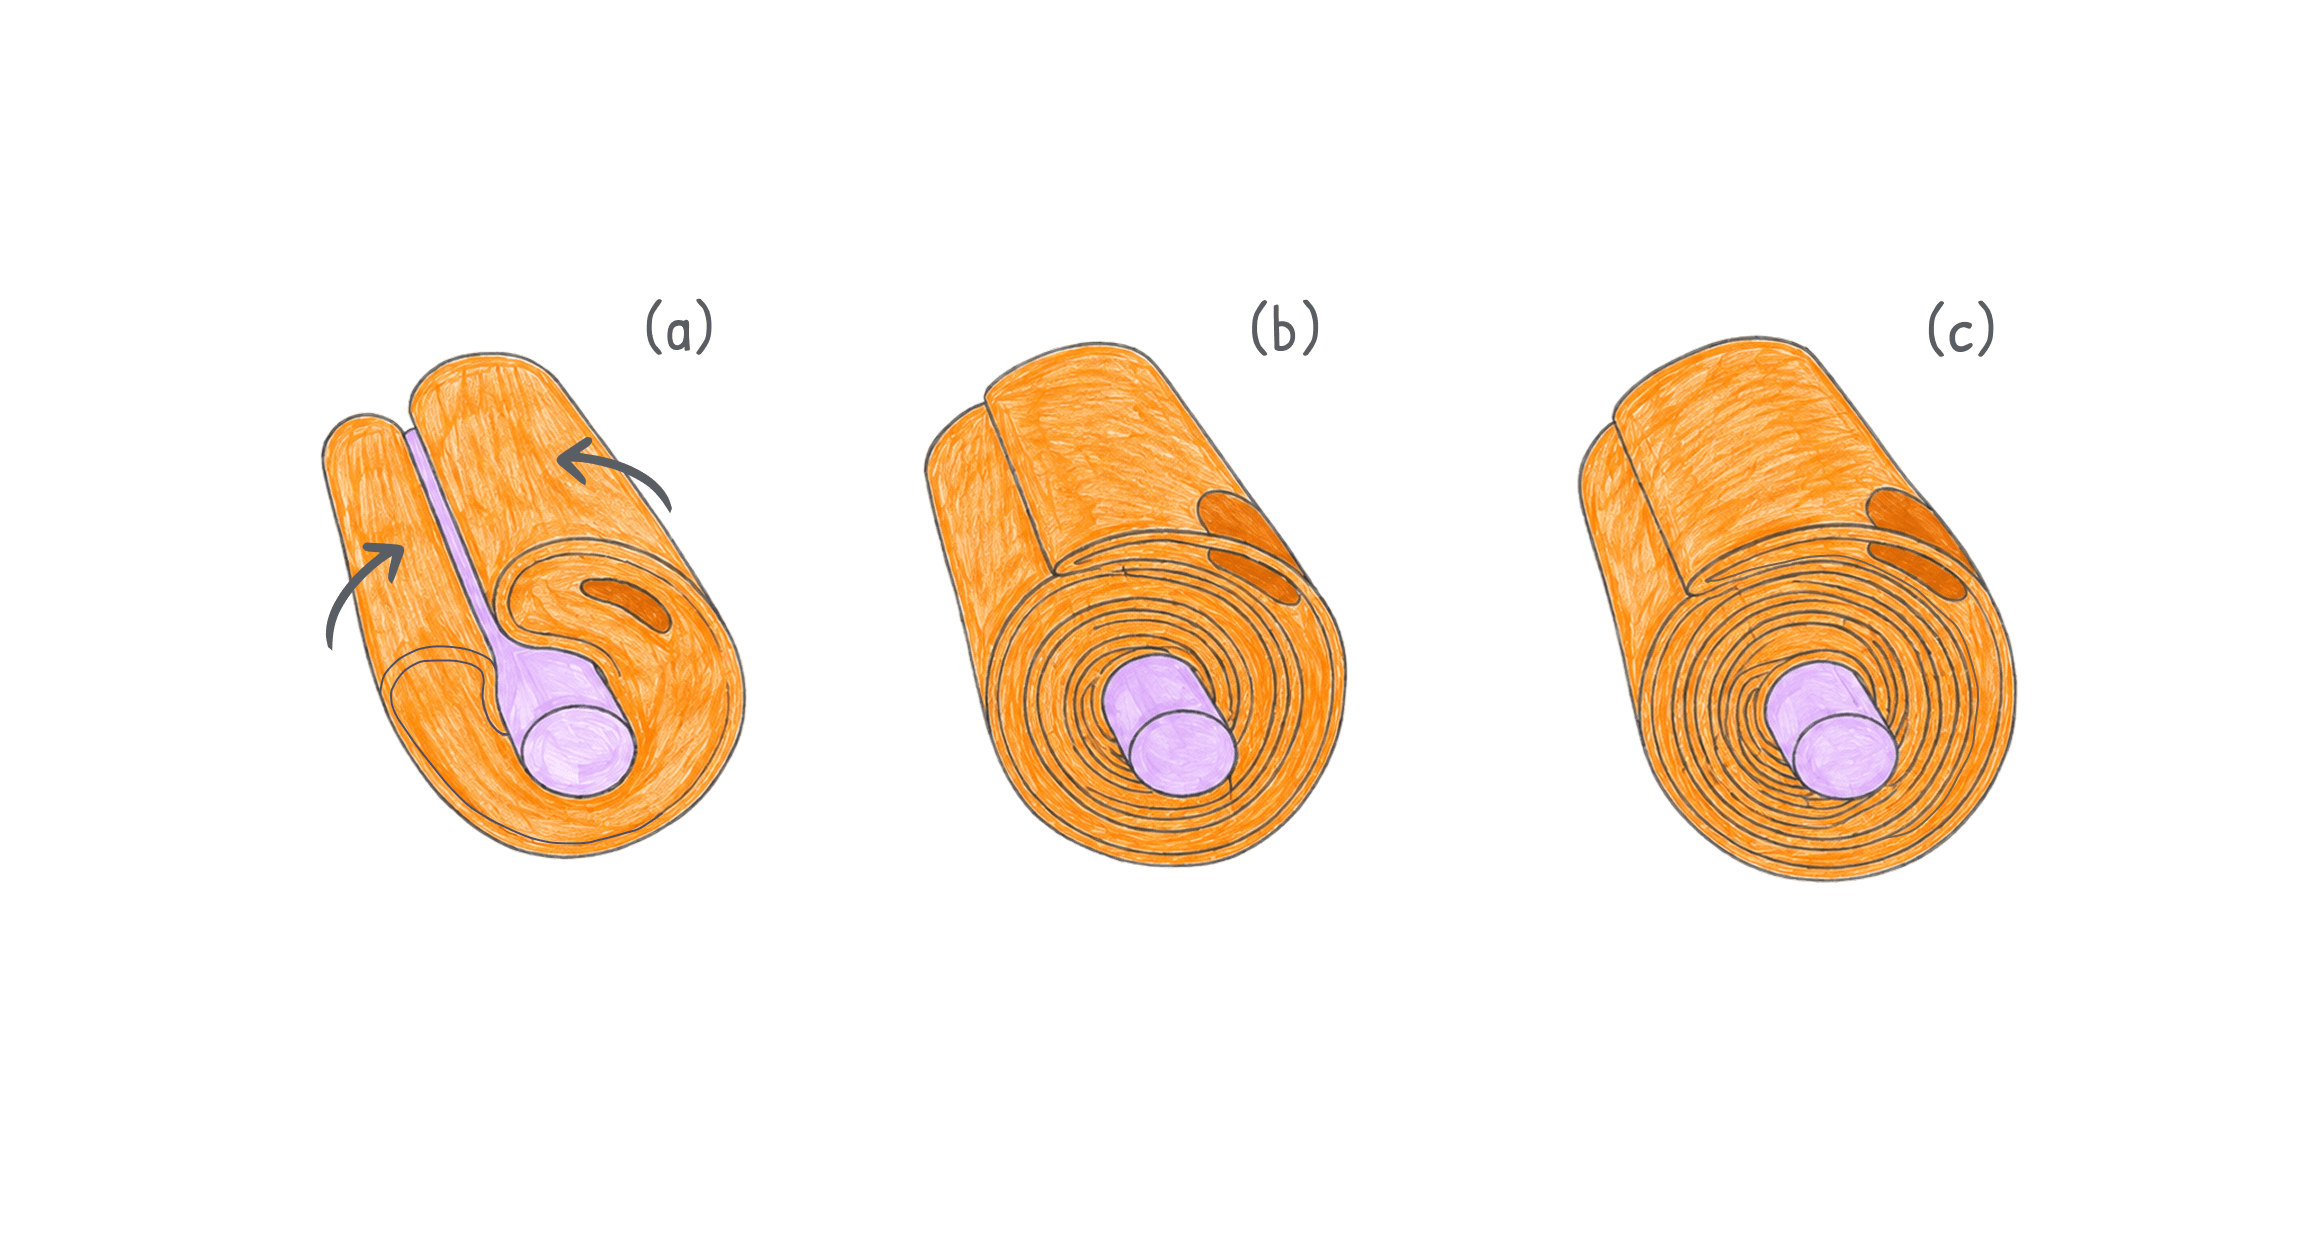
Fig. 10.4 · Biologie Barron's · p. 228
Formarea tecii de mielină de către celula SchwannFigura urmărește, în trei imagini succesive, cum se formează teaca de mielină: celula Schwann se înfășoară, tură după tură, în jurul axonului. Toate trei arată același loc, în secțiune, la momente diferite, iar săgețile din prima imagine dau sensul în care se rulează celula. Trecând de la (a) la (c), numărul straturilor din jurul axonului crește, iar citoplasma celulei Schwann este împinsă spre exterior. (a) Începutul înfășurării Axonul stă într-un jgheab al celulei Schwann. Se recunosc nucleul celulei Schwann, citoplasma ei și cele două membrane celulare care vin față în față atunci când marginile celulei se apropie una de alta. În SNP, însuși corpul celulelor Schwann se înfășoară în jurul prelungirilor neuronului, spre deosebire de SNC, unde oligodendrocitele emit doar prelungiri care se înfășoară în jurul axonilor sau dendritelor (Figura 10.2). (b) Straturile se adună Celula continuă să se rotească în jurul axonului, iar membrana ei se depune în straturi concentrice. Această membrană stratificată este teaca de mielină. Mielina este o substanță lipidică de culoare albă, componenta principală a membranei oligodendrocitelor și a celulelor Schwann. (c) Teaca terminată Axonul este acum izolat de numeroase straturi de mielină. Partea externă a tecii de mielină, care înconjoară axonii sau dendritele, se numește neurilemă. Ea rămâne la suprafață, acolo unde au fost împinse citoplasma și nucleul celulei, și are rol în regenerarea neuronilor lezați. La ce folosește teaca Teaca de mielină izolează axonul, adică izolează reacțiile electrochimice care conduc impulsurile nervoase de-a lungul lui. De aceea fibrele mielinice conduc rapid impulsurile nervoase, pe când cele amielinice le conduc mai lent. Teaca nu este continuă: între două celule Schwann succesive, respectiv între două prelungiri succesive ale oligodendrocitelor, se găsesc spații denumite nodurile lui Ranvier, la nivelul cărora axonul nu prezintă mielină, iar impulsul sare de la un nod la altul (Figura 10.8). Mielina este răspunzătoare și pentru culoarea substanței albe din encefal și din măduva spinării, iar deteriorarea ei în SNC poate da naștere unei afecțiuni denumite scleroză multiplă.
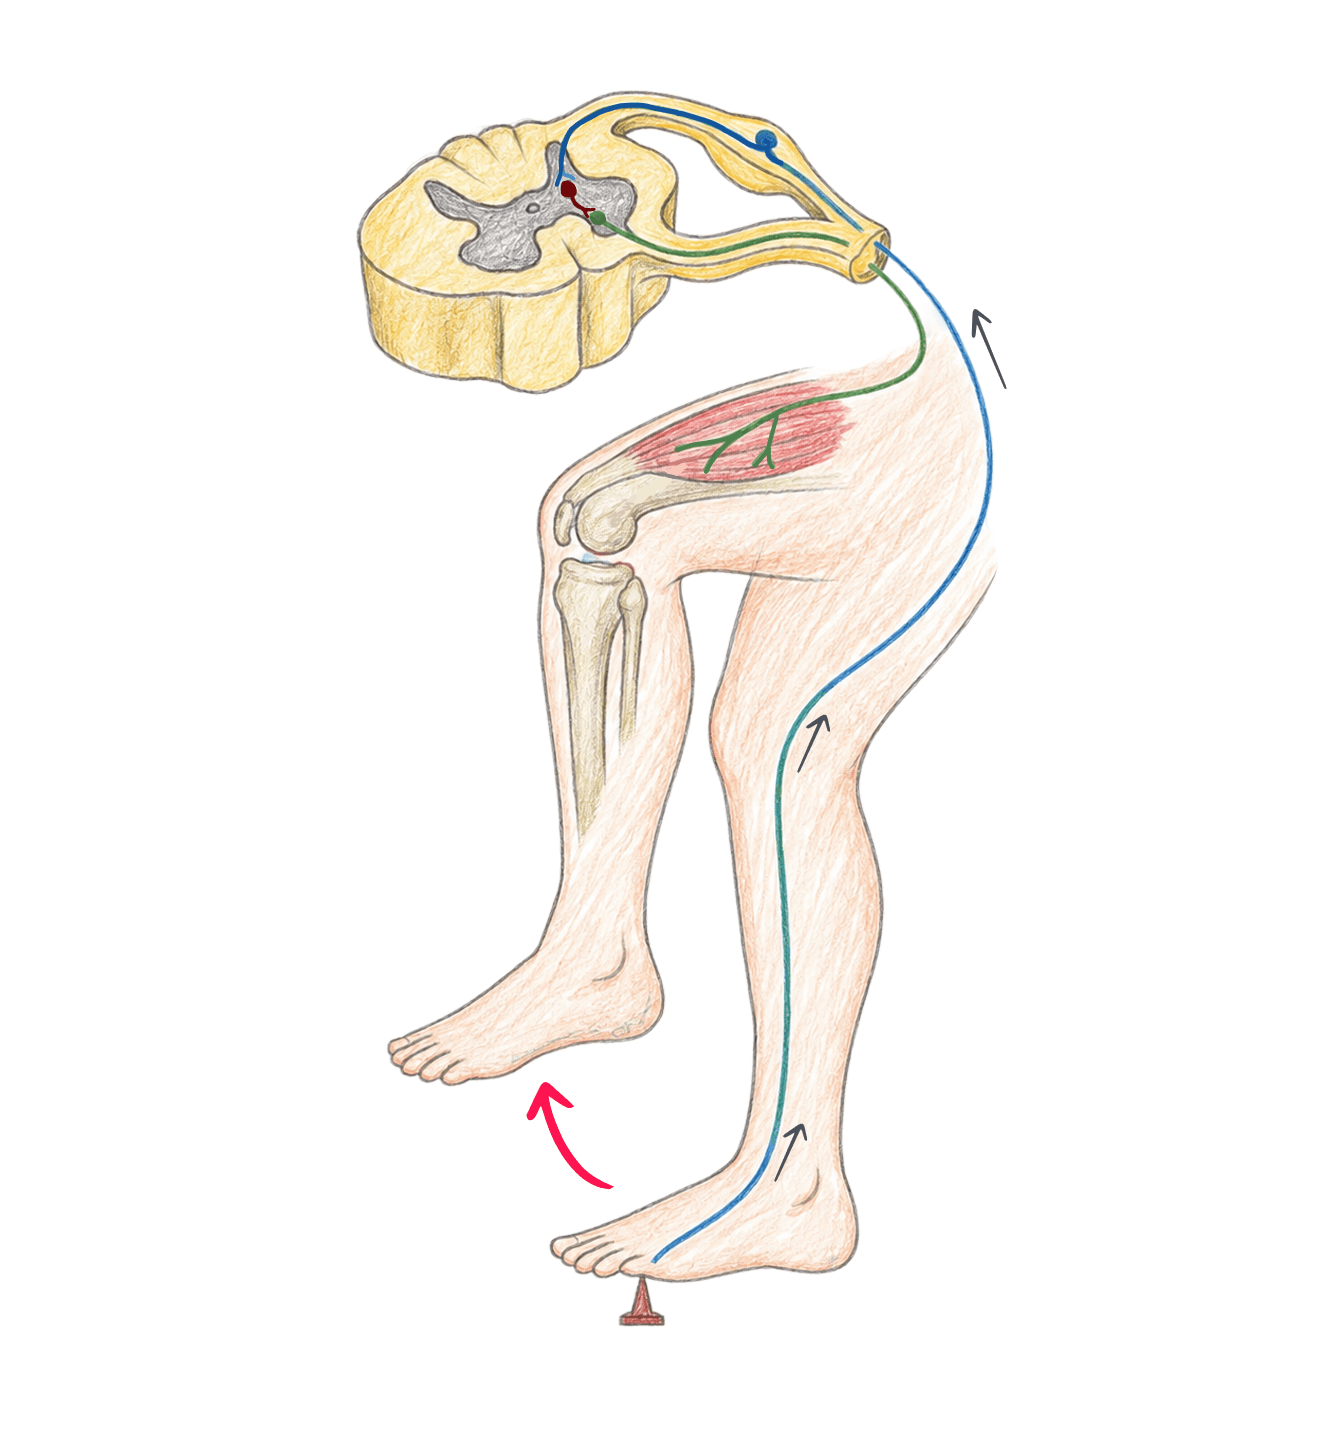
Fig. 10.5 · Biologie Barron's · p. 229
Arcul reflex: reflexul de retragereFigura desfășoară un arc reflex tipic, baza anatomică a actului reflex, pe exemplul reflexului de retragere. Drumul impulsului se citește urmărind săgețile de pe traseul nervos: de la receptorii din pielea labei piciorului în sus, până la măduva spinării desenată în secțiune în partea de sus, și de acolo înapoi la mușchiul care execută mișcarea. Piciorul este desenat de două ori, înainte și după retragere, iar săgeata curbată de sub laba piciorului ridicată arată îndepărtarea de stimulul dureros. Cum decurge reflexul Recepția: un neuron senzorial recepționează stimulul la nivelul receptorilor cutanați pentru durere și este generat un impuls nervos. Transmiterea: impulsul este condus de neuronul senzorial către măduva spinării. Manualul cere aici o observație importantă, corpul celular al acestui neuron se află în afara măduvei spinării, într-un ganglion. Integrarea: interneuronul, situat în măduva spinării, are rol de centru de procesare. El interpretează impulsul și comunică cu neuronul motor. Răspunsul: neuronul motor, al cărui corp celular este situat în măduva spinării, transmite impulsul către efector. Mușchiul se contractă și îndepărtează laba piciorului de stimulul dureros. Cei trei neuroni nu se ating: axonul unui neuron se termină în apropierea dendritei următorului neuron, iar joncțiunea dintre doi neuroni alăturați se numește sinapsă. Componentele arcului reflex Receptorul: capătul receptor al unei dendrite sau o celulă receptoare specializată, aflată într-un organ de simț. Este sensibil la modificări interne sau externe. Neuronul senzorial: dendrita, corpul celular și axonul unui neuron senzorial (aferent). Transmite impulsurile nervoase de la receptor către encefal sau măduva spinării. Majoritatea neuronilor senzoriali sunt pseudounipolari (Figura 10.3). Interneuronul: dendrita, corpul celular și axonul unui neuron situat în encefal sau în măduva spinării. Servește drept centru de procesare și conduce impulsul nervos de la neuronul senzorial la cel motor. Neuronul motor: dendrita, corpul celular și axonul unui neuron motor (eferent). Transmite impulsul nervos de la encefal sau măduva spinării către un efector. Efectorul: un mușchi sau o glandă din afara sistemului nervos. Răspunde la stimularea provenită de la neuronul motor și produce acțiunea reflexă. De reținut Reflexul poate fi automat și inconștient, fără a include encefalul sau o activitate mentală. Ajută la menținerea homeostaziei organismului în timpul unor activități precum strănutul, tusea sau înghițitul, și reprezintă cea mai simplă activitate îndeplinită de către sistemul nervos. Exemplul tipic de act reflex este reflexul rotulian, în care apare extensia gambei la percutarea ligamentului patelar.

Fig. 10.6 · Biologie Barron's · p. 231
Dezechilibrul ionic între interiorul și exteriorul celulei nervoaseFigura arată de ce un neuron în repaus este polarizat, adică felul în care sunt împărțiți ionii de o parte și de alta a membranei axonului. Axonul este desenat ca un cilindru tăiat, iar cercurile marcate cu $\ce{Na+}$ și $\ce{K+}$ sunt ionii, în afara și în interiorul lui. Discurile închise la culoare, însoțite de semnul minus, sunt ionii cu sarcină negativă din citoplasmă. Se pot număra simbolurile din desen ca să se vadă dintr-o privire cele două dezechilibre. Ce se vede în exterior În afara axonului se înghesuie mai ales ioni de sodiu, printre care apar și câțiva ioni de potasiu. Concentrația ionilor de sodiu din exteriorul celulei este de peste 10 ori mai mare decât cea din interior, ceea ce îi conferă suprafeței externe a membranei celulare o sarcină pozitivă, comparativ cu interiorul. Numărul ionilor de sodiu din exteriorul celulei este mai mare decât cel al ionilor de potasiu, ceea ce contribuie la menținerea unei sarcini electrice pozitive în exteriorul celulei. Ce se vede în interior Înăuntru, printre ionii pozitivi predomină cei de potasiu, iar alături de ei apar ionii cu sarcină negativă. Numărul mare de ioni negativi din celulă este pus pe seama moleculelor proteice, fiindcă proteinele citoplasmatice au o sarcină electrică negativă. Există, de asemenea, un ușor exces de ioni negativi în citoplasmă, care includ ioni de fosfat organic. De unde vine dezechilibrul Un factor este pompa de sodiu-potasiu, foarte eficientă. Ea transportă câte trei ioni de sodiu în afara celulei, prin mecanisme de transport activ, și introduce în celulă câte doi ioni de potasiu. Pompa funcționează împotriva gradientului de concentrație al ionilor și, prin urmare, sunt necesare cantități mari de $\ce{ATP}$ pentru a furniza suficientă energie. Deoarece mai mulți ioni pozitivi sunt pompați în afara celulei decât sunt introduși în interiorul acesteia, intracelular apare un potențial electric negativ. Al doilea factor este difuziunea ionilor din zonele cu concentrație mai mare înspre zonele cu concentrație mai scăzută, prin canale membranare. Unele dintre aceste canale sunt alcătuite din proteine membranare care suferă modificări structurale, pentru a se putea deschide atunci când membrana este stimulată. Ele se numesc canale cu poartă („gated channels”), pentru că acționează ca niște porți și sunt specifice pentru diferite tipuri de ioni. Canalele de sodiu și cele de potasiu sunt exemple de canale cu poartă. Potențialul de repaus Această diferență de sarcini de o parte și de alta a membranei se numește potențial de repaus și este de aproximativ 70 de milivolți (mV). Prin convenție, el se exprimă ca -70 mV („electronegativ”), pentru că suprafața internă a membranei celulare are o sarcină electrică negativă față de cea pozitivă prezentă pe suprafața externă. Un neuron în repaus nu transmite impulsuri, el este doar polarizat, iar modificarea acestei diferențe de sarcini este cea care declanșează impulsul nervos (Figura 10.7).

Fig. 10.7 · Biologie Barron's · p. 232
Potențialul de acțiune al unei celule nervoaseFigura urmărește, în trei etape, cum ia naștere și cum se propagă un potențial de acțiune de-a lungul unui axon. Același segment de axon este desenat de trei ori, cu semnele „+” înșirate pe suprafața exterioară a membranei acolo unde ea este încă polarizată. Săgețile verticale groase arată intrarea ionilor de sodiu, iar săgeata orizontală din interiorul axonului arată încotro merge impulsul. Citind de sus în jos, zona depolarizată se mută tot mai departe de locul stimulării. (a) Stimulul și depolarizarea Un stimul este aplicat membranei, în capătul din stânga, și ionii de sodiu pătrund în celulă. Membrana celulară își pierde polaritatea, generând astfel un potențial de acțiune: acolo unde ionii de sodiu au intrat, semnele „+” dispar de pe fața externă. Un stimul electric, mecanic sau chimic modifică potențialul de repaus prin deschiderea canalelor de sodiu. În timpul depolarizării, potențialul de repaus se ridică până la valoarea de aproximativ -55 mV, care reprezintă intensitatea prag a unui impuls nervos. În acest moment, canalele de sodiu voltaj-dependente se deschid, și un număr și mai mare de ioni de sodiu pătrunde rapid în celulă. Influxul durează o miime de secundă, apoi canalele se închid, iar valoarea potențialului continuă să crească până la aproximativ +35 mV („pozitiv”), având loc o inversare temporară a polarității. (b) Propagarea și repolarizarea Membrana adiacentă este depolarizată, iar potențialul de acțiune se propagă. Între timp, zona inițială se repolarizează prin acumularea de ioni de potasiu, fiind pregătită pentru declanșarea unui nou impuls. Canalele de sodiu se închid, iar cele de potasiu se deschid, declanșând ieșirea potasiului din celulă, astfel încât sarcina din exterior redevine pozitivă și membrana se repolarizează. Întregul ciclu depolarizare-repolarizare are loc în mai puțin de o milisecundă. (c) Unda merge mai departe Potențialul de acțiune se propagă de-a lungul axonului pe măsură ce sunt depolarizate zone succesive ale membranei. Dacă potențialul de acțiune este suficient de puternic pentru a depolariza zona învecinată a membranei prin deschiderea mai multor canale de sodiu, acea zonă se va depolariza și procesul se repetă. Astfel, o undă de depolarizare se propagă ca o reacție în lanț. Unda „călătorește” de-a lungul neuronului și reprezintă potențialul de acțiune, sau impulsul nervos (Figura 10.8). Legea „totul sau nimic” Reîntoarcerea la starea de repaus necesită pomparea sodiului în exteriorul neuronului, care are loc în secundele următoare. În stare depolarizată, neuronul este refractar, ceea ce înseamnă că nu poate transmite un alt potențial de acțiune decât dacă stimulul este foarte puternic. Un stimul suficient de puternic pentru a depolariza neuronul la pragul critic are ca rezultat un impuls nervos, un stimul mai puternic are ca rezultat același impuls, iar intensitatea impulsului nervos nu variază. Cu toate acestea, un stimul foarte puternic poate genera câteva impulsuri nervoase succesive.

Fig. 10.8 · Biologie Barron's · p. 233
Conducerea continuă și conducerea saltatorie a impulsului nervosFigura compară, în același interval de timp, cât de departe ajunge impulsul nervos în doi neuroni: în stânga, (a) un neuron amielinic, iar în dreapta, (b) un neuron mielinic. Fiecare panou are trei rânduri, citite de sus în jos, la 1 msec, 5 msec și 10 msec de la pornirea impulsului. Bara palidă care traversează axonul în fiecare rând este frontul potențialului de acțiune, adică locul unde a ajuns impulsul în acel moment. Ce este la fel în ambele panouri În fiecare desen, impulsul pornește din zona declanșatoare, aflată imediat după corpul celular, acolo unde ionii de sodiu pătrund în neuron (săgețile marcate $\ce{Na+}$). Intrarea lor deschide canalele de sodiu și dă naștere unui curent local, desenat cu linie punctată, care depolarizează membrana din față și mută frontul mai departe. (a) Conducerea continuă La neuronul amielinic, membrana este descoperită pe toată lungimea axonului, deci ionii pot intra oriunde. Curentul depolarizează de fiecare dată zona imediat învecinată, iar frontul progresează constant de-a lungul neuronului, pas cu pas. La 10 msec, el se află încă în prima parte a axonului. (b) Conducerea saltatorie La neuronul mielinic, axonul este îmbrăcat în segmente de mielină, între care rămân nodurile Ranvier. Deoarece ionii nu pot pătrunde sau ieși din neuron decât la nivelul nodurilor Ranvier prezente între celulele Schwann sau între prelungirile oligodendrocitelor, impulsul „sare” de la nod la nod în loc să progreseze constant de-a lungul neuronului. Acest fenomen poartă numele de propagare (conducere) saltatorie, iar în desen curentul se întinde, pe sub mielină, de la un nod până la următorul. La 10 msec, frontul a ajuns deja aproape de capătul axonului. De ce contează Conducerea saltatorie mărește considerabil viteza impulsurilor, permițând reacții mai rapide la stimuli. De exemplu, reacțiile reflexe necesită neuroni mielinici în SNP pentru a putea avea o viteză de reacție mai mare (Figura 10.5). Teaca de mielină care face posibilă această conducere este sintetizată de către oligodendrocite în SNC și de celulele Schwann în SNP (Figura 10.4).
Fig. 10.9 · Biologie Barron's · p. 234
Activitatea sinapticăFigura arată ce se întâmplă la nivelul unei sinapse, joncțiunea dintre doi neuroni. Sus, în plan îndepărtat, sunt desenați cei doi neuroni, iar cerculețul de acolo, de unde prelungirea primului neuron atinge al doilea neuron, marchează locul mărit dedesubt. În cercul mare se văd, mărite, capătul axonului primului neuron (sus, în stânga), spațiul dintre celule și celula următoare (jos, în dreapta). Când impulsul ajunge la capătul axonului, nu poate sări peste acest spațiu, deci există un mecanism chimic ce conduce mesajul spre următorul neuron, mușchi sau glandă. Partea presinaptică Veziculele sinaptice sunt formațiunile rotunde, delimitate de o membrană, în care sunt stocați neurotransmițătorii. Aceștia sunt sintetizați continuu și se găsesc în butonii terminali ai axonilor. Moleculele de neurotransmițător sunt punctele din interiorul veziculelor și, mai departe, cele împrăștiate în spațiul dintre celule. Când un impuls nervos ajunge la butonul terminal, canalele de calciu voltaj-dependente se deschid și ionii de calciu din exterior pătrund în axon, determinând eliberarea neurotransmițătorilor din vezicule prin exocitoză. Membrana presinaptică este membrana butonului terminal dinspre fantă, nivelul la care are loc exocitoza. În desen, veziculele ajunse aici apar deschise, golindu-și conținutul. Mitocondria este organitul desenat printre vezicule, în butonul terminal. Fanta sinaptică Spațiul din interiorul sinapsei se numește fantă sinaptică. Neurotransmițătorii eliberați difuzează rapid prin ea și modifică permeabilitatea următorului neuron. Ea este locul în care mesajul trece chimic, nu electric. Partea postsinaptică Neuronul postsinaptic este celula următoare, desenată dincolo de fantă, în partea din dreapta jos a cercului mărit, cea care primește mesajul. Membrana postsinaptică este membrana dendritelor următorului neuron, care mărginește fanta de partea cealaltă. Receptorii sunt niște molecule proteice de pe suprafața membranei postsinaptice, care formează canale ionice. Neurotransmițătorii se leagă de ei, canalele se deschid și permit intrarea ionilor de sodiu în dendrită. Dacă există un influx suficient de sodiu, are loc depolarizarea și este generat un nou impuls nervos. Ce urmează Dacă există suficiente molecule de neurotransmițător, dendritele următorului neuron se depolarizează și impulsul nervos nou format este propagat mai departe. Se cunosc peste 50 de tipuri diferite de neurotransmițători, iar unul dintre cei mai cunoscuți este acetilcolina, eliberată de către neuronii ce inervează mușchii scheletici la nivelul joncțiunii neuromusculare, pentru a declanșa contracția musculară (Figura 8.4). După ce acetilcolina se leagă de receptori, este descompusă de o enzimă denumită colinesterază, în interiorul sinapsei, ceea ce permite ca stimulul să aibă o durată scurtă. Alți neurotransmițători sunt recuperați prin endocitoză, pentru a putea fi refolosiți.
- 11Organizarea sistemului nervosPaginile 245 - 259

Fig. 11.1 · Biologie Barron's · p. 247
Anatomia generală a sistemului nervos centralFigura arată sistemul nervos central în întregime, văzut din profil, în două panouri care se citesc împreună. În panoul (a) encefalul și măduva spinării sunt desenate singure, cu principalele regiuni marcate pe desen, iar în panoul (b) aceeași structură este așezată în interiorul corpului, ca să se vadă unde stă encefalul și cât de jos coboară măduva spinării. Sistemul nervos central este compus din encefal și măduva spinării. Aceste organe sunt alcătuite în principal din corpi celulari și axoni aparținând interneuronilor, iar oasele le protejează: craniul apără encefalul, coloana vertebrală apără măduva spinării. Regiunile encefalului Manualul împarte encefalul în patru structuri principale: emisferele cerebrale, cerebelul, diencefalul și trunchiul cerebral. Pe desen sunt marcate doar câteva dintre ele, restul rămânând doar desenate: masa mare din partea de sus este dată de emisferele cerebrale, cea mai mare parte a encefalului, cu circumvoluțiunile vizibile pe encefalul din panoul (b). Mezencefalul este situat între punte și diencefal și face parte din trunchiul cerebral. Puntea este proeminența care separă mezencefalul de bulbul rahidian. Medulla oblongata, adică bulbul rahidian, este partea superioară, dilatată, a măduvei spinării, care o conectează cu restul structurilor aflate în cutia craniană. Împreună cu mezencefalul și puntea alcătuiește trunchiul cerebral. Cerebelul este masa de substanță cenușie și albă situată înapoia trunchiului cerebral, care coordonează activitățile motorii. Măduva spinării La adultul normal, măduva spinării este un cordon de țesut nervos cu o lungime de aproximativ 45 cm. Se extinde în jos dinspre encefal, prin canalul osos format de vertebre. Este o continuare a encefalului, începând în locul în care țesutul nervos părăsește cutia craniană la nivelul foramen magnum (găurii mari) din osul occipital. La capăt se subțiază și se termină în apropierea discului intervertebral ce separă prima și a doua vertebră lombară. Partea superficială (externă) a măduvei este albă („substanța albă”), datorită aglomerării tecilor de mielină care învelesc fibrele nervoase, iar porțiunea internă este de culoare cenușie („substanța cenușie”), deoarece este alcătuită în principal din corpi neuronali și interneuroni amielinici. Această dispunere se vede bine în secțiune transversală (Figura 11.3). Cele cinci regiuni ale măduvei De sus în jos, desenul împarte măduva în cinci regiuni, despărțite prin mici întreruperi transversale: cervicală, toracică, lombară, sacrală și coccigiană. Sunt aceleași denumiri după care manualul grupează cele 31 de perechi de nervi spinali (8 perechi cervicali, 12 toracici, 5 lombari, 5 sacrali și o pereche coccigieni) și aceleași cu regiunile coloanei vertebrale prin al cărei canal osos coboară măduva (Figura 7.5). Secțiunea sagitală prin encefal, cu toate structurile la locul lor, este prezentată în Figura 11.4.
Fig. 11.2 · Biologie Barron's · p. 248
Structurile care învelesc sistemul nervos: meningeleFigura arată ce anume învelește și protejează sistemul nervos central, la două măriri diferite. Panoul (a) este o secțiune prin cap și prin partea de sus a coloanei vertebrale, în care se văd relațiile dintre encefal, măduva spinării și oasele ce le înconjoară. Pătratul desenat pe creștetul craniului marchează porțiunea mărită în panoul (b), un bloc decupat din peretele capului, în care straturile se citesc de la suprafață spre înăuntru. (a) De la os la țesutul nervos Craniul și coloana vertebrală protejează encefalul, respectiv măduva spinării. Între os și țesutul nervos se află meningele, desenat aici ca un înveliș continuu care înconjoară atât encefalul, cât și măduva spinării ce coboară printre vertebre. Deasupra oaselor craniului se află scalpul. (b) Straturile, de la suprafață spre encefal În ordinea în care le străbate desenul, de sus în jos: Pielea scalpului și țesutul subcutanat, învelișurile de la exteriorul capului (Figura 5.1). Oasele craniului, cutia osoasă propriu-zisă. Dura mater, stratul exterior al meningelui, care conține un țesut conjunctiv fibros rezistent, cu multe vase de sânge și nervi. În grosimea ei, desenul arată un sinus dural. Arahnoida, un strat subțire, cu aspect de rețea, cu anumite structuri care reabsorb lichidul cefalorahidian. Spațiul subarahnoidian, spațiul dintre arahnoidă și pia mater. Pia mater, un strat foarte subțire, bogat vascularizat, cel mai apropiat de creier. Lobul cerebral, țesutul nervos propriu-zis, aflat sub toate aceste învelișuri. Cele trei membrane dintre os și țesutul nervos, dura mater, arahnoida și pia mater, poartă împreună numele de meninge. Ele înconjoară și protejează atât encefalul, cât și măduva spinării. Lichidul cefalorahidian Spațiul subarahnoidian conține un lichid clar, apos, numit lichid cefalorahidian. Acest lichid se regăsește și în canalul central (ependimar) al măduvei spinării și în interiorul cavităților (ventriculilor) encefalului (Figura 11.6). Este un lichid asemănător cu limfa, ce servește nevoilor nutriționale și gazoase ale celulelor nervoase din sistemul nervos central. Pentru a obține o probă din el, atunci când se suspectează o boală a sistemului nervos, se folosește o procedură denumită „puncție rahidiană”. Aceleași trei straturi, văzute în jurul măduvei spinării, apar în Figura 11.3.

Fig. 11.3 · Biologie Barron's · p. 248
Secțiune transversală prin măduva spinăriiFigura prezintă un segment scurt din măduva spinării, cordonul de țesut nervos de aproximativ 45 cm care continuă encefalul, desenat în perspectivă și secționat transversal în partea de sus. Pe fața de secțiune se vede alcătuirea internă a măduvei, iar pe partea dreaptă cele trei meninge sunt decupate în trepte. În stânga pleacă rădăcinile nervoase, care formează nervul spinal, iar în partea de jos a desenului se află o vertebră. Ca să te orientezi pe secțiune, pornește de la cele două repere de pe linia mediană: șanțul posterior median, pe marginea din spate a secțiunii, și fisura mediană anterioară, pe marginea din față, cea dinspre vertebră. Partea șanțului este fața dorsală (posterioară) a măduvei, iar partea fisurii, fața ventrală (anterioară). În manual, termenul posterior poate fi înlocuit cu dorsal, iar anterior cu ventral, de aceea aceeași rădăcină apare ca „dorsală” în eticheta ei și ca „posterioară” în eticheta ganglionului. Substanța cenușie și substanța albă Pe fața de secțiune, substanța cenușie formează în centru o figură în formă de fluture, înconjurată de jur împrejur de substanța albă: Substanța albă, partea superficială (externă) a măduvei, este albă datorită aglomerării tecilor de mielină care învelesc fibrele nervoase. Substanța cenușie, porțiunea internă, are culoare cenușie deoarece este alcătuită în principal din corpi neuronali și interneuroni amielinici. La encefal lucrurile stau altfel: acolo substanța cenușie se găsește și la suprafață, nu doar în centru. Coarnele și canalul central Fluturele de substanță cenușie se prelungește în coarne. În jumătatea din stânga, figura le etichetează pe toate trei: cornul posterior, spre șanțul posterior median, cornul lateral, la mijloc, și cornul anterior, spre fisura mediană anterioară. Cornul anterior este etichetat și în jumătatea dreaptă, de cealaltă parte a fisurii. Din coarne iau naștere rădăcinile nervoase: rădăcinile dorsale din coarnele posterioare, iar cele ventrale din coarnele anterioare. În mijlocul substanței cenușii se află canalul central (ependimar). El conține lichid cefalorahidian, același lichid care se găsește în spațiul subarahnoidian și în ventriculii encefalului. Cele trei meninge Măduva, ca și encefalul, este înconjurată și protejată de trei membrane numite împreună meninge. În desen le poți urmări de la exterior spre măduvă (Figura 11.2): Dura mater, stratul exterior, conține un țesut conjunctiv fibros rezistent, cu multe vase de sânge și nervi. Arahnoida, stratul din mijloc, este subțire, cu aspect de rețea, și are anumite structuri care reabsorb lichidul cefalorahidian. Pia mater, stratul cel mai profund, este foarte subțire și bogat vascularizat. În desen acoperă direct suprafața măduvei. Între arahnoidă și pia mater se află spațiul subarahnoidian, neetichetat aici, care conține lichidul cefalorahidian, un lichid clar și apos. Rădăcinile nervoase și nervul spinal Din părțile laterale ale măduvei pornesc 31 de perechi de prelungiri numite rădăcini nervoase. În stânga desenului se văd cele două rădăcini de pe o parte a măduvei: Rădăcina dorsală a nervului spinal, cea mai apropiată de partea dorsală a corpului, ia naștere din cornul posterior. Aici se găsesc corpii celulari și axonii neuronilor senzoriali ce se îndreaptă spre măduvă. Corpii celulari sunt grupați într-un ganglion al rădăcinii posterioare, motiv pentru care rădăcina apare dilatată. Rădăcina ventrală a nervului spinal, cea mai apropiată de partea ventrală, ia naștere din cornul anterior și conține axonii neuronilor motori ce pleacă dinspre măduvă. Nu prezintă ganglion, deoarece corpii acestor neuroni se află în substanța cenușie a măduvei. Pe scurt, rădăcinile dorsale transmit informații senzoriale, iar cele ventrale transmit comenzi spre mușchii scheletici. De aceea lezarea rădăcinilor dorsale duce la pierderea senzațiilor provenite de la receptori (anestezie), iar lezarea celor ventrale, la incapacitatea de a răspunde la stimuli (paralizie). Cele două rădăcini se unesc în nervul spinal, desenat cu capătul tăiat. Cum primește fibre din ambele rădăcini, nervul spinal este mixt, cu fibre atât senzoriale, cât și motorii. Cele 31 de perechi de nervi spinali asigură comunicarea dintre măduvă și diverse părți ale corpului (Figura 11.9). Vertebra Blocul osos masiv, în formă de cilindru, din partea de jos a desenului este corpul vertebrei, partea care susține greutatea. Măduva trece prin spatele lui, înconjurată și protejată de arcul vertebral, iar vertebrele suprapuse formează canalul osos prin care ea coboară dinspre encefal. Incizurile pediculilor a două vertebre vecine formează orificii numite foramene intervertebrale, prin care nervii cu originea în măduvă trec spre țesuturi (Figura 7.6). Ce face măduva spinării Imediat după figură, manualul numește cele două funcții principale ale măduvei în coordonarea nervoasă: centru coordonator pentru arcul reflex și rețea de legătură între sistemul nervos periferic și encefal. Legătura este asigurată de tracturi nervoase. Axonii cu traiect ascendent sunt grupați în tracturi ascendente, iar tracturile descendente transportă informația dinspre encefal spre efectori (mușchi și glande).

Fig. 11.4 · Biologie Barron's · p. 249
Encefalul în cutia craniană, în secțiune sagitalăFigura taie capul exact pe linia mediei, din frunte spre ceafă, și arată encefalul așezat în cutia craniană, cu fața orientată spre dreapta. Este desenul de referință al capitolului: aproape toate structurile de care se vorbește mai departe apar aici, una în raport cu cealaltă. Encefalul este centrul de organizare și procesare al sistemului nervos, dar și centrul conștienței, senzațiilor, memoriei și al coordonării. Recepționează impulsuri nervoase de la măduva spinării și de la cele 12 perechi de nervi cranieni, generează reacții adecvate și le transmite prin intermediul neuronilor motori. Consumă aproximativ 25% din cantitatea totală de oxigen utilizată în organism și este extrem de sensibil la scăderea nivelului de oxigen sau glucoză. Manualul îl împarte în patru structuri principale, iar figura le arată pe toate patru. Emisferele cerebrale Masa mare, cu circumvoluțiuni, care ocupă partea de sus și din față a desenului. Cele două emisfere, dreaptă și stângă, sunt unite între ele printr-o punte alcătuită din fibre nervoase numită corp calos, care în secțiune apare ca o bandă arcuită deasupra centrului encefalului. Lobii și ariile de pe suprafața lor sunt detaliate în Figura 11.5. Diencefalul Regiunea situată deasupra mezencefalului, între emisferele cerebrale. Este organizat sub formă de mase de substanță cenușie denumite nuclei, iar figura numește două dintre părțile lui: talamusul, centru integrativ al impulsurilor senzoriale, și hipotalamusul, așezat sub el. Tot diencefalul cuprinde în interior ventriculul al treilea. Trunchiul cerebral Coboară de la diencefal spre măduva spinării și este alcătuit din mezencefal, punte și medulla oblongata (bulbul rahidian). În desen se citesc în această ordine, de sus în jos (Figura 11.7). Cerebelul Masa de substanță cenușie și albă desenată înapoia trunchiului cerebral, spre ceafă. Coordonează activitățile motorii: primește stimuli de la emisferele cerebrale și de la receptorii senzoriali pentru a determina ce mușchi trebuie să se contracte. Învelișuri, cavități și vecinătăți La exterior, cutia craniană și, sub ea, meningele învelesc întregul encefal, așa cum vertebrele și aceleași meninge învelesc măduva spinării. În interior, desenul arată două dintre cavitățile pline cu lichid cefalorahidian: ventriculul lateral, aflat în emisferă, și ventriculul III, aflat în diencefal (Figura 11.6). Sub hipotalamus atârnă hipofiza, glanda în care sunt stocați și din care sunt eliberați unii dintre hormonii produși de neuronii hipotalamusului, iar în jos encefalul se continuă cu măduva spinării.

Fig. 11.5 · Biologie Barron's · p. 250
Lobii și ariile funcționale ale emisferei cerebraleFigura este o vedere din lateral dreapta a encefalului, deci partea din față a capului se află în dreapta desenului, iar ceafa în stânga. Se vede emisfera cerebrală dreaptă, iar dedesubt, cerebelul. Pe cortex sunt marcate ariile care răspund de anumite funcții. Reperul după care te orientezi în tot desenul este șanțul central, adâncitura care coboară de la marginea de sus a emisferei. Suprafața emisferelor cerebrale conține numeroase circumvoluțiuni, numite și girusuri, și numeroase adâncituri: o adâncitură superficială este denumită șanț, iar una adâncă se numește fisură. Cei patru lobi Lobul frontal, în partea anterioară, adică în dreapta desenului. Lobul parietal, în spatele lobului frontal, separat de acesta prin șanțul central. Lobul temporal, situat sub lobul frontal și despărțit de acesta prin șanțul lateral. Lobul occipital, în partea posterioară a emisferei, adică în stânga desenului, deasupra cerebelului. O a cincea zonă, insula (lobul insular), nu se vede în desen, pentru că este localizată profund și acoperită de unele porțiuni ale lobilor frontal, parietal și temporal. Cele două benzi de lângă șanțul central De o parte și de alta a șanțului central, punctele sunt înșirate pe câte o bandă, împărțită pe părți ale corpului în aceeași ordine, de sus în jos: Banda senzorială, imediat înapoia șanțului, deci în lobul parietal: picior, braț, mână, buze, limbă, gură. Banda motorie, imediat înaintea șanțului, în lobul frontal: picior, braț, mână, buze, articularea vocii. Manualul rezumă rolul emisferelor astfel: conțin arii care recepționează și integrează semnale senzoriale (aria senzorială somatică, aria vizuală, aria auditivă) și arii care inițiază semnale motorii pentru mișcări voluntare (aria somatică motorie, aria vorbirii). Aria motorie principală este localizată în lobul frontal, unde se găsesc neuroni piramidali de talie mare. Impulsurile provenite de la acești neuroni se încrucișează prin intermediul tractului corticospinal și stimulează ariile motorii ale organismului situate în partea opusă. În bulbul rahidian, prin care trec toate fibrele nervoase descendente, unele dintre aceste fibre se intersectează formând decusația piramidală. Datorită ei, impulsurile pornite dintr-o emisferă ajung pe partea opusă a corpului, așa că banda motorie a emisferei drepte din figură acționează asupra părții stângi. Ariile lobului frontal În fața benzii motorii este marcată elaborarea motorie. Mai jos urmează, unul sub altul, punctele pentru limbă, masticație și deglutiție, iar cel mai în față, spre partea de jos a lobului, elaborarea gândirii. Arii ale lobului frontal sunt asociate cu învățarea, rațiunea, anticiparea și creativitatea. Tot în lobul frontal se află aria lui Broca, răspunzătoare de activitatea motorie legată de vorbire și de planificarea vorbirii, pe care însă desenul nu o etichetează. Punctele pentru limbă, masticație și deglutiție se leagă de ce spune manualul despre înghițire. Prima etapă a deglutiției se produce în cavitatea orală și este sub control voluntar: alimentele sunt mestecate și îmbibate cu salivă, iar bolul alimentar format este împins de limbă către faringe (Figura 18.4). Ariile lobului parietal Înapoia benzii senzoriale se află elaborarea senzorială, o arie de asociație. Emisferele cerebrale conțin arii de asociație în care sunt interpretate semnalele senzoriale, sunt stocate amintirile și au loc procese complexe de procesare. Mai jos, chiar deasupra lobului temporal, este marcată salivația. Anumite regiuni ale lobilor parietali răspund și de înțelegerea vorbirii și exprimarea ideilor. Ariile lobilor occipital și temporal În lobul occipital sunt marcate două zone pentru văz: vederea bilaterală, mai sus, și vederea controlaterală, mai jos și mai în spate. În lobii occipitali sunt interpretate senzațiile vizuale. Impulsurile pornite din retină ajung prin nervul optic și tractul optic la cortexul vizual, iar imaginea, care pe retină este inversată, este percepută aici în orientarea corectă. În primul capitol, manualul definește termenul „controlateral”: se referă la structuri aflate de partea opusă a corpului. Lobul temporal conține zonele pentru auz. Urechea internă transformă undele sonore în impulsuri nervoase, transmise encefalului, iar ariile auditive majore se află în cortexul lobilor temporali. Înapoia ariei auzului este marcată memoria vizuală și auditivă, iar dedesubt, judecata perceptuală. Aria responsabilă pentru simțul mirosului nu apare în desen, fiind situată profund în interiorul emisferelor cerebrale. Cerebelul Sub lobul occipital se vede cerebelul, care nu face parte din emisferele cerebrale: encefalul este împărțit în patru structuri principale, emisferele cerebrale, cerebelul, diencefalul și trunchiul cerebral (Figura 11.4). Cerebelul coordonează activitățile motorii și determină care mușchi trebuie să se contracte.
Fig. 11.6 · Biologie Barron's · p. 251
Ventriculii cerebraliÎn encefal se găsesc o serie de cavități interconectate numite ventriculi, iar figura le arată de două ori: în panoul (a), din profil, desenate în interiorul conturului encefalului văzut din stânga, și în panoul (b), din spate, unde se vede că sistemul este simetric. Se citește ca o rețea de încăperi legate între ele prin canale înguste, străbătută de sus în jos. Ventriculii conțin lichid cefalorahidian, ce servește nevoilor nutriționale ale celulelor nervoase și se varsă în canalul central al măduvei spinării. Același lichid înconjoară encefalul și în spațiul subarahnoidian (Figura 11.2). Cei patru ventriculi Există doi ventriculi laterali, câte unul în interiorul fiecărei emisfere cerebrale. În panoul (b) se văd amândoi, unul în dreapta și unul în stânga liniei mediane. Al treilea ventricul se găsește în diencefal, pe linia mediană, sub cei doi ventriculi laterali. Al patrulea ventricul este localizat între trunchiul cerebral și cerebel, în partea de jos a desenului. Legăturile dintre ei Așa cum arată desenul, cavitățile comunică între ele prin canale înguste. Fiecare ventricul lateral se deschide în ventriculul III printr-un foramen interventricular, ventriculul III se continuă cu ventriculul IV prin apeductul cerebral, iar din ventriculul IV desenul mai arată o apertură mediană și drumul care duce mai departe spre canalul central al măduvei spinării. Reperele din desen Pentru orientare, figura arată și conturul emisferei cerebrale, în care sunt cuprinși ventriculii laterali, precum și cerebelul, lângă care se află ventriculul al patrulea. Aceste două repere ajută la potrivirea celor două panouri între ele și cu secțiunea sagitală din Figura 11.4.

Fig. 11.7 · Biologie Barron's · p. 253
Componentele trunchiului cerebral și ale diencefaluluiFigura izolează și mărește partea din mijloc a encefalului din Figura 11.4, unde encefalul este desenat în secțiune sagitală. Emisferele cerebrale și cerebelul nu apar, iar deasupra a rămas doar arcul corpului calos. Orientarea este aceeași: partea din spate a capului este în stânga (acolo este desenat, în Figura 11.4, cerebelul, pe care manualul îl așază înapoia trunchiului cerebral), iar partea din față, unde atârnă hipofiza, este în dreapta. Desenul se citește de sus în jos: diencefalul, mezencefalul, puntea, bulbul rahidian (medulla oblongata) și, la capăt, măduva spinării. Diencefalul Diencefalul este regiunea de deasupra mezencefalului, aflată între emisferele cerebrale. Cuprinde în interior ventriculul al treilea și este organizat sub formă de mase de substanță cenușie denumite nuclei. Figura îi numește două componente, așezate una sub alta: Talamusul, sub arcul corpului calos, este unul dintre acești nuclei și un centru integrativ al impulsurilor senzoriale. Direcționează spre cortexul cerebral majoritatea semnalelor senzoriale (cu excepția mirosului, văzului și auzului) și semnalele care mențin starea de veghe. Tot el procesează senzațiile brute. Hipotalamusul, sub talamus și chiar deasupra hipofizei, transmite și primește semnale spre și dinspre emisferele cerebrale și talamus. Neuronii lui produc hormoni, printre care și pe cei ce controlează hipofiza. Prin intermediul talamusului primește semnale senzoriale de la organele interne și le folosește pentru a controla sistemul nervos vegetativ și hipofiza, menținând astfel homeostazia organismului. Prin relația cu hipofiza asigură corelarea structurală și funcțională dintre sistemul nervos și cel endocrin. Tot de el sunt legate senzația de foame, reglarea greutății, a temperaturii corporale și a echilibrului hidric. Trunchiul cerebral Țesutul nervos care conectează emisferele cerebrale cu măduva spinării cuprinde mai multe structuri, cunoscute împreună sub numele de trunchi cerebral. Manualul enumeră trei, pe care figura le arată de sus în jos: Mezencefalul este situat între diencefal și punte. Fibrele lui nervoase se unesc cu celelalte segmente ale trunchiului cerebral și ale măduvei spinării în traseul lor spre encefal. Are funcție de releu pentru semnalele senzoriale dintre măduva spinării și talamus și pentru cele motorii dintre cortexul cerebral, punte și măduva spinării. Neuronii lui sunt centri reflecși pentru mișcările capului și ale globilor oculari ca răspuns la stimuli vizuali și pentru cele ale capului și trunchiului ca răspuns la stimuli auditivi. Pe partea lui inferioară se găsesc tracturi corticospinale, care unesc encefalul cu măduva spinării. Puntea este proeminența rotunjită din partea din față a trunchiului, care separă mezencefalul de bulbul rahidian. Conține în principal fibre nervoase care transmit mesaje dinspre medulla oblongata înspre emisferele cerebrale și înapoi. Are funcție de releu între medulla oblongata și părțile superioare ale encefalului, între emisferele cerebelare și între cerebel și emisferele cerebrale. Bulbul rahidian (medulla oblongata) este partea superioară, dilatată, a măduvei spinării, care o leagă de restul structurilor din cutia craniană. Primește și integrează semnale de la măduva spinării și trimite semnale către cerebel și talamus. Toate fibrele nervoase descendente trec prin el, iar unele dintre ele se intersectează și formează decusația piramidală. Datorită ei, impulsurile nervoase pornite de la o emisferă cerebrală ajung pe partea opusă a corpului. Nucleii din interiorul bulbului sunt centri de control pentru activități precum frecvența cardiacă, presiunea sanguină, vasoconstricția, reglarea respirației, strănutul, tusea, voma și deglutiția. În interiorul trunchiului cerebral Medulla oblongata conține grupuri de nuclei numite formațiunea reticulară, care se extind în sus, în punte și în mezencefal. În desen, ea este indicată în interiorul trunchiului cerebral, între apeductul cerebral și punte. Aceste structuri sunt răspunzătoare pentru activarea cortexului cerebral la primirea impulsurilor senzoriale. Astfel, pregătesc cortexul pentru interpretarea acestor impulsuri și stimulează procesele cognitive. Formațiunea reticulară conține și nucleii implicați în starea de veghe și somn. Apeductul cerebral este canalul îngust din partea din spate a trunchiului cerebral, în stânga desenului. Figura 11.6 arată că el leagă ventriculul III, aflat în diencefal, de ventriculul IV, localizat între trunchiul cerebral și cerebel. Ventriculii sunt cavități interconectate care conțin lichid cefalorahidian. Structurile vecine Corpul calos, arcul de deasupra diencefalului, este puntea de fibre nervoase care unește cele două emisfere cerebrale. Hipofiza atârnă în partea din față, sub hipotalamus. În ea sunt stocați unii dintre hormonii produși de neuronii hipotalamusului, pe care tot ea îi eliberează și care reglează activitatea mai multor viscere. Măduva spinării continuă trunchiul cerebral în partea de jos a figurii. Bulbul rahidian este chiar partea ei superioară, dilatată.
Fig. 11.8 · Biologie Barron's · p. 255
Cele 12 perechi de nervi cranieni și originea lor aparentăFigura arată encefalul privit de dedesubt, adică baza encefalului, locul din care pornesc toți nervii cranieni. Sus în desen se află partea din față a encefalului, cu lobii frontali, pe laterale se văd lobii temporali, în mijloc trunchiul cerebral, iar jos cerebelul, cu cele două emisfere ale lui. Din fiecare nerv s-a desenat doar porțiunea scurtă de la ieșirea din encefal, adică de la originea lui aparentă, locul unde nervul devine vizibil. Fiind perechi, nervii apar de o parte și de alta a liniei mediane. Nervii cranieni fac parte din sistemul nervos periferic, alături de cele 31 de perechi de nervi spinali. Cele 12 perechi aparțin unor zone diferite ale encefalului și trec pe sub emisferele cerebrale. Fiecare nerv are un nume propriu și un număr, scris cu cifre romane. Cele 12 perechi, în ordinea numerelor După axonii pe care îi conțin, nervii cranieni sunt de trei tipuri: senzoriali, doar cu axoni senzoriali, motori, care conțin axoni motori și controlează în principal efectori, și micști, cu axoni atât motori, cât și senzoriali. Olfactiv (I): senzorial, pentru miros. Optic (II): senzorial, pentru văz. Oculomotor (III): motor, pentru mișcările oculare. Trohlear (IV): motor, tot pentru mișcările oculare. Trigemen (V): mixt, motor pentru masticație și senzorial pentru sensibilitatea feței, a dinților și a limbii. Abducens (VI): motor, pentru mișcările oculare. Facial (VII): mixt, motor pentru mimică și senzorial pentru gust, cu rol și în salivație. Vestibulocohlear (VIII): senzorial, pentru auz și echilibru. Glosofaringian (IX): mixt, pentru limbă, faringe și glandele salivare. Vag (X): mixt, pentru inimă, vasele de sânge și viscere. Accesor (XI): motor, pentru mușchii gâtului. Hipoglos (XII): motor, pentru mușchii limbii. Unele funcții se împart între mai mulți nervi. Mișcările oculare sunt comandate de trei nervi (III, IV și VI), iar limba ține de patru: trigemenul pentru sensibilitate, facialul și glosofaringianul pentru gust, hipoglosul pentru mușchii ei. Unde devine vizibil fiecare nerv Dacă urmărești nervii în ordinea numerelor, originile lor aparente coboară pas cu pas, de la emisferele cerebrale până la bulbul rahidian, în aceeași ordine descendentă în care se succed diencefalul, mezencefalul, puntea și bulbul rahidian (Figura 11.7): emisferele cerebrale: olfactivul (I) diencefalul: opticul (II) mezencefalul: oculomotorul (III) și trohlearul (IV) puntea: trigemenul (V), singurul nerv care iese de aici între punte și bulbul rahidian: abducensul (VI), facialul (VII) și vestibulocohlearul (VIII) bulbul rahidian: glosofaringianul (IX), vagul (X), accesorul (XI) și hipoglosul (XII) În desen, puntea este proeminența lată din mijlocul trunchiului cerebral, care separă mezencefalul de bulbul rahidian. Oculomotorul și trohlearul ies imediat deasupra ei, iar trigemenul pleacă din partea ei laterală. Sub punte, bulbul rahidian coboară ca o coloană printre emisferele cerebelului și se continuă cu măduva spinării. Bulbul olfactiv, tractul olfactiv și tractul optic Pe lângă nervi, desenul numește trei structuri de pe căile mirosului și văzului. Pe fața inferioară a lobilor frontali, lângă linia mediană, se văd bulbii olfactivi, mici îngroșări alungite, continuate înapoi de tracturile olfactive. Impulsurile generate de celulele olfactive din mucoasa nazală se propagă de-a lungul nervului olfactiv. Acesta pătrunde în cutia craniană prin lama ciuruită a osului etmoid, trece prin bulbii olfactivi în tractul olfactiv și se termină în cortexul olfactiv din lobii frontal și temporal (Figura 12.6). Puțin mai jos, cei doi nervi optici se unesc la mijloc, iar din locul de unire pornesc înapoi, spre diencefal, cele două tracturi optice. Nervul optic este format din axonii neuronilor multipolari din retină. Impulsurile vizuale trec prin nervul optic și apoi prin tractul optic până la cortexul vizual cerebral, unde sunt interpretate. Unde se află corpii neuronilor Corpii neuronilor senzoriali sunt grupați în afara encefalului, în mase nervoase numite ganglioni, iar corpii neuronilor motori se află de obicei în substanța cenușie. Nervul optic nu se potrivește acestei descrieri, pentru că este, de fapt, o extensie a encefalului, învelită de meninge și mielinizată de oligodendrocite. Nervii cranieni față de cei spinali Nervii spinali pornesc din măduva spinării și sunt toți micști. Nervii cranieni, în schimb, au originea aparentă la baza encefalului, exact acolo unde îi arată figura, și se distribuie predominant la cap și gât. O parte dintre ei conțin și fibre ale sistemului nervos vegetativ: pe traseul nervilor III, VII, IX și X se află ganglioni ai componentei parasimpatice (Figura 11.10).

Fig. 11.9 · Biologie Barron's · p. 256
Sistemul nervos periferic: nervii cranieni și cei spinaliFigura prezintă sistemul nervos periferic pe desenul unui corp văzut din față, cu capul întors spre dreapta, de la cap până la coapse. Nervii pornesc din encefal și din măduva spinării, desenate și ele. Ca desenul să rămână clar, nervii trunchiului și ai membrelor sunt trasați doar pe jumătatea din stânga a figurii, iar pe cea din dreapta, lângă măduvă, se văd numai capetele lor scurte. Nervii cranieni se răsfiră în dreptul feței, grupele de nervi spinali se succed de sus în jos de-a lungul măduvei, iar plexurile și nervii membrelor se văd în jumătatea din stânga. Sistemul nervos periferic leagă encefalul și măduva spinării de celelalte părți ale corpului și de mediul înconjurător. El cuprinde tot țesutul nervos aflat în afara lor, în principal nervii periferici, ganglionii asociați acestora și receptorii senzoriali. Prin fibrele aferente (senzoriale), impulsurile pornite din structurile senzoriale ajung la sistemul nervos central, unde sunt interpretate. Prin fibrele eferente (motorii), impulsurile sistemului nervos central ajung la efectori (mușchi și glande). Fibrele eferente somatice inervează mușchii scheletici, iar cele autonome (vegetative) inervează mușchii netezi, mușchiul cardiac și glandele. Aproape toți nervii periferici sunt micști, cu ambele tipuri de fibre. Nervii cranieni În dreptul feței, câteva ramuri pornesc de sub encefal. Ele sunt doar o parte din cele 12 perechi de nervi cranieni, care aparțin diferitelor zone ale encefalului, trec pe dedesubtul emisferelor cerebrale și devin vizibili la baza encefalului (Figura 11.8). Unii conțin atât axoni motori, cât și axoni senzoriali, alții doar axoni senzoriali, ca nervii olfactivi și optici, iar alții, care controlează în principal efectorii, conțin axoni motori. Cele 31 de perechi de nervi spinali Nervii spinali asigură comunicarea dintre măduva spinării și diverse părți ale corpului. De-a lungul măduvei, figura îi arată în cinci grupe, de sus în jos: cervicali, 8 perechi, în dreptul gâtului, toracici, 12 perechi, desenați ca linii paralele de-a lungul toracelui, lombari, 5 perechi, sacrali, 5 perechi, coccigieni, o singură pereche, la capătul de jos al măduvei. Grupele poartă aceleași nume ca regiunile măduvei spinării din Figura 11.1. Fiecare nerv spinal iese din măduvă prin două rădăcini (Figura 11.3): rădăcina dorsală, provenită din coarnele posterioare, are un ganglion cu corpii celulari ai neuronilor senzoriali și transmite informații senzoriale, rădăcina ventrală, provenită din coarnele anterioare, conține axonii neuronilor motori și transmite comenzi spre mușchii scheletici. Nu are ganglion, deoarece corpii acestor neuroni se află în substanța cenușie a măduvei. Cele patru plexuri Înainte de a ajunge la destinație, nervii spinali se combină temporar și formează rețele complexe, numite plexuri, în care fibre provenite de la mai mulți nervi sunt interconectate. În desen, plexurile apar ca încrucișări de nervi lângă măduvă: plexul cervical, în partea de sus a gâtului, plexul brahial, la baza gâtului, de unde nervii pleacă spre umăr și spre membrul superior, plexul lombar și, puțin mai jos, plexul sacral, în partea de jos a trunchiului, de unde nervii coboară spre coapsă. Textul de sub figură ne atrage atenția asupra plexului cervical și a celui brahial, amândouă în dreptul nervilor cervicali. Între plexul brahial și cel lombar, nervii toracici pleacă separat și nu formează niciun plex. Unii nervi periferici În desen, nervii membrelor pornesc din plexuri. Figura numește trei nervi care coboară din plexul brahial până la mână: nervul ulnar, pe partea membrului superior dinspre trunchi, nervul median, la mijlocul membrului, nervul radial, spre marginea exterioară a membrului. Alți trei coboară din rețeaua plexurilor lombar și sacral: nervul cutanat femural lateral, o ramură care pleacă oblic, în afară, spre partea laterală a șoldului, nervul femural, care se desface în coapsă în câteva ramuri scurte, nervul sciatic, cel mai lung dintre cei trei, care ajunge până la marginea de jos a desenului. Nervii cranieni față de nervii spinali Manualul îi compară într-un tabel. Nervii cranieni se distribuie predominant la cap și la gât și au funcții legate de văz, auz, miros, gust și mișcările oculare. Nervii spinali se distribuie la piele, mușchii scheletici, articulații, vase sanguine, glande sudoripare și mucoase, cu excepția capului și a gâtului, și au funcții legate de simț, mișcări și transpirație. Nervii spinali sunt micști, cu fibre senzoriale și motorii, și pot fi somatici sau vegetativi.
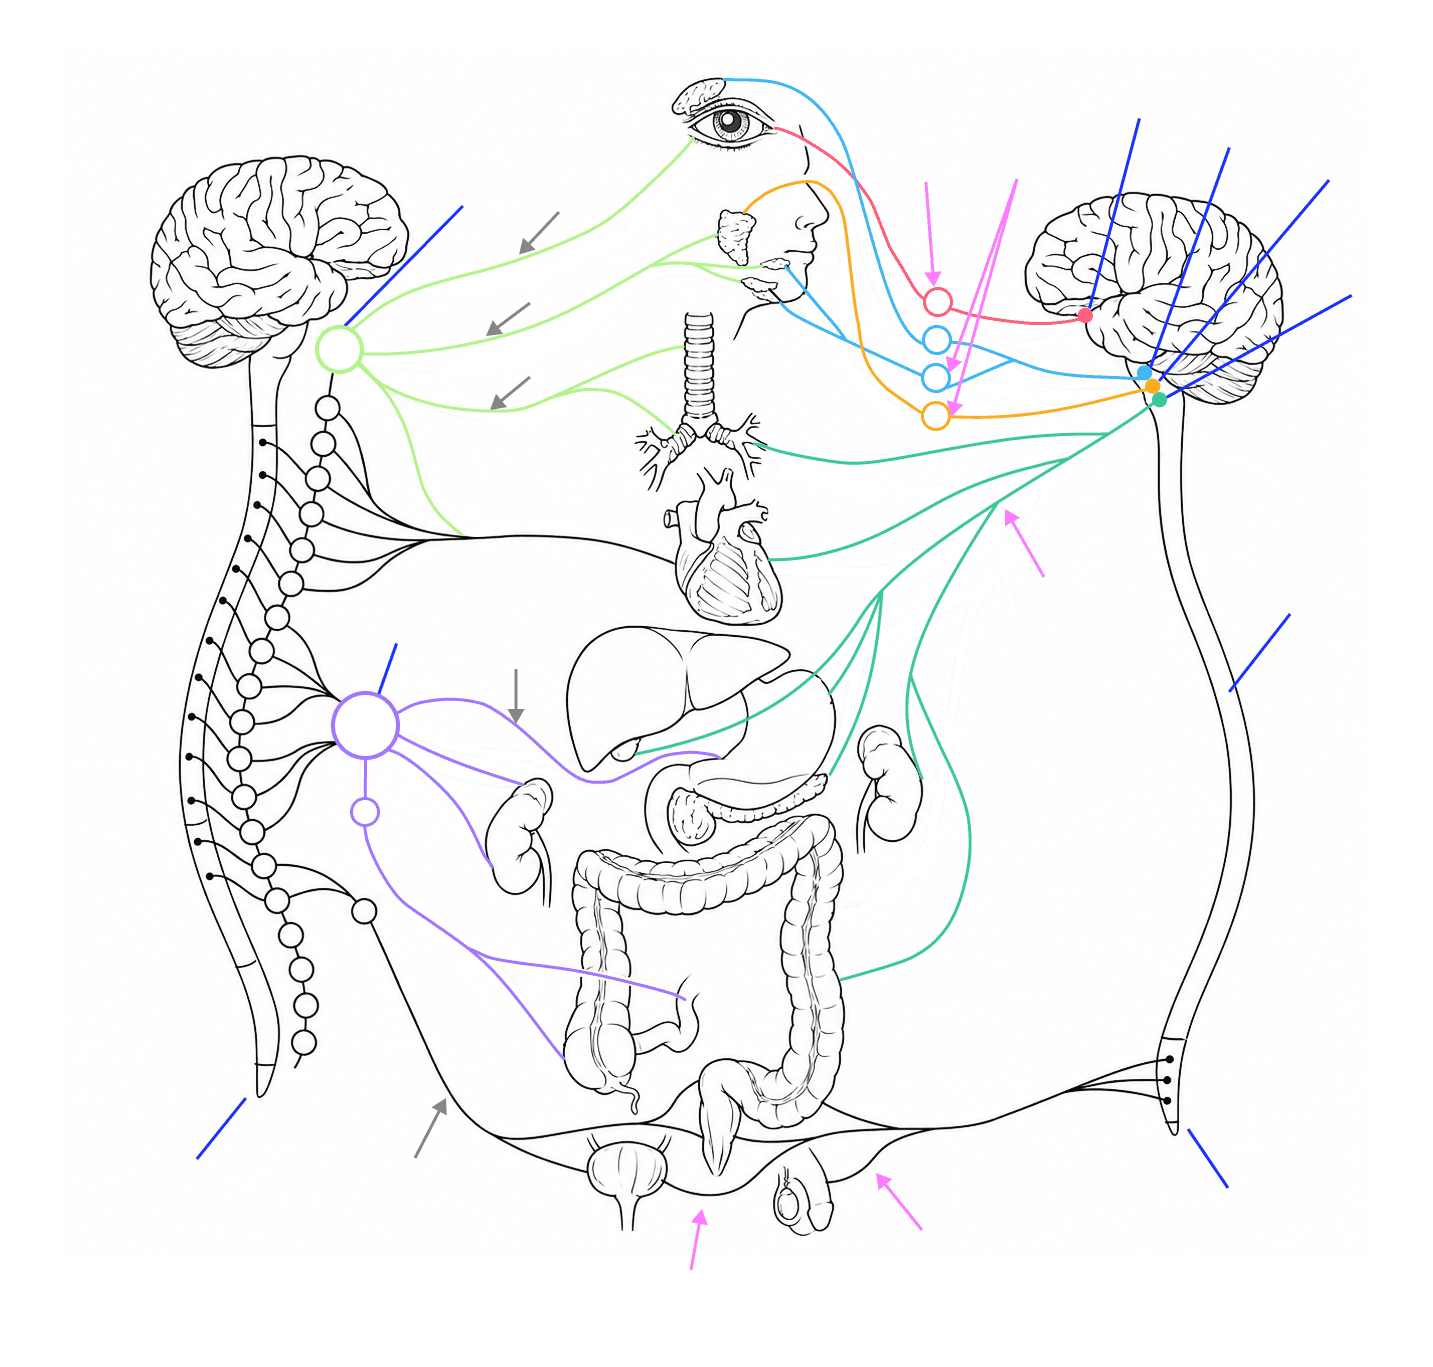
Fig. 11.10 · Biologie Barron's · p. 258
Cele două componente ale sistemului nervos vegetativ: simpatică și parasimpaticăFigura pune față în față cele două componente ale sistemului nervos vegetativ: nervii componentei simpatice, în stânga, pregătesc organismul pentru situații de urgență, iar cei ai componentei parasimpatice, în dreapta, determină revenirea organismului la normal. Organele sunt desenate o singură dată, pe mijloc, de la ochi și glandele salivare, sus, până la vezica urinară și organele sexuale, jos. Fiecare jumătate a figurii are câte un encefal cu măduva spinării, din care pleacă trasee de nervi spre aceleași organe. Pe traseele care ajung la un organ este notat efectul pe care componenta respectivă îl are acolo, așa că figura se citește organ cu organ, comparând ce face stânga cu ce face dreapta. Cercurile de pe trasee sunt ganglioni. Sistemul nervos autonom operează involuntar, fără control conștient, și coordonează funcțiile homeostatice ale unor viscere precum inima, mușchiul neted și glandele viscerale. Cum este construit un traseu Sistemul nervos vegetativ cuprinde două tipuri de neuroni motori și ganglionii corespunzători: Neuronii preganglionari se găsesc în sistemul nervos central, iar axonii lor, fibrele preganglionare, se întind până în ganglion. Neuronii postganglionari se află în ganglion, iar axonii lor, fibrele postganglionare, ajung până la organe. Pe desen, liniile care pleacă din punctele de pe măduva spinării sau de pe trunchiul cerebral și ajung la un cerc sunt fibre preganglionare, iar cele care pleacă din cercuri spre organe sunt fibre postganglionare. Este exact ce ne cere legenda figurii să observăm: sistemul constă din nervi pre- și postganglionari. Componenta simpatică, în stânga Nervii simpatici determină reacții la situații de stres, precum reacția „fight or flight” („luptă sau fugi”), și mediază aspectul anormal al funcțiilor organismului. Au efecte identice cu ale adrenalinei: impulsurile simpatice cresc ritmul cardiac, provoacă vasoconstricție și dilatarea pupilelor și au și alte efecte potrivite situațiilor de criză. Medulara glandei suprarenale secretă adrenalină și noradrenalină, hormoni care pregătesc organismul pentru efort fizic intens și acționează împreună cu sistemul nervos simpatic (Figura 13.8). Pe desen, traseele simpatice pornesc din punctele înșirate de-a lungul măduvei spinării, adică de la nivelul cervico-toraco-lombar. Ganglionii acestei componente sunt așezați în lanțuri ganglionare și în ganglioni colaterali: Lanțul simpatic este șirul de cercuri paralel cu măduva. Din cercul mai mare din vârful lui pleacă traseele spre ochi, glandele salivare și bronhii, iar ganglionii de sub el trimit trasee spre inimă. Ganglionul celiac este cercul mare din dreptul abdomenului. Fiind așezat în afara lanțului, este un ganglion colateral. Primește fibre venite dinspre lanț și trimite trasee spre organele digestive. Sub el se văd alte cercuri, mai mici, din care pleacă trasee spre intestine și spre vezica urinară. Din ganglionii simpatici pleacă multe fibre postganglionare, iar efectul acestei componente se extinde în tot organismul. Componenta parasimpatică, în dreapta Impulsurile parasimpatice readuc organismul la normal după încetarea situației stresante și mențin în mod activ aspectul normal al funcțiilor lui. Ele încetinesc ritmul cardiac, dilată arterele, provoacă constricția pupilelor, stimulează digestia și ajustează funcțiile altor organe, restabilind homeostazia și asigurând organismului o stare relaxată. Originea acestei componente în sistemul nervos central este cranio-sacrală, adică în trunchiul cerebral și în măduva spinării. Ganglionii ei se află pe traseul nervilor cranieni III, VII, IX și X și sunt ganglioni terminali. Pe desen se văd ambele origini: Sus, traseele pornesc din trunchiul cerebral, pe drumul unor nervi cranieni (Figura 11.8). Pe traseul nervului oculomotor (III), fibrele trec printr-un ganglion și ajung la ochi. Pe traseele nervului facial (VII) și ale nervului glosofaringian (IX), ele trec prin ganglionii desenați între față și encefal și ajung la glandele salivare. Nervul vag (X) coboară cu ramuri spre bronhii, inimă și organele digestive, fără niciun cerc desenat pe drum. Jos, din trei puncte aflate la capătul măduvei spinării pleacă trasee spre intestinul gros, vezica urinară și organele sexuale. Efectul parasimpatic este localizat în țesuturi, iar fibrele postganglionare sunt puține. Organ cu organ Traseele care ajung la același organ arată cum lucrează cele două componente: Pupila: simpaticul o dilată, parasimpaticul o contractă. Glandele salivare: simpaticul stimulează slab salivația, parasimpaticul o stimulează puternic. Bronhiile: simpaticul le relaxează, parasimpaticul produce constricția lor. Inima: simpaticul accelerează ritmul cardiac și amplifică contracțiile, parasimpaticul încetinește ritmul cardiac. Organele digestive: simpaticul, prin ganglionul celiac, le inhibă activitatea, parasimpaticul, prin nervul vag, o stimulează. Vezica urinară: simpaticul o relaxează, parasimpaticul o contractă. Organele sexuale: este notat doar efectul parasimpatic, care stimulează erecția. De ce diferă efectele Efectele diferite ale celor două componente se datorează parțial neurotransmițătorilor secretați. Fibrele preganglionare ale ambelor componente și fibrele postganglionare parasimpatice secretă acetilcolină, iar fibrele postganglionare simpatice secretă, de obicei, noradrenalină. De aceea, fibrele postganglionare simpatice se numesc fibre adrenergice, iar cele postganglionare parasimpatice, fibre colinergice. Cele două componente sunt antagoniste, dar nu în totalitate, pentru că fiecare poate activa anumiți efectori în timp ce îi inhibă pe alții. Majoritatea activității sistemului nervos autonom este involuntară, dar encefalul păstrează un oarecare control asupra ei.
- 12Organele de simțPaginile 271 - 283
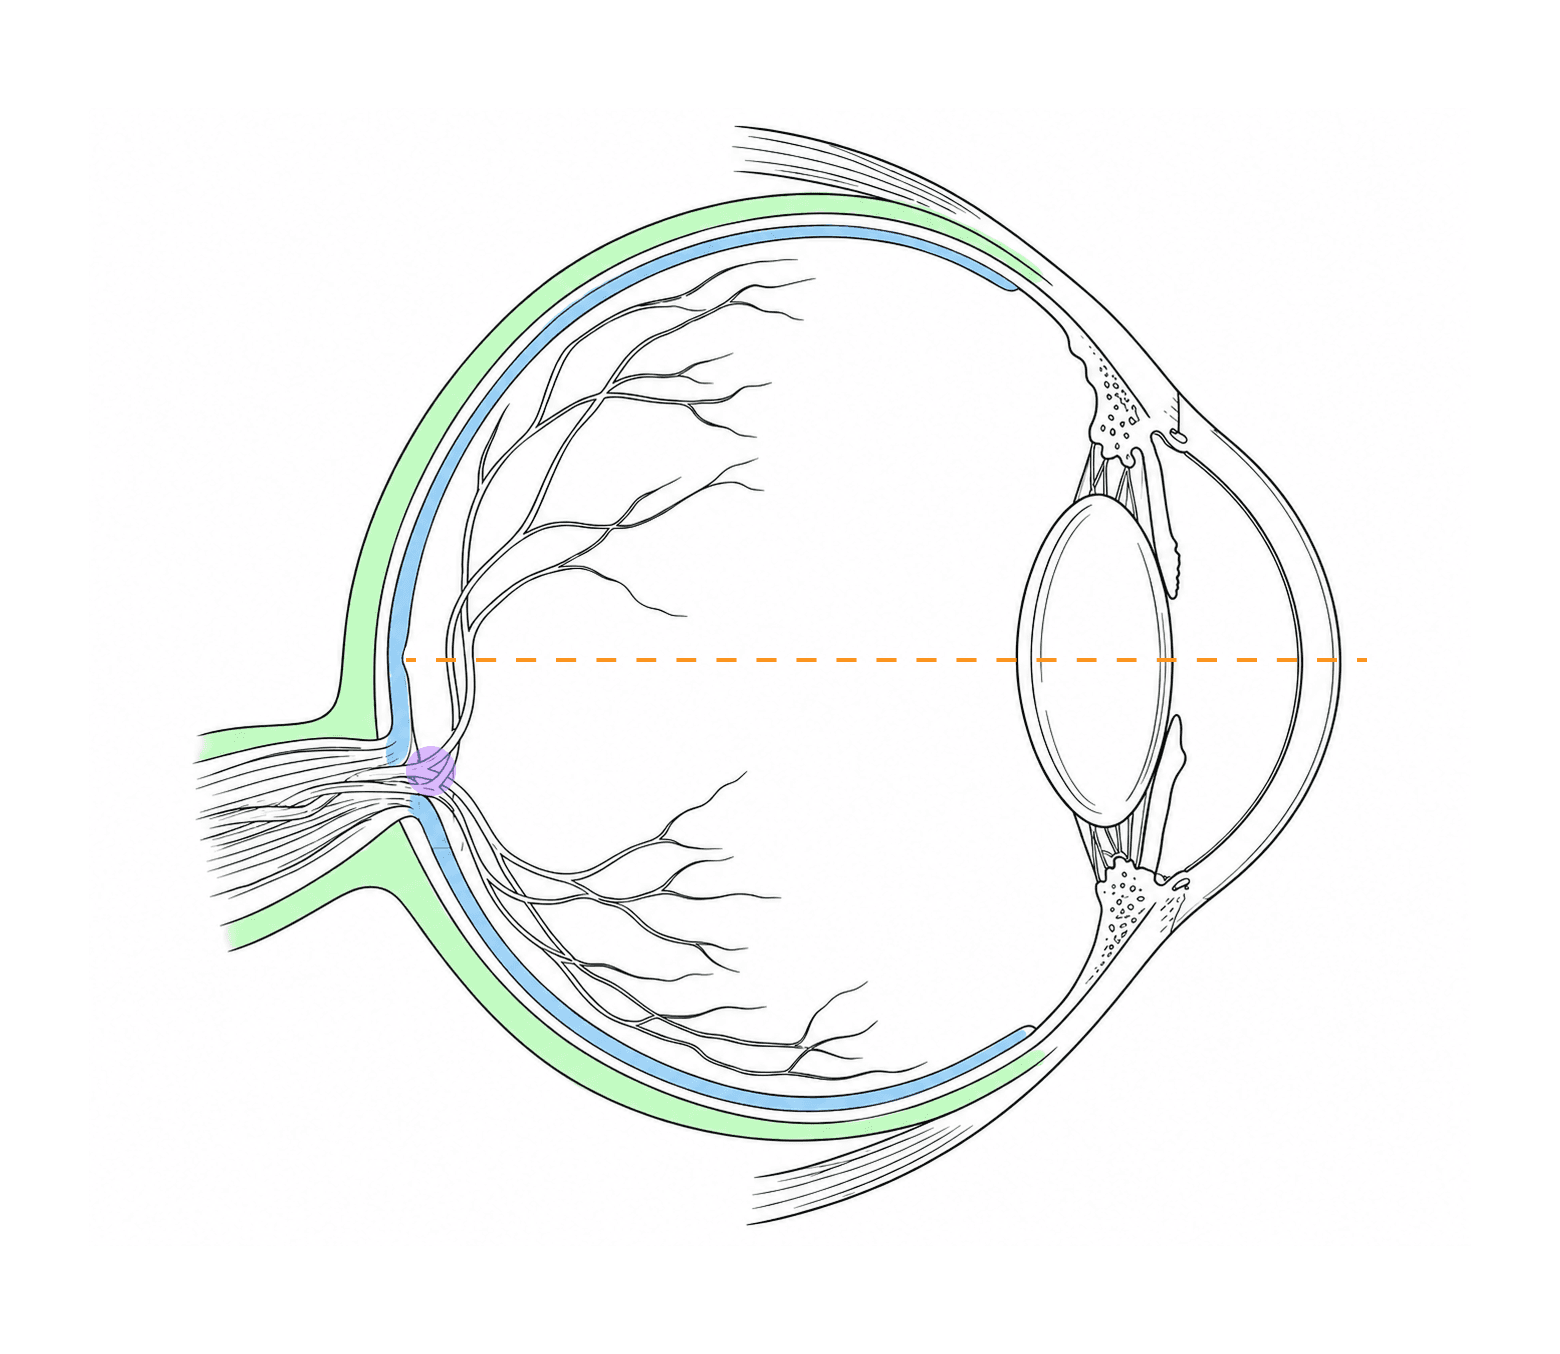
Fig. 12.1 · Biologie Barron's · p. 273
Structurile anatomice ale ochiului în secțiune longitudinalăFigura arată globul ocular tăiat pe lungime, astfel încât se vede tot ce se află între partea din față a ochiului (dreapta desenului, unde intră lumina) și partea din spate (stânga, de unde pleacă nervul optic). Linia întreruptă care străbate ochiul pe orizontală este traiectoria luminii: urmărind-o de la dreapta spre stânga parcurgi exact drumul unei raze, de la cornee până la retină. Ține minte forma de ansamblu: lungimea globului ocular este puțin mai mare decât lățimea sa, iar porțiunea anterioară proemină în afara sferei. Cele trei învelișuri ale peretelui Peretele globului ocular are trei straturi, desenate concentric, unul sub altul: Stratul extern, rezistent și fibros, cuprinde corneea și sclerotica (sclera). Corneea este porțiunea transparentă din față: ea refractă lumina și este importantă pentru focalizarea ei pe retină. Sclera menține forma ochiului și îl protejează, iar de ea se atașează mușchii extrinseci. Porțiunea ei vizibilă este „albul ochilor”. Stratul mijlociu, bogat vascularizat, conține coroida, irisul și corpii ciliari. Coroida, desenată în peretele din spate între scleră și retină, absoarbe lumina și conține vasele sanguine ale structurilor oculare. Stratul intern este retina, cea care conține receptorii pentru vedere. Retina și reperele ei Retina se întinde anterior până la porțiunea posterioară a corpului ciliar. Are un strat extern, pigmentat, care aderă de coroidă, și un strat intern, de țesut nervos, în care se află receptorii (celulele cu conuri și celulele cu bastonașe). Ea absoarbe lumina, detectează lumina și formează imaginile ce vor fi transmise encefalului. Pe peretele din spate, desenul marchează câteva repere: Foveea centrală, locul în care ajunge linia întreruptă, este o arie de depresiune ușoară aflată în apropierea centrului retinei. Aici sunt concentrate celulele cu conuri, singurele care deosebesc culorile. Pe măsură ce te îndepărtezi de fovee, numărul conurilor scade și crește numărul celulelor cu bastonașe, care detectează lumina slabă. Macula lutea este regiunea retinei care cuprinde foveea centrală. Discul optic, aflat puțin mai jos, este locul de origine al nervului optic. Pentru că nu conține receptori vizuali, se mai numește și „pata oarbă”. Arterele și venele retiniene pornesc din dreptul discului optic și se ramifică, în sus și în jos, pe fața internă a retinei. Nervul optic părăsește globul ocular prin partea din spate și este format din axonii neuronilor multipolari ai retinei. Imaginile inițiate de receptori sunt transmise de-a lungul lui, iar fibrele lui mediale se încrucișează la nivelul chiasmei optice. Apoi fibrele trec prin tractul optic și ajung la cortexul vizual din lobii occipitali, unde imaginile sunt interpretate. Partea din față: irisul, pupila și cristalinul Pupila este un orificiu situat la nivelul irisului, prin care trece linia întreruptă. În secțiune, irisul apare ca două lame așezate una deasupra și alta dedesubtul pupilei. El este alcătuit din două straturi de mușchi neted, un mușchi constrictor, care îngustează pupila, și un mușchi dilatator, care mărește diametrul pupilei, și conține pigmenții care dau culoarea ochilor. Astfel, irisul controlează cantitatea de lumină ce trece prin pupilă. Chiar în spatele irisului se găsește cristalinul, un disc transparent, biconvex, alcătuit dintr-un material proteic fibros dispus în straturi concentrice. El este ferm ancorat de corpii ciliari prin intermediul ligamentului suspensor. Corpul ciliar se unește cu irisul la periferia acestuia, iar restul irisului se extinde în interior, între cornee și cristalin. Cea mai mare parte a corpului ciliar constă din mușchiul ciliar intrinsec. Corpul ciliar modifică forma cristalinului și secretă umoarea apoasă. La joncțiunea dintre cornee și scleră, la marginea camerei anterioare, desenul mai marchează sinusul venos scleral. Pe partea din față a globului se răsfrânge conjunctiva, membrana mucoasă care căptușește pleoapele pe partea internă și acoperă parțial globul ocular. Acomodarea Cristalinul este elastic și focalizează razele luminoase pe retină. Procesul de focalizare, bazat pe această elasticitate, se numește acomodare. Când obiectul privit este departe, cristalinul este aproape plat, iar când obiectul este aproape, devine convex. Forma lui se modifică în principal datorită mușchilor ciliari, care acționează asupra ligamentului suspensor. În acomodarea pentru vederea de aproape, mușchiul ciliar se contractă și eliberează tensiunea din ligamentul suspensor, iar cristalinul devine mai convex datorită elasticității sale naturale. Cele două compartimente cu lichid Ochiul conține două compartimente pline cu fluide, separate de cristalin: Compartimentul anterior, în fața cristalinului, conține umoarea apoasă. El are două regiuni: camera anterioară, între iris și cornee, și camera posterioară, între iris și cristalin. Umoarea apoasă umple compartimentul anterior, contribuie la menținerea formei ochiului și menține presiunea intraoculară. Compartimentul posterior, care se întinde de la cristalin la retină, conține o substanță gelatinoasă, umoarea vitroasă. Ea menține presiunea intraoculară, conferă forma ochiului, menține retina atașată pe coroidă și refractă lumina. Drumul luminii prin ochi Urmărind linia întreruptă, traseul razei luminoase începe de la corneea transparentă, trece prin pupilă, străbate umoarea apoasă și ajunge la cristalin, principala structură cu rol în focalizarea imaginii. De aici, raza traversează umoarea vitroasă până la retină. Pupila se micșorează când obiectul privit este aproape și lumina este puternică și se dilată când obiectul este îndepărtat și lumina slabă. Cristalinul, corneea, umoarea apoasă și cea vitroasă sunt medii refractare: ele focalizează razele și le fac să conveargă spre foveea centrală a retinei, unde se formează imaginea. Din cauza proprietăților optice ale cristalinului, imaginea de pe retină este inversată, dar este percepută în orientarea corectă la nivelul cortexului lobilor occipitali. Dacă razele nu se focalizează pe retină, apar tulburările de vedere din Figura 12.2: în miopie imaginea se formează în fața retinei, iar în hipermetropie, în spatele ei.

Fig. 12.2 · Biologie Barron's · p. 276
Tulburări comune de vedere și lentilele care le corecteazăFigura compară patru situații, fiecare desenată ca un ochi văzut de sus, în care razele de lumină vin din dreapta și străbat cristalinul. Ce trebuie urmărit în fiecare panou este un singur lucru: unde se întâlnesc razele, adică unde se formează imaginea, față de retină. Panoul de sus arată situația normală, iar cele de dedesubt, pe coloana din stânga, cele trei tulburări. În dreapta fiecărei tulburări, același ochi este desenat din nou, de data aceasta cu lentila care îi corectează defectul așezată în fața lui. Vedere normală În mod normal, razele de lumină sunt focalizate exact pe retină. Corneea, umoarea apoasă, cristalinul și umoarea vitroasă sunt medii refractare: ele focalizează razele și le fac să conveargă către foveea centrală a retinei, unde se formează imaginea. Miopia În cazul miopiei, imaginea se formează în fața retinei: în desen razele se întâlnesc înainte de peretele din spate al ochiului, iar de acolo se îndepărtează din nou. Această afecțiune apare din cauza alungirii naturale a globului ocular, sau a unui cristalin care nu se acomodează corect. Pentru a putea focaliza imaginile pe retină se utilizează ochelari cu lentile biconcave, desenate subțiate la mijloc și groase la margini. Hipermetropia În hipermetropie, imaginea se formează în spatele retinei și este neclară: în desen razele ajung la peretele din spate înainte de a apuca să se întâlnească. Motivul este că ochiul este prea scurt sau cristalinul este prea plat pentru a permite vederea de aproape. Pentru focalizarea imaginilor pe retină se utilizează ochelari cu lentile biconvexe, îngroșate la mijloc. Astigmatismul În astigmatism razele pur și simplu nu se focalizează, iar în desen ele ajung în puncte diferite. Tulburarea este provocată de o curbură neregulată a corneei sau a cristalinului. Această curbură provoacă difracție, iar razele de lumină se proiectează pe zone diferite de pe retină, producând o imagine neclară. Astigmatismul reprezintă incapacitatea de a distinge două puncte apropiate, în anumite părți ale câmpului vizual. Se corectează prin utilizarea unor lentile cu o curbură specială, lentilele torice, desenate cu o față neregulată. Alte tulburări din aceeași secțiune Manualul mai descrie, alături de figură, două tulburări care nu pot fi desenate așa. Discromatopsia se datorează incapacității celulelor cu conuri de a reacționa la anumite culori ale spectrului de lumină, de exemplu unele persoane nu pot deosebi verdele de roșu din cauza lipsei conurilor sensibile la roșu. La presbitism, elasticitatea cristalinului scade cu vârsta, astfel capacitatea de a vedea la distanțe mici scade, și se corectează cu ochelari de citit. Structurile ochiului pe care le pun în dificultate aceste tulburări sunt cele din Figura 12.1.

Fig. 12.3 · Biologie Barron's · p. 278
Structurile anatomice ale urechii: externă, medie și internăFigura arată urechea tăiată în secțiune, de la pavilionul din afara capului (stânga) până în profunzimea osului temporal (dreapta). Desenul cuprinde, de la stânga la dreapta, cele trei componente ale urechii, în chiar ordinea în care le străbate sunetul: urechea externă, urechea medie și urechea internă. Urechea este organul auzului: ea recepționează undele sonore din mediul înconjurător și le transmite neuronilor din urechea internă, unde sunt transformate în impulsuri nervoase trimise encefalului. Ariile auditive majore se află în cortexul lobilor temporali ai emisferelor cerebrale. Urechea externă Este alcătuită din pavilionul urechii și canalul auditiv extern, care conduce vibrațiile sonore. Intrarea în canalul auditiv extern se numește orificiul auditiv extern, iar la capătul proximal al canalului, în adâncime, se află membrana timpanică (timpanul). Urechea medie Aici se găsesc cele trei oase mici, numite și oscioare, prinse în lanț unul de altul, de la timpan până la fereastra ovală: Ciocanul (malleus), primul, lipit de timpan. Nicovala (incus), la mijloc. Scărița (stapes), ultimul. Capătul lui proximal este conectat cu fereastra ovală, care este în contact cu urechea internă. Tot din urechea medie pleacă, în jos și spre înainte, trompa lui Eustachio, un tub subțire și lung care leagă faringele de urechea medie și menține o presiune egală de ambele părți ale timpanului. La altitudini mari, o cantitate de aer cu presiune înaltă rămâne captivă în interiorul urechii medii și ajunge prin trompă în faringe, determinând o „pocnitură”. La altitudini mici, aerul cu presiune înaltă urcă prin trompă în urechea medie pentru a egaliza presiunile, determinând o altă „pocnitură”. Sub fereastra ovală, desenul mai marchează fereastra rotundă, cea care se bombează pentru a micșora presiunea atunci când vibrațiile ajung înapoi la perilimfă. Urechea internă Constă din structura spiralată, de forma unui melc, numită cohlee, în interiorul căreia se află un lichid numit perilimfă. Vibrațiile perilimfei generează impulsurile nervoase ce provoacă senzația sonoră, la nivelul organului lui Corti. Deasupra cohleei se văd buclele canalelor semicirculare, structurile legate de simțul echilibrului, iar spre dreapta pleacă nervul vestibulocohlear, cu ramura lui cohleară (auditivă) și cea vestibulară. Ce urmează Traseul complet al vibrației, din canalul auditiv până la celulele ciliate ale organului lui Corti, este detaliat în Figura 12.4, iar canalele semicirculare, vestibulul și cohleea sunt văzute de aproape în Figura 12.8.

Fig. 12.4 · Biologie Barron's · p. 279
Transmiterea undelor sonore prin urecheFigura urmărește un singur lucru: ce se întâmplă cu o undă sonoră din clipa în care intră în ureche până când devine impuls nervos. Se citește de la dreapta la stânga: în dreapta este canalul auditiv extern și urechea medie cu oscioarele ei, iar în stânga cohleea, desenată tăiată în spirală, astfel încât se văd toate canalele ei suprapuse. Săgețile arată sensul în care se propagă vibrația, iar cifrele încercuite din desen numerotează etapele. Sunetul pe care îl aduce aerul are trei proprietăți pe care manualul le definește chiar lângă figură: frecvența, numărul de vibrații ale aerului într-o unitate de timp, exprimată în cicli pe secundă sau herți, intensitatea, care variază în funcție de amplitudinea undei și se exprimă în decibeli, și timbrul (calitatea), care depinde de armonicele tonale, deci de obiectul care produce sunetul. Drumul vibrației, pas cu pas Undele sonore pătrund în canalul auditiv extern. Ele se lovesc de timpan, iar energia lor îi provoacă vibrația. Vibrația este transmisă celor trei oscioare din urechea medie: ciocanul, nicovala și scărița vibrează secvențial, unul după altul. Scărița, ultimul osciar, vine în contact cu fereastra ovală, aflată la intrarea în cohlee. Vibrațiile ferestrei ovale provoacă modificări ale presiunii perilimfei din cohlee. Aceste modificări sunt transmise endolimfei din ductul cohlear, prin intermediul membranei vestibulare. Modificarea presiunii endolimfei determină mișcarea membranei tectorii, care mișcă celulele ciliate ale organului lui Corti, declanșând impulsuri nervoase. Fluctuațiile de presiune sunt transmise înapoi perilimfei, care le poartă prin canal în sus, spre vârful spiralei. Unda de presiune trece prin helicotremă și coboară prin celălalt canal cu perilimfă, spre baza cohleei. Presiunea ajunge la fereastra rotundă, care se bombează pentru a o micșora. Ce se vede în interiorul cohleei Spirala este străbătută de trei canale paralele. Două dintre ele, scala vestibuli și scala tympani, conțin perilimfă și comunică între ele la vârful spiralei, printr-o deschidere numită helicotremă. Între ele se află ductul cohlear, plin cu endolimfă și închis între două membrane: membrana vestibulară, care îl desparte de perilimfă și delimitează endolimfa din jurul celulelor ciliate, și membrana bazilară, pe care stă organul lui Corti. Organul lui Corti conține dendritele neuronilor ai căror axoni formează ramura cohleară a nervilor vestibulocohleari (auditivi), dendrite care vin în contact cu celulele ciliate. Deasupra lor se întinde membrana tectorie, cea care le mișcă atunci când presiunea se schimbă. Tot din urechea medie coboară trompa lui Eustachio, care egalizează presiunea de ambele părți ale timpanului. Ce urmează după figură Impulsurile născute în organul lui Corti sunt transmise de-a lungul ramurii cohleare a nervului vestibulocohlear către lobii temporali ai emisferelor cerebrale, unde are loc interpretarea sunetului. Poziția acestor structuri în ansamblul urechii se vede în Figura 12.3.
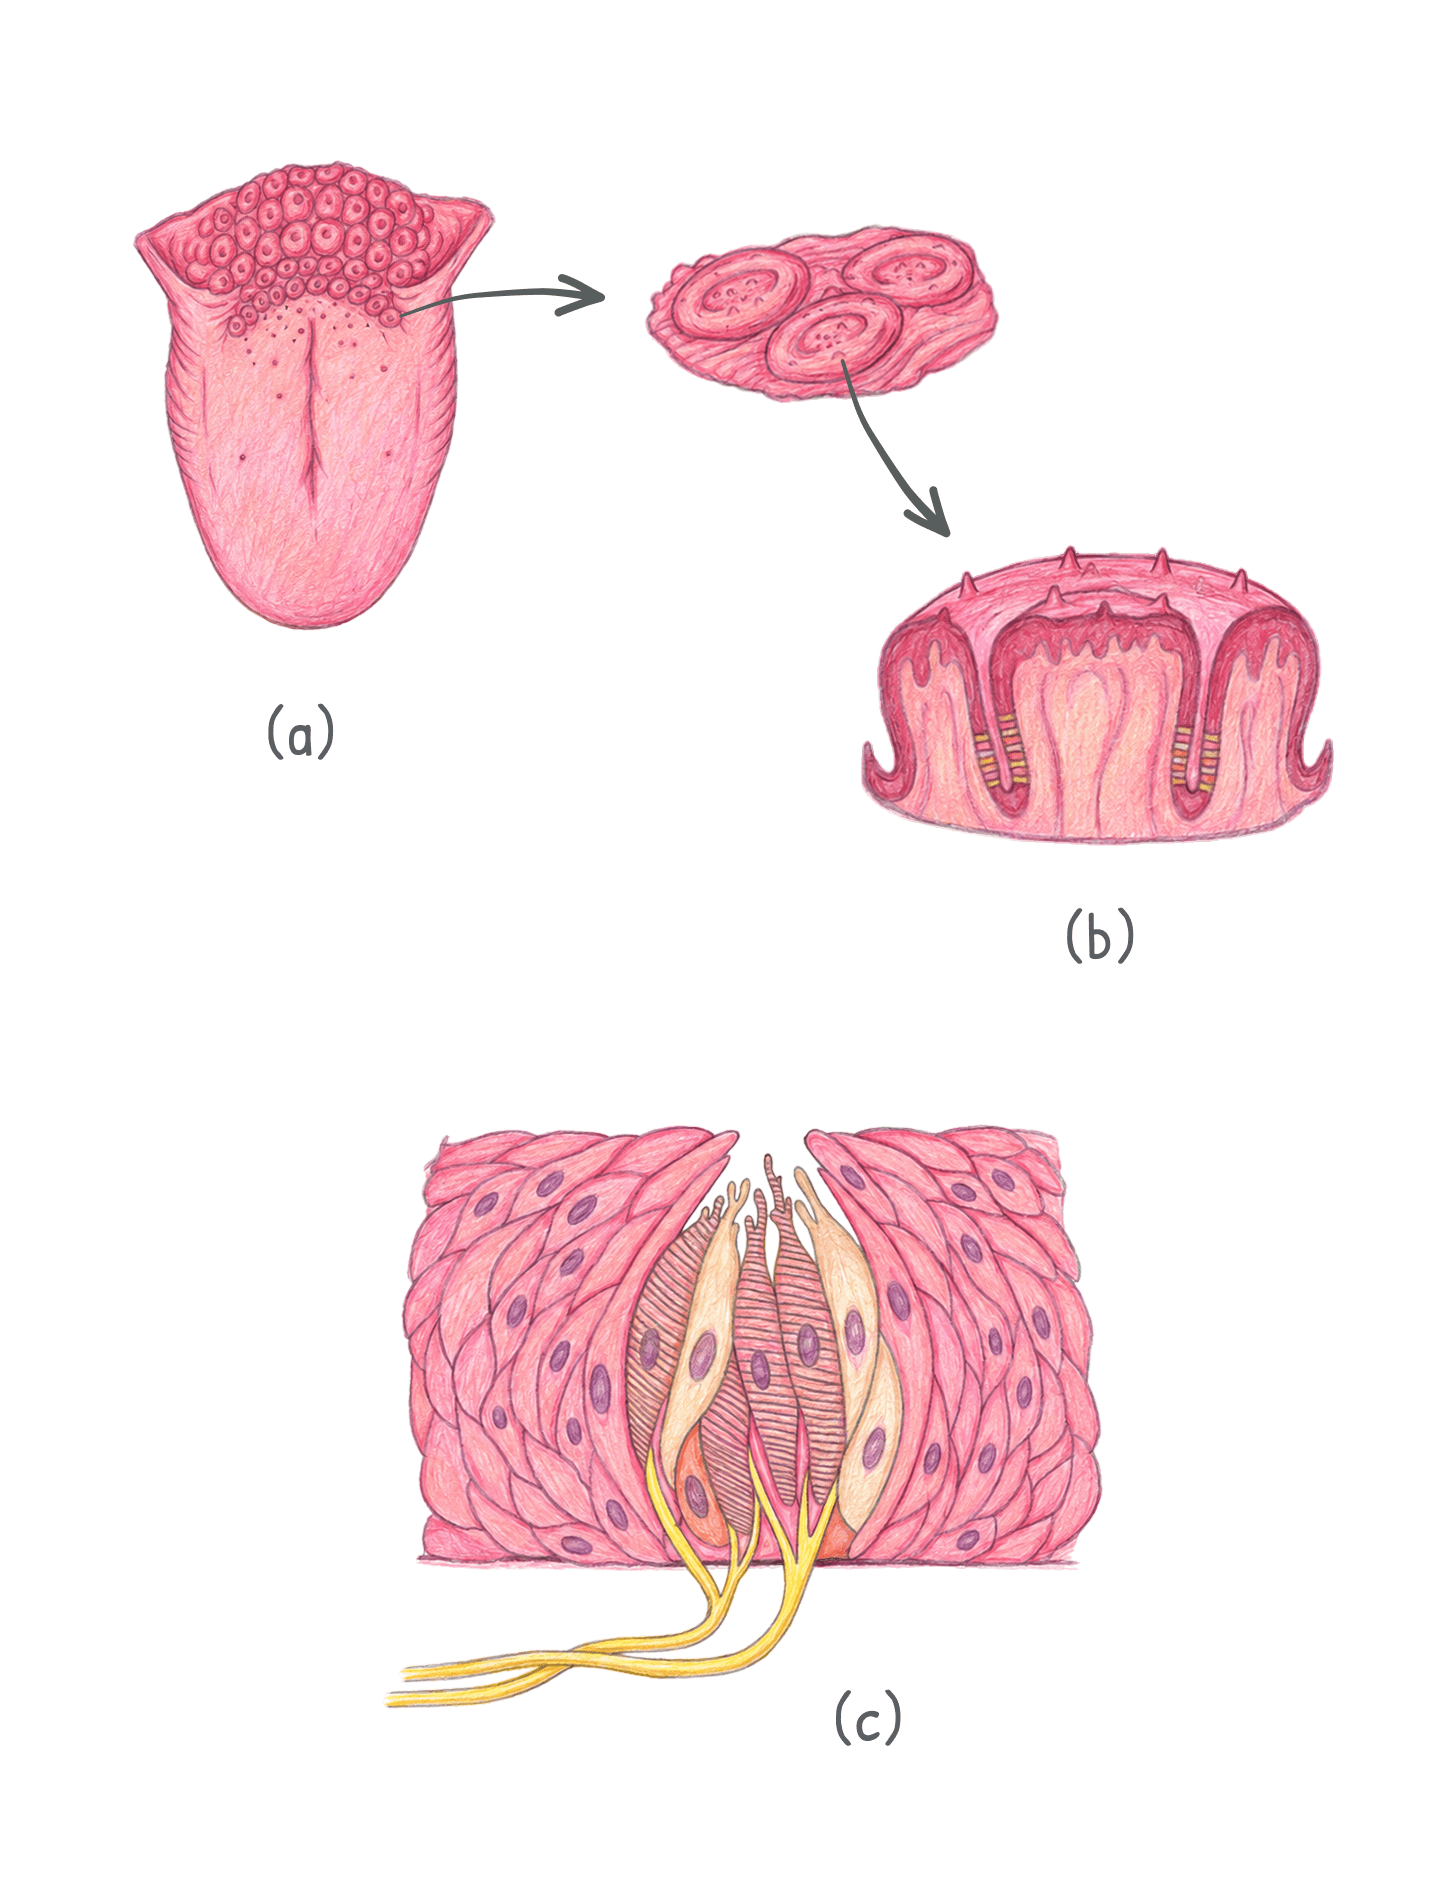
Fig. 12.5 · Biologie Barron's · p. 280
Papilele și mugurii gustativi ai limbiiFigura este o mărire în trei trepte: pornim de la limba întreagă și coborâm, săgeată după săgeată, până la celula care simte efectiv gustul. Simțul gustului, numit și simț gustativ, este un simț bazat pe substanțe chimice dizolvate într-un lichid: după dizolvare, moleculele substanței sunt detectate de mugurii gustativi ai limbii. (a) Limba Primul panou arată suprafața dorsală a limbii, acoperită de mici protuberanțe numite papile. Mugurii gustativi sunt localizați pe suprafața dorsală a limbii, fiind dispuși pe aceste papile. (b) Câteva papile, văzute de aproape Săgeata duce la un grup de papile mărite și, mai jos, la o papilă tăiată în secțiune. Se vede astfel că papilele conțin muguri gustativi la bază, adăpostiți în șanțurile dintre relieful papilei. (c) Un mugure gustativ, în detaliu Ultimul panou taie un singur mugure gustativ, cuibărit în epiteliul limbii. Deasupra lui se deschide un por gustativ, prin care moleculele dizolvate pătrund și ajung la microvilozitățile ce ies din celule. În interiorul mugurelui se disting trei feluri de celule: Celula gustativă, celula specializată care detectează moleculele și generează impulsurile. Ea este receptorul propriu-zis al mugurelui. Celulele de susținere, care însoțesc fiecare celulă gustativă și o înconjoară în mugure. Celula bazală, așezată la baza mugurelui. La partea de jos, mugurele este asociat cu câte o fibră nervoasă senzorială, care transmite impulsurile spre encefal, pentru a fi interpretate. De la por la lobul parietal Pentru a declanșa senzația de gust, moleculele pătrund în porii gustativi ai papilelor și stimulează celulele specializate gustative din mugurii gustativi. Aceste celule generează și transmit impulsuri de-a lungul fibrelor nervoase către ramuri ale nervului facial sau glosofaringian, și mai departe către encefal. Impulsurile trec prin bulb, unde nervii fac sinapsă cu neuroni ce duc la talamus, iar neuronii din talamus le transportă către lobul parietal, unde stimulii gustativi sunt interpretați. Ce gusturi se simt și unde Cele 5 gusturi primare sunt dulce, acru, amar, sărat și umami (datorat aminoacidului numit glutamat). Partea posterioară a limbii este mai sensibilă la moleculele ce stimulează gustul amar, gustul acru stimulează porțiunile antero-laterale ale limbii, iar gustul sărat stimulează mai ales părțile postero-laterale. Gustul dulce și cel sărat sunt detectate cel mai bine la nivelul vârfului limbii, iar receptorii pentru umami sunt localizați în vecinătatea faringelui.
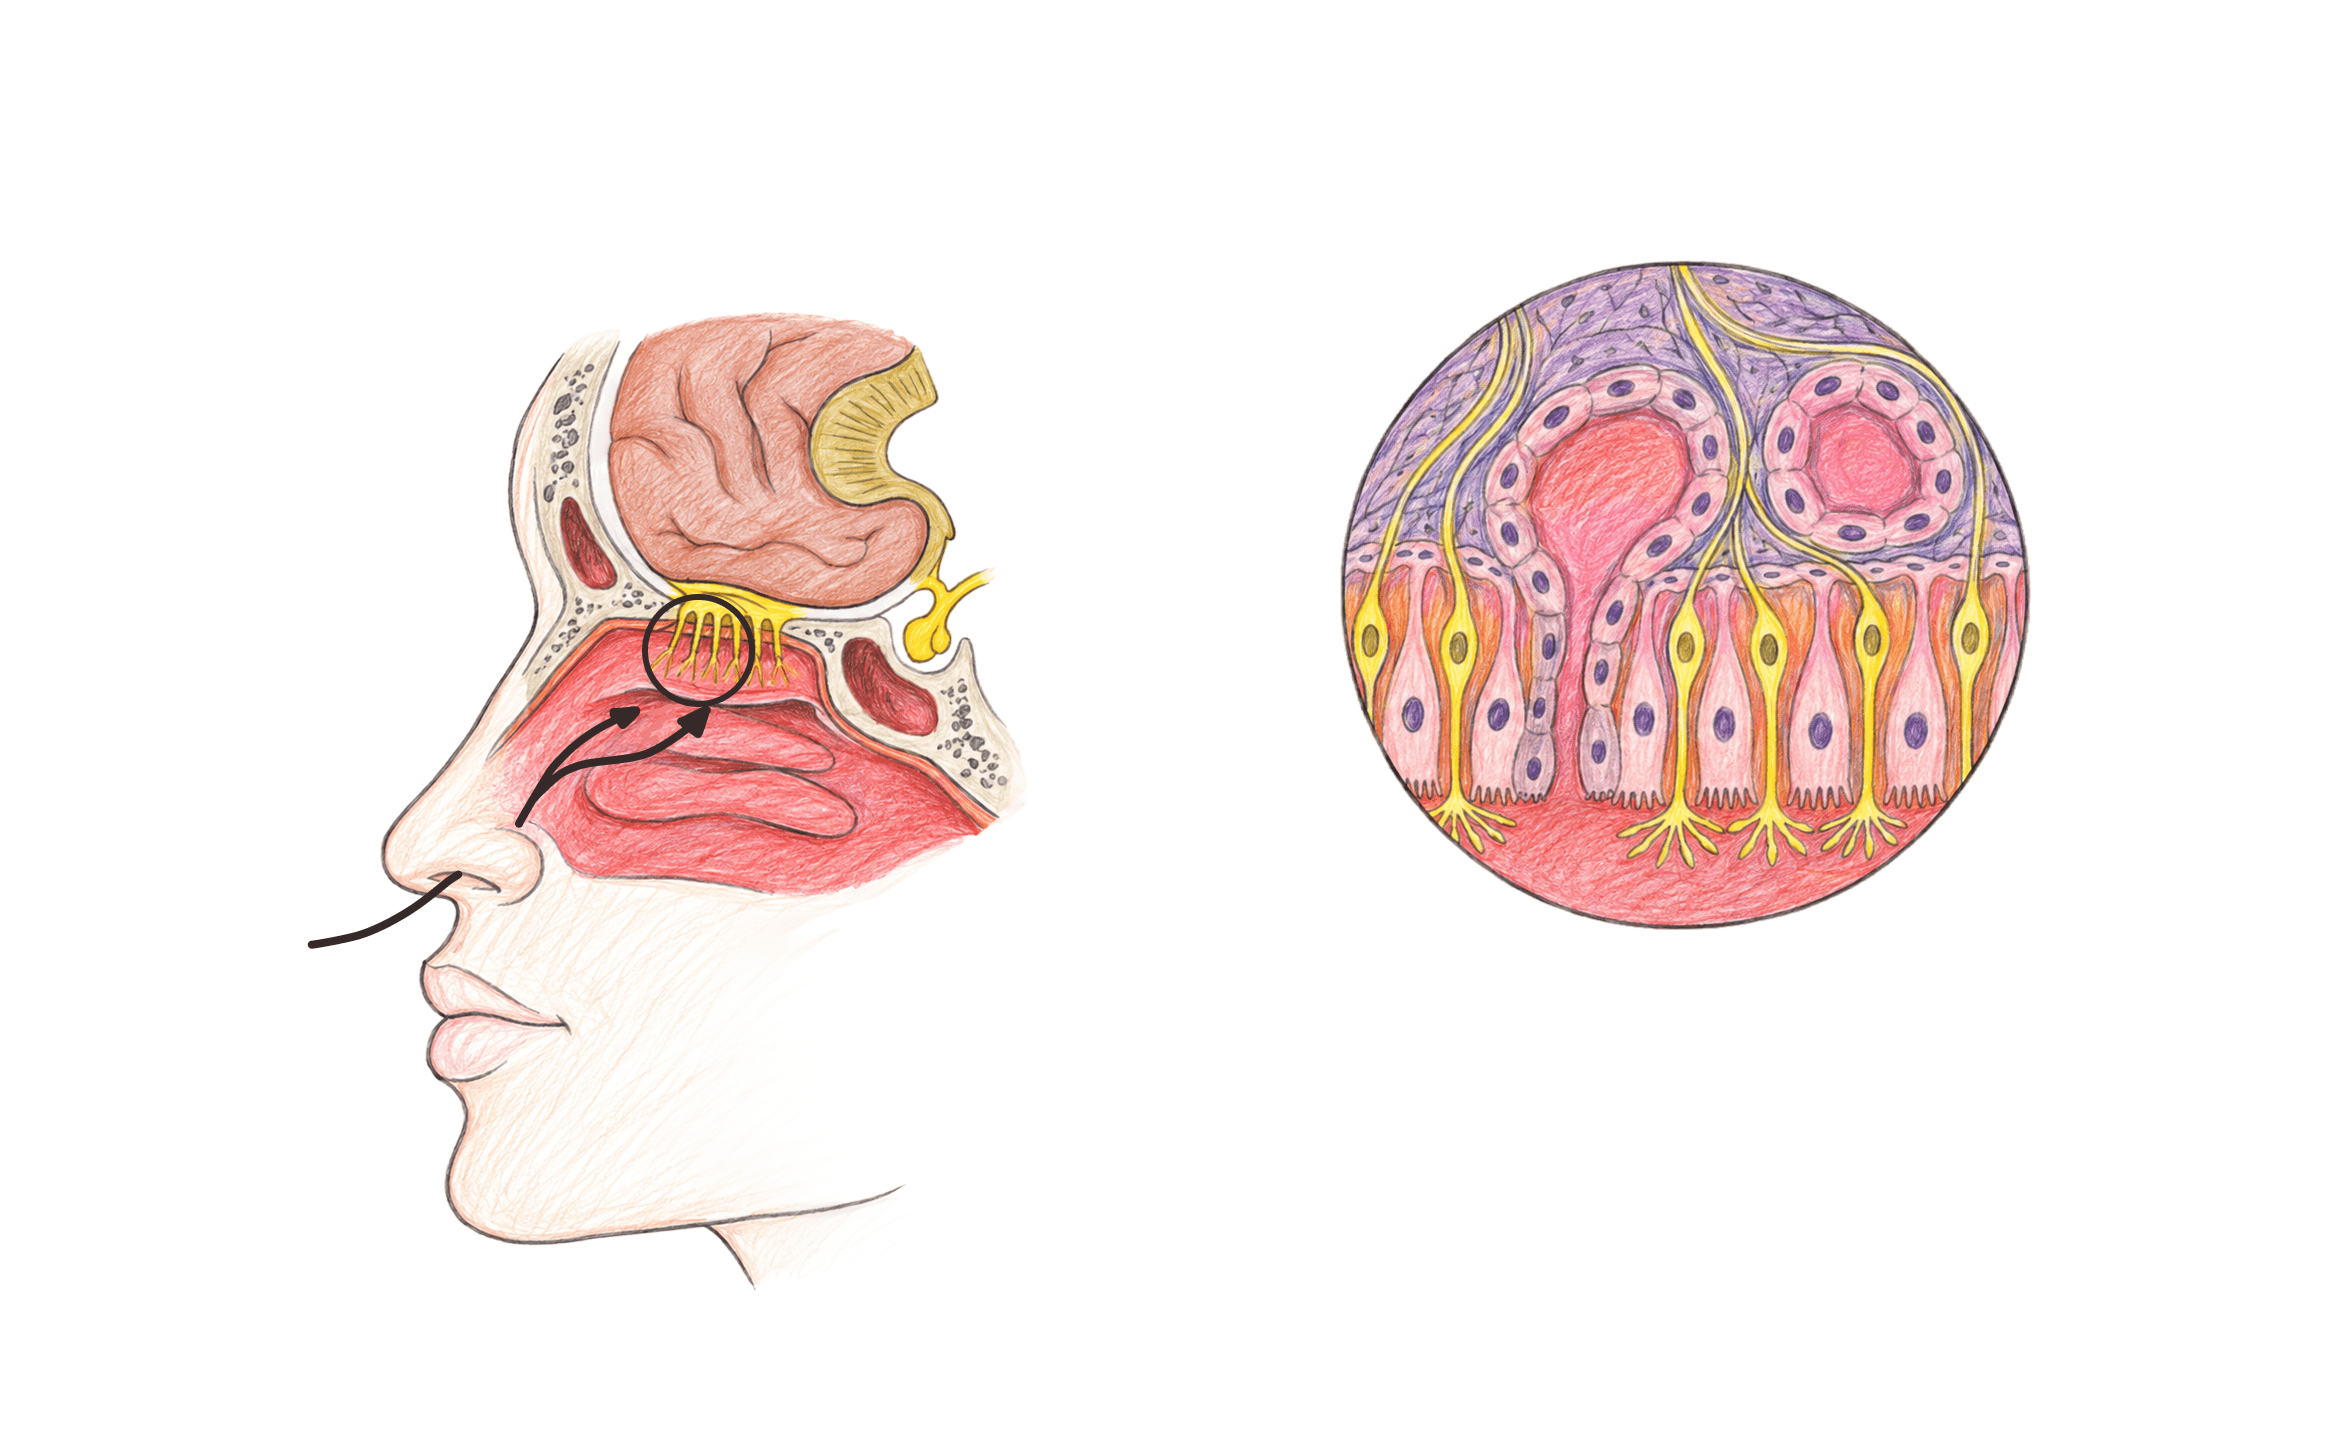
Fig. 12.6 · Biologie Barron's · p. 281
Simțul olfactiv: mucoasa nazală și celulele olfactiveFigura are două părți. În stânga, un cap văzut din profil și tăiat în secțiune arată unde se află receptorii mirosului: sus de tot în nas, într-o zonă mică încercuită în desen. În dreapta, acel cerc este mărit, iar acolo se vede mucoasa cu celulele ei. Simțul mirosului, numit și simț olfactiv, este un simț care necesită contactul dintre receptori și moleculele substanțelor ce urmează a fi detectate. Vederea de ansamblu Aerul inspirat intră în cavitatea nazală, iar moleculele mirositoare urcă până în porțiunea ei superioară. Acolo se găsesc celulele olfactive specializate, localizate în mucoasa acestei porțiuni, cu cilii olfactivi întinși în cavitate. Deasupra lor, dincolo de os, se află bulbul olfactiv. Mărirea: mucoasa olfactivă În cerc se văd, de jos în sus, exact structurile pe care le străbate informația: Cilii olfactivi, prelungirile fine întinse la suprafața mucoasei, pe care le ating moleculele de substanță. Dendritele celulelor olfactive, care coboară până la suprafață și se termină cu cilii. Nucleul celulei olfactive, în corpul celulei, așezat în grosimea mucoasei. Fibrele nervului olfactiv, care pleacă din partea de sus a celulelor și se strâng în nervul olfactiv. Printre celulele olfactive se văd și celule de susținere, iar în grosimea mucoasei este desenată o glandă, ale cărei conducte se deschid la suprafață. Drumul până la encefal La mirosirea unei substanțe, molecule din substanța respectivă pătrund în nas și stimulează celulele olfactive. Acestea generează impulsuri nervoase care se propagă de-a lungul nervului olfactiv. Nervul pătrunde în cutia craniană prin lama ciuruită a osului etmoid, trece prin bulbii olfactivi în tractul olfactiv și se termină în cortexul olfactiv din lobii frontal și temporal, unde stimulii sunt interpretați. De reținut Organismul uman poate detecta peste 4000 de mirosuri diferite, provocate de peste 200 de substanțe chimice odorate. Celulele olfactive pot obosi rapid, iar conștientizarea mirosurilor diminuează.

Fig. 12.7 · Biologie Barron's · p. 282
Principalii receptori pentru simțul tactil, din pieleFigura este un bloc de piele tăiat și privit din lateral, în care sunt marcați principalii receptori pentru simțul tactil. Cheia de citire este adâncimea: receptorii nu stau la întâmplare, ci fiecare la nivelul care i se potrivește, de la suprafață către profunzime. Simțul tactil, precum și simțurile înrudite ca durerea, presiunea și vibrația, utilizează receptori aflați în piele, mușchi, articulații și viscere. Aproape de suprafață Terminațiile nervoase libere sunt fibre care urcă până în stratul de la suprafață și se termină acolo, fără nicio înveliș specială. Ele detectează durerea. Discurile Merkel, desenate în stânga sus ca niște tălpi turtite la capătul unei fibre ramificate, se află tot în piele și detectează stimulii tactili. Ceva mai în profunzime Corpusculii Meissner sunt corpii ovali, înfășurați, așezați în ridicăturile de sub stratul superficial. Sunt desenați în mai multe locuri, pentru că sunt numeroși. Ei detectează presiunile și vibrațiile ușoare. Corpusculul Pacini este cel mai adânc dintre toți, desenat ca un corp mare, cu straturi concentrice ca de ceapă, la capătul unei fibre nervoase, lângă lobulii de țesut de la baza pielii. El recepționează presiunile și vibrațiile puternice de la nivelul pielii. Diagonala care străbate mijlocul desenului este un fir de păr cu fibre nervoase încolăcite în jurul lui, structură detaliată în Figura 5.3, iar straturile pielii în care se află toți acești receptori sunt cele din Figura 5.1. De reținut Mușchii, articulațiile și viscerele dispun de receptori asemănători. Indiferent de unde pornesc, impulsurile sunt transmise către encefal, unde sunt interpretate.

Fig. 12.8 · Biologie Barron's · p. 283
Labirintul osos al urechii interneFigura scoate urechea internă din os și o arată singură, ca să i se vadă forma. Labirintul osos este o structură aflată în interiorul osului temporal, alcătuită dintr-o serie de canale săpate în os. El este sediul cohleei, vestibulului și al canalelor semicirculare și este umplut cu perilimfă, care scaldă labirintul membranos. Perilimfa este asemănătoare cu lichidul cefalorahidian, iar labirintul membranos, cuprins în interiorul celui osos, conține endolimfă, asemănătoare cu lichidul interstițial. Desenul se citește de la stânga la dreapta: buclele echilibrului în stânga sus, zona de mijloc în care se întâlnesc, și melcul auzului în dreapta jos. Canalele semicirculare În interiorul labirintului osos se află trei structuri numite canale semicirculare, care conțin endolimfă și sunt conectate cu cohleea la nivelul unei regiuni numite vestibul. Ele sunt numite după orientarea lor, anterior, posterior și lateral, și sunt dispuse la 120 de grade unul față de celălalt, fiecare fiind conectat cu utricula. În interiorul lor, desenul arată ductele semicirculare, tuburile membranoase mai subțiri care le căptușesc. La locul de joncțiune cu utricula, fiecare canal prezintă o porțiune dilatată, numită ampulă. În figură sunt marcate toate trei, anterioară, posterioară și laterală. În fiecare ampulă se găsește un grup de celule senzoriale ciliate. Vestibulul, utricula și sacula Zona din mijlocul desenului, în care se adună canalele, este vestibulul. În interiorul lui se găsesc două structuri numite utricula și sacula, unite printr-un canal subțire. Utricula și canalele semicirculare sunt asociate simțului echilibrului. De la saculă pornește și legătura cu ductul cohlear, canalul subțire care unește această zonă cu melcul. Cohleea În dreapta jos se vede cohleea, spiralată ca un melc, cu apexul în centrul spiralei și cu ductul cohlear în interiorul ei. Din ea pleacă nervul cohlear, fasciculul desenat spre dreapta sus. Cohleea este partea urechii interne care servește auzul, nu echilibrul. Cum naște echilibrul din aceste structuri În urma modificării poziției capului, endolimfa din canalele semicirculare stimulează celulele ciliate din ampulă, generând impulsuri transmise fibrelor nervoase din jurul lor. Aceste fibre transportă impulsurile către encefal, de-a lungul ramurii vestibulare a nervului vestibulocohlear, iar encefalul trimite înapoi impulsuri motorii mușchilor, care ajustează poziția corpului. Această formă se numește echilibru dinamic. Pentru echilibrul static, cel al posturii, răspund maculele din interiorul saculei și al utriculei, alcătuite din celule ciliate și o membrană ce conține mici fragmente de carbonat de calciu numite otoliți. Reține deosebirea: celulele ciliate din ampulă detectează echilibrul dinamic, iar cele din macule pe cel static. Locul acestor structuri în ansamblul urechii se vede în Figura 12.3.
- 13Sistemul endocrinPaginile 295 - 308

Fig. 13.1 · Biologie Barron's · p. 297
Activitatea hormonilor proteici, peptidici și aminiciFigura urmărește drumul unui hormon proteic, peptidic sau aminic, de la glanda care îl produce până la modificările pe care le declanșează în celula țintă. Se citește de sus în jos, pe săgeți: sus, celula endocrină, la mijloc vasul de sânge, iar jos, o porțiune mărită din celula țintă, cu membrana ei desenată în secțiune. Punctele mici răspândite pe tot traseul sunt chiar moleculele de hormon. De la celula endocrină la celula țintă Celula endocrină produce hormonul. În desen se vede nucleul ei și o veziculă plină cu granule de hormon, din care o săgeată scoate o moleculă afară din celulă. Sângele preia hormonul. Vasul desenat în secțiune conține mai multe molecule de hormon, semn că sângele le transportă până la organele țintă. Membrana celulei țintă oprește hormonul. Molecula se leagă de un receptor specific încastrat în membrană, cel desenat ca o piesă care traversează cele două straturi. Hormonii proteici, peptidici și aminici acționează ca mesageri primari: ei nu pătrund în celulă, ci se leagă de receptorii aflați pe membrana celulelor țintă. Mesagerul secundar și AMP ciclic Legarea de receptor intensifică activitatea unor enzime membranare. O astfel de enzimă este adenilat ciclaza, cea folosită ca exemplu în figură. După activare, adenilat ciclaza transformă moleculele de $\ce{ATP}$ în molecule de adenozin monofosfat ciclic (AMP ciclic, cAMP), pasul marcat în desen prin săgeata care pleacă de la $\ce{ATP}$ și ajunge la ovalul cu AMP ciclic. AMP ciclic este mesagerul secundar. El se dispersează în celulă și accelerează anumite modificări celulare, precum creșterea sintezei proteice, alterarea permeabilității membranare și activarea anumitor enzime. Răspunsul celular Din AMP ciclic pornește săgeata către răspunsul celular, iar de acolo desenul se ramifică în patru efecte posibile, scrise unul sub altul în partea dreaptă: diviziune celulară, secreție, accelerarea sau scăderea metabolismului și contracție musculară. Care dintre ele se produce depinde de celula țintă și de hormonul care a ajuns la ea. Pentru comparație: hormonii steroizi Steroizii nu au nevoie de acest traseu. Ei se dizolvă în fosfolipide și trec cu ușurință prin membrana celulară, iar în citoplasma celulelor țintă se combină cu proteine. Complexul rezultat stimulează activitatea unor gene care codifică tipuri specifice de molecule de ARN mesager, ceea ce duce la declanșarea sintezei proteice și la modificări ale metabolismului celular. Imediat după această figură, manualul mai adaugă două moduri de acțiune: mecanismul autocrin, în care hormonul acționează asupra celulei care l-a secretat, și mecanismul paracrin, în care hormonii secretați de o celulă endocrină acționează asupra celulelor din imediata vecinătate.

Fig. 13.2 · Biologie Barron's · p. 298
Glandele endocrine și relația lor cu principalele organe din corpFigura este harta întregului sistem endocrin: un corp văzut din față, cu capul în secțiune, în care sunt desenate atât glandele endocrine propriu-zise, cât și organele mari lângă care se așază ele. Merită parcursă de sus în jos, pentru că așa se reține cel mai ușor unde se află fiecare glandă. Manualul pornește tocmai de la această idee: sistemul endocrin este alcătuit din glande endocrine și din celule endocrine dispuse difuz în diferite țesuturi, iar toate acestea secretă hormoni pe care îi elimină în sânge. Glandele din cap și din gât Epifiza (glanda pineală), o glandă mică situată în mezencefal, pe peretele superior al ventriculului III. Este legată de talamus și secretă melatonină. Hipofiza (glanda pituitară), de mărimea unui bob de mazăre, în partea inferioară a encefalului, într-o depresiune a osului sfenoid numită sella turcica (șaua turcească), imediat înapoia chiasmei optice (Figura 13.3). Tiroida, situată în țesuturile moi ale gâtului, în fața laringelui, desenată aici ca un fluture cu doi lobi (Figura 13.4). Eticheta ei amintește că în spatele ei se află paratiroidele, patru mici mase de țesut glandular așezate pe fața posterioară a tiroidei, deci invizibile într-o vedere anterioară (Figura 13.5). Glandele din trunchi Timusul, desenat între cei doi plămâni, este localizat în mediastinul superior, înapoia sternului. Secretă timozine, hormoni implicați în maturarea și dezvoltarea limfocitelor T. Pancreasul, organul alungit din cavitatea abdominală, așezat posterior de stomac. Are atât funcție digestivă, cât și endocrină, prin insulina și glucagonul produse în insulele pancreatice (insulele Langerhans). Glandele suprarenale, o pereche de glande așezate la polul superior al rinichilor, motiv pentru care apar în desen ca două căciuli mici deasupra lor. Ovarele și testiculele, glandele sexuale. În ovare, celulele foliculare secretă estrogeni și progesteron, hormonii feminini, iar testiculele secretă testosteron și alți androgeni, hormonii masculini. Organele care conțin celule endocrine Restul organelor din desen nu sunt glande, dar conțin celule endocrine, iar de aceea manualul le trece pe aceeași hartă: În inimă, plămân și rinichi există celule endocrine ce secretă cantități extrem de mici de hormoni non-steroizi, denumiți prostaglandine, cu diverse efecte asupra țesuturilor, ca de exemplu contracția țesutului muscular neted. Celulele rinichiului produc și eritropoetină, un hormon care stimulează sinteza hematiilor în măduva osoasă roșie. În epiteliul care tapetează stomacul și intestinul subțire se găsesc câteva celule endocrine digestive, care secretă gastrină, secretină și alți hormoni implicați în procesele digestive. Oricare ar fi sursa, drumul hormonului este același: sângele îl transportă până la organele țintă, unde produce modificări biochimice și fiziologice, legându-se de receptori specifici aflați pe suprafața sau în interiorul celulei.
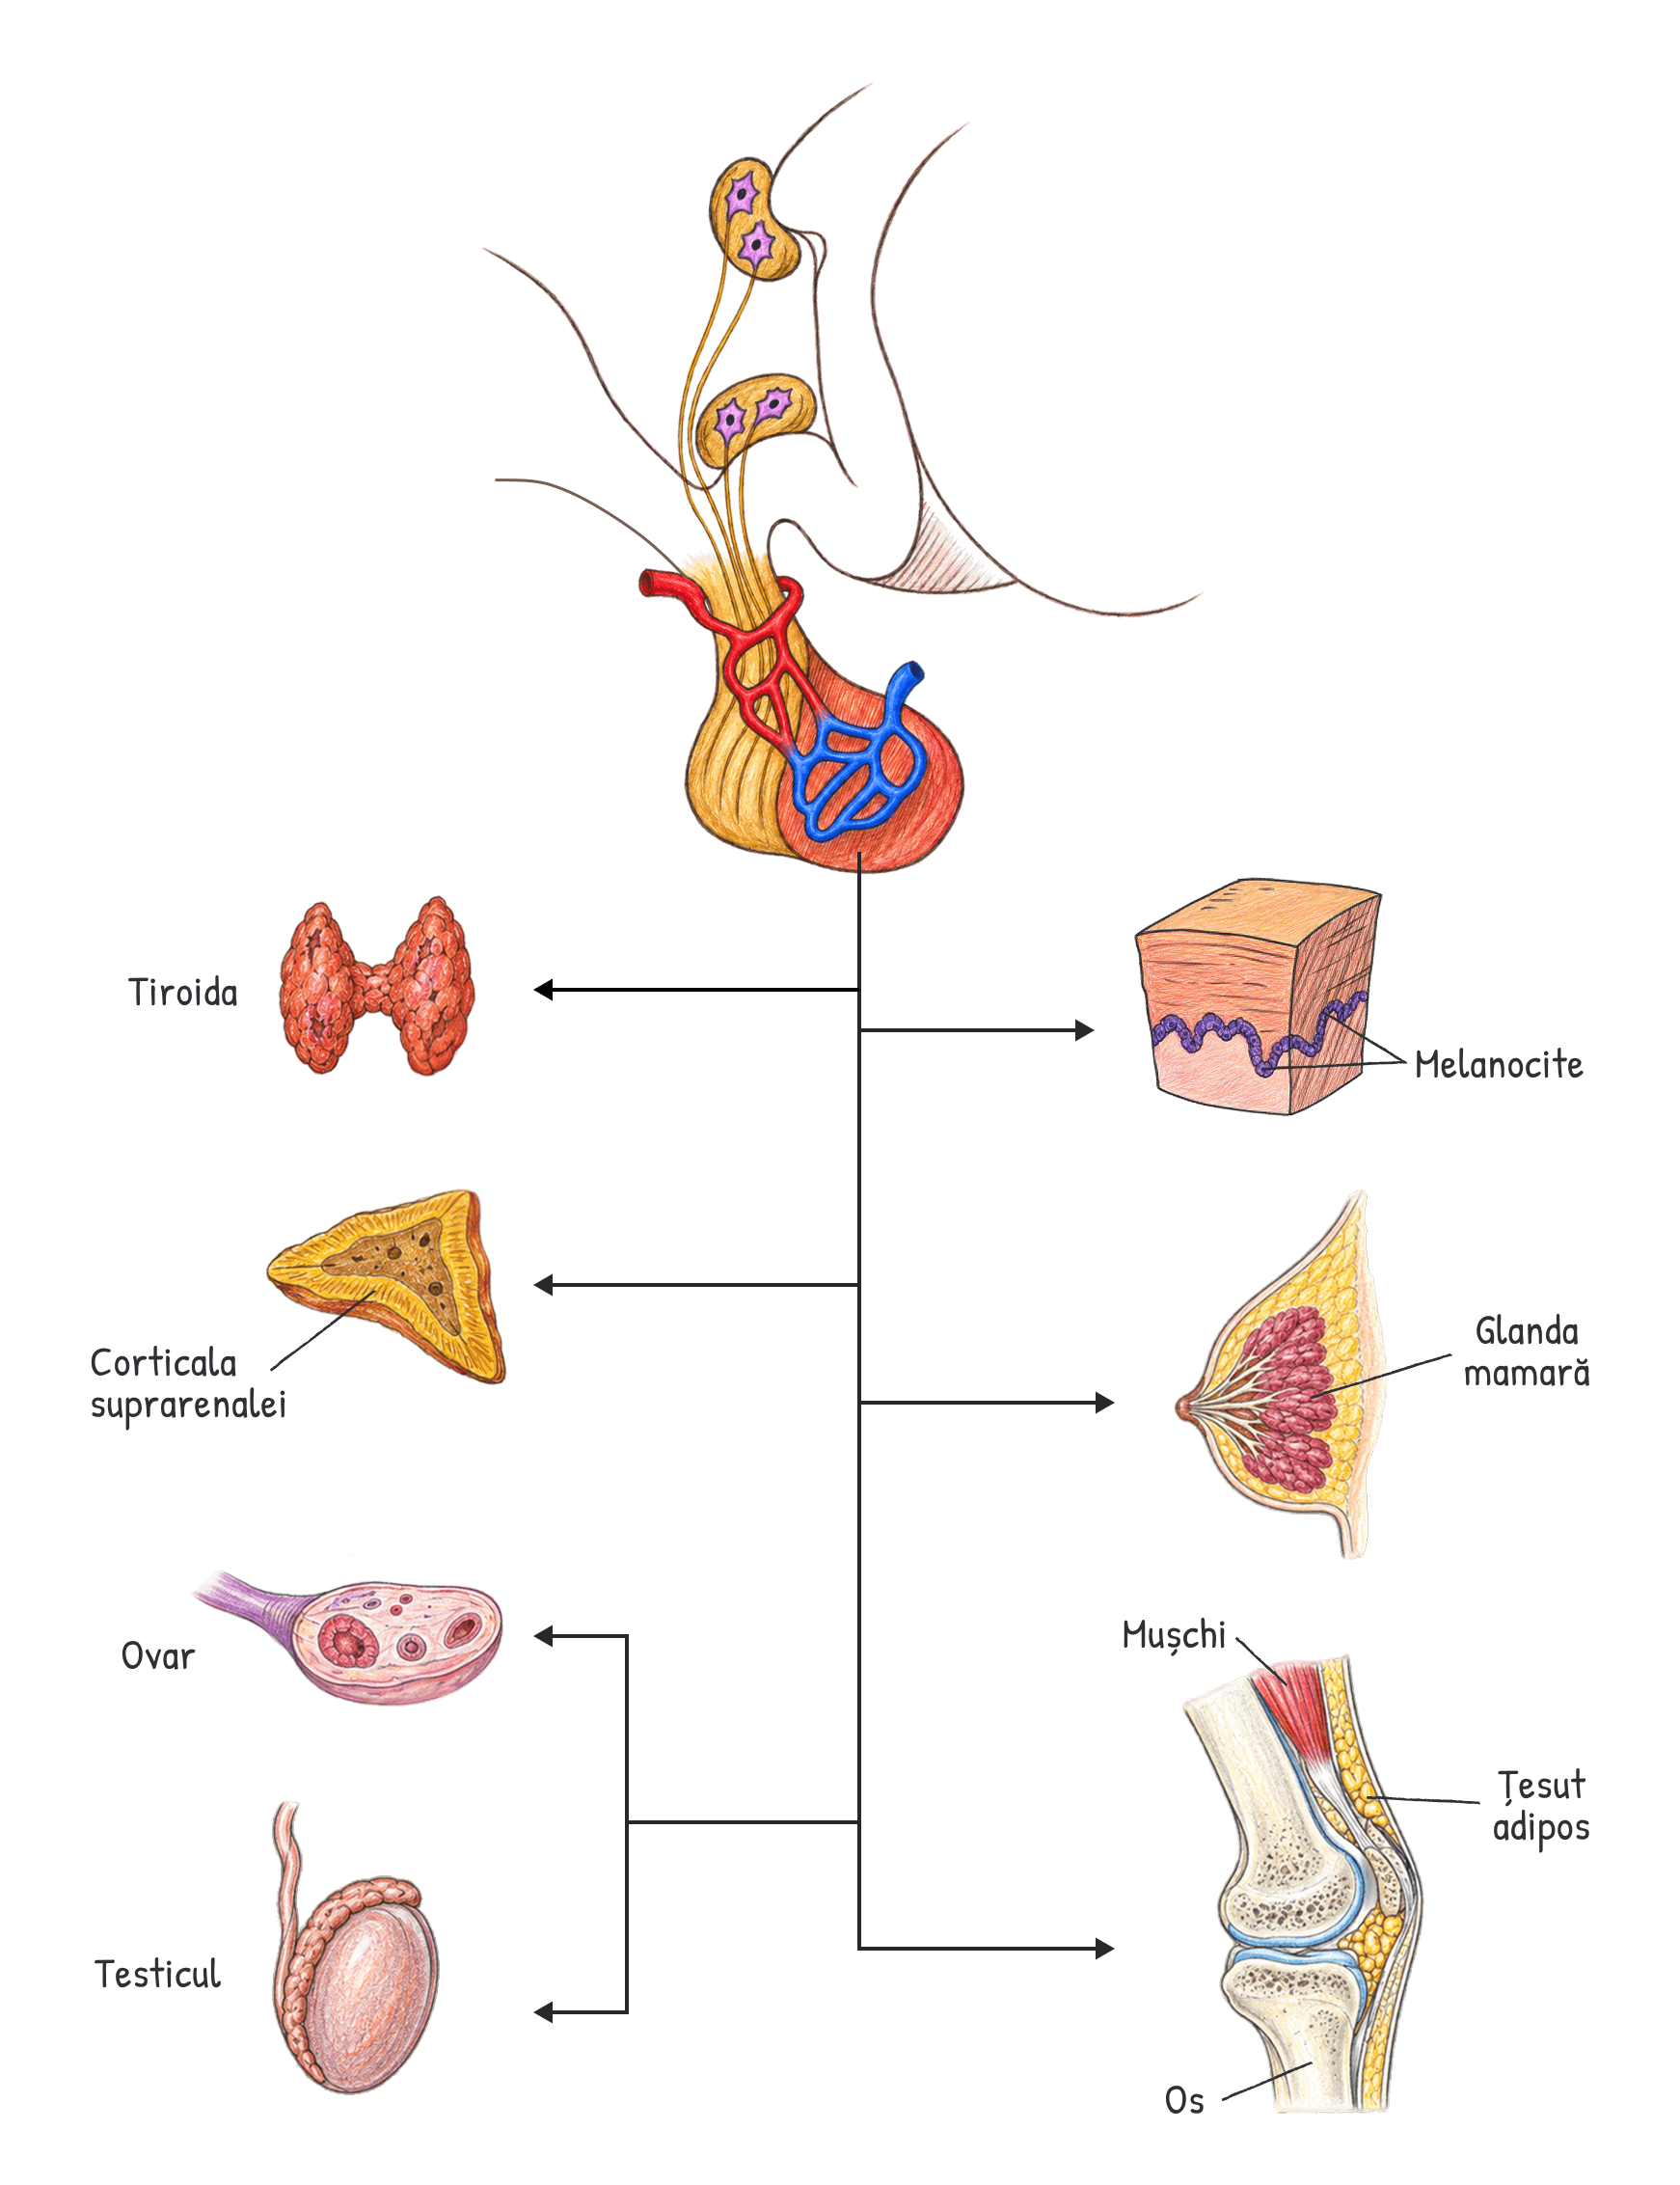
Fig. 13.3 · Biologie Barron's · p. 299
Adenohipofiza: hormonii ei și organele țintăÎn centrul figurii, sus, se vede hipofiza în secțiune, atârnată de hipotalamus printr-o tijă. Din partea de jos a adenohipofizei coboară o linie din care se ramifică săgeți spre stânga și spre dreapta, până la organele țintă ale hormonilor ei. Așa se citește figura: pleci de la glandă, urmărești o săgeată și vezi unde ajunge hormonul și ce țesut controlează. Săgețile din stânga duc la glande endocrine, iar cele din dreapta la alte țesuturi. Manualul precizează că hormonii neurohipofizari nu sunt reprezentați aici, deci tot ce vezi vine din lobul anterior. Legătura dintre hipotalamus și hipofiză Hipofiza are un lob anterior, adenohipofiza, și unul posterior, neurohipofiza. Neurohipofiza nu este o glandă endocrină propriu-zisă, ci un rezervor al hormonilor produși de hipotalamusul situat deasupra ei. Cele două sunt legate printr-o tijă numită infundibul: celulele neurosecretoare din hipotalamus sintetizează neurohormoni, care sunt transportați de-a lungul infundibulului în neurohipofiză, unde sunt stocați temporar. Adenohipofiza primește comenzile pe alt drum, desenat tot în figură: hipotalamusul secretă hormoni stimulatori și hormoni inhibitori, eliberați în vasele sistemului port hipotalamo-hipofizar, prin care ajung în hipofiză. Hormonii stimulatori cresc rata de sinteză și de eliberare a hormonilor hipofizei anterioare, pe când cei inhibitori o diminuează. Cei șapte hormoni adenohipofizari și țintele lor Hormonul de creștere (hormonul somatotrop, STH, sau HGH) ajunge la mușchi, os și țesut adipos, cele trei țesuturi din secțiunea prin membru desenată în dreapta jos. El accelerează creșterea organismului prin stimularea introducerii aminoacizilor și a proteinelor în celule, prin promovarea sintezei proteice și mobilizarea grăsimilor. Este o proteină alcătuită din 191 de aminoacizi. TSH, hormonul stimulator tiroidian, merge la tiroidă. Reglează dezvoltarea glandei, stimulează captarea iodului și controlează sinteza și eliberarea hormonilor tiroidieni (Figura 13.4). ACTH, hormonul adrenocorticotrop, are ca țintă corticala suprarenalei. Acolo influențează creșterea tisulară și stimulează secreția unor hormoni numiți glucocorticoizi (Figura 13.8). Prolactina ajunge la glanda mamară, unde stimulează producerea laptelui pentru alăptarea nou-născutului. FSH și LH sunt hormonii gonadotropi, numiți așa pentru că au efecte asupra gonadelor. În desen, au o săgeată comună, care se desparte spre ovar și spre testicul. FSH stimulează la femei dezvoltarea foliculilor ovarieni în vederea producerii ovulelor, iar la bărbați producerea spermatozoizilor. LH stimulează la femei maturarea foliculilor ovarieni și ovulația, precum și secreția de estrogeni și progesteron de către corpul galben, iar la bărbați producerea testosteronului la nivel testicular. MSH, hormonul melanocito-stimulator, are singura săgeată care se îndreaptă către piele: ea ajunge la blocul de piele, prima țintă din partea dreaptă, unde sunt indicate melanocitele. MSH controlează pigmentarea pielii. De ce este hipofiza glanda dirijor Hormonii care controlează alte glande endocrine se numesc hormoni tropi. În figură, săgețile lor sunt toate în partea stângă: TSH acționează asupra tiroidei, ACTH asupra corticalei suprarenalei, iar FSH și LH asupra gonadelor. Pentru că hormonii lobului anterior comandă astfel alte glande, hipofiza este considerată glanda „dirijor” a sistemului endocrin.

Fig. 13.4 · Biologie Barron's · p. 301
Glanda tiroidă, fața anterioarăFigura arată gâtul văzut din față, cu glanda tiroidă așezată peste laringe și peste începutul traheei. Este util de citit de sus în jos, pentru că exact așa descrie și manualul poziția glandei: ea este situată în țesuturile moi ale gâtului, în fața laringelui. Forma glandei Tiroida este compusă din doi lobi laterali interconectați prin intermediul unei benzi de țesut numită istm. În desen se văd amândoi, ca două mase granulare de o parte și de alta a liniei mediane, dar denumit este doar cel din dreapta imaginii, lobul stâng al tiroidei (într-o vedere din față, stânga persoanei cade în dreapta privitorului). Istmul le unește pe dinaintea traheei. Poziția fiecărui lob este dată exact: vârful lui se situează lateral de treimea inferioară a cartilajului tiroidian al laringelui, iar baza se află lateral față de porțiunea superioară a traheei. Urmărind desenul de sus în jos regăsești această ordine: osul hioid, cartilajul tiroidian, apoi glanda, apoi inelele traheei. Reperele din jur Osul hioid, cel mai sus, deasupra laringelui. Cartilajul tiroidian al laringelui, piesa mare desenată imediat deasupra glandei. Traheea, tubul cu inele cartilaginoase care coboară pe sub istm. Vasele sanguine, desenate ieșind din glandă și coborând în torace. Prin ele ajung în sânge hormonii tiroidieni. Ce produce glanda Glanda tiroidă secretă trei hormoni principali: tiroxina, triiodotironina și calcitonina. Tiroxina (T4) și triiodotironina (T3) accelerează rata metabolismului celular în tot organismul: stimulează activitatea enzimelor asociate cu metabolismul glucozei și, prin urmare, cresc rata metabolismului bazal, cantitatea de oxigen consumată de celule și cantitatea de căldură produsă. Ei stimulează și creșterea numărului de receptori din vasele sanguine, având un rol în menținerea presiunii sanguine, iar la tineri reglează creșterea și stimulează maturarea sistemului nervos. Sinteza lor este reglată de hormonul stimulator tiroidian (TSH), secretat de adenohipofiză (Figura 13.3). Pentru ca tiroida să poată produce tiroxină și triiodotironină este necesar aportul alimentar de iod: dacă iodul este indisponibil, tiroida crește în dimensiuni, creștere numită gușă. Al treilea hormon, calcitonina, scade nivelul calciului în sânge și crește depunerea acestuia în oase. Ea este antagonistul parathormonului secretat de glandele paratiroide, care se află pe fața posterioară a tiroidei și deci nu apar în această vedere anterioară (Figura 13.5).

Fig. 13.5 (a) · Biologie Barron's · p. 303
Glandele paratiroide, pe fața posterioară a tiroideiFigura este o vedere din spate a gâtului și arată unde se află glandele paratiroide. Ce face hormonul lor, parathormonul, arată Figura 13.5 (b). Unde se află glandele paratiroide Glandele paratiroide sunt patru mici mase de țesut glandular localizate pe fața posterioară a glandei tiroide, fiecare de aproximativ mărimea unui bob de mazăre. În desen le recunoști ca patru ovale mici așezate câte două pe fiecare lob tiroidian, două mai sus și două mai jos. Tocmai pentru că stau pe fața din spate a tiroidei, ele nu se văd într-o vedere anterioară (Figura 13.4). Reperele din jur Restul figurii dă reperele, de sus în jos: epiglota, osul hioid, partea posterioară a laringelui cu cartilajul tiroid, apoi tiroida cu paratiroidele ei și, la bază, traheea.

Fig. 13.5 (b) · Biologie Barron's · p. 303
Acțiunea parathormonului asupra nivelului sanguin al calciuluiFigura este o schemă a acțiunii parathormonului. Sus este scris semnalul de pornire, „Când nivelul sanguin al calciului scade”, iar jos rezultatul, „Crește nivelul sanguin al calciului”. Între ele, săgețile pleacă de la glandele paratiroide spre cele trei organe asupra cărora acționează hormonul, iar din fiecare organ coboară o linie spre rezultat. Când nivelul sanguin al calciului scade, paratiroidele eliberează parathormonul (PTH). În schemă, ele sunt desenate ca patru puncte pe tiroidă, dar în realitate stau pe fața ei posterioară, așa cum arată Figura 13.5 (a). Din linia „Eliberare PTH” pleacă săgeți spre os, spre rinichi și direct spre intestin. Cele trei ținte ale parathormonului Osul. Săgeata spre os poartă eticheta „Activarea osteoclastelor”: PTH crește resorbția calciului din oase prin stimularea activității osteoclastelor. Linia care coboară din os, „Eliberare de calciu”, arată calciul care trece astfel în sânge. Rinichiul. Săgeata spre rinichi poartă eticheta „Activarea vitaminei D”: PTH stimulează activarea renală a vitaminei D. Tot în rinichi, PTH influențează reabsorbția calciului în tubii renali, deci mai puțin calciu se pierde prin urină. Asta arată linia care coboară din rinichi, „Reabsorbție de calciu”. Intestinul. Spre el duc două săgeți. Una vine direct de la paratiroide, pentru că PTH influențează absorbția calciului la nivelul mucoasei intestinale. Cealaltă vine din rinichi, cu eticheta „Vitamina D activată”: vitamina D activată în rinichi reglează apoi absorbția calciului în intestin. Linia care coboară din intestin poartă eticheta „Absorbție de calciu”. Cele trei linii se unesc jos, în același rezultat: crește nivelul sanguin al calciului. Echilibrul cu calcitonina Parathormonul are acțiune antagonistă față de calcitonină, hormonul secretat de tiroidă. Calcitonina stimulează creșterea osoasă, iar parathormonul resorbția osoasă. Amândoi controlează nivelul sanguin al calciului, trăgând în direcții opuse. Bolile datorate hipersecreției de parathormon se datorează, în general, unei tumori paratiroidiene, iar semnele lor caracteristice sunt deformările și scăderea densității oaselor.

Fig. 13.6 · Biologie Barron's · p. 304
Pancreasul în poziția sa anatomicăFigura este o vedere frontală a etajului superior al cavității abdominale, cu pancreasul în centru. Ca să poată fi văzut, stomacul a fost ridicat spre stânga: în mod normal el stă chiar înaintea pancreasului, pentru că pancreasul este localizat posterior de stomac și de peritoneu. Restul denumirilor sunt repere din jur, mai ales vasele mari care îl înconjoară. Cele trei părți ale pancreasului Pancreasul este un organ glandular de dimensiuni mari, cu o formă aplatizată, așezat transversal în abdomen. În desen se citește de la stânga la dreapta privitorului: Capul pancreasului, porțiunea groasă din stânga imaginii, cuprinsă în potcoava duodenului. Corpul pancreasului, porțiunea mijlocie, alungită, care traversează linia mediană. Coada pancreasului, capătul subțiat care se îndreaptă spre splină și ajunge în contact cu ea. Vasele care îl înconjoară Pancreasul este străbătut și înconjurat de vase mari, desenate aici în detaliu. Sus, aorta abdominală coboară pe linia mediană și dă trunchiul celiac, din care pleacă artera splenică, cea care merge înspre splină de-a lungul marginii superioare a glandei. Vena splenică urmează același traseu, în spatele pancreasului. La nivelul capului coboară artera gastroduodenală, iar sub corpul glandei se văd artera mezenterică superioară și vena mezenterică inferioară. Organele vecine Duodenul îmbrățișează capul pancreasului, formând în jurul lui o curbură în formă de potcoavă. Splina este organul mare din dreapta imaginii, de care se sprijină coada pancreasului. Pilierii diafragmatici sunt fasciculele desenate sus, în spatele vaselor mari, la limita dintre torace și abdomen. Ce se întâmplă înăuntru Pancreasul are atât funcție digestivă, cât și funcție endocrină. Funcția digestivă constă în producerea de enzime digestive pancreatice, iar cea endocrină în producerea a doi hormoni principali, insulina și glucagonul. În pancreas există mult mai multe celule ce produc enzime digestive decât celule ce produc hormoni. Acestea din urmă se găsesc în interiorul insulelor pancreatice (insulele Langerhans), despre care se spune că sunt „insule” de țesut endocrin într-o „mare” de țesut ce produce enzime digestive. Insulina este produsă de celulele beta din insulele Langerhans, după ingestia de alimente. Este un hormon proteic compus din 51 de aminoacizi asamblați în două lanțuri proteice și acționează în întregul organism, stimulând intrarea moleculelor de glucoză în celule și scăzând astfel nivelul sanguin al glucozei. Glucagonul este produs de celulele alfa și are efectul opus (Figura 13.7).

Fig. 13.7 · Biologie Barron's · p. 305
Efectele antagoniste ale insulinei și ale glucagonuluiFigura este o buclă închisă, desenată în jurul a trei elemente: ficatul, sus în stânga, pancreasul, în dreapta, și un șir de celule ale organismului, jos. Fiecare săgeată poartă scris pe ea ce se întâmplă, iar textele din dreapta spun de fiecare dată ce declanșează secreția. Cel mai ușor se citește pornind din dreapta, de la pancreas, și urmărind separat cele două trasee, unul pentru insulină și unul pentru glucagon. Când glicemia este ridicată: insulina Nivelul crescut de glucoză din sânge stimulează secreția de insulină. De la pancreas pleacă două săgeți ale insulinei: una către ficat, unde insulina stimulează formarea glicogenului, deci glucoza este pusă deoparte sub formă de rezervă, una către șirul de celule de jos, unde insulina stimulează pătrunderea glucozei din sânge în celule. Ambele duc în același loc, scris în stânga jos: scade nivelul sanguin al glucozei. Insulina este un hormon proteic compus din 51 de aminoacizi asamblați în două lanțuri proteice, produs de celulele beta din insulele Langerhans după ingestia de alimente. Când glicemia este scăzută: glucagonul Nivelul scăzut de glucoză din sânge stimulează secreția de glucagon, hormonul produs de celulele alfa din insulele Langerhans în lipsa aportului alimentar. Săgeata lui urcă spre ficat, unde glucagonul stimulează descompunerea glicogenului (glicogenoliza). Procesul are ca rezultat molecule de glucoză, care sunt eliberate în sânge, iar săgeata care iese din ficat, în sus, arată că crește nivelul sanguin al glucozei. Glucagonul promovează și gluconeogeneza, formarea glucozei din aminoacizi și molecule lipidice acide, proces care are ca efect și îndepărtarea aminoacizilor din sânge. Cercul din ficat În interiorul ficatului este desenat un cerc mic cu două săgeți în sensuri opuse, între glicogen și glucoză. Acolo se vede cel mai clar antagonismul celor doi hormoni: insulina împinge reacția dinspre glucoză spre glicogen, glucagonul în sens invers, dinspre glicogen spre glucoză. Glucagonul crește nivelul sanguin al glucozei, pe când insulina îl scade. De reținut Insulina este eliberată postprandial, adică după masă, și stimulează pătrunderea glucozei în celule. Glucagonul este eliberat în condiții de înfometare și crește nivelul sanguin al glucozei. Cei doi hormoni sunt produși de același organ, pancreasul (Figura 13.6), dar de tipuri diferite de celule ale insulelor Langerhans: celulele beta pentru insulină, celulele alfa pentru glucagon.

Fig. 13.8 · Biologie Barron's · p. 306
Glanda suprarenală: cele două regiuni și hormonii lorFigura leagă anatomia de chimie. În stânga este desenat rinichiul, cu glanda suprarenală așezată pe polul lui superior. Chenarul de dedesubt mărește glanda și o arată în secțiune, cu cele două regiuni ale ei. De la numele fiecărei regiuni pornesc spre dreapta câte două săgeți, către formulele structurale a patru hormoni, așezate una sub alta, iar regiunea de la care pleacă săgeata îți spune din ce parte a glandei provine hormonul. Cele două regiuni ale glandei Glandele suprarenale sunt glande pereche localizate la polul superior al rinichilor. Fiecare glandă suprarenală are două porțiuni: Corticala, la periferie (la exterior), stratul de la marginea secțiunii, Medulara, în centru, zona internă a glandei. Ele nu sunt doar două straturi ale aceluiași țesut: secretă categorii de hormoni complet diferite, iar figura le separă tocmai prin săgețile care pleacă de la numele fiecăreia. Hormonii medularei: catecolaminele Cele două săgeți care pleacă de la medulară duc la primele formule de sus, noradrenalină (norepinefrină) și adrenalină (epinefrină). Medulara glandei suprarenale secretă o serie de hormoni aminici denumiți catecolamine, printre care acești doi. Amândoi pregătesc organismul pentru efort fizic intens și pentru reacția „fight or flight”, acționând împreună cu sistemul nervos simpatic. Cele două formule desenate sunt aproape identice: același inel cu două grupări $\ce{OH}$ și același lanț lateral. Ele diferă doar la capătul lanțului, unde noradrenalina are gruparea $\ce{NH2}$, iar adrenalina $\ce{NH-CH3}$. Hormonii corticalei: steroizii Celelalte două săgeți pleacă de la corticală și duc la formulele de jos, aldosteron și cortizol. Hormonii zonei corticale sunt denumiți glucocorticoizi și mineralocorticoizi: Mineralocorticoizii au ca reprezentant aldosteronul. Ei reglează concentrația de electroliți, în special sodiu și potasiu, din sânge și fluidele corporale, iar secreția lor este reglată chiar de concentrația sanguină a electroliților. Glucocorticoizii, dintre care cel mai important este cortizolul, au efecte asupra metabolismului carbohidraților, proteinelor și lipidelor, stimulează vasoconstricția și au rol antiinflamator. Secreția lor este reglată de hormonul adrenocorticotrop (ACTH) din adenohipofiză, printr-un mecanism de feedback negativ (Figura 13.3). Cortizolul și aldosteronul sunt hormoni steroizi, cu o configurație moleculară tipică pentru aceștia: în desen se recunoaște scheletul de patru inele lipite, foarte diferit de moleculele mici ale catecolaminelor. Pe lângă aceștia, corticala mai produce și hormoni steroizi care influențează caracterele sexuale, suplimentari față de cantitatea mult mai mare de hormoni sexuali produși de gonade. Când echilibrul se strică Hipo- sau hipersecreția de hormoni corticali provoacă diverse boli. Boala Addison apare în urma hiposecreției de glucocorticoizi și mineralocorticoizi și este însoțită de un dezechilibru al sodiului și al potasiului, un ten închis la culoare, deshidratare, hipotensiune și o stare generală de slăbiciune. Hipersecreția de glucocorticoizi are ca rezultat sindromul Cushing, însoțit de umflarea feței, hipertensiune și slăbiciune musculară generalizată.

Fig. 13.9 · Biologie Barron's · p. 307
Timusul în poziție anatomicăFigura arată toracele unui copil, văzut din față, cu peretele anterior îndepărtat. În centru, chiar sub baza gâtului, se află timusul, iar în jurul lui sunt denumite vasele mari, nervul vag și organele vecine. Este util de citit de sus în jos: gât, apoi mediastinul superior cu timusul, apoi plămânii și inima, iar la bază diafragma. Timusul Timusul este un organ localizat în mediastinul superior, înapoia sternului. În desen îl recunoști după cei doi lobi alungiți, cu suprafața neregulată, care coboară între cei doi plămâni, până peste partea de sus a inimii. El secretă timozine, o serie de hormoni implicați în maturarea și dezvoltarea limfocitelor T, care fac parte din sistemul imunitar al organismului. Dimensiunea din desen nu este întâmplătoare: legenda precizează că este vorba de toracele unui copil. Timusul este bine dezvoltat la făt și la nou-născut, dar dimensiunile sale scad cu vârsta, iar la adolescenți glanda este abia vizibilă. Vasele mari de deasupra lui Deasupra timusului, la baza gâtului, sunt desenate vasele care leagă inima de cap și de membrele superioare: artera carotidă comună, care urcă pe fiecare parte a gâtului, artera subclaviculară, care se îndreaptă lateral, spre membrul superior, trunchiul brahiocefalic, vasul gros de la baza gâtului, din care pleacă ramurile spre dreapta corpului, vena jugulară internă, vena subclaviculară și vena brahiocefalică dreaptă, venele care adună sângele din cap și din braț și îl duc spre inimă. Printre ele coboară și nervul vag, singura structură nervoasă denumită în figură. Organele din jur Tiroida, sus de tot, în fața traheei, cu forma ei de fluture. Plămânul drept și plămânul stâng, de o parte și de alta. Într-o vedere din față, plămânul drept apare în stânga privitorului. Inima, sub timus, ocupând mijlocul toracelui. Diafragma, mușchiul boltit de la baza toracelui, care îl desparte de abdomen. Poziția timusului între cei doi plămâni, deasupra inimii, este exact cea din harta generală a glandelor endocrine (Figura 13.2).
- 14SângelePaginile 319 - 331

Fig. 14.1 · Biologie Barron's · p. 320
Compoziția sângelui umanFigura desface sângele integral în componentele lui, ca o schemă citită de sus în jos. Bara de sus reprezintă sângele așa cum circulă prin vase și este împărțită în cele două componente majore: plasma, în stânga, și elementele figurate, în dreapta. Sub fiecare dintre ele coboară câte o bară care arată, ca într-o diagramă de proporții, din ce este făcută acea componentă, iar din capătul ei îngust pornesc linii spre coloanele verticale de jos, care desfac mai departe acel capăt. Cu cât o porțiune este mai lată în bare, sau mai înaltă în coloane, cu atât componenta respectivă ocupă mai mult din total. Cele două componente majore Plasma (55%) este partea fluidă a sângelui, un fluid apos de culoare gălbuie în care sunt suspendate celelalte componente. Elementele figurate (45%) sunt globulele roșii, globulele albe și fragmentele celulare numite plachete. Sângele este unul dintre țesuturile conjunctive ale organismului. La o persoană cu greutate medie el reprezintă aproximativ 8% din greutatea corporală, este mai vâscos decât apa și în mod normal are un pH cuprins între 7,35 și 7,45. Ce conține plasma Bara plasmei are doar două porțiuni: apa, care ocupă aproape toată lungimea ei, și o fâșie îngustă la capăt, din care pornesc trei linii spre cele trei coloane de dedesubt. Apa (92%) ocupă cea mai mare parte a plasmei și este mediul în care se dizolvă tot restul. Proteinele reprezintă aproximativ 7% din plasmă și sunt de trei tipuri, desenate ca segmente suprapuse în prima coloană: albuminele, globulinele și fibrinogenul. Metaboliții sunt nutrienții și produșii de metabolism dizolvați, strânși în a doua coloană: lipide, glucoză, aminoacizi și produși cu azot. Ionii reprezintă aproximativ 1% din plasmă. Ultima coloană le poartă scrise formulele, de sus în jos: $\ce{Na+}$, $\ce{K+}$, $\ce{Ca^2+}$, $\ce{Mg^2+}$, $\ce{Cl-}$, $\ce{HCO3-}$, $\ce{HPO4^2-}$ și $\ce{SO4^2-}$. Pe lângă acestea, plasma mai conține hormoni, gaze dizolvate și proteinele cu rol în coagulare. După coagularea sângelui și consumarea acestor proteine, din plasmă rămâne un fluid numit ser. Ce conțin elementele figurate Bara din dreapta este construită la fel: hematiile ocupă aproape toată lungimea ei, iar din fâșia îngustă rămasă pornesc două linii spre ultimele două coloane, în care sunt desenate chiar celulele respective. Hematiile (99%) ocupă practic toată bara. Sunt desenate ca discuri turtite și transportă oxigenul cu ajutorul hemoglobinei din citoplasma lor (Figura 14.2). Plachetele sunt fragmente celulare mici, desenate răsfirate în coloana alăturată. Sunt esențiale pentru coagulare. Leucocitele ocupă ultima coloană și sunt desfăcute în cele cinci tipuri. Cele cinci tipuri de leucocite Coloana leucocitelor este împărțită în cinci benzi suprapuse, tot mai scunde de sus în jos, pe măsură ce tipul respectiv este mai rar. În fiecare bandă este desenată celula ei, destul de mare ca să i se vadă nucleul și granulațiile (Figura 14.5). Neutrofilele, aproximativ 60% din totalul leucocitelor, cu nucleu lobat și granulații fine. Limfocitele, aproximativ 30%, fără granulații, cu nucleu mare. Monocitele, între 6 și 8%, cele mai mari, cu nucleu în formă de rinichi. Eozinofilele, aproximativ 1%, cu granulații care apar roșii. Bazofilele, aproximativ 1%, cu granulații care apar albastre. Proporțiile desenate se potrivesc cu numerele din text: un bărbat adult are aproximativ 5,4 milioane de globule roșii pe milimetru cub de sânge (o femeie, aproximativ 4,8 milioane), aproximativ 300.000 de plachete și doar aproximativ 7000 de leucocite pe aceeași unitate de volum.
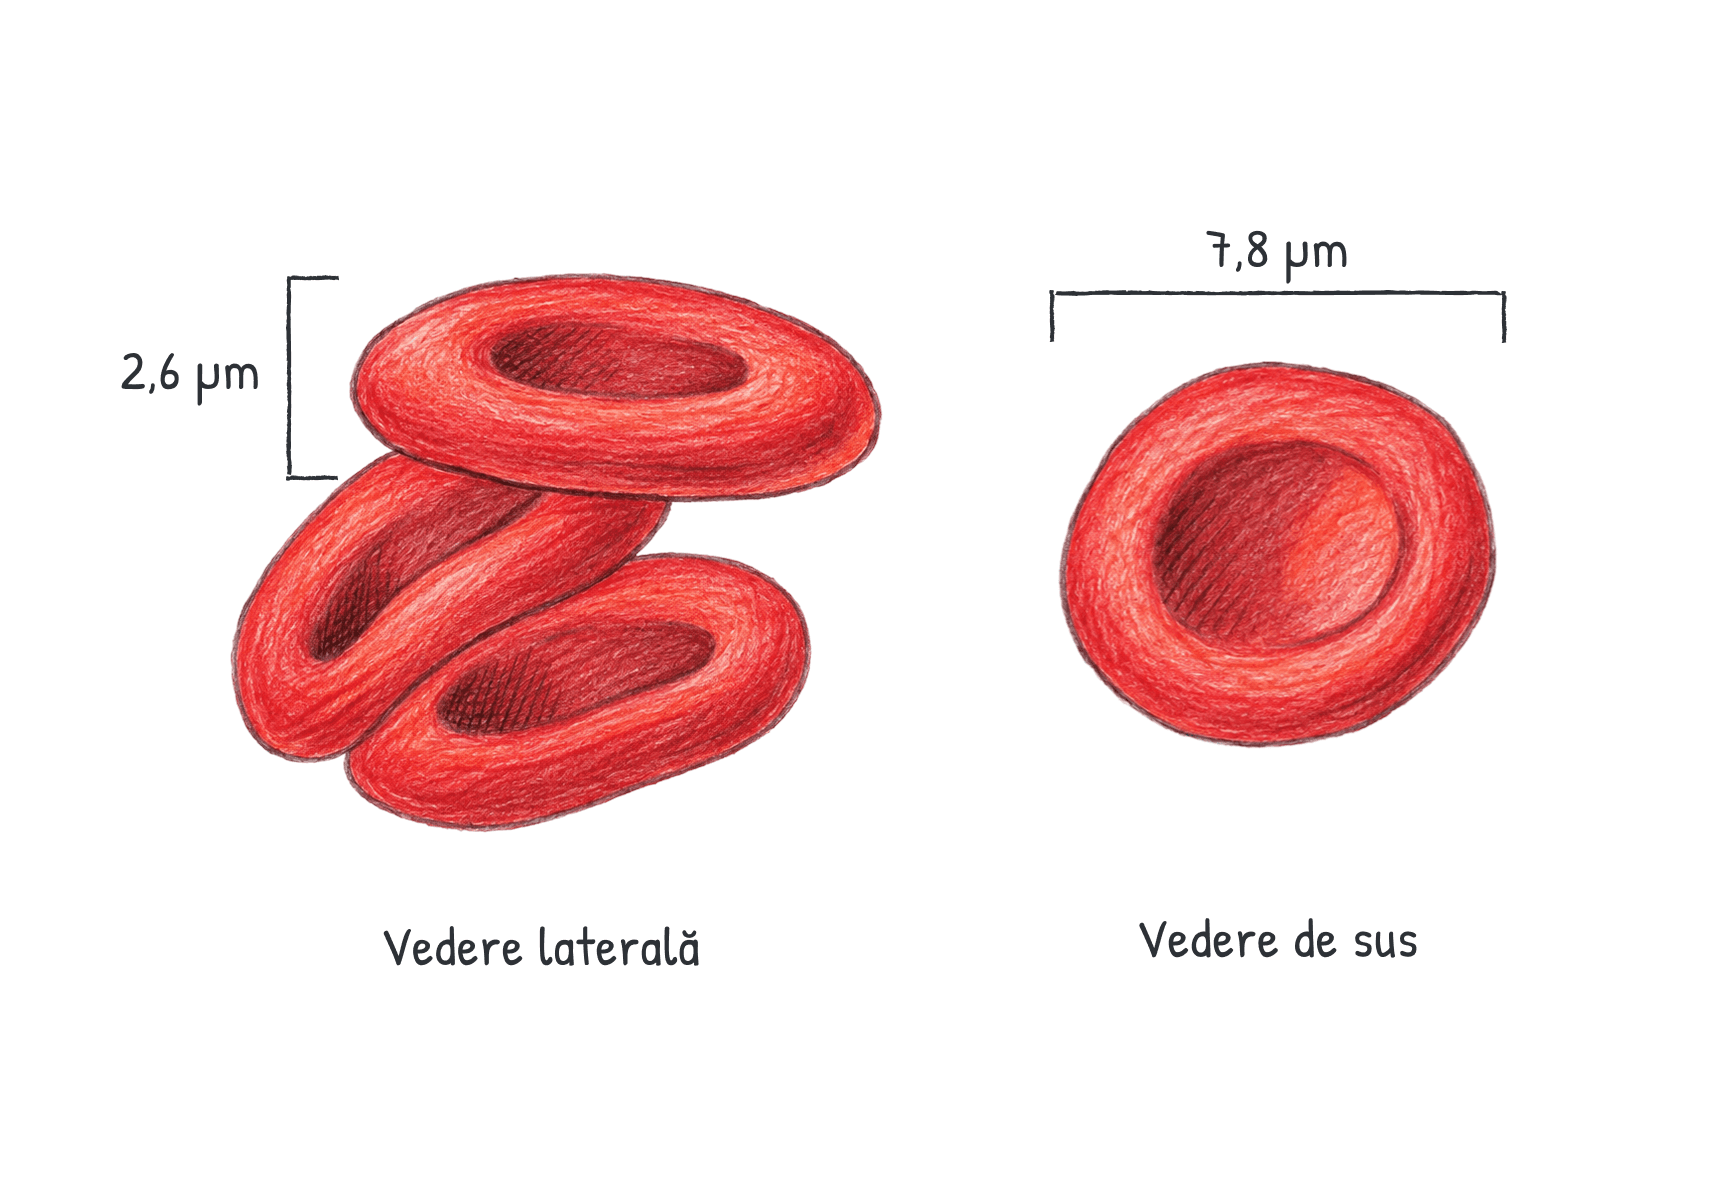
Fig. 14.2 · Biologie Barron's · p. 322
Globulele roșii (eritrocitele) și structura lorFigura arată forma și dimensiunile unei globule roșii (numită și hematie sau eritrocit), desenată în două vederi așezate una lângă alta. În stânga, vederea laterală prezintă trei hematii privite din profil. În dreapta, vederea de sus prezintă una singură, privită din față. Cele două vederi trebuie citite împreună, pentru că doar așa se înțelege de ce manualul descrie hematia ca pe un disc biconcav. Vederea laterală Din profil, hematiile apar ca niște discuri turtite, mai subțiri în centru decât la margini. Adâncitura este pe amândouă fețele, iar de aici vine numele de disc biconcav. Acolada din stânga măsoară grosimea celulei, de 2,6 μm. Cele trei celule desenate una peste alta, în poziții diferite, lasă să se vadă atât fața, cât și muchia discului. Manualul adaugă că hematia este flexibilă. Vederea de sus Privită din față, hematia este rotundă, iar în mijlocul ei se vede adâncitura circulară, zona în care discul este cel mai subțire. Acolada de deasupra măsoară diametrul celulei, de 7,8 μm. Comparând cele două numere se vede cât este de turtită: lată de aproape trei ori cât este de groasă. Ce este, de fapt, o globulă roșie Rolul principal al hematiei este să transporte oxigenul, funcție realizată de un pigment numit hemoglobină, aflat în citoplasma ei (Figura 14.3). Manualul atrage atenția că globulele roșii nu sunt celule adevărate: au o organizare internă redusă, nu au nucleu și nici organite. Sunt, practic, niște saci plini cu hemoglobină, motiv pentru care sunt uneori numite corpusculi roșii. Un bărbat adult are aproximativ 5,4 milioane de globule roșii pe milimetru cub de sânge, iar o femeie aproximativ 4,8 milioane. Procentul pe care îl ocupă în volumul sângelui se numește hematocrit și este de aproximativ 47% la bărbați și de aproximativ 42% la femei. Cum se schimbă forma desenată aici Dimensiunile din figură sunt cele ale unei hematii aflate într-un mediu normal. Ele se modifică prin osmoză (Figura 3.2): În soluții mai concentrate, apa iese din celulă în direcția concentrației mai mari de substanțe dizolvate, iar globulele roșii se micșorează sau se zbârcesc. În soluții cu concentrație mai mică decât cea normală, apa trece rapid în celulă, iar globulele roșii se umflă. Când se umflă prea mult, ele se sparg și eliberează hemoglobina, printr-un proces numit hemoliză. Hematiile sunt produse în măduva roșie osoasă, prin procesul numit eritropoieză, pornind de la celule numite hemocitoblaști (celule stem). Pe parcursul lui, hemoglobina se acumulează în citoplasmă, iar nucleul, organitele și celelalte componente celulare dispar, așa că hematia matură desenată aici nu mai are nimic în interior. Ea circulă apoi în sânge aproximativ 120 de zile.

Fig. 14.3 · Biologie Barron's · p. 323
Molecula de hemoglobină și gruparea hemFigura arată molecula de hemoglobină din globulele roșii (Figura 14.2), în două grade de detaliu. Panoul (a) desenează molecula întreagă, ca un ghem de panglici încolăcite, printre care sunt prinse niște discuri plate. Panoul (b) ia unul dintre aceste discuri și îl desfășoară ca formulă structurală: gruparea hem. Cele patru lanțuri polipeptidice Cea mai mare parte a moleculei este formată din patru lanțuri polipeptidice, fiecare desenat ca o panglică lungă, răsucită și pliată. Două dintre ele se numesc lanțuri alfa (notate α 1 și α 2 în figură), iar celelalte două, lanțuri beta (notate β 1 și β 2). Fiecare lanț este alcătuit din aproximativ 150 de molecule de aminoacizi. Hemoglobina este un pigment de culoare roșie, iar rolul întregii molecule este să lege oxigenul. Gruparea hem și atomul de fier De fiecare dintre cele patru lanțuri este atașată câte o grupare hem, desenată în ghem ca un disc plat prins între panglici, cu un bob mic în mijloc, acolo unde stă fierul, notat $\ce{Fe^2+}$. În panoul (b), una dintre ele este desfăcută: un inel mare, format din patru unități legate între ele, ai căror atomi de azot ($\ce{N}$) se orientează spre mijloc și țin acolo un singur atom de fier, marcat $\ce{Fe}$. Două dintre legăturile fierului cu atomii de azot sunt desenate punctat. Pe marginile inelului atârnă grupările laterale: patru $\ce{CH3}$, două $\ce{CH=CH2}$ și două lanțuri de câte două $\ce{CH2}$, care se termină cu $\ce{COOH}$. Unde se leagă oxigenul Moleculele de oxigen se leagă slab de ionul de fier din porțiunea hem, formând oxihemoglobina. Deoarece o moleculă de hemoglobină are patru grupări hem, ea poate transporta patru molecule de oxigen. La nivel pulmonar, fluxul oxigenului spre globulele roșii se face prin difuziune. Ce se mai leagă la acest nivel Hemoglobina transportă și o cantitate mică de dioxid de carbon, iar combinația se numește carbaminohemoglobină. Cea mai mare parte a $\ce{CO2}$ este însă transportată sub forma ionilor de bicarbonat (Figura 17.8). Monoxidul de carbon este un gaz toxic. Moleculele lui se combină rapid cu ionii de fier ai hemoglobinei și se leagă puternic de moleculă. Ocupând, printr-o legătură mai puternică decât cea cu oxigenul, chiar spațiul rezervat acestuia, ele reduc cantitatea de oxigen transportată și pot cauza moarte prin lipsă de oxigen. Ce se întâmplă cu molecula la sfârșit După aproximativ 120 de zile, globulele roșii îmbătrânite sunt înghițite și distruse de celulele fagocitare (macrofage) în splină, ficat și măduva osoasă. Lanțurile polipeptidice sunt desfăcute pentru a elibera aminoacizii, fierul este adus în măduva osoasă pentru noi sinteze de hemoglobină, iar restul hemului se degradează în biliverdină, apoi în bilirubină și în final în urobilinogen.

Fig. 14.4 (a) · Biologie Barron's · p. 325
Grupele de sânge: antigene și anticorpiFigura este un tabel cu cele patru grupe de sânge, câte una pe coloană: A (40%), B (10%), AB (4%) și 0 (46%), procentele arătând cât de des apare fiecare grupă. Rândurile se citesc de sus în jos: hematia fiecărei grupe, anticorpii din serul persoanei, antigenele de pe hematie și, la final, grupele de la care persoana poate primi sânge. Ce se întâmplă când antigenele și anticorpii de același tip se întâlnesc arată Figura 14.4 (b). Antigenele și anticorpii Suprafața membranei globulelor roșii conține una, ambele sau niciuna dintre moleculele proteice numite antigene, denumite A și B. Tipul grupei este același cu cel al antigenelor găsite la suprafața eritrocitelor. În desen, antigenul A are capul rotund, iar antigenul B are capul în formă de romb; hematia grupei 0 nu poartă niciunul dintre ele. În plus, fiecare persoană are în ser anticorpi de grup sanguin, desenați în formă de Y și colorați la fel ca antigenul împotriva căruia sunt îndreptați: Grupa A: antigen A pe hematie, anticorpi anti-B. Grupa B: antigen B pe hematie, anticorpi anti-A. Grupa AB: ambele antigene, niciun anticorp. Grupa 0: niciun antigen, atât anticorpi anti-A, cât și anticorpi anti-B. Fiecare persoană are, așadar, exact anticorpii îndreptați împotriva antigenelor pe care ea nu le are. Manualul precizează că nici antigenele, nici anticorpii de grup sanguin nu au aparent vreo semnificație pentru fiziologia organismului. De la cine poate primi sânge fiecare grupă Ultimul rând aplică regula transfuziei: antigenele din sângele donatorului și anticorpii de același tip din serul primitorului nu trebuie să se întâlnească. O persoană cu grupa A, care are anticorpi anti-B, poate primi deci sânge de la grupele A și 0, ale căror hematii nu au antigen B. La fel, grupa B poate primi de la grupele B și 0, iar grupa 0, care are ambii anticorpi, doar de la grupa 0. Persoana cu grupa 0 este donator universal, pentru că hematiile ei nu au nici antigene A, nici B, deci pot fi date persoanelor cu alte grupe sanguine. Persoana cu grupa AB este primitor universal, pentru că serul ei nu are nici anticorpi anti-A, nici anti-B, deci poate primi sânge de la celelalte trei grupe. Manualul adaugă că, deși din punct de vedere tehnic ideea de donator universal și de primitor universal este corectă, pentru a reduce rata incidentelor transfuzionale medicii fac transfuzii doar cu tipul specific de sânge, singura excepție fiind cazurile de urgență.

Fig. 14.4 (b) · Biologie Barron's · p. 325
Reacția transfuzională: agregare și hemolizăFigura arată, de la stânga la dreapta, ce se întâmplă când în sângele unui primitor ajung hematii cu antigenele împotriva cărora el are anticorpi. Exemplul ales este cel al unor hematii de grupa B ajunse în plasma unei persoane cu grupa A, care are în ser anticorpi anti-B. Grupele de sânge, cu antigenele și anticorpii lor, sunt în Figura 14.4 (a). Anticorpii se leagă de antigene În stânga sunt hematia B, cu antigenele B pe membrană, și anticorpii anti-B ai primitorului, încă liberi. După prima săgeată, anticorpii s-au legat de antigenele B de pe suprafața hematiei. Tocmai acest contact trebuie evitat la o transfuzie: antigenele și anticorpii de același tip nu trebuie să se întâlnească în circulația primitorului. Agregarea și hemoliza De aici figura se desparte în două ramuri, legate prin „și”, pentru că ambele consecințe ale reacției au loc: manualul spune că, dacă cele două tipuri de sânge ajung în contact, globulele roșii se vor agrega și vor hemoliza. Agregarea, pe ramura de sus, unde desenul scrie „Aglutinare”: anticorpii leagă hematiile între ele, iar acestea se grupează în aglomerări. Hemoliza, pe ramura de jos: hematiile se sparg și eliberează hemoglobina, așa cum definește manualul hemoliza. Între legarea anticorpilor și spargerea hematiei, desenul arată și un mecanism pe care manualul nu îl descrie; detaliile sunt în nota de deasupra. Manualul avertizează că agregarea și distrugerea globulelor roșii (hemoliza) pot fi fatale, putând cauza o reacție transfuzională letală.

Fig. 14.5 · Biologie Barron's · p. 328
Comparație între globulele albe, globulele roșii și placheteFigura pune alături cele trei feluri de elemente figurate ale sângelui, desenate la aceeași scară, ca să le poți compara direct (Figura 14.1). Rândul de sus ține elementele care nu sunt globule albe: eritrocitele în stânga și plachetele în dreapta. Dedesubt, un chenar punctat strânge cele cinci globule albe sub numele „Leucocite”, iar înăuntrul lui două subtitluri le împart în granulocite, cele cu granulații în citoplasmă, și agranulocite, cele fără granulații în citoplasmă. Sub numele fiecărui element sunt notate pe scurt semnele după care îl recunoști, iar la leucocite apare și cât reprezintă fiecare tip din totalul globulelor albe. Rândul de sus: eritrocitele și plachetele Eritrocitele sunt desenate ca discuri mai subțiri în centru decât la margini (Figura 14.2). Sunt singurele elemente din figură fără nimic desenat în interior, pentru că globulele roșii mature nu au nucleu și nici organite. Plachetele sunt cele mai mici elemente desenate, niște fragmente neregulate. Practic, ele nu sunt celule, ci fragmente de citoplasmă înconjurate de membrană, desprinse din celule mari ale măduvei roșii osoase numite megacariocite. Sunt esențiale pentru coagulare. Rândul de mijloc: granulocitele Granulocitele au granulații în citoplasmă, desenate ca puncte împrăștiate în toată celula, și un nucleu care nu este rotund, ci lobat sau neregulat. Neutrofilul are granulații fine și un nucleu cu doi până la cinci lobi legați între ei, motiv pentru care este numit și leucocit polimorfonuclear. Eozinofilul are granulații care se colorează cu coloranți acidofili și apar roșii, strălucitoare, și un nucleu bilobat. Bazofilul are granulații mari, care se colorează cu coloranți bazici și apar albastru-purpuriu închis, și un nucleu neregulat, frecvent în formă de S. Rândul de jos: agranulocitele Agranulocitele nu au granulații în citoplasmă, așa că pe desen citoplasma lor apare curată. Se deosebesc între ele prin mărime și prin forma nucleului. Limfocitul este cel mai mic leucocit desenat. Nucleul lui mare ocupă aproape toată celula și lasă în jur doar un strat subțire de citoplasmă. Monocitul este cel mai mare leucocit desenat. Nucleul lui, foarte mare, prezintă o depresiune pe una din margini, ceea ce îi dă forma de rinichi sau de potcoavă, iar în jurul lui se vede un strat gros de citoplasmă. Cât de multe sunt din fiecare Procentele scrise lângă numele fiecărui leucocit arată cât reprezintă tipul acela din totalul globulelor albe. Un adult are aproximativ 7000 de leucocite pe milimetru cub de sânge, iar dintre acestea neutrofilele reprezintă aproximativ 60%, limfocitele aproximativ 30%, monocitele între 6 și 8%, iar eozinofilele și bazofilele câte aproximativ 1% fiecare. Pentru comparație, plachetele sunt în număr de aproximativ 300.000, iar eritrocitele de aproximativ 5,4 milioane la bărbați și 4,8 milioane la femei, pe aceeași unitate de volum.

Fig. 14.6 · Biologie Barron's · p. 330
Formarea trombului plachetarFigura urmărește, în trei desene așezate unul sub altul, cum se astupă o ruptură din peretele unui vas de sânge. Este același vas, desenat de trei ori și tăiat pe lung, ca să i se vadă în același timp peretele gros și sângele care curge prin el. Se citește în ordinea literelor, de la (a) la (c), fiecare desen fiind un moment mai târziu decât cel dinainte. (a) Apare leziunea În peretele vasului apare o soluție de continuitate, adică o întrerupere. Tot în acest prim desen sunt numite structurile pe care le vei regăsi și în celelalte două: Stratul endotelial, linia de celule care căptușește vasul pe dinăuntru și care este întreruptă de leziune. Eritrocitul, globula roșie care circulă prin lumenul vasului, desenată ca un disc mare, adâncit la mijloc. Placheta, fragmentul celular mult mai mic, desenat ca un corpuscul cu contur neregulat, printre eritrocite. Fibra de colagen, dezvelită în grosimea peretelui chiar la marginea rupturii. (b) Plachetele aderă În al doilea desen, plachetele s-au adunat deja în dreptul leziunii. Ele reacționează cu fibrele de colagen din peretele vascular, aderă de fibre și, în același timp, aderă și între ele. Numărul plachetelor adunate în dreptul rupturii crește vizibil față de primul desen. (c) Agregatul plachetar În al treilea desen, plachetele au format o masă compactă care umple leziunea din peretele vascular. Acesta este agregatul plachetar, iar el controlează pierderea de sânge la locul leziunii. Eritrocitele se văd în continuare în lumen, lângă dop, fără să facă parte din el. Ce urmează după Toată această reacție apare în câteva secunde de la leziunea vasculară și stimulează coagularea. Plachetele reprezintă componenta celulară a hemostazei, iar proteinele de coagulare din plasmă sunt cele care produc mai departe un cheag de sânge (Figura 14.7). Cheagul propriu-zis se formează abia în cazul leziunilor mai mari suferite de vasele de sânge.

Fig. 14.7 · Biologie Barron's · p. 331
Mecanismul coagulării sângelui: calea intrinsecă, comună și extrinsecăFigura strânge într-un singur desen tot mecanismul de coagulare a sângelui și se citește de sus în jos. Sus este desenat peretele unui vas lezat, cu plachete adunate în dreptul leziunii, aceeași situație de la care pleacă și formarea agregatului plachetar (Figura 14.6). De acolo pornesc două coloane, calea intrinsecă în stânga și calea extrinsecă în dreapta, care se întâlnesc jos, în chenarul căii comune. De ce sunt două căi Când țesutul sau vasul de sânge este lezat, mecanismul de coagulare este activat fie pe calea intrinsecă, fie pe cea extrinsecă. Deosebirea stă în originea factorilor: calea intrinsecă implică factori care se găsesc numai în sânge, pe când calea extrinsecă este inițiată de factori din afara fluxului sanguin. Calea intrinsecă (stânga) Factorul plachetar este eliberat de plachetele sanguine și de celulele endoteliale care căptușesc vasele de sânge. El interacționează cu ionii de calciu și cu mulți alți factori de coagulare, pe care figura îi numește VIII, IX, X, XI și XII (cele două etichete care intră lateral în săgeată), pentru a se obține tromboplastina plachetară, adică tromboplastina derivată din plachete. Tromboplastina este o lipoproteină care activează protrombina. Calea extrinsecă (dreapta) Factorii tisulari de la nivelul vaselor lezate sau de pe suprafața celulelor din tot organismul reacționează cu factorul de coagulare VII și cu ionii de calciu și determină activarea acestuia. Factorul VII activează apoi alți factori de coagulare, pentru a forma tromboplastina tisulară. Calea comună (jos) Cele două coloane se întâlnesc în activatorul protrombinei: împreună cu ionii de calciu și cu alți factori, tromboplastina formează activatorul protrombinei. De aici, fiecare transformare este desenată de la stânga la dreapta, iar substanța care o declanșează vine de sus: Activatorul protrombinei convertește protrombina, o proteină globulară, în forma ei activă, trombina. Ionii de calciu sunt esențiali pentru această conversie. Odată produsă, trombina funcționează ca o enzimă. În prezența calciului, ea activează fibrinogenul, proteina produsă de ficat care se găsește dizolvată în plasmă, și îl convertește în fibrină, o proteină fibrilară, insolubilă. Cheagul de sânge Filamentele de fibrină se acumulează și, împreună cu plachetele și eritrocitele, formează cheagul de sânge, ultima casetă a figurii. Plasma se gelifică la locul leziunii, apoi cheagul pierde lichidul conținut și se contractă. În timpul contracției, cheagul sudează capetele deteriorate ale vasului de sânge sau ale țesutului și se întărește.
- 15Sistemul cardiovascularPaginile 343 - 359

Fig. 15.1 · Biologie Barron's · p. 344
Poziția inimii în cavitatea toracicăFigura arată inima la locul ei, în cavitatea toracică, privită din față (din poziție ventrală). Peretele toracic anterior a fost îndepărtat, iar pleura și pericardul au fost tăiate, astfel încât se văd atât inima, cât și organele din jurul ei. Citește desenul de sus în jos, pe linia mediană: traheea, apoi vasele mari, apoi inima flancată de cei doi plămâni și sprijinită pe diafragmă. Unde este așezată inima Inima este situată în torace, în mediastin, aproximativ între a doua și a cincea coastă. Se află anterior de coloana vertebrală și posterior de stern, fiind flancată de plămâni, care se suprapun peste ea. În desen se vede bine că este așezată puțin spre stânga și că adoptă o poziție oblică în cavitatea toracică, cu vârful orientat în jos și spre stânga. Are aproximativ mărimea unui pumn, este un organ cavitar, de formă conică, și cântărește mai puțin de o jumătate de kilogram. Cele patru cavități, văzute din față Atriile sunt cavitățile de umplere cu sânge ale inimii. Sângele care se întoarce prin vene de la țesuturi intră în atrii și este menținut acolo până când ventriculele se golesc. În atriul drept se golesc vena cavă superioară, care aduce sângele de la cap și gât, vena cavă inferioară, care aduce sângele din regiunea inferioară a corpului, și sinusul coronarian. Atriul stâng primește sânge de la plămâni prin venele pulmonare. Ventriculele sunt situate inferior față de atrii și sunt cavitățile cu rol de pompă. Ventriculul drept pompează sângele la plămâni, iar ventriculul stâng pompează sângele la organele, țesuturile și celulele organismului. Din acest motiv, din aorta desenată deasupra inimii pleacă sângele întregii circulații sistemice. Învelișurile inimii Inima este învelită de un sac format din două foițe (membrane) numit pericard. Foița externă se numește pericard parietal, iar cea internă, pericard visceral sau epicard. Exact marginea tăiată a foiței externe este cea marcată în figură ca secțiune prin pericardul parietal. Cavitatea pericardică este spațiul umplut cu fluid dintre pericardul parietal și cel visceral. Epicardul este considerat stratul extern al țesutului cardiac, sub el se află miocardul, stratul mijlociu, și endocardul, stratul intern. Organele vecine Deasupra inimii coboară traheea, pe linia mediană, iar la capătul ei de sus se vede glanda tiroidă, cu cei doi lobi de o parte și de alta a traheei. Lateral, cei doi plămâni, acoperiți de pleura viscerală, flanchează inima, în timp ce secțiunea prin pleura parietală urmărește peretele toracic, în care se văd coastele tăiate transversal. Inferior, diafragma închide cavitatea toracică, iar apexul cardiac ajunge până aproape de ea. Structura internă a cavităților, a valvelor și a vaselor mari este detaliată în Figura 15.2, iar cavitatea în care este așezată inima poate fi revăzută în Figura 1.4.

Fig. 15.2 · Biologie Barron's · p. 345
Secțiune longitudinală prin inimă: cavitățile, valvele și vasele mariInima a fost tăiată longitudinal și deschisă, astfel încât se văd deodată toate cele patru cavități, cele patru valve și vasele mari care intră și ies. Fiind o vedere din față, partea dreaptă a inimii apare în stânga desenului, iar partea stângă apare în dreapta. Un truc bun de citire este să urmărești sângele: intră prin venele cave în atriul drept, coboară în ventriculul drept, iese prin trunchiul pulmonar, se întoarce prin venele pulmonare în atriul stâng, coboară în ventriculul stâng și pleacă prin aortă. Cele patru cavități și septul În inimă există patru cavități. Cele două cavități superioare sunt denumite atrii, iar cele două cavități inferioare sunt denumite ventricule. Atriile sunt cavitățile de umplere cu sânge: sângele care se întoarce prin vene de la țesuturi intră în ele și este menținut acolo până când ventriculele se golesc. În desen, atriul drept este camera ovală în care coboară vena cavă superioară, iar atriul stâng se află sus, în dreapta, acolo unde intră venele pulmonare. Fiecare atriu are și o prelungire plată, încrețită, denumită auriculă (urechiușă), nemarcată în figură, care se umple cu sânge atunci când atriul este plin și îi crește capacitatea. Ventriculele sunt situate inferior față de atrii și sunt cavitățile cu rol de pompă: cel drept pompează sângele la plămâni, cel stâng la organele, țesuturile și celulele organismului. În desen, ventriculul drept ocupă partea de jos, spre mijloc, iar ventriculul stâng, partea din dreapta. Cavitățile cardiace sunt separate longitudinal de un perete numit sept cardiac. Între atrii, septul este denumit sept interatrial, iar între ventricule, sept interventricular. În figură este marcat septul interventricular, peretele gros care desparte cele două ventricule. Vasele care intră și ies În atriul drept se golesc trei vene: vena cavă superioară, tubul vertical din stânga desenului, care aduce sângele de la cap și gât, vena cavă inferioară, care intră în atriu de dedesubt și aduce sângele din regiunea inferioară a corpului, și sinusul coronarian, care primește sângele de la mușchiul cardiac. Din ventriculul drept pleacă trunchiul pulmonar, care se împarte în arterele pulmonare drepte și în artera pulmonară stângă, spre cei doi plămâni. După ce primește oxigen în alveolele pulmonare, sângele se întoarce în atriul stâng prin venele pulmonare, drepte și stângi. Venele pulmonare drepte sunt desenate în stânga desenului, aproape de vena cavă superioară, dar nu se varsă în atriul drept: ca toate venele pulmonare, duc sângele în atriul stâng. Din ventriculul stâng pleacă aorta, cea mai mare arteră din organism. Deasupra inimii, ea se arcuiește (arcul aortic), iar din arc se desprind, de la stânga la dreapta desenului, trunchiul brahiocefalic, artera carotidă comună stângă și artera subclaviculară stângă. Aici, pe măsură ce se formează arcul aortic, își au originea arterele principale ale gâtului și capului. După ce se arcuiește, aorta coboară de-a lungul coloanei vertebrale și dă naștere altor artere sistemice, care transportă sângele la organe. Tot la emergența aortei din ventriculul stâng pornesc arterele coronare, care furnizează sânge oxigenat mușchiului cardiac. Arterele coronare și sinusul coronarian nu sunt marcate aici, dar le găsești în Figura 15.5. Cele patru valve Un set de valve cardiace asigură circulația unidirecțională a sângelui prin inimă, prevenind refluxul. Două dintre ele sunt valve atrioventriculare, iar celelalte două, valve semilunare. Valva atrioventriculară dreaptă (tricuspidă), între atriul și ventriculul drept, are trei cuspisuri. Valva atrioventriculară stângă (bicuspidă), numită și valvă mitrală, între atriul și ventriculul stâng, are numai două cuspisuri. Valva pulmonară delimitează intrarea în trunchiul pulmonar și previne refluxul sângelui în ventriculul drept când acesta se relaxează. Valva aortică este situată la emergența aortei și previne refluxul sângelui în ventriculul stâng. În desen, valvele atrioventriculare stau la granița dintre atriu și ventricul, de fiecare parte a inimii, iar cele semilunare se află spre mijloc, chiar la ieșirea trunchiului pulmonar și a aortei din ventricule. Valvele atrioventriculare permit sângelui să curgă din atrii în ventricule și previn refluxul sângelui în atrii atunci când ventriculele se contractă. Ele sunt ancorate de mușchii papilari ai peretelui ventricular prin cordaje tendinoase, cordoane de colagen de culoare albicioasă care împiedică mișcarea cuspisurilor valvulare înspre atrii. În figură, cordajele tendinoase sunt marcate în ventriculul drept, sub valva tricuspidă, iar mușchiul papilar, în ventriculul stâng. Când cordajele tendinoase sunt lezate sau leziunea este chiar la nivelul valvei, valvele au tendința de a se mișca retrograd, iar în cazul valvei mitrale afecțiunea se numește prolaps de valvă mitrală. Peretele inimii Peretele inimii are trei straturi: epicardul la exterior, miocardul la mijloc și endocardul la interior. Endocardul delimitează cavitățile inimii și acoperă valvele cardiace. Miocardul este țesutul principal al inimii. Este compus din celule musculare de tip cardiac dispuse în fascicule, interconectate prin fibre fine de țesut conjunctiv aranjate într-o rețea, care aparțin scheletului fibros și consolidează miocardul în interior. Un plus de susținere, în jurul valvelor și la locul de emergență a vaselor mari, este asigurat de inele de țesut fibros împletit asemănător unor frânghii. În figură, miocardul este marcat în peretele gros din partea de jos a inimii. Valvele se văd și de sus, după îndepărtarea atriilor, în Figura 15.4, iar traseul complet al sângelui prin cele două circulații este schematizat în Figura 15.3.

Fig. 15.3 · Biologie Barron's · p. 346
Cele două circulații principale: pulmonară și sistemicăFigura schematizează cele două circuite cardiovasculare principale ale organismului sub forma a două bucle așezate una peste alta, cu inima în mijloc. Bucla de sus este circulația pulmonară, care se extinde de la inimă la plămâni și înapoi la inimă. Bucla de jos este circulația sistemică, care se extinde de la inimă la celule și înapoi la inimă. În mijloc, inima este redusă la cele patru cavități ale ei: atriul drept (AD) și ventriculul drept (VD) în stânga desenului, atriul stâng (AS) și ventriculul stâng (VS) în dreapta. Pe fiecare buclă, ramura din stânga duce sânge sărac în oxigen, iar cea din dreapta sânge bogat în oxigen, iar săgețile arată sensul de curgere. Circulația pulmonară Circulația pulmonară începe în partea dreaptă a inimii. Sângele colectat de la organe intră în atriul drept, fiind sărac în oxigen și bogat în dioxid de carbon. El trece printr-o valvă din atriul drept în ventriculul drept, iar ventriculul drept îl pompează în plămâni prin arterele pulmonare. În vârful buclei se află patul capilar unde are loc schimbul gazos în plămâni: aici dioxidul de carbon părăsește sângele și intră în alveolele pulmonare, în timp ce oxigenul trece din alveolele pulmonare în sânge (Figura 17.9). Apoi sângele bogat în oxigen se întoarce prin venele pulmonare în partea stângă a inimii, închizând astfel circulația pulmonară. Circulația sistemică Circulația sistemică începe în partea stângă a inimii. Sângele intră în atriul stâng, apoi trece printr-o valvă în ventriculul stâng. Ventriculul stâng pompează sângele bogat în oxigen în aortă, cea mai mare arteră din organism, iar din aortă sângele este distribuit către celelalte artere ale circulației sistemice, spre cap, torace, regiunea abdominală și alte părți ale organismului. La capătul de jos al buclei se află patul capilar unde are loc schimbul gazos în toate țesuturile organismului: la nivel celular, sângele eliberează oxigenul și preia dioxidul de carbon. Sângele bogat în dioxid de carbon (și sărac în oxigen) se întoarce la inimă prin venele sistemului cardiovascular și prin venele cave în atriul drept, completând circulația sistemică. De ce sunt două circuite și nu unul Schema arată că cele două bucle sunt legate în serie prin inimă: ieșirea uneia este intrarea celeilalte. Ventriculul drept alimentează numai plămânii, iar ventriculul stâng numai restul organismului, iar cele două fluxuri nu se amestecă, pentru că cele două jumătăți ale inimii sunt despărțite de septul cardiac (Figura 15.2). De aici vine și o observație care se cere des la examen: arterele pulmonare sunt singurele artere care transportă sânge sărac în oxigen, iar venele pulmonare sunt singurele vene care transportă sânge bogat în oxigen.
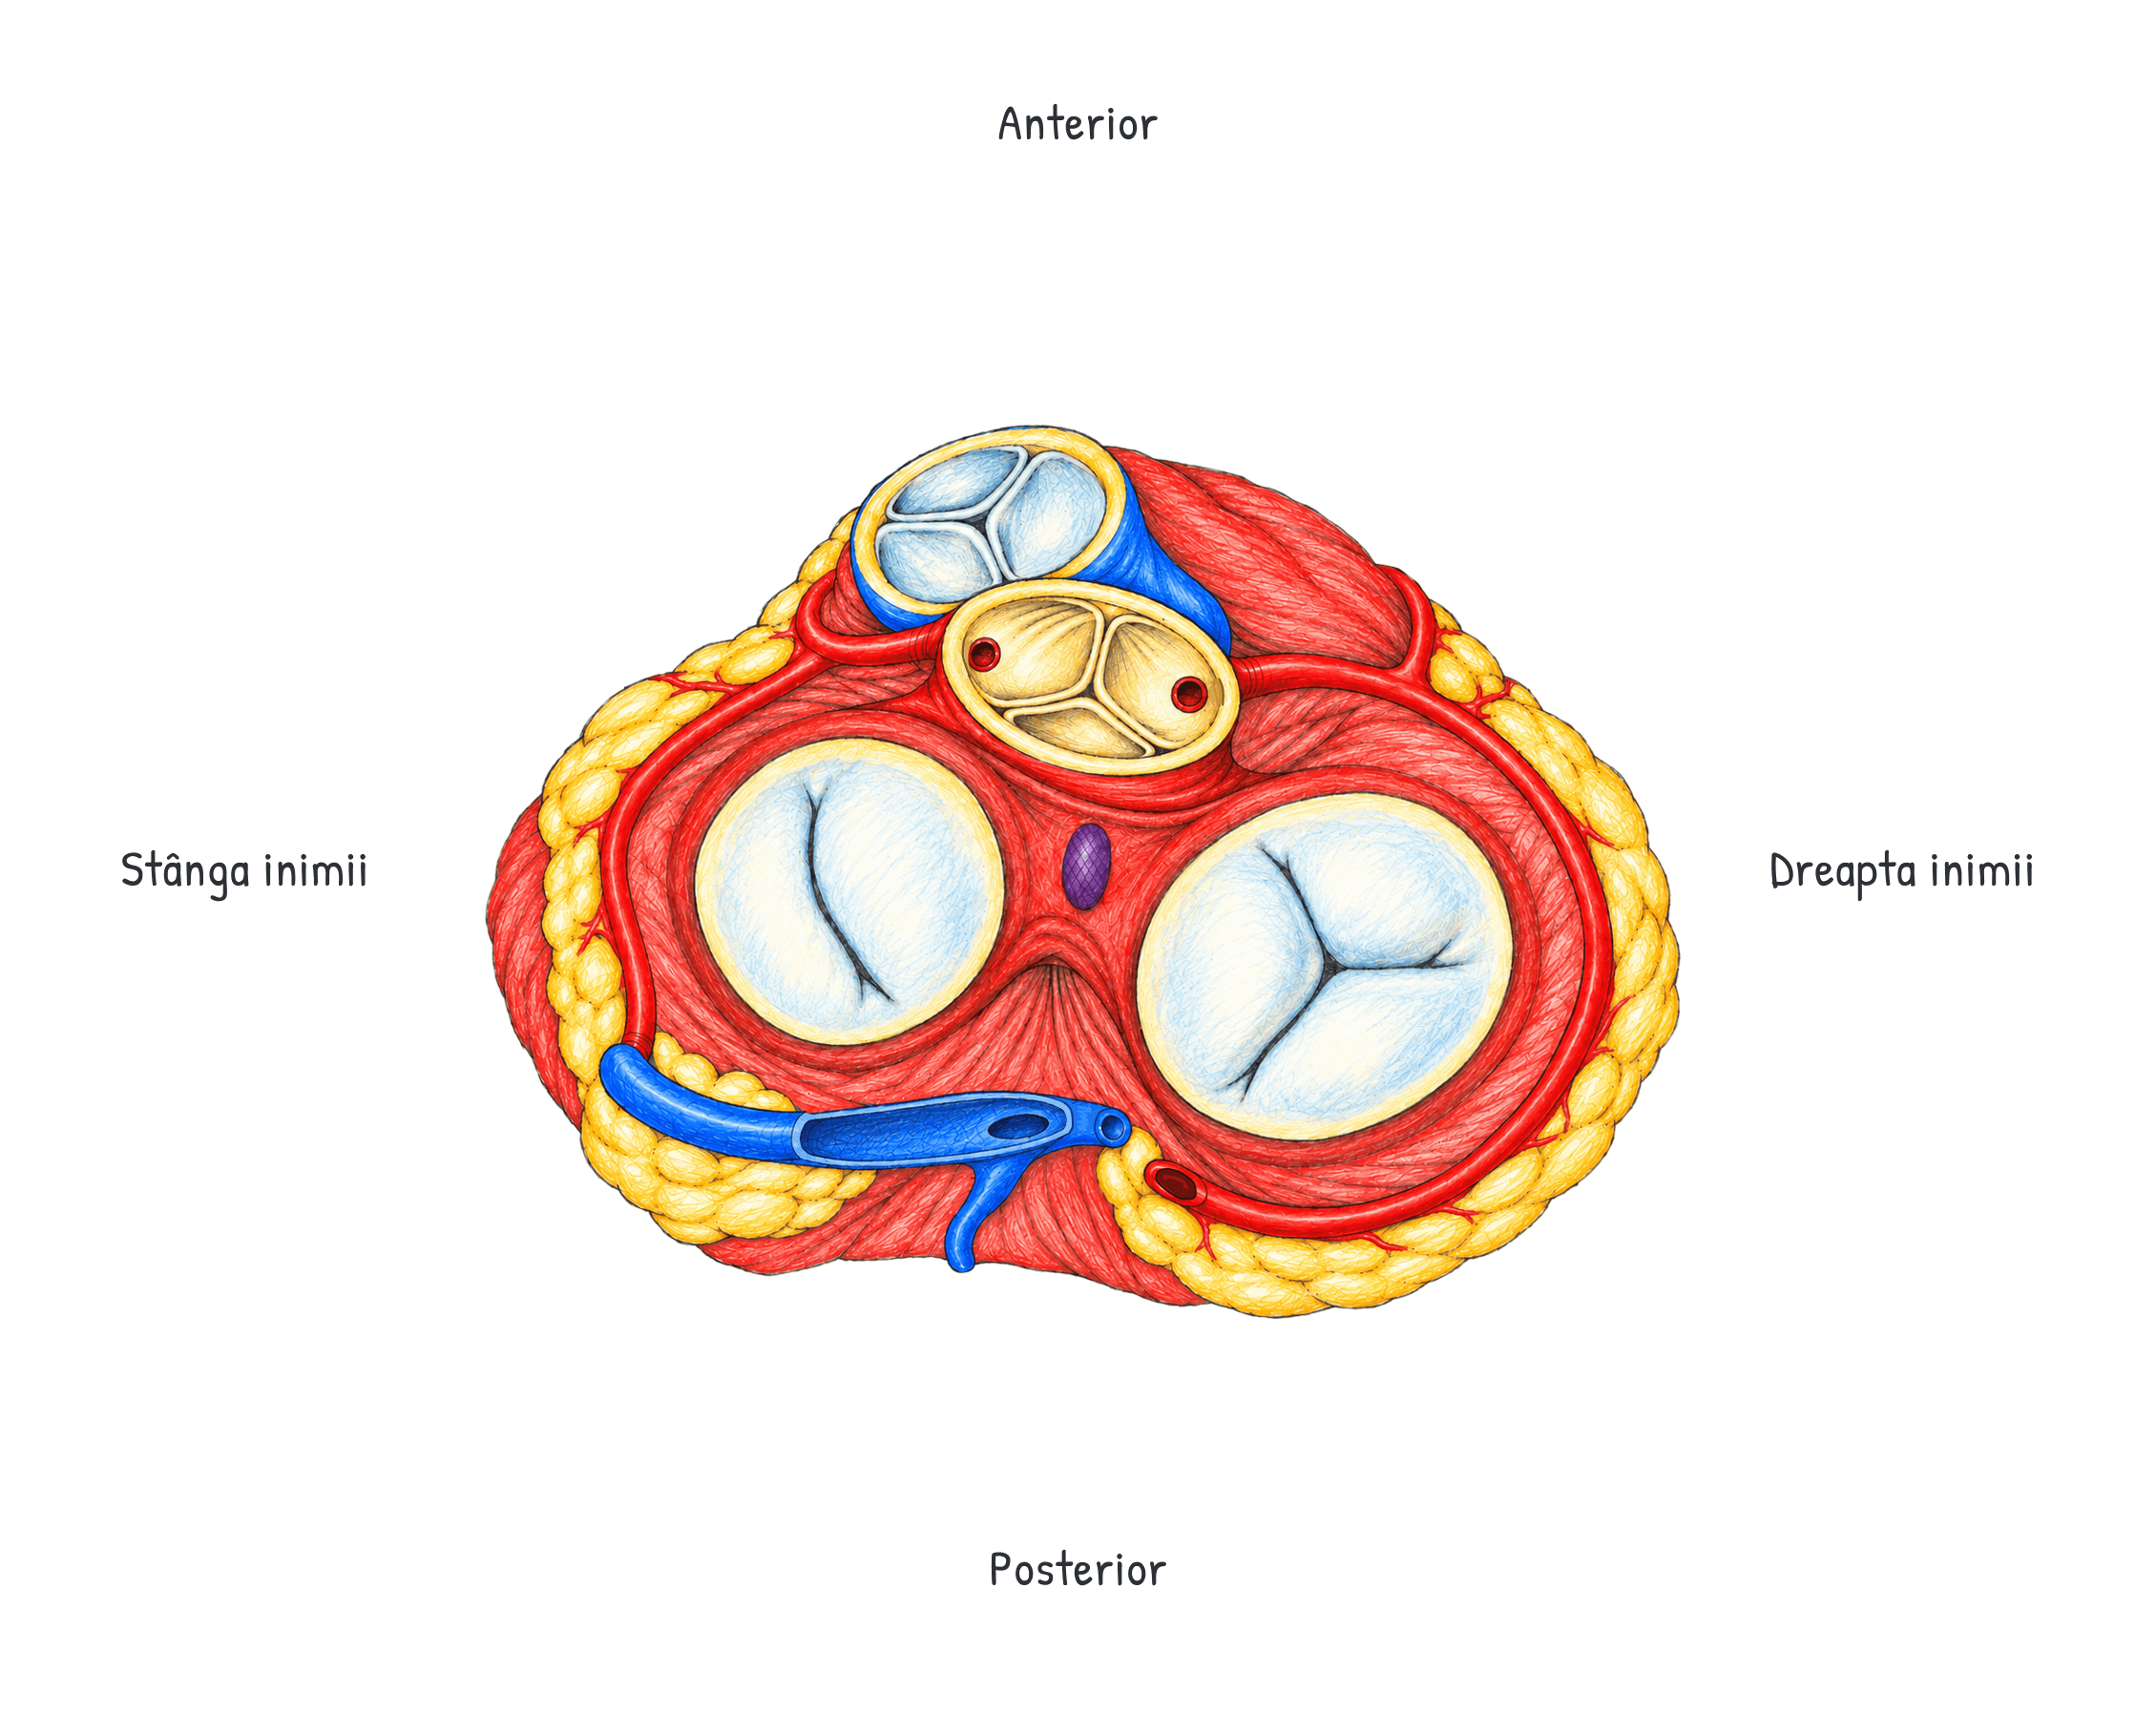
Fig. 15.4 · Biologie Barron's · p. 347
Valvele cardiace văzute de sus, după îndepărtarea atriilorAici inima este privită de sus, după ce atriile au fost îndepărtate. Rămâne la vedere „planșeul” pe care stau toate cele patru valve cardiace deodată, ceea ce face din această figură cea mai bună imagine pentru a le compara. În desen, valva bicuspidă și ventriculul stâng apar în stânga, valva tricuspidă și ventriculul drept în dreapta, iar cele două valve mici, pulmonară și aortică, în partea de sus. Pe marginile desenului este notată chiar această orientare: stânga și dreapta inimii pe laturi, anterior sus și posterior jos. În jur se văd vasele care hrănesc și drenează mușchiul cardiac. De ce sunt necesare valvele Un set de valve cardiace asigură circulația unidirecțională a sângelui prin inimă, prevenind refluxul. Patru valve sunt implicate în acest proces: două dintre ele sunt denumite valve atrioventriculare, iar celelalte două, valve semilunare. Valvele atrioventriculare Sunt cele două deschideri mari din desen și li se numără ușor cuspisurile. Valva tricuspidă este situată în partea dreaptă a inimii, între atriul și ventriculul drept. Este numită așa deoarece are trei cuspisuri. Valva bicuspidă, numită și valvă mitrală, se află în partea stângă a inimii, între atriul și ventriculul stâng, și are numai două cuspisuri. Ambele permit sângelui să curgă din atrii în ventricule și previn refluxul sângelui în atrii atunci când ventriculele se contractă. Valvele semilunare Cele două valve semilunare se află la emergența arterelor principale din ventricule. Valva pulmonară delimitează intrarea în trunchiul pulmonar, ce se extinde de la ventriculul drept spre plămâni, și previne refluxul sângelui în ventriculul drept când acesta se relaxează. Valva aortică este situată la emergența aortei și previne refluxul sângelui în ventriculul stâng. Amândouă sunt vizibil mai mici decât valvele atrioventriculare. Vasele mușchiului cardiac Deoarece inima se află într-o activitate continuă, ea trebuie alimentată permanent cu sânge. Arterele care îi furnizează sânge sunt arterele coronare, dreaptă și stângă, iar în figură se văd și orificiile prin care ele pornesc, chiar la nivelul valvei aortice. Ele își au originea în aortă, imediat după emergența acesteia din ventriculul stâng, și furnizează sânge oxigenat mușchiului cardiac. După ce a hrănit miocardul, sângele sărac în oxigen este drenat de venele cardiace în sinusul coronar, care îl trimite în atriul drept (Figura 15.5). Un detaliu de reținut Între valva tricuspidă și valva aortică este marcat nodul atrioventricular (AV), al doilea nod principal al inimii, situat în septul interatrial. El face parte din țesutul excitoconductor, prezentat în Figura 15.6. Pereții marcați în stânga și în dreapta aparțin ventriculului stâng, respectiv ventriculului drept, iar grosimea lor diferită se vede și în secțiunea longitudinală din Figura 15.2.

Fig. 15.5 · Biologie Barron's · p. 348
Circulația coronariană: arterele coronare și venele cardiaceInima este privită dinspre lateral, ca să se vadă rețeaua de vase care îmbracă suprafața ei. Vasele care se ramifică pe această suprafață deservesc mușchiul cardiac însuși: cele care îi aduc sânge (arterele coronare) și cele care îl duc înapoi (venele cardiace). Urmărește-le de sus în jos, de la baza inimii spre vârf, și observă că arterele și venele merg de obicei în pereche, prin aceleași șanțuri de pe suprafața inimii. De ce are inima vase proprii Deoarece inima se află într-o activitate continuă, ea trebuie alimentată permanent cu sânge. Arterele care îi furnizează sânge sunt arterele coronare, iar vasele care drenează mușchiul cardiac sunt venele cardiace. Sensul este mereu același: arterele coronare furnizează sânge oxigenat mușchiului cardiac, apoi sângele sărac în oxigen este drenat de venele cardiace și condus în sinusul coronarian. Arterele desenate În figură apar câteva dintre arterele coronare: artera coronară dreaptă, care coboară pe partea dreaptă a desenului, cu ramura marginală și cu artera interventriculară posterioară (numită și ramură descendentă), care coboară spre vârful inimii, precum și ramura circumflexă, care ocolește inima prin partea de sus. Împreună, ele acoperă aproape toată suprafața miocardului. Venele și sinusul coronarian Venele cardiace însoțesc arterele și strâng sângele folosit de miocard: vena cardiacă mare, vena cardiacă mică, vena cardiacă mijlocie și vena cardiacă posterioară. Toate se varsă în sinusul coronarian, vasul larg din partea de sus a desenului. Sinusul coronarian este situat aproape de venele cave și se golește în atriul drept împreună cu aceste vene, astfel încât sângele mușchiului cardiac reintră în circuitul general. Ce se întâmplă când aceste artere se înfundă Obstrucția prelungită a arterelor coronare prin cheaguri de sânge se numește tromboză coronariană. Această afecțiune poate produce moartea celulelor miocardice, iar când celulele miocardice mor apare infarctul miocardic, cunoscut și sub numele de atac de cord. Privind desenul se înțelege de ce zona afectată depinde de artera obstruată: fiecare ramură hrănește o porțiune anume din miocard. Sinusul coronarian și orificiile de plecare ale arterelor coronare se văd și în vederea de sus a inimii din Figura 15.4.

Fig. 15.6 · Biologie Barron's · p. 350
Sistemul excitoconductor al inimiiInima este desenată în secțiune, iar peste ea sunt marcate componentele țesutului excitoconductor, țesutul specializat prin care inima își generează și își distribuie singură impulsurile. Săgețile din desen arată sensul în care se propagă unda de depolarizare: pornesc din colțul de sus al atriului drept, se răspândesc în atrii, coboară pe sept și ajung, pe la vârful inimii, în pereții celor două ventricule. De ce bate inima fără comandă nervoasă Contracțiile celulelor musculare cardiace nu sunt inițiate de impulsuri venite de la sistemul nervos. Inima inițiază și distribuie impulsuri pentru a determina contracția celulelor miocardice printr-un țesut specializat, denumit țesut excitoconductor. Celulele acestui sistem se depolarizează și se repolarizează pe tot parcursul vieții unei persoane fără intervenția sistemului nervos. Traseul impulsului, pas cu pas Nodul sinoatrial (SA) este prima componentă a sistemului excitoconductor, o masă de celule musculare cardiace prevăzute cu autoritmicitate, situată în peretele superior al atriului drept. Se depolarizează, fără intervenție nervoasă, de 70-80 de ori pe minut, iar unda pe care o inițiază stabilește ritmul sinusal. Pentru că el determină ritmul contracțiilor cardiace, este cunoscut ca stimulator cardiac (pace-maker). Impulsurile sunt distribuite de la nodul SA în țesutul atrial, de la celulă la celulă, prin intermediul joncțiunilor gap din discurile intercalare. Ele se răspândesc prin fibre la al doilea nod principal al inimii, nodul atrioventricular (AV), situat în septul interatrial, între cele două atrii. De la nodul AV impulsurile se transmit unui grup mai voluminos de fibre, fasciculul His, situat în septul interventricular. Acesta este format din două ramuri, dreaptă și stângă. Ramurile se continuă cu fibrele Purkinje, care se distribuie în miocardul ventricular și asigură transmiterea impulsurilor necesare contracției acestuia. Potențialele de acțiune ale inimii urmează procesul de depolarizare și repolarizare tipic tuturor celulelor musculare. Reperele anatomice din desen Pentru a-ți orienta ochiul, figura marchează și structuri care nu fac parte din sistemul excitoconductor: aorta, cele două atrii, cele două ventricule și septul interventricular, peretele care desparte ventriculele și în care este adăpostit fasciculul His. Se vede astfel de ce impulsul ajunge aproape simultan în tot miocardul ventricular, deși pleacă dintr-un singur punct. Ce poate schimba ritmul Deși stimularea externă nu este necesară pentru activitatea cardiacă, sistemul nervos autonom poate realiza un control nervos asupra inimii: impulsurile sistemului nervos simpatic cresc frecvența bătăilor cardiace și contracția ventriculară, iar cele ale sistemului nervos parasimpatic le diminuează. Când ritmul se dereglează apar aritmiile, iar când inima se contractă rapid și neregulat se spune că fibrilează, afecțiune numită fibrilație. Transmiterea impulsului prin acest sistem poate fi înregistrată prin electrocardiogramă (Figura 15.7).

Fig. 15.7 · Biologie Barron's · p. 350
Ciclul cardiac pe electrocardiogramă (ECG)Figura pune față în față două imagini ale aceluiași lucru. În stânga este inima cu piesele sistemului excitoconductor, iar în dreapta este traseul înregistrat pe hârtia milimetrică a electrocardiogramei. Culoarea leagă cele două panouri: fiecare structură marcată pe inimă are aceeași culoare ca porțiunea de traseu care îi corespunde. Nodul SA este legat astfel de unda P, nodul AV de pauza foarte scurtă dintre unda P și complexul QRS, iar fibrele Purkinje de complexul QRS, porțiunea în care impulsul ajunge în miocardul ventricular. Ce se înregistrează Transmiterea impulsului prin sistemul conductor al inimii poate fi înregistrată prin electrocardiogramă (ECG). Pe o electrocardiogramă normală se disting trei unde care apar în fiecare ciclu cardiac. Unda P este o undă ascendentă care indică depolarizarea atriilor și distribuirea impulsului de la nodul SA, prin atrii, spre nodul AV, determinând contracția atrială. Complexul QRS este a doua undă, alcătuită dintr-o undă descendentă (Q), urmată de o undă ascendentă largă (R) și apoi de o undă descendentă (S). Acest complex reflectă depolarizarea ventriculelor și apare după o pauză foarte scurtă, când impulsurile pleacă de la nodul AV. Unda T este deflexiunea rotunjită care urmează și reprezintă repolarizarea ventriculară, adică perioada în care celulele musculare se repolarizează după contracție. Cele două paranteze de sub traseu Sub grafic, două paranteze arată cărei părți a inimii îi corespunde fiecare porțiune: prima marchează contracția atrială, care urmează undei P, iar a doua marchează contracția ventriculară, care urmează complexului QRS. Așa se vede că electrocardiograma înregistrează activitatea electrică, iar contracția mecanică vine imediat după ea. Ciclul cardiac Alternanța contracțiilor și relaxărilor cavităților cardiace reprezintă ciclul cardiac. Termenul sistolă se referă la contracțiile inimii, iar termenul diastolă la perioadele de relaxare, deci ciclul cardiac este alcătuit din sistolă și diastolă. În timpul sistolei ventriculare atriile sunt în diastolă și se umplu cu sânge. Cantitatea de sânge pompată de un ventricul în timpul fiecărei sistole este numită volum bătaie, iar cantitatea pompată pe minut se numește debit cardiac. Inima bate de aproximativ 70-75 de ori pe minut, iar un ciclu cardiac are o durată mai mică de o secundă. Deoarece volumul bătaie la un adult este în medie de aproximativ 70 ml de sânge, debitul cardiac mediu este de aproximativ 5250 ml de sânge pe minut. Zgomotele care însoțesc traseul Când valvele atrioventriculare se închid, inima emite un zgomot redat prin onomatopeea „lub”, primul zgomot cardiac. Apoi sângele curge prin artera pulmonară și aortă, iar valvele semilunare se închid, sunet descris prin „dub”. Astfel, zgomotele cardiace sunt descrise ca „lub-dub”, iar zgomotele anormale, numite sufluri, indică de obicei o afecțiune a valvelor. Structurile din panoul cu inima sunt prezentate pe larg în Figura 15.6.

Fig. 15.8 (a) · Biologie Barron's · p. 354
Structura comparată a arterei, capilarului și veneiFigura așază alături cele trei tipuri de vase sanguine, în ordinea în care le parcurge sângele: artera, capilarul și vena. Arteriolele, dintre arteră și capilar, și venulele, dintre capilar și venă, nu sunt desenate. Fiecare vas apare de două ori. Sus este o vedere în perspectivă a unui segment de vas, cu peretele secționat în trepte, ca să se vadă straturile unul sub altul. Jos este secțiunea transversală a aceluiași vas, în care straturile apar ca inele concentrice. Numele tunicilor stau între cele două rânduri și au câte o linie spre fiecare desen, așa că poți urmări aceeași tunică în ambele vederi. Artera este colorată în roșu, vena în albastru, iar în secțiuni tunica externă este violet și tunica medie roz. Cele trei tunici Toate vasele sanguine, cu excepția capilarelor, au în peretele lor trei straturi distincte, numite tunici. Ele înconjoară lumenul, spațiul central, gol, prin care curge sângele. Dinspre lumen spre exterior, tunicile sunt: Tunica internă căptușește lumenul vascular. Este un strat subțire endotelial, format din epiteliu simplu pavimentos așezat pe o membrană bazală, și se numește endoteliu. Continuarea endoteliului, numită endocard, căptușește inima și acoperă valvele cardiace (Figura 15.2). În secțiuni, este inelul subțire de la marginea lumenului. Tunica medie este stratul mijlociu, alcătuit în principal din celule musculare netede și fibre elastice aparținând țesutului conjunctiv. În secțiuni, este inelul roz. Tunica externă este stratul exterior, format în principal dintr-o țesătură laxă de fibre de colagen. Fibrele protejează vasele sanguine și asigură fixarea lor de țesuturile învecinate. În secțiuni, este inelul violet. Artera Artera transportă sângele la presiune ridicată, de la inimă la arteriole, și are un perete gros și rezistent. Tunica ei medie este un strat gros de mușchi neted și țesut elastic, iar în secțiune inelul roz este cel mai lat dintre straturi. Datorită țesutului elastic, artera se destinde când inima se contractă, apoi revine la forma inițială și împinge sângele înainte. Mușchiul neted se poate contracta și micșora lumenul, ceea ce se numește vasoconstricție, iar mărirea lumenului se numește vasodilatație. Capilarul Capilarele sunt structuri microscopice care leagă arteriolele de venule. Peretele lor face excepție de la regula celor trei tunici: este format dintr-un singur strat de celule endoteliale, care alcătuiește tunica internă. Desenul de sus arată limitele dintre aceste celule pe suprafața capilarului, iar în secțiune peretele apare ca un inel subțire. Prin acest perete, moleculele mici pot să treacă cu ușurință, așa că el se comportă ca o membrană semipermeabilă prin care se realizează schimburile de nutrienți, gaze și reziduuri între sânge și celulele din țesuturi. Vena Vena are aceleași trei tunici ca artera, cu două deosebiri care se văd în secțiune: tunica externă (inelul violet) este mai groasă, iar tunica medie (inelul roz) este mai subțire. Sângele curge prin venă lin și cu presiune mai mică, nu pulsează ca în artere, așa că peretele ei nu trebuie să fie la fel de rezistent. Peretele arterei trebuie să reziste la presiunea sângelui, de aceea este mai gros decât cel al venei, iar diferența se vede și în secțiuni. Vena transportă sângele de la venule înapoi la inimă. Multe vene au și valve, formate din pliuri ale stratului intern. În desenul de sus, valva apare ca două lambouri în interiorul venei. Arterele și capilarele nu au valve, valvele sunt prezente doar în vene. Cum funcționează valvele arată Figura 15.8 (b).

Fig. 15.8 (b) · Biologie Barron's · p. 354
Funcționarea valvelor venoaseFigura urmărește ce se întâmplă într-o venă în dreptul unei valve, în patru desene ale aceluiași segment de venă, citite de la stânga la dreapta. Săgeata din stânga, „spre inimă”, arată sensul în care curge sângele: venele transportă sângele de la venule înapoi la inimă. În desene, săgeata verde arată sângele care curge spre inimă, săgețile roz arată sângele care curge înapoi, adică refluxul, iar săgețile portocalii arată presiunea sângelui asupra peretelui. Tunicile peretelui venos sunt prezentate în Figura 15.8 (a). Ce sunt valvele venoase Sângele curge prin vene cu presiune mai mică decât prin artere. Pentru a ajuta curgerea lui, multe vene prezintă pliuri ale stratului intern, care formează valve. În desene, valva are două lambouri. Valvele previn refluxul sângelui venos, în special la nivelul membrelor inferioare. Arterele și capilarele nu au valve, valvele sunt prezente doar în vene. Cum se citesc cele patru desene Exterior. Vena, privită din afară, este dilatată în zona unde este situată valva. Deschisă. Când sângele trece spre inimă, valva se deschide. Lambourile se depărtează, iar săgeata verde trece printre ele. Închisă (normal). Săgețile roz, care coboară spre lambouri, arată sângele care ar curge înapoi. Lambourile se unesc, închizând valva și împiedicând refluxul sângelui. Valvă slăbită. Când valvele slăbesc, sângele se scurge înapoi. În desen, lambourile nu se mai unesc, iar săgeata roz trece printre ele. Presiunea sângelui dilată peretele venos, ceea ce arată săgețile portocalii: sub valvă, peretele iese mult în afara liniilor albe întrerupte, care marchează lățimea normală a venei. Venele dilatate astfel se numesc vene varicoase. Ce favorizează venele varicoase Înaintarea în vârstă, statul prelungit în picioare și sarcina contribuie la dezvoltarea venelor varicoase.

Fig. 15.9 · Biologie Barron's · p. 357
Principalele artere ale organismului umanFigura arată principalele artere ale circulației sistemice, desenate peste silueta întregului corp, văzut din față. Arterele sunt vasele care duc sângele de la inimă, la presiune ridicată, spre arteriole și, mai departe, spre capilare. Cel mai ușor citești desenul dacă urmărești aorta pornind din inimă: urcă, se arcuiește deasupra inimii și coboară de-a lungul coloanei vertebrale. Pe drum, din ea se desprind, de sus în jos, arterele gâtului și capului, ale membrelor superioare, ale organelor abdominale și, la capăt, ale membrelor inferioare. Două detalii te feresc de confuzii. Omul din desen stă cu fața spre noi, așa că partea lui stângă apare în dreapta figurii, unde sunt marcate artera carotidă comună stângă și artera subclaviculară stângă. Apoi, arterele perechi sunt desenate pe ambele părți ale corpului, dar fiecare este marcată o singură dată: arterele brațului și ale mâinii pe membrul superior drept, artera radială și artera ulnară pe antebrațul stâng, iar arterele coapsei, ale gambei și ale piciorului pe membrul inferior drept. Aorta și porțiunile ei Aorta este principala arteră a circulației sistemice și cea mai mare arteră din organism. Ventriculul stâng pompează în ea sânge bogat în oxigen, iar din ea sângele este distribuit celorlalte artere sistemice, spre cap, torace, regiunea abdominală și restul corpului. În desen i se urmăresc patru porțiuni: Aorta ascendentă urcă din ventriculul stâng. Imediat după emergența aortei își au originea arterele coronare, care furnizează sânge oxigenat mușchiului cardiac. Arcul aortic este curbura de deasupra inimii. Din el pleacă, de la dreapta corpului spre stânga, trunchiul brahiocefalic, artera carotidă comună stângă și artera subclaviculară stângă. Aceleași ramuri apar, mărite, în secțiunea prin inimă din Figura 15.2. Aorta toracică coboară prin torace, de-a lungul coloanei vertebrale. Aorta abdominală continuă coborârea prin abdomen, dă ramurile organelor abdominale și se termină prin împărțirea în cele două artere iliace comune. Trunchiul pulmonar, excepția din figură Singurul vas desenat care nu aparține circulației sistemice este trunchiul pulmonar, aflat lângă aortă, deasupra inimii. El se extinde de la ventriculul drept spre plămâni, iar din el provin cele două artere pulmonare, singurele artere care transportă sânge sărac în oxigen. Toate celelalte artere din figură primesc, prin aortă, sângele bogat în oxigen pompat de ventriculul stâng (Figura 15.3). Gâtul și capul Arterele carotide urcă pe gât spre cap. Sus pe gât, artera carotidă comună se împarte în artera carotidă internă și artera carotidă externă. Pe partea stângă, artera carotidă comună pleacă direct din arcul aortic. Pe partea dreaptă, desenul o arată pornind din trunchiul brahiocefalic, care dă și vasul spre membrul superior drept. La locul în care carotida comună se ramifică se află corpusculii carotidieni, două mase de țesut cu chemoreceptori, care reacționează la concentrații anormale de oxigen, dioxid de carbon și ioni de hidrogen din sânge. Aorta și arterele carotidiene conțin, în plus, baroreceptori, care contribuie la reglarea fluxului sanguin. Membrul superior Arterele subclaviculare sunt arterele umărului. Ele se continuă în membrul superior cu artera axilară, la nivelul axilei, apoi cu artera brahială, pe braț. La antebraț urmează artera radială și artera ulnară, care în palmă se unesc în arcul palmar superficial. Din acesta pornesc arterele digitale, spre degete. Două dintre aceste artere contează și la măsurători: pulsul se măsoară de obicei la artera radială, la încheietura mâinii, iar la măsurarea presiunii arteriale se ascultă cu stetoscopul curgerea sângelui în artera ulnară. Ramurile aortei abdominale Pe măsură ce coboară, aorta dă naștere arterelor care duc sângele la organe. Prima ramură este trunchiul celiac, o ramură scurtă din care pleacă trei artere, desenate ca trei ramuri scurte, cu capătul rotunjit, în partea de sus a aortei abdominale: Artera gastrică stângă, cea mai de sus dintre cele trei. Artera splenică, prin care sângele intră în splină. Artera hepatică comună, prin care ficatul primește sângele bogat în oxigen necesar propriilor celule. Sub trunchiul celiac se desprind artera mezenterică superioară, care se extinde la intestinul subțire, arterele renale, care duc sângele la nivelul rinichilor, artera gonadală și artera mezenterică inferioară, cea mai de jos dintre ramurile marcate. Membrul inferior La capăt, aorta abdominală se împarte în cele două artere iliace comune, câte una pentru fiecare membru inferior. Fiecare se ramifică într-o arteră iliacă internă, care în desen se curbează spre mijlocul pelvisului, și o arteră iliacă externă, care continuă spre membrul inferior. Din artera iliacă externă iau naștere artera femurală, care străbate coapsa, artera poplitee, la genunchi, unde se poate măsura și pulsul, și arterele tibiale. Sub genunchi, artera poplitee se împarte în artera tibială anterioară și artera tibială posterioară, care coboară prin gambă. Pe fața de sus a piciorului se vede arcul dorsal, cu ramuri subțiri spre degete. Arterele și venele Pereche cu această figură este Figura 15.10, care arată principalele vene pe aceeași siluetă. Multe denumiri se regăsesc la ambele: subclaviculară, axilară, radială, ulnară, splenică, mezenterică, renală, gonadală, iliacă, femurală, poplitee, tibială. Merită să le înveți împreună, ținând minte că arterele duc sângele de la inimă, iar venele îl aduc înapoi la inimă.

Fig. 15.10 · Biologie Barron's · p. 358
Principalele vene ale organismului umanFigura este harta venelor principale ale corpului, desenată pe aceeași siluetă ca harta arterelor din Figura 15.9. Multe vene poartă chiar numele arterelor de acolo (radială, ulnară, axilară, iliace, femurală, poplitee, tibiale), așa că merită să compari cele două figuri. Traseele se citesc însă invers, de la periferie spre inimă: după ce sângele a deservit celulele, capilarele îl conduc spre venule, apoi spre vene și, în cele din urmă, spre venele cave, care îl aduc în atriul drept. Manualul precizează că din figură lipsesc venele pulmonare. Ele aparțin circulației pulmonare, duc sângele de la plămâni în atriul stâng și sunt singurele vene care transportă sânge bogat în oxigen. Așadar, toate venele desenate aici transportă sânge sărac în oxigen. Vasele apar pe ambele brațe și pe ambele picioare, dar fiecare venă este marcată o singură dată, fie pe membrul din stânga imaginii, fie pe cel din dreapta. Dintre venele marcate, manualul enumeră printre cele mai importante venele jugulare, venele axilară, radială și ulnară, venele splenică și mezenterice și venele iliace comune. Cele două vene cave Principalele vene ale circulației sistemice sunt cele două vene cave: Vena cavă superioară coboară în inimă de la baza gâtului și aduce sângele de la cap și gât. Chiar deasupra ei sunt venele brahiocefalice, dreaptă și stângă, în locul în care venele jugulare se întâlnesc cu vena subclaviculară, venită peste umăr de la membrul superior. Cele două vene brahiocefalice se unesc în vena cavă superioară. Vena cavă inferioară urcă prin abdomen, lângă linia mediană, de la locul unde se unesc venele iliace comune până la inimă, și aduce sângele din regiunea inferioară a corpului. În atriul drept se golește și sinusul coronarian. În el ajunge sângele strâns din mușchiul cardiac de venele cardiace, iar una dintre ele este marcată pe suprafața inimii. Capul și gâtul În interiorul capului, sub conturul craniului, sunt desenate sinusurile durale. Ele coboară în spatele urechii și se continuă pe gât cu vena jugulară internă, iar alături de ea coboară vena jugulară externă. Despre venele capului, manualul amintește doar că arterele care irigă encefalul se continuă cu vene, care părăsesc encefalul. Membrul superior Traseul pornește de la venele digitale ale mâinii. Pe antebrațul membrului din stânga imaginii sunt marcate vena radială și vena ulnară, iar pe brațul celuilalt membru, două vene lungi, vena cefalică, spre partea laterală, și vena bazilică, spre partea medială. La cot, ele sunt legate de o venă scurtă și oblică, vena cubitală mediană. Sus, în dreptul axilei, sângele ajunge în vena axilară, care se continuă peste umăr cu vena subclaviculară. Organele abdominale și sistemul port hepatic De la organele abdominale, sângele este strâns de vena splenică, venită dinspre splină, de vena mezenterică superioară și de vena mezenterică inferioară. Ele nu merg direct la vena cavă. Sub ficat, sângele lor ajunge în vena portă, principalul vas al sistemului port hepatic (Figura 15.11). Circulația hepato-portală are loc într-o singură direcție și duce nutrienții la ficat, pentru prelucrare. După ce trece prin ficat, sângele pleacă prin vena hepatică, care, în desen, ajunge în vena cavă inferioară chiar sub inimă. Mai jos, lângă vena cavă inferioară, sunt două vene care nu țin de acest sistem: vena renală, un vas orizontal care aduce sângele de la rinichi, și vena gonadală, o venă subțire desenată sub ea, de-a lungul venei cave inferioare. Membrul inferior Pe fața de sus a piciorului, venele digitale dorsale, de pe degete, se varsă în arcul venos dorsal. De aici sângele urcă prin venele gambei, vena tibială anterioară și vena tibială posterioară pe membrul din stânga imaginii și vena peronieră pe cel din dreapta. Acestea se adună la genunchi în vena poplitee, care se continuă pe coapsă cu vena femurală. Pe partea medială a membrului, de la picior până sus pe coapsă, urcă vena safenă mare. În pelvis, vena femurală se continuă cu vena iliacă externă, care se unește cu vena iliacă internă, ramura ce coboară spre interiorul pelvisului. Din unirea lor rezultă vena iliacă comună, iar cele două vene iliace comune formează vena cavă inferioară. Ce deosebește venele de artere Venele au tunica externă mai groasă și tunica medie mai subțire decât arterele. Sângele curge prin ele lin și cu presiune mai mică, așa că pereții lor nu trebuie să fie la fel de rezistenți. Pentru a ajuta curgerea sângelui, multe vene au pliuri ale stratului intern care formează valve. Acestea previn refluxul sângelui venos, mai ales la membrele inferioare (Figura 15.8). Când valvele slăbesc, presiunea sângelui dilată peretele venos și apar venele varicoase. Venele servesc și drept rezervoare de sânge: aproximativ 60% din volumul sanguin se află în vene și venule.

Fig. 15.11 · Biologie Barron's · p. 359
Sistemul port hepaticFigura arată sistemul port hepatic, un circuit venos care duce sângele de la organele digestive mai întâi la ficat și abia apoi spre inimă. Desenul se citește de jos în sus, în sensul în care curge sângele: venele de pe intestine, stomac, pancreas și splină se strâng într-un singur vas, vena portă, care urcă la ficat, iar din ficat sângele iese prin venele hepatice în vena cavă inferioară. Organele sunt văzute din față, așa că partea dreaptă a corpului apare în stânga imaginii (colonul ascendent, cecul), iar partea stângă, în dreapta ei (splina, colonul descendent). Pentru ca venele să se vadă, ansele intestinului subțire și colonul transvers au fost îndepărtate din desen, rămânând doar capetele lor secționate. Vena portă, vena hepatică, venele mezenterice și vena splenică apar și în Figura 15.10, printre principalele vene ale corpului. Ce este sistemul port hepatic Sistemul port hepatic transportă sângele de la tractul gastrointestinal și splină către ficat. Circulația hepato-portală are loc într-o singură direcție, iar scopul ei este să transporte nutrienții la ficat, pentru prelucrare. Sistemul este format din venulele și venele care drenează sângele din diferite regiuni ale sistemului digestiv și fuzionează într-o singură venă, vena portă, principalul vas al acestei circulații. Pentru că a deservit deja tractul gastrointestinal, sângele din sistemul port este sărac în oxigen. Venele care adună sângele de la organele digestive Venele intestinale se strâng în două colectoare mari: Vena mezenterică superioară străbate vertical mijlocul desenului. Dinspre stânga imaginii primește vena colică dreaptă, de la colonul ascendent, și vena ileocolică, din zona în care ileonul se continuă cu cecul. În aceasta din urmă se varsă vena apendiculară, de la apendicele vermiform. Tot dinspre stânga, din spațiul rămas gol după îndepărtarea anselor, vin venele jejunală și ileală, desenate ca o rețea de arcade, iar dinspre dreapta imaginii vine vena colică mijlocie, de la nivelul la care ar trece colonul transvers. Vena mezenterică inferioară urcă pe partea stângă a corpului, paralel cu colonul descendent, până sub pancreas. Ea adună sângele venei sigmoidiene, de pe colonul sigmoid, și al venelor rectale superioare, de pe rect. Mai sus, sub ficat, se adaugă vena gastrică, desenată pe stomac, vena pancreatico-duodenală, între pancreas și duoden, și vena splenică, care vine de la splină de-a lungul pancreasului. Toate converg spre vena portă, care pornește din spatele pancreasului și urcă la ficat. Manualul numește vena splenică și cele două vene mezenterice printre cele mai importante vene de la organele abdominale. Două rețele capilare, una după alta Sângele din sistemul port trece prin două rețele capilare. Prima este cea a organelor digestive. În intestinul subțire, monozaharidele, aminoacizii și acizii grași cu lanț scurt de carbon sunt absorbiți în capilarele sanguine ale vilozităților intestinale, la fel ca apa, electroliții și vitaminele (Figura 18.7). Din aceste capilare, sângele trece prin venule în venele desenate aici. Acizii grași cu lanț lung fac excepție: refăcuți sub formă de trigliceride, ei trec în chiliferul central, un vas limfatic. A doua rețea se află în ficat. Vena portă intră în organ și se ramifică, formând rețeaua de vase desenată în interiorul lui, numită în figură sinusoide hepatice. Aici nutrienții sunt procesați. Ieșirea din ficat După ce a străbătut ficatul, sângele este colectat de vena hepatică dreaptă și vena hepatică stângă, care se varsă în vena cavă inferioară la marginea de sus a organului. Aceasta se vede în desen pe toată înălțimea imaginii, ca vasul vertical care coboară pe linia mediană și se împarte jos în două ramuri, dar nu face parte din sistemul port: prin ea sângele pleacă din ficat, nu ajunge la el. Vena cavă inferioară duce sângele în atriul drept, iar nutrienții prelucrați ajung astfel în circulația generală și la celulele din țesuturi. Ficatul primește și sânge arterial Textul de lângă figură mai amintește un vas, nemarcat în desen. Pentru a asigura nutriția propriilor celule, ficatul primește sânge bogat în oxigen prin artera hepatică, ramură a aortei, care îi aduce oxigen și substanțe nutritive. În Figura 15.9 o găsești ca artera hepatică comună, una dintre ramurile trunchiului celiac. Ficatul are așadar două surse de sânge: vena portă, care îi aduce nutrienții de prelucrat, și artera hepatică, care îi hrănește propriile celule. Ce înseamnă „prelucrarea” nutrienților Capitolul despre sistemul digestiv dă câteva exemple. Când nivelul glucozei din sânge este ridicat, enzimele hepatice transformă glucoza în glicogen (glicogenogeneză). Ficatul descompune acizii grași în molecule mai mici, cum ar fi acetil coenzima A, îndepărtează grupările amino din aminoacizi prin dezaminare și depozitează vitamine și minerale, precum fierul și cuprul.
- 16Sistemul limfatic și imunPaginile 375 - 389

Fig. 16.1 · Biologie Barron's · p. 377
Sistemul limfatic și legătura sa cu sistemul circulatorFigura pune față în față două rețele care lucrează împreună: circulația sângelui, desenată ca o buclă închisă care trece prin inimă, și sistemul limfatic, desenat ca o cale deschisă la un capăt. Cel mai simplu mod de a citi schema este să pornești de la inimă, din mijloc, și să urmărești săgețile de pe vase: sângele se întoarce mereu de unde a plecat, în timp ce limfa pornește din țesuturi și merge într-o singură direcție, spre inimă. Bucla închisă a sângelui Inima ocupă centrul figurii, cu cele patru cavități ale ei, și întreține două circuite desenate unul deasupra celuilalt: Circulația pulmonară, bucla de deasupra inimii, în care sângele trece prin capilarele pulmonare. Circulația sistemică, bucla mare de sub inimă, în care sângele pleacă printr-o arteră, ajunge la capilarele sanguine din țesuturi și se întoarce la inimă. Calea unidirecțională a limfei În stânga și în dreapta sus, rețeaua limfatică începe direct în țesuturi. Iată elementele ei, în ordinea în care sunt străbătute de limfă: Capilarele limfatice, desenate ca niște ghemuri de vase microscopice la cele două capete ale traseului limfatic. Au un strat endotelial și, din acest punct de vedere, seamănă cu capilarele sanguine, însă sunt mai permeabile decât acestea și pot drena fluidul interstițial din țesuturi. Acest fluid se numește limfă. Vasele limfatice, structuri cu pereți subțiri în care se adună limfa din capilare. Ele se unesc între ele formând vase din ce în ce mai mari, care în final ajung ductul toracic și ductul limfatic drept (Figura 16.2). Valvele limfatice, desenate din loc în loc pe traseul vasului. Ele favorizează curgerea limfei într-o singură direcție și acționează asemănător valvelor venoase. Nodulii limfatici, umflăturile prin care trece vasul. Înainte ca limfa să intre în circulație, ea trece prin ei și este filtrată (Figura 16.3). La capătul traseului, vasele limfatice își varsă conținutul în circulația sanguină, în apropierea inimii. Așa este reintegrată limfa din țesuturi în sânge, pentru a fi reutilizată. Ce vrea să arate figura Fluidele trec din sistemul circulator în țesuturi. Cea mai mare parte a lor se reîntoarce direct în sistemul circulator, dar o fracțiune mai mică pătrunde în capilarele limfatice și se întoarce în circulație pe această cale ocolită. Spre deosebire de sistemul cardiovascular, care este un circuit, sistemul limfatic nu se închide într-o buclă: el se formează în țesuturi și se extinde spre inimă. De reținut, limfa curge unidirecțional, de la țesuturi la inimă.

Fig. 16.2 · Biologie Barron's · p. 378
Sistemul limfatic uman și cele două teritorii de drenajFigura arată întregul sistem limfatic desenat pe silueta corpului, văzut din față. Fiindcă este o vedere anterioară, partea dreaptă a organismului apare în stânga imaginii, așa că structurile numite „dreptă” sunt cele din stânga desenului. Sunt două lucruri de citit în același timp: rețeaua de vase și noduli limfatici răspândită în tot corpul și colorarea siluetei, care împarte corpul în două teritorii de drenaj. Cele două teritorii de drenaj Zona colorată, jumătatea dreaptă supradiafragmatică (partea dreaptă a capului și a gâtului, membrul superior drept și partea dreaptă a toracelui), este aria drenată de ductul limfatic drept. Restul siluetei, lăsat în culoarea pielii, este drenat de ductul toracic. El preia toată zona subdiafragmatică și jumătatea stângă supradiafragmatică a organismului. Cele două ducte mari Ductul toracic este cel mai mare vas limfatic din organism. Se formează în cavitatea abdominală și are traseu ascendent în torace, anterior față de vertebre și dorsal față de esofag. Pe măsură ce se apropie de gât se curbează spre stânga și își golește conținutul în vena subclaviculară stângă. Ductul limfatic drept, mult mai scurt, se unește cu vena subclaviculară dreaptă la baza acesteia și își golește conținutul în sistemul cardiovascular. Cele două vene subclaviculare sunt, așadar, locurile în care limfa se întoarce în sânge (Figura 16.1). Grupele de noduli limfatici Pe traseul vaselor sunt desenate umflături mici, nodulii limfatici, prin care limfa este filtrată înainte de a intra în circulație (Figura 16.3). Figura numește grupele lor principale, de sus în jos: Nodulul limfatic submandibular și nodulii limfatici cervicali, în țesuturile de la nivelul gâtului. Nodulii limfatici axilari, în axilă. Nodulii limfatici intestinali, în abdomen. Nodulii limfatici iliaci, în pelvis, și nodulii limfatici inghinali, la nivel inghinal. Nodulii limfatici sunt însă prezenți peste tot în organism. Manualul îi mai menționează în plica cotului (în fosa cubitală), în spatele genunchiului (în fosa poplitee), în mediastin (regiunea toracică dintre cei doi plămâni), de-a lungul marilor vase de sânge din cavitatea abdominală și în alte zone ale corpului.

Fig. 16.3 · Biologie Barron's · p. 379
Structura nodulului limfatic în secțiuneFigura tăie un nodul limfatic și îl arată în secțiune, ca să se vadă ce se întâmplă în interiorul lui. Se citește de sus în jos, în sensul săgeților marcate „Flux limfatic”: limfa intră prin mai multe vase în partea de sus, străbate nodulul și iese prin partea de jos. Nodulii limfatici sunt dispuși de-a lungul căilor limfatice mari și servesc drept filtre pentru limfă, înainte ca aceasta să se întoarcă în circulația sanguină (Figura 16.2). Cum intră și cum iese limfa Vasele care intră în nodulii limfatici se numesc vase limfatice aferente, iar cele care îi părăsesc se numesc vase limfatice eferente. Este și regula de reținut a manualului: vasele aferente aduc limfa în nodulul limfatic, vasele eferente drenează nodulul limfatic. Observă că în desen vasele aferente sunt mai multe și intră pe fețele laterale, în timp ce vasele eferente pleacă dintr-un singur loc, hilul. Învelișul și compartimentele Nodulul limfatic este o masă de țesut delimitată de o capsulă. Extensii ale capsulei pătrund spre interior și împart nodulul în lobuli mai mici, desenați ca zonele punctate din mijloc. În interiorul lobulilor, țesutul conjunctiv, reprezentat de fibrele de reticulină, susține principalele celule ale nodulului limfatic, limfocitele B și T. Sinusurile limfatice Spațiile libere dintre lobuli, desenate ca niște canale înguste care pătrund dinspre marginea nodulului și șerpuiesc printre ei, se numesc sinusuri limfatice. Sunt zone prin care circulă limfa și care conțin câteva celule. Ele fac legătura între vasele aferente și cele eferente, iar drumul întortocheat pe care îl obligă limfa să-l parcurgă este chiar filtrarea. Cele două regiuni ale nodulului Desenul nu trasează granița dintre ele, dar manualul descrie două regiuni distincte: Cortexul, regiunea externă, în care limfocitele sunt dispuse dens. Conține grupuri de limfocite organizate în foliculi, iar în centrul foliculilor se află zone numite centri germinali. Celulele care predomină aici sunt limfocitele B, restul celulelor corticale fiind limfocite T. Regiunea medulară, regiunea centrală, în care limfocitele sunt dispuse mai rar (zona conține mai puține limfocite). La ce folosește nodulul limfatic Nodulul monitorizează compoziția limfei. Este locul în care celulele înglobează agenții patogeni și în care se generează răspunsul imun, tocmai pentru că aici stau limfocitele T și B, celulele care stau la baza sistemului imun al organismului.

Fig. 16.4 · Biologie Barron's · p. 380
Structurile sistemului limfatic: amigdalele și timusulFigura are două panouri, fiecare arătând unde se află în corp o structură a sistemului limfatic. În stânga, capul este desenat în secțiune, din profil, ca să se vadă amigdalele ascunse în peretele gâtului. În dreapta, toracele este văzut din față, cu plămânii desenați de o parte și de alta (fără să fie etichetați), ca să se vadă unde stă timusul și ce organe are în jur. (a) Localizarea amigdalelor Amigdalele sunt agregate de țesut limfoid localizate sub epiteliul ce căptușește cavitatea orală și faringele. Panoul le arată pe cele trei, eșalonate de sus în jos: Amigdala faringiană (numită și adenoidă), situată în partea superioară a faringelui. Amigdala palatină, localizată sub osul palatin. Este cea la care se referă de obicei termenul „amigdală”. Amigdala linguală, care se află în țesutul limbii. Aglomerări de țesut limfoid se pot găsi și în peretele tractului intestinal, în special în ileon. Acelea se numesc plăcile lui Peyer și nu apar în această figură. (b) Poziția timusului Timusul este localizat în porțiunea superioară a toracelui, în mediastin, între plămâni și dorsal față de stern. Panoul îl așază între niște repere ușor de recunoscut: deasupra lui, pe linia mediană, coboară laringele, glanda tiroidă și traheea, iar dedesubt se văd pericardul și inima. Ce face timusul Datorită structurii sale, timusul este considerat un organ al sistemului limfatic. În timpul dezvoltării fetale este un organ relativ mare, bilobat. După vârsta de un an începe să se atrofieze, iar la sfârșitul pubertății devine un organ foarte mic. Este împărțit în lobuli, care conțin celule de suport și limfocite T, numite așa pentru că limfocitele T primitive sunt modificate în acest organ și se transformă în limfocite T mature (Figura 16.6). Majoritatea limfocitelor T migrează apoi în nodulii limfatici. Structura timusului este diferită de cea a splinei și a nodulilor limfatici, fiind format din numeroși lobuli și elemente limfoide situate în corticala și medulară. Timusul este considerat și o glandă endocrină, deoarece produce și secretă hormoni numiți timozine, care contribuie la maturarea limfocitelor T.

Fig. 16.5 · Biologie Barron's · p. 381
Detaliile splinei: poziția și elementele anatomiceFigura prezintă splina de două ori. În panoul (a), splina apare la locul ei în trunchi, printre organele vecine. În panoul (b), aceeași splină este scoasă din corp și mărită, ca să i se vadă elementele anatomice. Trunchiul este privit din față, așa că partea stângă a corpului apare în dreapta imaginii. De aceea splina este desenată în partea dreaptă a panoului (a). (a) Locul splinei în corp Splina este localizată subdiafragmatic, în porțiunea superioară stângă a cavității abdominale. Sus, diafragma traversează trunchiul ca o boltă. Ea este mușchiul mare, în formă de cupolă, care separă cavitatea toracică de cavitatea abdomino-pelviană. Imediat sub diafragmă se află stomacul, iar splina este organul mic și alungit lipit de marginea lui din dreapta imaginii, parțial ascuns în spatele lui. Stomacul și splina aparțin subdiviziunii abdominale, partea superioară a cavității abdomino-pelviene, alături de intestine, ficat și alte organe. (b) Fețele, marginea și amprentele splinei Forma splinei este determinată de structurile cu care intră în contact. Splina este convexă la contactul cu diafragma și concavă în trei zone: la contactul cu rinichiul stâng, cu stomacul și cu intestinul gros. În panoul (b), ea este întoarsă cu fața concavă spre noi, iar fața convexă, dinspre diafragmă, rămâne în spate. Cele două fețe se întâlnesc la marginile organului, iar figura o numește pe una dintre ele, marginea anterioară, conturul din dreapta sus. Pe fața concavă, figura marchează zonele de contact cu organele vecine, numite amprente. Fiecare poartă numele organului care o formează: Amprenta renală, în partea de sus a feței, la stânga hilului, acolo unde splina atinge rinichiul stâng. Amprenta gastrică, la dreapta hilului, între el și marginea anterioară, la contactul cu stomacul. Amprenta pancreatică, sub hil, lângă locul pe unde ies vasele. Textul manualului nu o pomenește, dar în Figura 13.6 se vede cum pancreasul, situat posterior de stomac, ajunge cu coada lui până la splină, în dreptul hilului. Amprenta intestinală, la capătul de jos al splinei, la contactul cu intestinul gros. Colonul transvers străbate abdomenul în apropierea stomacului și a splinei și se continuă cu colonul descendent la nivelul flexurii splenice. Hilul și vasele splenice Aria în care vasele mari intră și ies din splină se numește hil. În desen, hilul este scobitura alungită din mijlocul feței concave, în care vasele se ramifică într-o rețea deasă. De aici pornesc spre stânga două vase mari, desenate cu capetele secționate: Artera splenică, vasul de sus, prin care sângele intră în splină. Ea pornește din artera celiacă (trunchiul celiac), ramura aortei care dă naștere și arterelor gastrică stângă și hepatică. Vena splenică, vasul de jos, prin care sângele părăsește splina. Ea face parte din sistemul port hepatic, care transportă sângele de la tractul gastrointestinal și splină către ficat (Figura 15.11). Capsula și funcțiile splinei Ca și nodulii limfatici, splina este delimitată de o capsulă de țesut conjunctiv, care se extinde spre interior sub forma unor septe scurte. Diferența este că extensiile capsulei împart nodulul limfatic în lobuli mai mici (Figura 16.3), pe când septele splinei nu o compartimentează în lobuli. Splina este un organ limfoid, pentru că funcțiile sale sunt similare cu cele ale sistemului limfatic și conține celule limfoide. Are câteva funcții importante: Rezervor de limfocite pentru organism: conține limfocite B și T pentru răspunsul imun și este locul celulelor care reglează răspunsul imun. Filtrarea sângelui: monitorizează sângele circulant și este un loc în care celulele înglobează agenți patogeni. Metabolismul globulelor roșii și al fierului: macrofagele splenice fagocitează globulele roșii îmbătrânite sau distruse, iar splina reciclează fierul și îl trimite la ficat. Depozit de sânge: splina servește și drept rezervă de sânge a organismului. De reținut Componentele eritrocitelor îmbătrânite sunt reciclate în splină și în ficat. Legătura dintre cele două organe este chiar fierul, pe care splina îl reciclează și îl trimite la ficat.

Fig. 16.6 · Biologie Barron's · p. 383
Originea sistemului imun: cele două căi ale celulelor limfopoeticeFigura este o schemă citită de sus în jos, în care fiecare rând este o etapă. Etapele sunt scrise pe marginea din stânga (origine, precursor, maturare, celule mature, destinație), așa că celulele de pe același rând se află în aceeași etapă, iar numele fiecărei celule este scris sub ea. Limfocitele sunt desenate ca în Figura 14.5, cu un nucleu mare și un strat subțire de citoplasmă, iar tipul lor se recunoaște după conturul colorat: verde pentru limfocitele T (mai deschis cât timp sunt încă în timus), portocaliu pentru limfocitele B și roz pentru celulele „natural killer”. Originea: măduva osoasă Sistemul imun se dezvoltă în timpul lunii a treia după concepție. În această perioadă a dezvoltării fetale, în măduva osoasă apar celule primitive numite celule stem (hemocitoblaști). În chenarul de sus, celula stem pornește din măduva roșie de la capătul unui os lung: formarea celulelor sanguine are loc în măduva osoasă roșie din osul spongios, de exemplu la capetele femurului, nu în măduva galbenă din interiorul diafizei. Anumite celule stem formează precursorii sistemului imun, numiți celule limfopoetice. Acestea urmează una dintre cele două posibilități de dezvoltare, așa că de aici schema se ramifică în două. Prima cale: prin timus Ramura din stânga intră în chenarul timusului. Anumite celule limfopoetice trec prin timus, unde sunt maturate și formează limfocitele T sau celulele T (inițiala „T” provine de la timus). Săgeata pe care scrie timozină pleacă din timusul desenat în stânga chenarului și arată hormonul pe care acesta îl produce și care contribuie la maturarea limfocitelor T (Figura 16.4). În cursul procesului de maturare, limfocitele achiziționează pe suprafața lor molecule de receptori. Din timus iese limfocitul T matur, de la care pleacă două săgeți spre rândul destinațiilor. Anumite limfocite T mature se întorc în măduva osoasă și participă la reacția imună, însă majoritatea ajung în țesuturile periferice: migrează în circulație și se acumulează în țesuturi limfoide, precum splina, amigdalele și nodulii limfatici, de unde controlează sistemul imun (Figura 16.7). A doua cale: fără timus Ramura din dreapta nu trece prin timus și duce la celelalte două tipuri de celule, formate din alte celule limfopoetice: Limfocitele B. La embrionii de pui ele sunt maturate în bursa lui Fabricius, de unde și numele (inițiala „B” provine de la bursă). Organele umane corespunzătoare bursei lui Fabricius sunt măduva osoasă, ficatul și nodulii limfatici din tractul gastrointestinal. În timpul formării, limfocitele B sintetizează anticorpi și îi poziționează pe suprafața membranelor lor celulare, unde vor funcționa mai târziu ca receptori. Celulele „natural killer”. Atacă microorganisme și celule infectate, dar sunt mai puțin specializate decât limfocitul T citotoxic și par să fie un mecanism primar de apărare al organismului împotriva celulelor tumorale. Limfocitele B migrează și ele în țesuturile periferice, unde se alătură limfocitelor T. Nodulii limfatici și splina, desenați în chenarul țesuturilor periferice, sunt principalele depozite de limfocite T și B. Ce trebuie reținut din schemă Cele două ramuri pornesc din aceeași celulă și se despart doar prin trecerea sau netrecerea prin timus. Limfocitele T controlează sistemul imun, care include și limfocitele B, iar acestea din urmă sintetizează anticorpi.

Fig. 16.7 · Biologie Barron's · p. 386
Activarea limfocitului T și formarea cloneiFigura urmărește un limfocit T din clipa în care își întâlnește antigenul până la clona care rezultă din el. Este o schemă citită de sus în jos, în care fiecare rând este o etapă, iar etapele sunt scrise pe marginea din stânga: recunoaștere, activare, proliferare și rolul clonei. Limfocitele sunt desenate ca în Figura 14.5 și în Figura 16.6, cu un nucleu mare și un strat subțire de citoplasmă în jurul lui. Recunoașterea: potrivirea dintre receptor și antigen Pe primul rând sunt trei limfocite T. Fiecare poartă pe suprafața lui receptori pentru antigen, a căror formă diferă de la un limfocit la altul: pătrată, în V sau rotundă. Deasupra fiecărui limfocit se află același antigen. Antigenele sunt molecule specifice care pot stimula limfocitele B și T, frecvent componente de suprafață ale microorganismelor, de obicei o proteină mare sau un polizaharid. Doar la limfocitul din mijloc forma antigenului intră exact în receptor și se formează complexul receptor-antigen. La celelalte două, receptorul are altă formă, antigenul nu se potrivește, iar sub ele scrie „nu se potrivește”. Aceasta este ideea principală a figurii: în imunitatea mediată celular, antigenele reacționează doar cu acele limfocite T care au receptori antigenici complementari, iar reacția cu alte limfocite T este exclusă. Activarea Sub limfocitul care s-a potrivit se află același limfocit, devenit limfocit T activat: este desenat mai mare și are antigenul încă legat de receptor. Odată activat, se dezvoltă un proces complex, care duce la formarea unei clone de limfocite T citotoxice. Limfokinele eliberate de limfocitele T helper încep acest proces, stimulând multiplicarea rapidă a limfocitelor T citotoxice (Figura 16.8). Proliferarea și clona Din limfocitul activat pleacă o ramificație spre un rând de celule identice. Când limfocitele T sunt activate, ele se multiplică și formează clone, iar procesul se numește proliferare sau multiplicare clonală. Toate celulele de pe acest rând sunt copii ale limfocitului activat inițial și au aceeași formă a receptorului ca el, de aceea acolada de sub ele le adună sub numele de clonă de limfocite T. Rolul clonei Ultimul rând arată ce fac aceste copii. Limfocitele T citotoxice intră în sistemul circulator și caută celule care au antigene străine, așa că ajung la locul infecției și reacționează cu microorganismele. Ele recunosc antigenele CMH și antigenele străine de pe celulele infectate, dar și celulele tumorale, apoi atacă și distrug celula, exercitând un „atac letal” asupra ei. Când cauza activării a fost îndepărtată din organism, clonele limfocitului activat inițial rămân în nodulii limfatici și în alte țesuturi limfoide. Fiindcă nu există doar un limfocit, ci multiple copii ale lui, la o nouă întâlnire cu aceleași molecule antigenice copiile vor reacționa rapid pentru a le îndepărta din organism.

Fig. 16.8 · Biologie Barron's · p. 387
Imunitatea mediată prin anticorpi: de la macrofag la plasmocitFigura urmărește un episod complet de imunitate mediată prin anticorpi, în cinci pași notați de la (a) la (e) și legați prin săgeți. Se citește în zigzag, de sus în jos: (a) sus în stânga, (b) sus în dreapta, (c) la mijloc în stânga, (d) la mijloc în dreapta și (e) jos în stânga. Macrofagul și limfocitul T helper apar de mai multe ori, pentru că participă la mai mulți pași. Limfocitele sunt desenate ca în Figura 14.5, cu un nucleu mare și un strat subțire de citoplasmă. Antigenele virusului sunt punctele închise la culoare, pe care le poți urmări de la virus până la suprafața celulelor. (a) Fagocitoza La locul infecției, un virus cu antigene este ingerat de un macrofag. Macrofagele sunt cele mai importante celule fagocitare, celule de talie mare și formă neregulată. Ele inițiază răspunsul imun prin înglobarea și digerarea microorganismelor în procesul de fagocitoză. Pe lângă moleculele CMH clasa I, care le identifică drept celule proprii organismului, macrofagele au pe suprafață și moleculele CMH clasa II, desenate ca niște mici structuri cu o scobitură, încă libere în acest pas. (b) Prezentarea antigenului Virusul a fost digerat, iar antigenele lui se văd acum în interiorul macrofagului și în scobitura moleculelor CMH de la suprafață, unde fiecare punct este un antigen viral. Macrofagul prezintă antigenele la suprafață, legate de moleculele CMH, și inițiază răspunsul imun. Antigenele microorganismelor fagocitate sunt legate de moleculele CMH clasa II pentru a fi recunoscute de limfocite și a le stimula să producă anticorpi. Macrofagul pleacă apoi spre vasele limfatice și țesutul limfoid. (c) Activarea limfocitului T helper Când macrofagul intră în nodulul limfatic, întâlnește un limfocit T helper (numit de asemenea celulă T4). Cele două celule sunt legate printr-o punte în care antigenul se află între o moleculă CMH a macrofagului și un receptor al limfocitului T. Receptorul limfocitului T are în desen aceeași formă ca moleculele CMH, așa că îl deosebești după celula pe care se află. Antigenele străine și antigenele CMH de pe suprafața macrofagului reacționează cu receptorii de pe suprafața limfocitului T helper. Această reacție activează limfocitul T helper, care va produce și elibera o serie de proteine înalt reactive, numite limfokine. (d) Angajarea limfocitului B Pe măsură ce macrofagul circulă printre diferitele tipuri de limfocite B, în țesutul limfoid, el poate întâlni acel tip de limfocite care prezintă pe suprafață molecule de anticorpi complementare antigenelor sale. În timpul formării lor, limfocitele B sintetizează anticorpi și îi poziționează pe membrană, unde funcționează ca receptori, de aceea receptorul limfocitului B este desenat în formă de Y, ca un anticorp. După aceste molecule în Y recunoști limfocitul B. În pasul (d), cele trei celule formează un lanț: macrofagul este încă legat de limfocitul T helper, iar acesta atinge limfocitul B. Între ultimele două, moleculele CMH clasa II de pe suprafața limfocitului B legate cu antigenul intră în receptorul limfocitului T helper. Legarea antigenului de moleculele de anticorpi, împreună cu intervenția limfocitelor T helper, activează sau „angajează” limfocitul B, care devine limfocit B stimulat cu antigen. (e) Transformarea în plasmocit Ultima săgeată pleacă de la limfocitul B angajat spre un plasmocit. Desenul scurtează aici ce descrie textul: odată angajate, limfocitele B încep să se dividă și dau naștere unor clone celulare programate să producă anticorpi, iar în câteva ore alte semnale biochimice convertesc multe din limfocitele B în plasmocite, un grup de celule care produc activ anticorpi. În jurul plasmocitului se văd anticorpii secretați, cu aceeași formă de Y ca receptorii limfocitului B (Figura 16.9). Moleculele de anticorpi, specifice pentru antigen, sunt eliberate din limfocitele B cu o rată mai mare de 2000 pe secundă. Ce trebuie reținut din schemă Moleculele CMH prezintă antigenele pentru a stimula specific limfocitele T și B în cursul răspunsului imun: în pașii (b), (c) și (d) pe macrofag, iar în pasul (d) și pe limfocitul B. Limfokinele limfocitului T helper stimulează fie limfocitul B, fie limfocitul T, în funcție de natura antigenului care a inițiat procesul, așa că din acest punct sistemul imun se divide în două ramuri. Figura arată ramura dominată de limfocitele B, imunitatea mediată prin anticorpi. Cealaltă ramură, imunitatea mediată celular, este dominată de limfocitele T (Figura 16.7).

Fig. 16.9 (a) · Biologie Barron's · p. 388
Structura moleculei de anticorpFigura arată o singură moleculă de anticorp, mărită, cu cele patru lanțuri componente ale ei. Lanțurile grele sunt desenate cu violet, iar lanțurile ușoare cu verde. Literele de pe lanțuri sunt explicate în legenda de sub desen: V pentru porțiunea variabilă, C pentru porțiunea constantă și S-S pentru punțile disulfurice. Este unitatea din care sunt construite cele cinci clase de anticorpi din Figura 16.9 (b) și molecula care se leagă de microorganisme în Figura 16.9 (c). Forma literei Y Moleculele de anticorpi sunt proteine. Molecula are o zonă în balama, în care lanțurile devin divergente, și de aceea este frecvent descrisă sub forma literei Y: două brațe care se desfac dintr-un picior comun. În desen, balamaua este locul în care fiecare lanț greu se îndoaie, trecând din braț în picior. Cele patru lanțuri Cel mai frecvent anticorp, IgG, este alcătuit din două lanțuri lungi și două lanțuri scurte de aminoacizi (polipeptide): Lanțurile grele (violet) sunt cele două lanțuri lungi, așezate în interior. Ele formează atât brațele, cât și piciorul Y-ului. Lanțurile ușoare (verde) sunt cele două lanțuri scurte, așezate de-a lungul brațelor, pe partea lor exterioară. Punțile disulfurice (S-S) țin cele două lanțuri grele împreună, chiar sub balama. Porțiunea variabilă și porțiunea constantă Fiecare lanț are două feluri de porțiuni, despărțite în desen printr-o liniuță. Porțiunea variabilă (V) ocupă capătul lanțului, la vârful brațelor, iar porțiunea constantă (C) ocupă restul lanțului și tot piciorul Y-ului. Vârfurile celor două brațe, unde se află porțiunile variabile ale lanțului greu și ale celui ușor, sunt locurile de legare a antigenului, desenate cu o mică scobitură. Molecula are deci două locuri de legare a antigenului, câte unul pe fiecare braț. Capătul variabil al moleculei este înalt specific pentru antigenul care a indus producerea sa și, din acest motiv, anticorpul va interacționa doar cu acesta. Sistemul imun are capacitatea de a produce un milion de tipuri diferite de anticorpi, câte unul pentru fiecare antigen diferit posibil: anticorpii din rujeolă vor reacționa numai cu virusul rujeolei, iar cei din varicelă doar cu virusul varicelei.
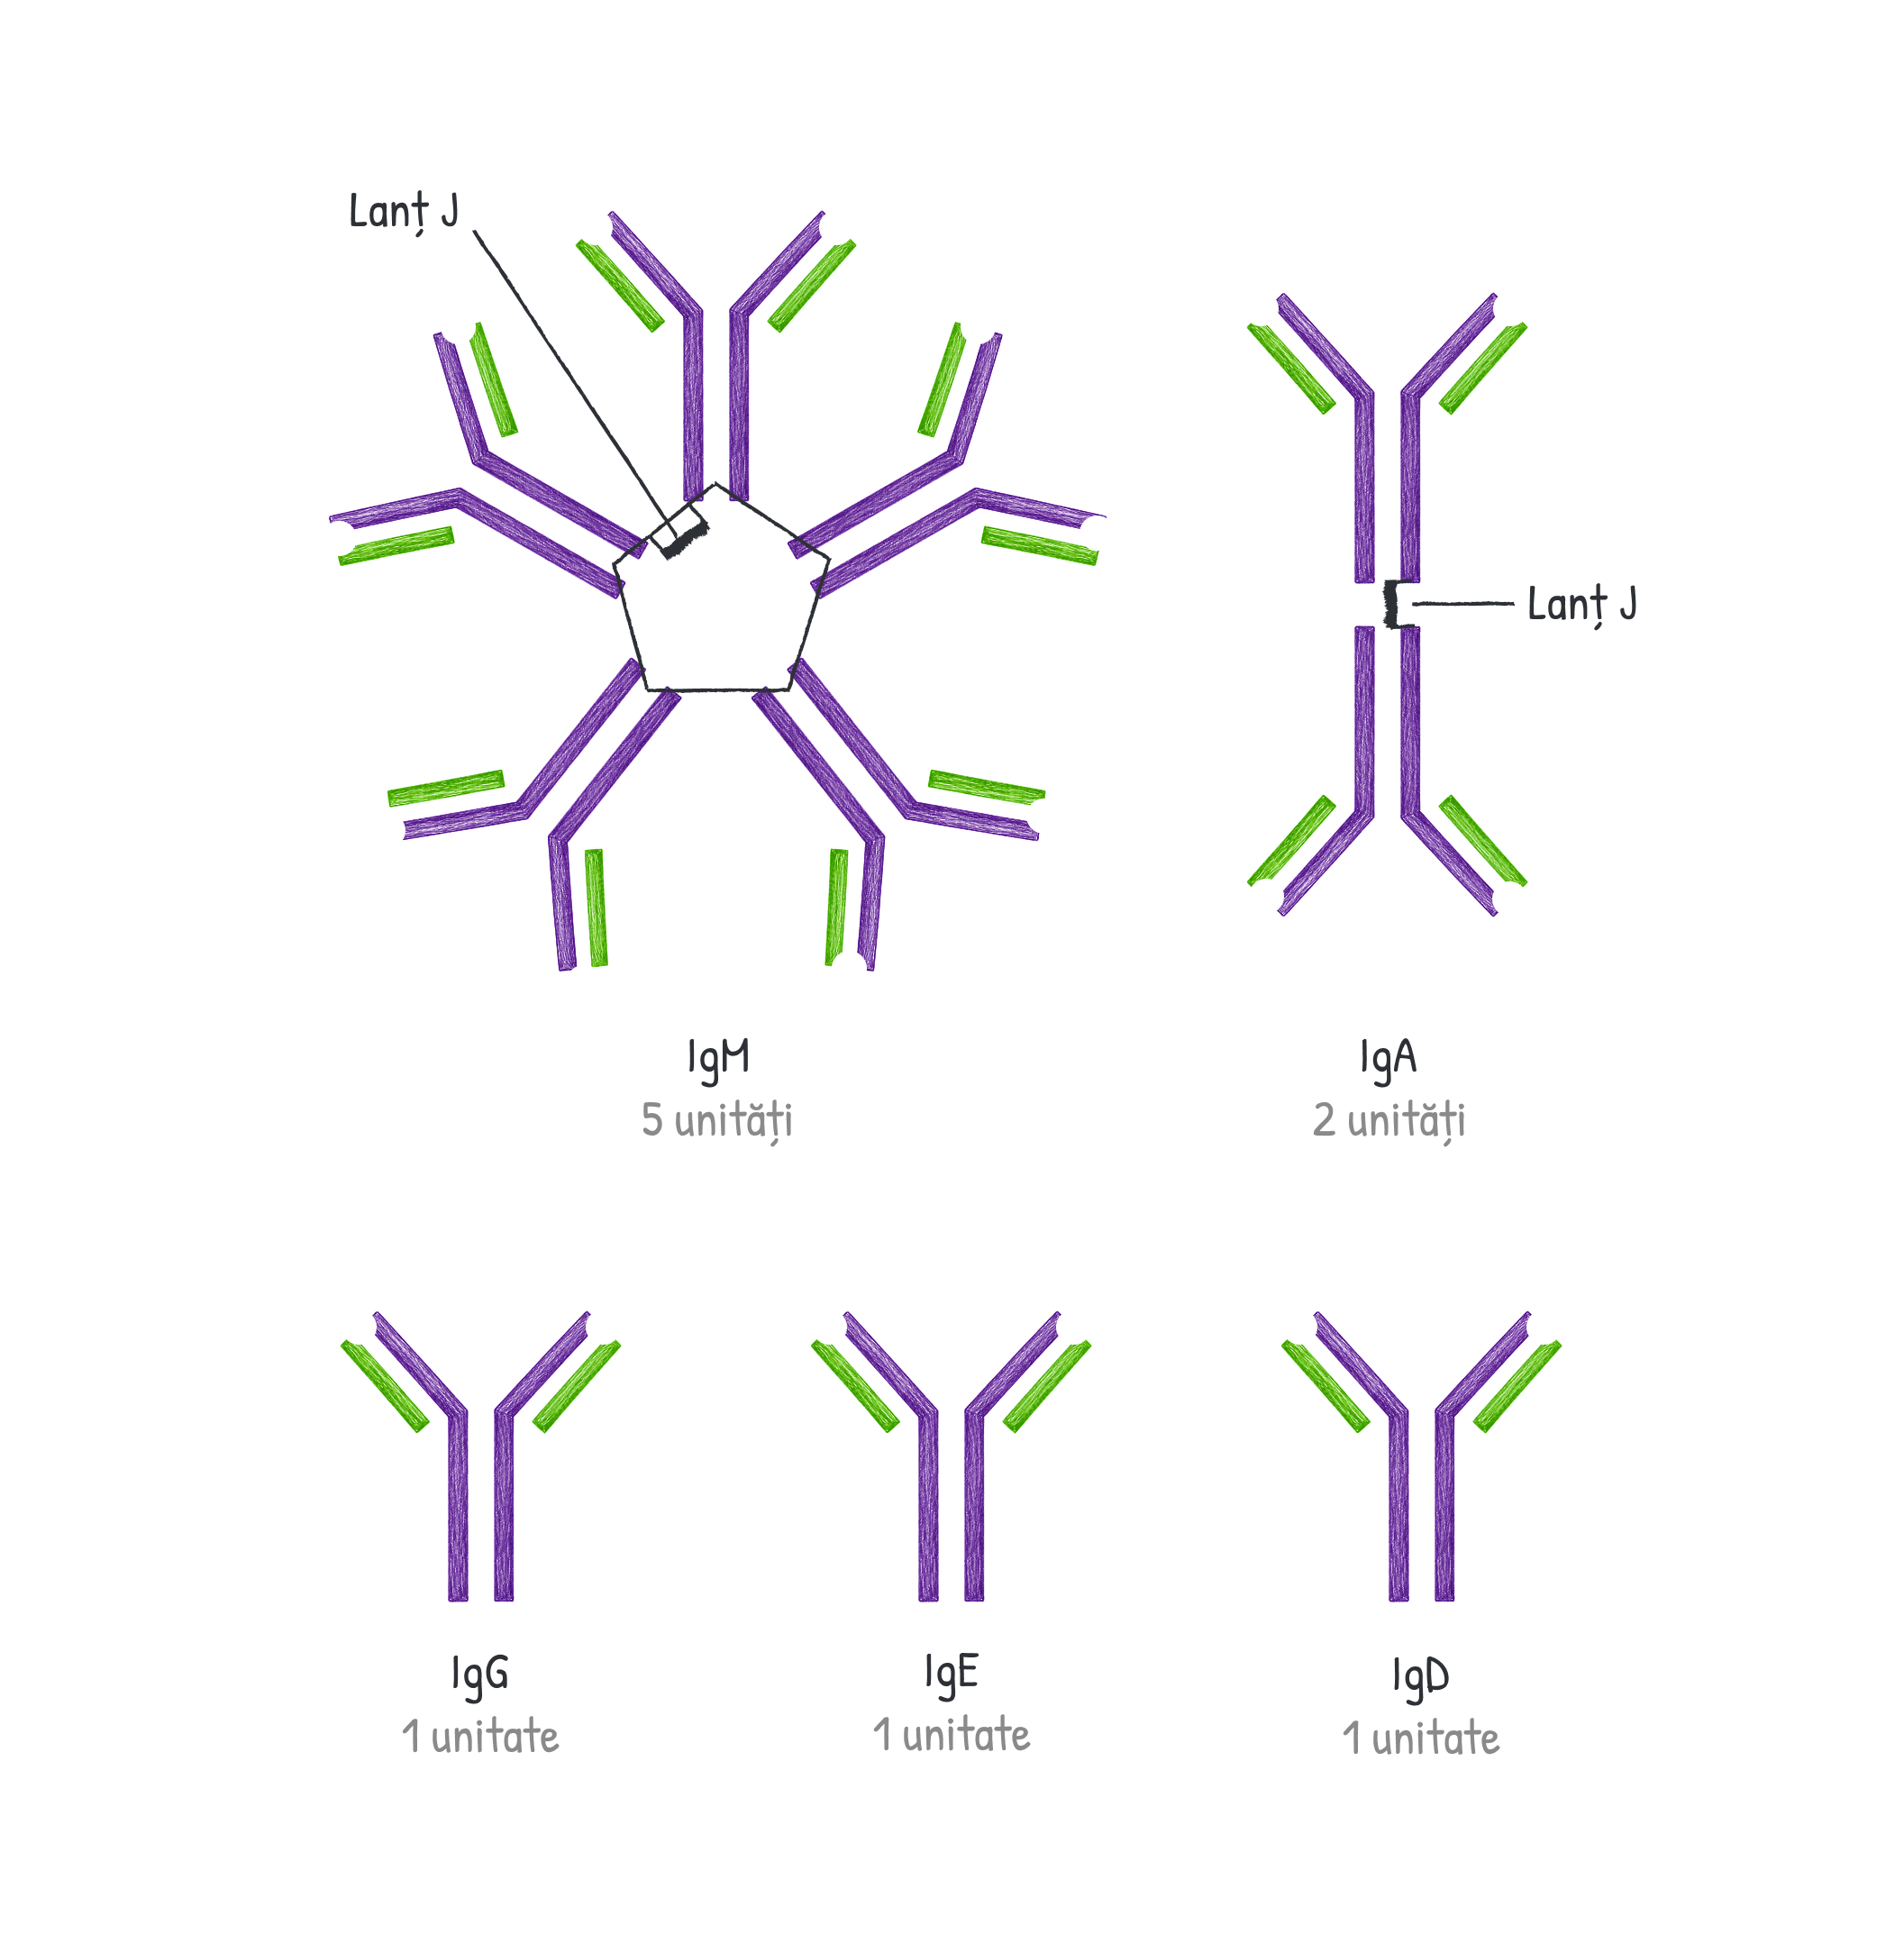
Fig. 16.9 (b) · Biologie Barron's · p. 388
Cele cinci clase de anticorpiFigura arată cele cinci clase de anticorpi, cunoscute și sub numele de imunoglobuline. Toate sunt construite din aceeași unitate în formă de Y, molecula cu patru lanțuri din Figura 16.9 (a): două lanțuri grele, desenate cu violet, și două lanțuri ușoare, desenate cu verde, cu locurile de legare a antigenului la vârful brațelor. Clasele diferă prin numărul de unități, scris sub numele fiecăreia. Pe rândul de sus sunt clasele formate din mai multe unități, IgM și IgA, iar pe rândul de jos cele formate dintr-o singură unitate, IgG, IgE și IgD. Câte unități are fiecare clasă IgM este formată din cinci unități, adică din 20 de lanțuri polipeptidice. Unitățile sunt desenate ca o rozetă, în jurul unui pentagon, cu picioarele spre centru. IgA este formată din două unități, adică din opt lanțuri polipeptidice. Cele două unități sunt așezate picior la picior. IgG, IgE și IgD sunt formate dintr-o singură unitate, adică din patru lanțuri de aminoacizi. La IgG, acestea sunt două lanțuri lungi și două lanțuri scurte. La IgM și la IgA, singurele clase făcute din mai multe unități, desenul marchează în punctul de unire un lanț J. Clasele, una câte una IgM reprezintă 5-10% din anticorpii serului și se găsește în sânge și limfă. Este primul anticorp ce apare în circulație după ce a avut loc infecția, este responsabil pentru prima interacțiune cu antigenele și este componentul principal al răspunsului primar. Este implicată și ea în rezistența la boală. IgA reprezintă 10% din anticorpii serului și este singura clasă care se găsește în secreții și cavități. Asigură protecția cavităților: interacționează cu microorganismele de pe diferite suprafețe, de-a lungul tracturilor respirator, gastrointestinal și al altor tracturi care comunică cu mediul extern. IgG este cel mai frecvent anticorp: 80% din anticorpii serului, în sânge și limfă. Este singura clasă care traversează placenta și componentul principal al răspunsului secundar. Fiind cel mai comun, este strâns asociat cu rezistența specifică la boală, rezistență care se dezvoltă după ce sistemul imun a fost activat. IgE reprezintă sub 1% din anticorpii serului, se găsește în sânge și limfă și este produsă în timpul reacțiilor alergice. În aceste reacții se fixează pe suprafața bazofilelor și a mastocitelor și facilitează eliberarea histaminei, a serotoninei și a altor substanțe fiziologic active. IgD reprezintă sub 1% din anticorpii serului, se găsește în sânge și limfă și funcționează ca situs receptor pe limfocitele B, pentru stimularea activării acestora. Unitățile și greutatea moleculară Greutatea moleculară crește cu numărul de unități: IgM, cu cinci unități, are 900.000 de daltoni, IgA, cu două unități, are 400.000, iar clasele cu o singură unitate au între 150.000 (IgG) și 200.000 (IgE).
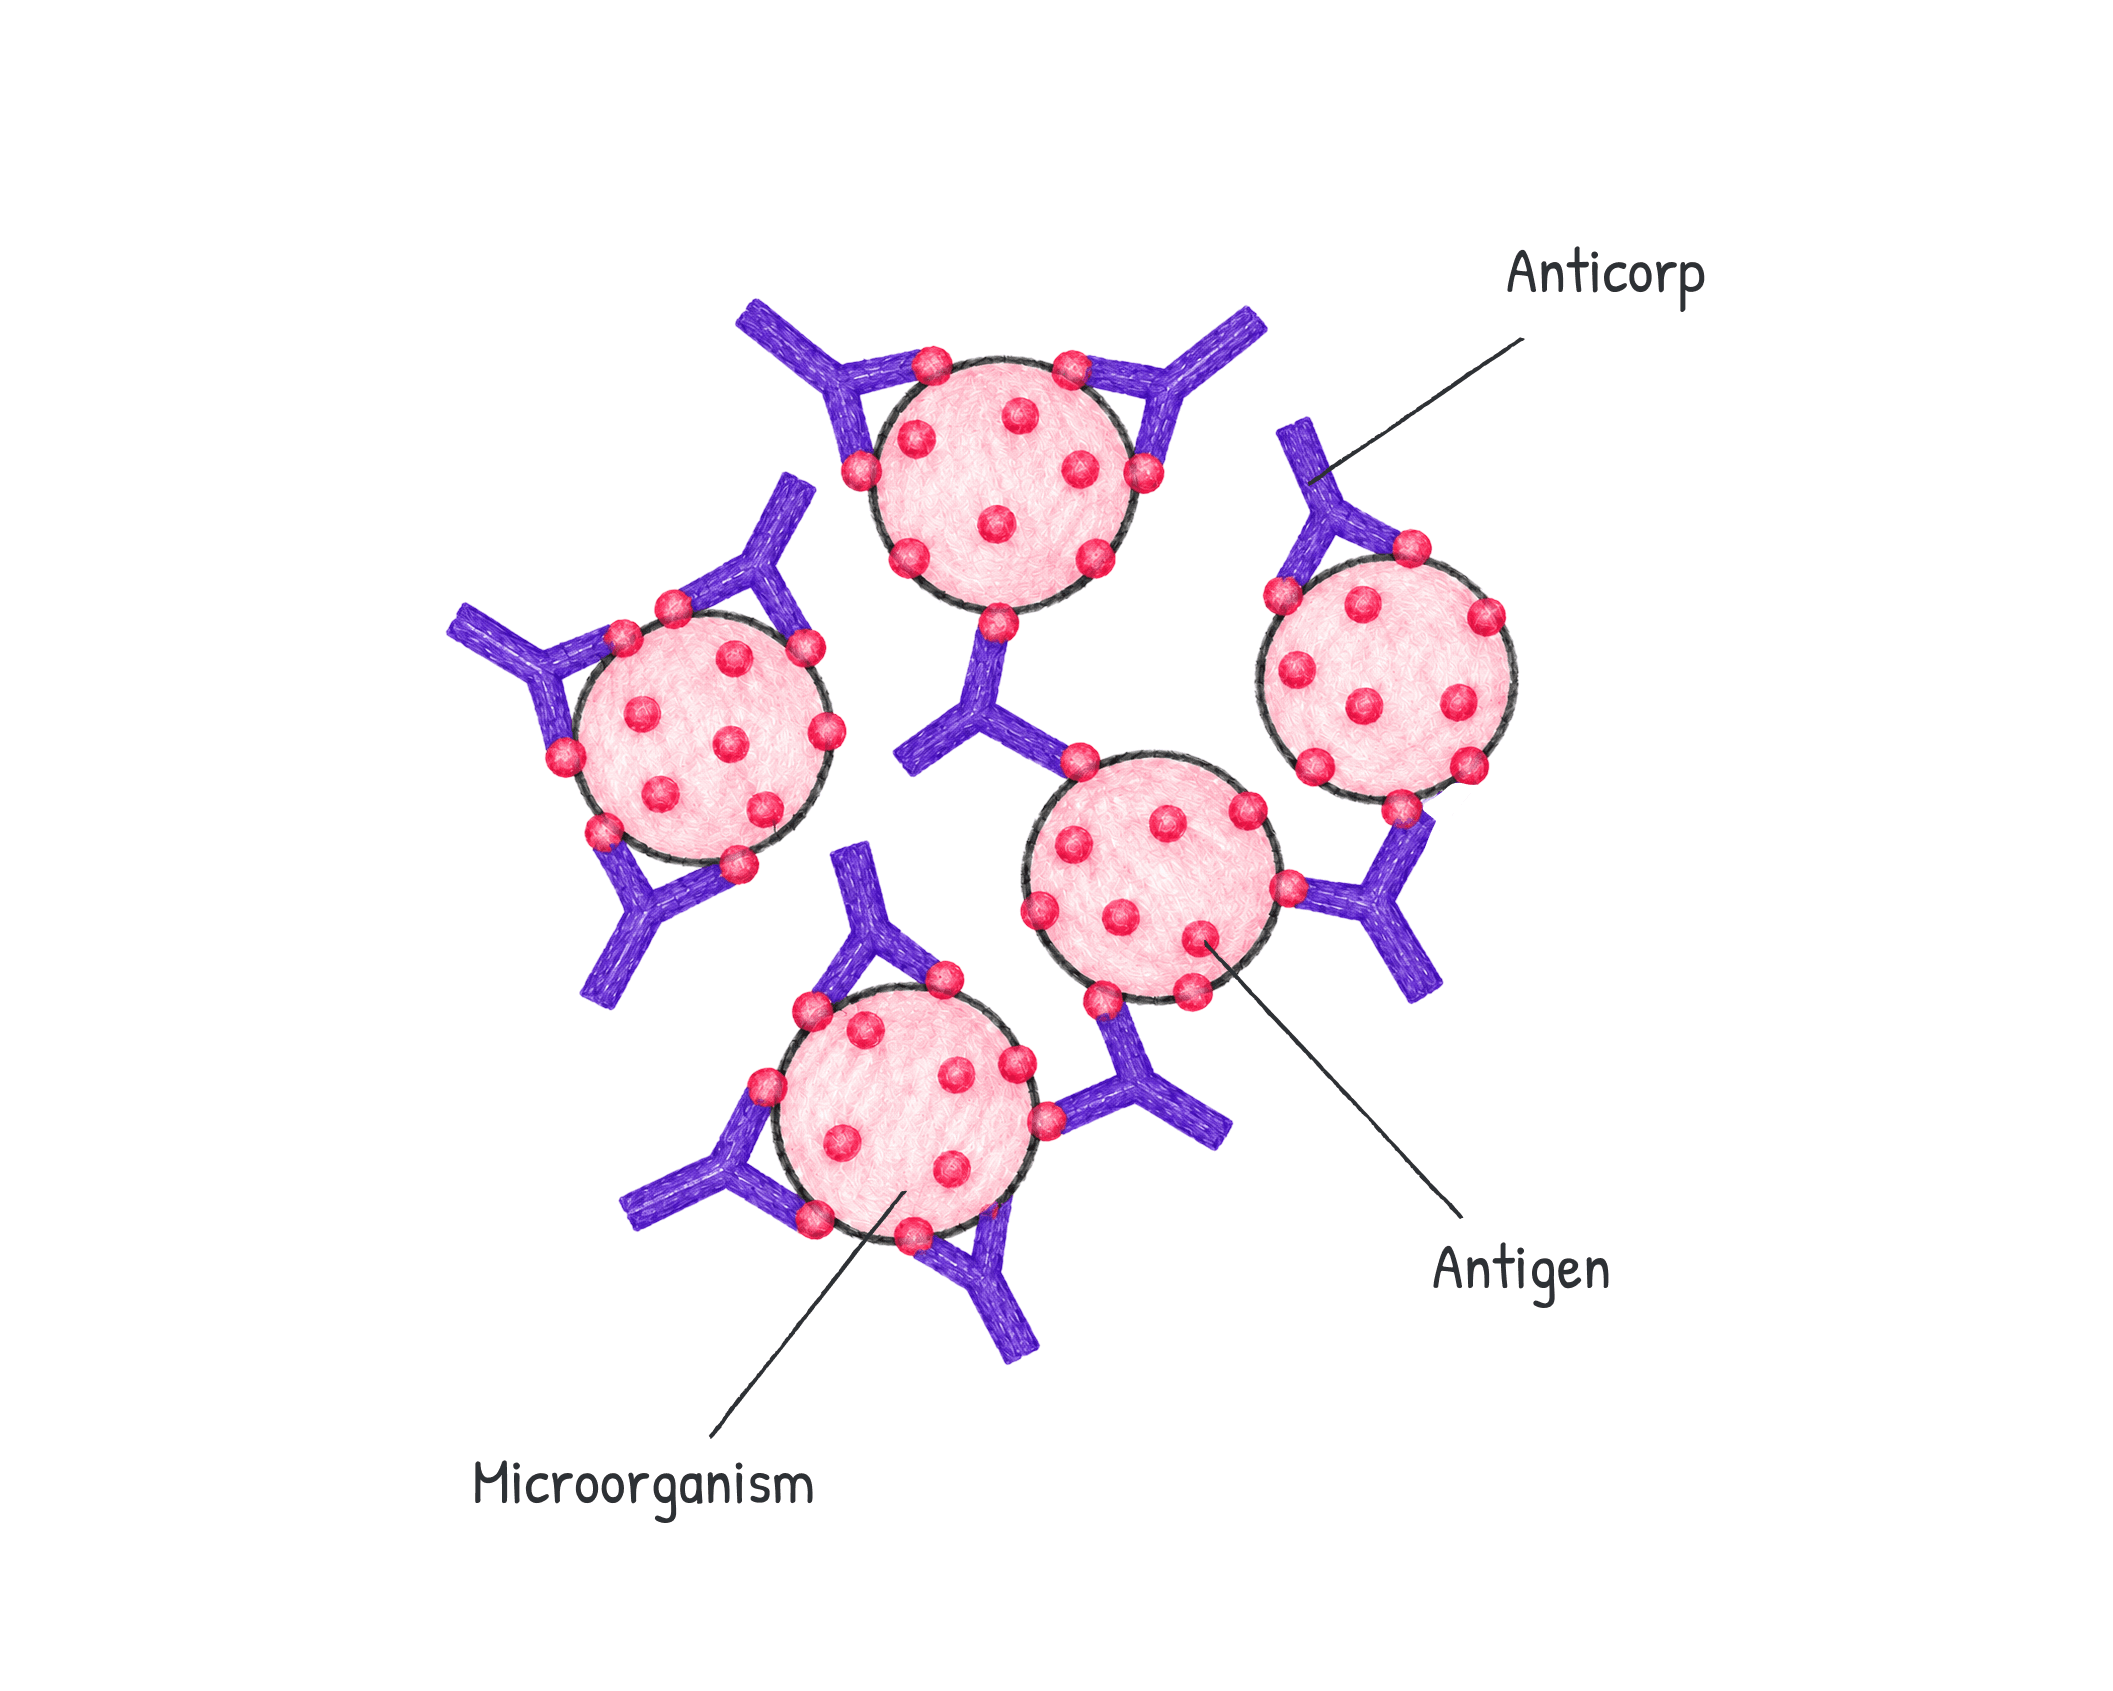
Fig. 16.9 (c) · Biologie Barron's · p. 388
Reacția antigen-anticorpFigura arată unul dintre mecanismele prin care anticorpii neutralizează microorganismele. Corpurile rotunde, roz, sunt microorganismele, iar punctele roșii de pe ele sunt antigenele de pe suprafața lor. Moleculele violet în formă de Y sunt anticorpii: aceeași moleculă ca în Figura 16.9 (a), desenată simplificat, doar ca un Y. Anticorpii se prind de antigene Anticorpii circulă și întâlnesc microorganismele ale căror antigene au stimulat producția lor; ei sunt produși și secretați de plasmocite, ca în Figura 16.8. Apoi se combină chimic cu moleculele de antigen. În desen, fiecare anticorp atinge antigenele cu vârfurile celor două brațe, unde se află locurile de legare a antigenului, iar piciorul lui rămâne liber. Capătul variabil al fiecărui anticorp este înalt specific pentru antigenul care a indus producerea sa, așa că anticorpul interacționează doar cu acel antigen. Legate ca într-o plasă Unii anticorpi se prind cu ambele brațe de același microorganism. Alții se prind cu un braț de un microorganism și cu celălalt de un microorganism vecin, legându-le între ele. În desen, trei anticorpi fac astfel de punți, toate către microorganismul pe care este indicat antigenul. Astfel, anticorpii leagă bacteriile ca într-o plasă și favorizează fagocitoza: legate între ele, microorganismele devin ușor de fagocitat. Alte mecanisme Legarea în plasă nu este singurul mod în care anticorpii neutralizează microorganismele. Unii anticorpi se leagă la suprafața virusurilor și împiedică penetrarea virală în celule, prin acoperirea receptorilor specifici. Alții formează punți între microorganisme și macrofage pentru a facilita fagocitoza, iar alții inițiază o serie de reacții care distrug membranele microbiene. Reacția antigen-anticorp are de obicei ca finalitate distrugerea microorganismului și recuperarea după boală: anticorpii leagă antigenele pentru a le îndepărta din organism.
- 17Sistemul respiratorPaginile 401 - 414

Fig. 17.1 · Biologie Barron's · p. 403
Organele sistemului respirator și detaliul alveolelorFigura arată organele și structurile sistemului respirator uman așa cum sunt poziționate în corp, de la nas până la plămânii din cavitatea toracică. Desenul mare îmbină două perspective. Capul și gâtul sunt desenate din profil și în secțiune, cu fața spre dreapta, ca să se vadă drumul aerului. Toracele este văzut din față, așa că partea dreaptă a corpului, cu plămânul și bronhia dreaptă, apare în stânga desenului. Pe marginile lui, ovalele mici sunt coastele secționate. În plămânul drept, un cerc mic încadrează un ciorchine de alveole de la capătul unei bronhiole, iar cercul mare din dreapta mărește o secțiune prin plămân, ca să arate detaliile mai multor alveole. Citește desenul de sus în jos: aceasta este chiar ordinea în care aerul străbate sistemul respirator. Căile aeriene, în ordine descendentă Tuburile ramificate care duc aerul în și din alveole formează căile aeriene, porțiunea de conducere a sistemului respirator: Cavitățile nazale, porțiunile interne ale nasului, căptușite cu mucoasă. Nasul este calea normală de intrare a aerului. Faringele, cale de trecere comună pentru sistemul respirator și pentru cel digestiv. Figura marchează două dintre regiunile lui: nazofaringele, imediat posterior de cavitățile nazale și deasupra palatului moale, și orofaringele, în partea posterioară a cavității orale. A treia regiune, laringofaringele, aflată posterior de laringe, nu este marcată aici. Laringele, structura cartilaginoasă ce unește faringele cu traheea și adăpostește corzile vocale. Traheea, tubul semirigid de pe linia mediană a gâtului, cu inelele cartilaginoase în forma literei „C” care îl mențin deschis. Bronhia dreaptă și bronhia stângă, cele două bronhii primare în care se ramifică traheea. Cea dreaptă este mai largă și mai verticală. Bronhiolele, ramurile tot mai fine ale bronhiilor din ambii plămâni, fără cartilaj în perete. Împreună cu traheea și bronhiile, ele formează arborele bronșic, ale cărui ultime ramuri se deschid în alveole. Gura, palatul și răscrucea din faringe Aerul poate intra și pe gură, pentru că aceasta se întâlnește cu cavitățile nazale în faringe. Gura este despărțită de cavitatea nazală de deasupra prin palat, structura care formează bolta cavității orale. Partea lui anterioară, dură, poartă aici numele de bolta palatină, iar partea posterioară, moale, este palatul moale. Pe planșeul gurii se află limba, un mușchi striat acoperit de mucoasă. Împreună cu buzele, obrajii și mușchii gâtului, ea transformă în cuvinte sunetele produse de corzile vocale. Aerul și alimentele trec prin același faringe, iar la capătul lui inferior drumurile se despart: esofagul se continuă cu stomacul, iar laringele cu traheea. Epiglota, pliul în formă de frunză de la intrarea în laringe, se închide ca un „capac” peste căile respiratorii atunci când alimentele sau lichidele trec în esofag. Plămânii și învelișul lor Plămânii sunt organe pereche, de formă conică, ce ocupă cea mai mare parte a cavității toracice și au, datorită alveolelor, o textură elastică și spongioasă. Spațiul dintre ei, nedenumit aici, este mediastinul, zona mediană în care se află inima, timusul, o parte a esofagului și mai multe vase mari de sânge. Fiecare plămân este înconjurat de membrana pleurală, sau pleura, un înveliș dublu stratificat desenat ca un contur dublu. Foița internă, pleura viscerală, acoperă suprafața plămânului, iar cea externă, pleura parietală, căptușește suprafața interioară a cavității toracice. Între ele se află cavitatea pleurală, al cărei lichid ține foițele într-un contact strâns și le permite să alunece ușor una peste cealaltă. Sub plămâni se află diafragma, mușchiul de mari dimensiuni, cu formă de cupolă, care separă cavitatea toracică de cavitatea abdomino-pelviană. În inspirație se contractă și coboară, mărind volumul toracelui, iar în expirație se relaxează. Detaliul mărit: alveolele și vasele lor Alveolele sunt săculeți formați din membrane subțiri, care oferă o suprafață mare de schimb: la un adult, plămânul are aproximativ 300 de milioane de alveole. În stânga cercului, alveolele sunt desenate secționate, ca să li se vadă interiorul. În dreapta, ele sunt acoperite de rețeaua capilară extinsă a circulației pulmonare, patul capilar pulmonar. Tubul inelat dintre cele două vase, nedenumit aici, este o bronhiolă care se deschide în alveole. Săgețile arată sensul în care circulă sângele. Săgeata din dreapta, de lângă arteriolele pulmonare, coboară spre alveole: aceste ramuri ale arterelor pulmonare aduc sânge bogat în dioxid de carbon și sărac în oxigen. Săgeata din stânga, de lângă venulele pulmonare, urcă dinspre alveole: sângele pleacă spre venele pulmonare și, mai departe, spre partea stângă a inimii, cu o concentrație scăzută în dioxid de carbon și crescută în oxigen. Schimbul de gaze Prin membranele foarte subțiri ale alveolelor, gazele trec prin difuziune: dioxidul de carbon din sânge este schimbat cu oxigenul din alveole. Plămânii, arborele bronșic și un grup de alveole cu vasele lui sunt desenate mai în detaliu în Figura 17.5, iar schimbul și transportul gazelor respiratorii sunt urmărite în Figura 17.9.

Fig. 17.2 · Biologie Barron's · p. 404
Structurile nasului uman după îndepărtarea septului nazalFigura arată nasul și regiunea din jurul lui în secțiune sagitală, după ce septul nazal a fost îndepărtat. Septul împarte median cavitatea nazală într-o cameră dreaptă și una stângă, iar din el face parte și vomerul, un os vertical. Fără sept, se vede peretele lateral al cavității nazale, cu reliefurile printre care trece aerul. Fața este orientată spre dreapta desenului, unde se află nara, iar spre stânga se văd baza craniului, faringele și primele vertebre ale gâtului. Cornetele și căile nazale Aerul intră prin narina externă (nara) în vestibul, spațiul de la intrarea în cavitatea nazală, apoi trece printre cornete. Trei extensii osoase, cornetele nazale superioare, mijlocii și inferioare, subdivizează cavitatea în căi aeriene. Sub fiecare cornet rămâne câte un meat. Manualul definește meatul ca pe un pasaj tubular printr-un os și dă ca exemplu chiar meatul mijlociu al cavității nazale. Cornetul superior este cel mai sus așezat, cu meatul superior dedesubt. Cornetul mijlociu aparține osului etmoid: Figura 7.4 îl numește cornetul nazal mijlociu al osului etmoid. Sub el trece meatul mijlociu. Cornetul inferior este unul dintre oasele feței, o lamă osoasă de pe peretele lateral al cavității. Sub el, deasupra bolții palatine, se află meatul inferior. Sinusurile În cavitățile nazale se deschid sinusurile, spații goale din oasele craniului care se extind spre osul frontal, sfenoid, etmoid și maxilar. Mucoasa lor este în continuitate cu mucoasa cavității nazale. Secțiunea surprinde două dintre ele: sinusul frontal, în osul frontal, deasupra cavității nazale, și sinusul sfenoidal, în osul sfenoidal, înapoia cavității nazale și sub șaua turcească. Sinusurile reduc greutatea craniului, servesc drept camere de rezonanță și sunt spații de condiționare a aerului. Cum este pregătit aerul Toate aceste reliefuri sunt căptușite cu mucoasă. În cornete și în sinusuri aerul este încălzit și încetinit, iar încetinirea permite particulelor să precipite și să dea naștere senzațiilor olfactive. Mucoasa nazală are trei roluri: Încălzirea: vasele ei de sânge încălzesc aerul rece. Umidificarea: mucusul pe care îl secretă umezește aerul uscat. Filtrarea: același mucus captează particulele fine de praf și microorganismele, iar celulele ciliate îl transportă apoi în faringe, unde este înghițit. Pe peretele superior al cavității, o parte a mucoasei formează regiunea olfactivă. Celulele ei detectează diverse tipuri de molecule și trimit impulsuri spre encefal prin nervii olfactivi. Reperele osoase Oasele din jurul cavității nazale sunt descrise în capitolul despre sistemul osos, iar Figura 7.2 arată, în panoul (b), craniul secționat la fel, doar cu oasele. Osul frontal formează fruntea și porțiunea anterioară a calotei craniene. În el se află sinusurile frontale. Osul sfenoidal, în formă de fluture, formează partea anterioară a bazei interne a cutiei craniene și adăpostește sinusul sfenoidal. Șaua turcească este depresiunea în formă de șa a osului sfenoid, în care este așezată glanda hipofiză. Atlasul, prima vertebră cervicală, susține capul și contribuie la mișcările lui. Fațetele lui se articulează cu condilii occipitali ai cutiei craniene. Axisul, a doua vertebră cervicală, are o apofiză odontoidă (dintele) care se orientează în sus și pătrunde în gaura vertebrală a atlasului. Rotațiile capului au la bază această articulație. Structurile vecine Sub cavitatea nazală se află bolta palatină, care o desparte de cavitatea orală. În Figura 17.3 aceeași structură se numește palatul dur. Porțiunea ei anterioară este formată din oasele maxilare, iar cea posterioară din oasele palatine, care participă și la formarea planșeului cavității nazale. Spre faringe, bolta se continuă cu palatul moale. Înapoia cavității nazale și deasupra vălului palatin se află nazofaringele. În pereții lui laterali se deschid trompele lui Eustachio, care pornesc de la urechea medie și egalizează presiunea aerului între nazofaringe și urechea medie. Figura arată o astfel de deschidere. Microorganismele care pătrund în trompă din nazofaringe cauzează adesea infecțiile urechii medii. Mai jos, pe partea laterală a faringelui, din spatele gurii, se află amigdala palatină, o masă ovală de țesut limfatic. Funcția ei este similară cu cea a amigdalei faringiene, care protejează sistemul respirator producând limfocite. Inflamația amigdalelor palatine se numește amigdalită. Unde ajunge aerul Din cavitatea nazală, aerul trece în faringe, locul în care cavitățile nazale se întâlnesc cu gura. Posterior de cavitatea nazală se află nazofaringele, posterior de cavitatea orală orofaringele, iar inferior orofaringelui și posterior laringelui laringofaringele. Toate trei sunt desenate în Figura 17.3.

Fig. 17.3 · Biologie Barron's · p. 405
Secțiune sagitală prin cap și gât: nasul, faringele și laringeleFigura este o secțiune sagitală la nivelul capului și gâtului, adică o tăietură după un plan vertical care împarte corpul într-o parte dreaptă și una stângă. Privim deci capul din profil, cu fața spre dreapta, și vedem organele tractului respirator din această regiune în raport cu organele din jurul lor. Urmărește desenul din dreapta sus spre stânga jos: aerul intră prin nas, trece prin fosa nazală, coboară prin cele trei regiuni ale faringelui și ajunge în laringe, apoi în trahee. Nasul și palatul Nasul reprezintă calea normală de intrare a aerului în sistemul respirator. Spațiul din interiorul lui, fosa nazală, este căptușit cu o mucoasă care încălzește, umidifică și filtrează aerul. În spate, acolo unde fosa nazală se termină și începe faringele, desenul marchează coanele, deschiderile prin care aerul trece în nazofaringe. Cornetele și sinusurile din interiorul nasului sunt prezentate în Figura 17.2. Sub fosa nazală se află palatul, structura care formează bolta cavității orale. Partea lui anterioară, dură, este palatul dur, iar cea posterioară, moale, este palatul moale, care atârnă spre faringe. Dedesubt se întinde cavitatea orală, ocupată în mare parte de limbă. Aerul poate intra și pe gură, pentru că în partea posterioară a cavității orale, adică în faringe, gura se întâlnește cu cavitățile nazale. Cele trei regiuni ale faringelui Faringele, cunoscut și sub denumirea de gâtlej, se extinde de la nivelul cavităților nazale până la nivelul laringelui și este o cale de trecere comună pentru sistemul respirator și pentru cel digestiv. Legenda ne cere să observăm cele trei regiuni ale lui, așezate una sub alta: Nazofaringele, aflat imediat posterior de cavitățile nazale și deasupra vălului palatin (pe desen, deasupra palatului moale). Orofaringele, situat inferior de nazofaringe, în partea posterioară a cavității orale. Aici se întâlnesc căile digestive și căile respiratorii. Laringofaringele, care urmează inferior orofaringelui și se află posterior față de laringe. Amigdalele și trompa lui Eustachio Pe peretele posterior al nazofaringelui, în regiunea medială, se află amigdala faringiană, o masă de țesut limfatic. Ea protejează sistemul respirator prin producerea de limfocite adecvate, care induc imunitate față de agenții infecțioși captați din aer. Când este tumefiată, poartă denumirea de vegetații adenoide, care pot împiedica trecerea aerului. Pe partea laterală a faringelui, din spatele gurii, se vede amigdala palatină, cu o funcție similară celei a amigdalei faringiene. Inflamația amigdalelor palatine se numește amigdalită. Cele trei amigdale, faringiană, palatină și linguală, apar împreună în Figura 16.4. În peretele lateral al nazofaringelui se deschide orificiul trompei lui Eustachio. Trompa pornește de la urechea medie și egalizează presiunea aerului între nazofaringe și urechea medie. Microorganismele care pătrund în ea din nazofaringe sunt, de multe ori, cauza infecțiilor urechii medii. Laringele și corzile vocale Laringele este structura cartilaginoasă ce unește faringele și traheea la nivelul vertebrelor cervicale. Este o cale de trecere pentru aer și adăpostește corzile vocale. Pe secțiune se recunosc: Epiglota, un pliu ca un „capac”, în formă de frunză, situat la intrarea în laringe. Ea închide căile respiratorii atunci când alimentele sau lichidele trec în esofag. Pliul ventricular (coarda vocală falsă) și, imediat sub el, coarda vocală, cele două seturi de falduri (cute) membranoase groase formate din pereții laterali ai laringelui. Când aerul este expirat din plămâni, corzile vocale vibrează și produc sunete. Cartilajul tiroid, cel mai mare cartilaj al laringelui, cunoscut și sub numele de „mărul lui Adam”. Pe desen formează peretele anterior al laringelui, spre fața gâtului. Cartilajul cricoid, care seamănă cu un inel cu pecete și leagă laringele de trahee. Pe desen se află în peretele posterior al laringelui, sub nivelul corzilor vocale. Deasupra laringelui, la baza limbii, este desenat osul hioid, un os al scheletului axial. Cartilajele și corzile vocale sunt prezentate mai în detaliu în Figura 17.4. Cele două tuburi de la capătul faringelui La capătul său distal, faringele se ramifică în două tuburi: esofagul, care se continuă cu stomacul, și laringele, care se continuă cu traheea. Legenda atrage atenția asupra poziției lor: esofagul, un tub muscular și distensibil, este posterior față de trahee. Este chiar exemplul pe care manualul îl dă pentru termenul „posterior” în Tabelul 1.2. Traheea, un tub semirigid, este menținută deschisă de inele cartilaginoase în forma literei „C”. În fața porțiunii ei superioare, imediat sub laringe, se vede glanda tiroidă, situată în țesuturile moi ale gâtului.

Fig. 17.4 · Biologie Barron's · p. 407
Laringele, corzile vocale și traheeaFigura strânge în trei panouri tot ce trebuie știut despre laringe și despre tubul care îi urmează. Panoul din stânga privește laringele din față și arată cartilajele lui. Panoul din mijloc îl taie în două pe linia mediană și îl privește din partea dreaptă, ca să se vadă ce se află în interior. Panoul din dreapta îl arată împreună cu traheea și cu cele două bronhii în care aceasta se ramifică, fiecare intrând în câte un plămân. Panoul din stânga: vederea anterioară a laringelui Laringele este compus din țesut conjunctiv care conține 11 structuri cartilaginoase aranjate în mod similar unei cutii. Din față se văd cele mai mari dintre ele. Cartilajul tiroid, cunoscut și sub numele de „mărul lui Adam”, este cel mai mare, este vizibil în partea ventrală a gâtului și este mai pronunțat la bărbați decât la femei. Sub el, cartilajul cricoid seamănă cu un inel cu pecete și leagă laringele și traheea. Deasupra tuturor este desenat osul hioid. Panoul din mijloc: secțiunea sagitală și interiorul laringelui Secțiunea arată aceleași repere din profil, osul hioid și cartilajul tiroid, și, în plus, ce se află în interior: Epiglota, al treilea cartilaj important, un pliu ca un „capac” în formă de frunză situat la intrarea în laringe. Forma aceasta îi permite să se închidă peste laringe în timpul deglutiției, adică să închidă căile respiratorii atunci când alimentele sau lichidele trec în esofag. Deschiderea către laringe se numește glotă. Corzile vocale, cele două seturi de falduri (cute) membranoase groase care se formează din pereții laterali ai laringelui. În desen se văd una peste alta, coarda vocală falsă deasupra și coarda vocală adevărată dedesubt, ca pliuri de țesut din interiorul laringelui. Când aerul este expirat din plămâni, corzile vocale vibrează și produc sunete, transformate apoi în cuvinte de către mușchii gâtului, buze, limbă și obraji. Lungimea corzilor vocale determină tonalitatea, iar femeile și copiii, care le au mai scurte, au voci cu o tonalitate mai ridicată. Panoul din dreapta: traheea și bronhiile Laringele se continuă cu un tub semirigid numit trahee, lung de aproximativ 10-12 centimetri și situat la nivelul liniei mediane a gâtului. Inelele desenate pe toată lungimea lui sunt inelele cartilaginoase în forma literei „C”, așezate unul peste celălalt și deschise în porțiunea posterioară, care o susțin și o mențin deschisă. Zona dintre cartilajele adiacente și cea dintre capetele inelelor cartilajelor conține țesut conjunctiv și țesut muscular neted. La capătul de jos, traheea se ramifică în două bronhii primare, care au aceeași structură ca traheea. Fiecare pătrunde în plămânul de pe partea sa și se divide acolo în ramuri din ce în ce mai mici. Panoul fiind o vedere din față, bronhia dreaptă este cea desenată în stânga imaginii. Ea este mai largă și are o poziție mai verticală comparativ cu bronhia stângă. Ce urmează Ramificațiile traheei, ale bronhiilor și ale bronhiolelor formează în plămân un sistem de căi de transport ramificate, numite arbore bronșic. Începutul lui se vede chiar în panoul din dreapta, în interiorul celor doi plămâni, iar plămânii și alveolele sunt desenate în detaliu în Figura 17.5.

Fig. 17.5 · Biologie Barron's · p. 408
Detalii ale plămânilor și ale alveolelorFigura prezintă plămânii la trei scări, de la organul întreg până la un singur grup de alveole, locul în care aerul și sângele fac schimb de gaze. Panoul (a), sus, arată cei doi plămâni cu cei cinci lobi ai lor și arborele bronșic, care se extinde în toate ariile pulmonare, dar este desenat doar în plămânul drept. Acolo, ramurile lui se termină cu mici ciorchini de alveole. Jos, în stânga, panoul (b) este o imagine mărită a porțiunii terminale a arborelui bronșic. În dreapta lui, panoul (c) arată tot un grup de alveole, de data aceasta învelit de vasele de sânge. Locul plămânilor în cavitatea toracică, printre celelalte organe ale sistemului respirator, îl găsești în Figura 17.1. (a) Plămânii și lobii lor Plămânii sunt organe pereche, de formă conică, ce ocupă cea mai mare parte a cavității toracice. Fiecare este împărțit în lobi, iar liniile care despart lobii în desen sunt fisurile dintre lobi. În ele pătrunde pleura viscerală, stratul intern al membranei dublu stratificate care învelește fiecare plămân. Plămânul drept are trei lobi: lobul superior drept, lobul median drept și lobul inferior drept. Din lobul inferior, desenul arată doar o porțiune mică, la baza plămânului. Plămânul stâng are numai doi lobi: lobul superior stâng și lobul inferior stâng. La rândul său, fiecare lob se împarte în lobuli mai mici, iar fiecare lobul este deservit de o bronhiolă. Traheea și arborele bronșic Sus, pe mijlocul panoului (a), se află traheea, tubul semirigid care leagă laringele de arborele bronșic. O mențin deschisă inelele cartilaginoase în forma literei „C”, așezate unul peste altul. Traheea se ramifică în două bronhii principale (primare), cu aceeași structură ca a ei, care pătrund în plămâni. Bronhia dreaptă este mai largă și mai verticală decât cea stângă, lucru care se vede bine în Figura 17.4. În plămâni, bronhiile se divid în ramuri din ce în ce mai mici, dintre care figura numește una bronhie segmentară. Când diametrul lor scade la aproximativ un milimetru, în perete nu mai există cartilaj, iar ramurile devin bronhiole. Ramificațiile traheei, ale bronhiilor și ale bronhiolelor formează împreună arborele bronșic, căile care conduc aerul de la trahee la alveole și care sunt tapetate de o mucoasă ce filtrează aerul. (b) Capătul arborelui bronșic Sus, în panou, se vede o bronhiolă mărită, care se extinde la un grup de alveole. Peretele bronhiolelor este alcătuit din mușchi netezi, susținuți de țesut conjunctiv, iar desenul arată benzile de mușchi neted care înconjoară bronhiola. Spasmul mușchilor netezi ai arborelui bronșic, provocat de obicei de alergeni, cauzează astmul. Mai jos, ramificarea continuă în această ordine: Bronhiolele terminale, cele mai mici conducte aeriene, formate prin ramificarea bronhiolelor. Bronhiolele respiratorii, cu care se continuă bronhiolele terminale și care se deschid în alveole. Alveolele, săculeții microscopici cu aer, adunați în ciorchini. Unul dintre acești ciorchini, sacul alveolar, este desenat secționat, ca să se vadă spațiul lui interior și pereții subțiri dintre alveolele vecine. (c) Unitatea funcțională de bază a plămânului Un grup de alveole reprezintă unitatea funcțională de bază a plămânului. Săculeții sunt formați din membrane subțiri, acoperite de rețeaua capilară extinsă a circulației pulmonare. În desen, capilarele formează o plasă deasă peste tot grupul, iar prin ochiurile ei se vede câte o alveolă. Sângele străbate această rețea astfel: O ramură a arterei pulmonare, în stânga sus, aduce la alveole sânge bogat în dioxid de carbon și sărac în oxigen. În capilarele care înconjoară alveolele are loc schimbul de gaze. Capilarele se unesc în venule pulmonare, iar acestea formează venele pulmonare. O ramură a venei pulmonare, în dreapta sus, duce sângele, acum cu o concentrație scăzută în dioxid de carbon și crescută în oxigen, înapoi în partea stângă a inimii. Între cele două vase coboară bronhiolele, care aduc aerul la grupul de alveole. Alveolele și schimbul de gaze Alveolele constituie porțiunea respiratorie a sistemului respirator. La un adult, plămânul are aproximativ 300 de milioane de alveole, care împreună asigură o suprafață mare de schimb. Membranele lor respiratorii formează o barieră extrem de subțire, pe care gazele o traversează prin difuziune, un proces pasiv, fără consum energetic: oxigenul trece din alveole în sânge, iar dioxidul de carbon trece din sânge în alveole. Drumul gazelor mai departe, prin globulele roșii, este urmărit în Figura 17.9.

Fig. 17.6 · Biologie Barron's · p. 410
Schimbările de volum ale cavității toracice în inspirație și expirațieFigura arată același torace în două momente diferite, ca să se vadă schimbările de volum ale cavității toracice pe măsură ce se contractă mușchii respiratori. Coloana din stânga este inspirația, coloana din dreapta este expirația, iar fiecare coloană are câte două desene: sus, toracele văzut din față, jos, același torace văzut din profil. Compară cele două coloane: diferența de mărime dintre ele este tot ce trebuie înțeles din figură. În desenele de sus, jumătatea din stânga arată plămânul de sub coaste, iar jumătatea din dreapta arată coastele și mușchii dintre ele. Săgeata dreaptă de deasupra traheei arată sensul în care circulă aerul, săgețile curbe de pe coaste arată în ce sens se mișcă acestea, iar bolta trasată cu linie întreruptă sub coaste este diafragma, cu săgețile ei de mișcare. În desenele din profil, aerul intră și iese pe la nas și pe la gură, săgețile mici dintre coaste arată ce fac mușchii intercostali externi, săgeata groasă din dreptul diafragmei arată încotro se mișcă ea, iar la expirație linia întreruptă din fața pieptului marchează conturul pe care îl avea toracele în inspirație. Regula pe care se bazează totul Ventilația se bazează pe principiul conform căruia aerul se deplasează dintr-o regiune cu presiune înaltă (densitate crescută) către o regiune cu presiune joasă (densitate scăzută). Astfel, aerul va pătrunde în plămâni dacă aerul din alveole are o presiune mai joasă decât cea atmosferică și îi va părăsi dacă presiunea din alveole este mai mare decât cea atmosferică. Inspirația Două mișcări se petrec în același timp: Se contractă mușchii respiratori situați între coaste, numiți mușchi intercostali externi, iar contracțiile lor ridică coastele în sus și înspre exterior. Diafragma se contractă și se mișcă în jos. Aceste contracții musculare simultane cresc foarte mult volumul toracelui. Datorită volumului crescut al cuștii toracice, plămânii, fiind elastici, se destind pentru a umple cavitatea toracică, adică urmează expansiunea toracică. Creșterea volumului din căile aeriene și alveole determină scăderea presiunii aerului din ele, așa că aerul atmosferic pătrunde liber în alveolele pulmonare. Mușchii intercostali sunt utilizați de cele mai multe ori în inspirația forțată, în timp ce diafragma este folosită atât în respirația forțată, cât și în cea normală. Expirația Mușchii respiratori, adică mușchii intercostali externi și diafragma, se relaxează. Odată cu relaxarea scade volumul toracelui, care revine la forma sa inițială. Această activitate comprimă plămânii și scade volumul acestora, iar scăderea volumului crește presiunea aerului din plămâni. Pentru că aerul trece dintr-o regiune cu presiune ridicată într-una cu presiune joasă, el iese din alveole în atmosferă prin căile aeriene. Expirația golește parțial plămânii de aer. Este un proces pasiv, care poate fi controlat de organism, dar nu la fel de mult ca și inspirația. De reținut Inspirația aduce aer în plămâni prin creșterea volumului cavității toracice. Prin scăderea volumului, expirația permite ieșirea aerului.
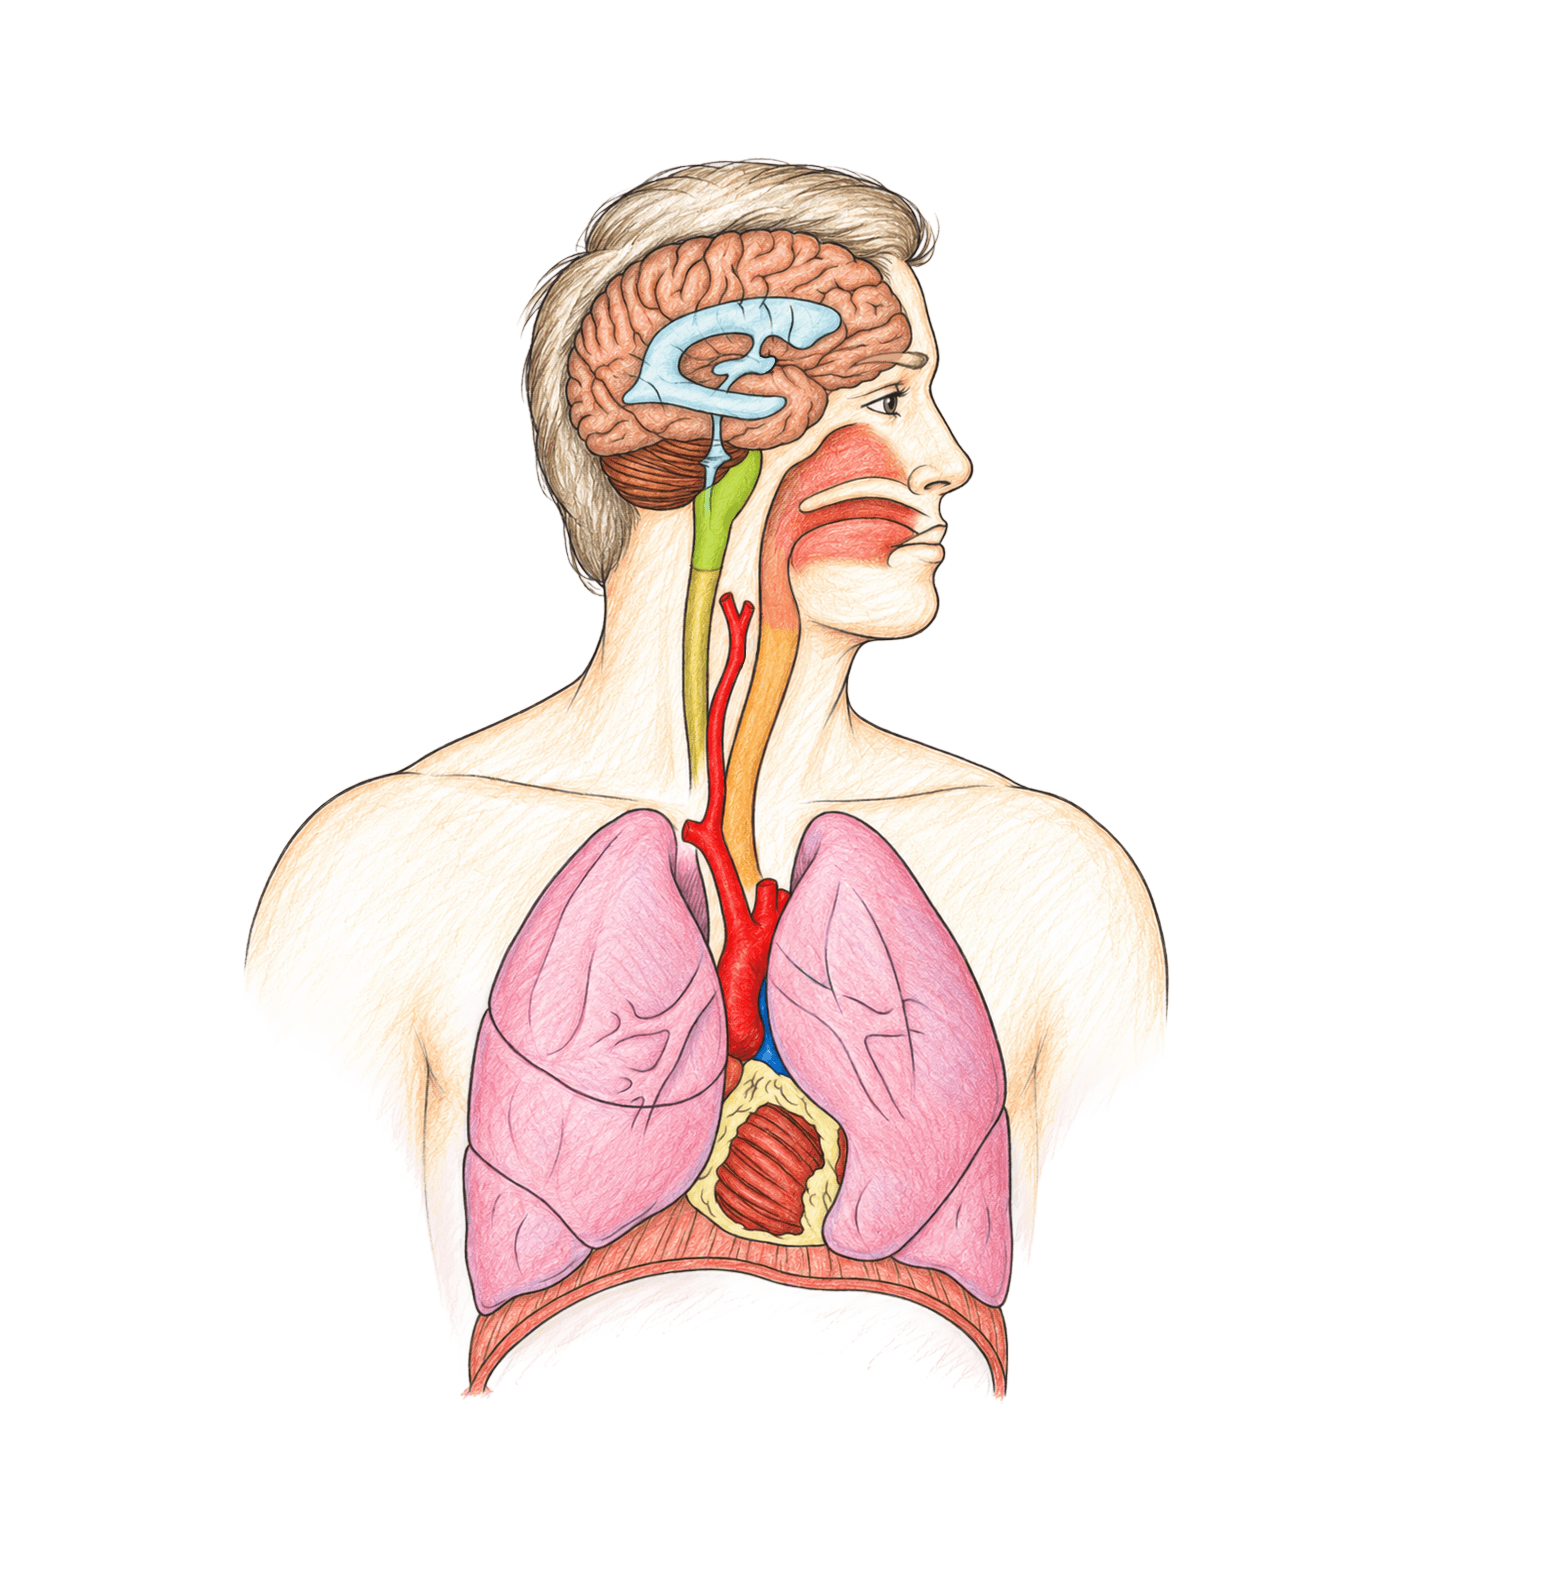
Fig. 17.7 · Biologie Barron's · p. 411
Controlul respirației în organismFigura arată unde se află în corp zonele care comandă respirația. Capul și toracele sunt desenate transparent, ca să se vadă encefalul, traseul vaselor mari din gât și din torace, inima și diafragma. Trei zone importante de control sunt situate în bulbul rahidian, arterele carotide și în arcul aortic. Citește desenul de sus în jos, pentru că aceasta este și ordinea în care lucrează sistemul: informația este sesizată sus și în vasele mari, comanda coboară la mușchii respiratori. Centrul de control respirator Respirația este controlată prin contracții ale mușchilor respiratori, iar aceștia sunt controlați de către stimuli nervoși. Zona principală de control a mușchilor respiratori este o porțiune a encefalului numită centrul de control respirator, situat în trunchiul cerebral și cuprinzând părți din bulb și punte. Două grupuri neuronale din această regiune controlează ritmul respirației și amplitudinea mișcărilor din timpul respirației forțate. O altă zonă din centrul de control, numită zona pneumotaxică, reglează și ea frecvența și amplitudinea respirației. Cum este sesizat dioxidul de carbon Centrii respiratori din trunchiul cerebral monitorizează indirect nivelul de dioxid de carbon din fluxul sanguin, gaz care este un produs rezidual al respirației celulare. Lanțul este acesta: Crește concentrația de $\ce{CO2}$ din sângele arterial, iar gazul difuzează în lichidul cefalorahidian, ajungând astfel la nivelul centrului respirator. Creșterea concentrației dioxidului de carbon în lichid determină o creștere corespunzătoare a concentrației ionilor de hidrogen, adică a acidității. Nivelul ridicat al ionilor de $\ce{H+}$ activează centrul respirator, iar impulsurile nervoase din zona pneumotaxică sunt transmise mușchilor respiratori și cresc frecvența și amplitudinea respirației. Pe măsură ce dioxidul de carbon este expirat din plămâni, concentrația ionilor de hidrogen scade, iar acest lucru inhibă activarea centrului respirator. Chemoreceptorii pentru oxigen Alți receptori pentru sistemul respirator sunt receptorii chimici (chemoreceptori) situați în arterele carotide, corpusculul carotidian din desen, și la nivelul arcului aortic, corpusculii aortici. Acești chemoreceptori monitorizează conținutul de oxigen dizolvat din sânge. Atunci când nivelul de $\ce{O2}$ este scăzut, sunt stimulați chemoreceptorii care trimit impulsuri la centrul de control respirator pentru a crește frecvența și amplitudinea respirației. Cine execută comanda La capătul de jos al desenului sunt inima și diafragma. Diafragma este unul dintre mușchii respiratori care primesc impulsurile, transmise prin nervul frenic, și care schimbă volumul cavității toracice așa cum arată Figura 17.6. Voluntar și involuntar Activitatea centrului respirator și cea a chemoreceptorilor sunt mecanisme involuntare de control respirator. Organismul poate anula parțial aceste mecanisme cu ajutorul impulsurilor nervoase din cortexul cerebral, care sunt transmise centrului de control respirator, iar controlul voluntar permite oprirea respirației în timpul înotului sau în alte situații. Cu toate acestea, pe măsură ce nivelul dioxidului de carbon și al ionilor de hidrogen crește în lichidele corpului, impulsurile din centrul respirator înving oprirea voluntară a respirației și suntem obligați să inspirăm.
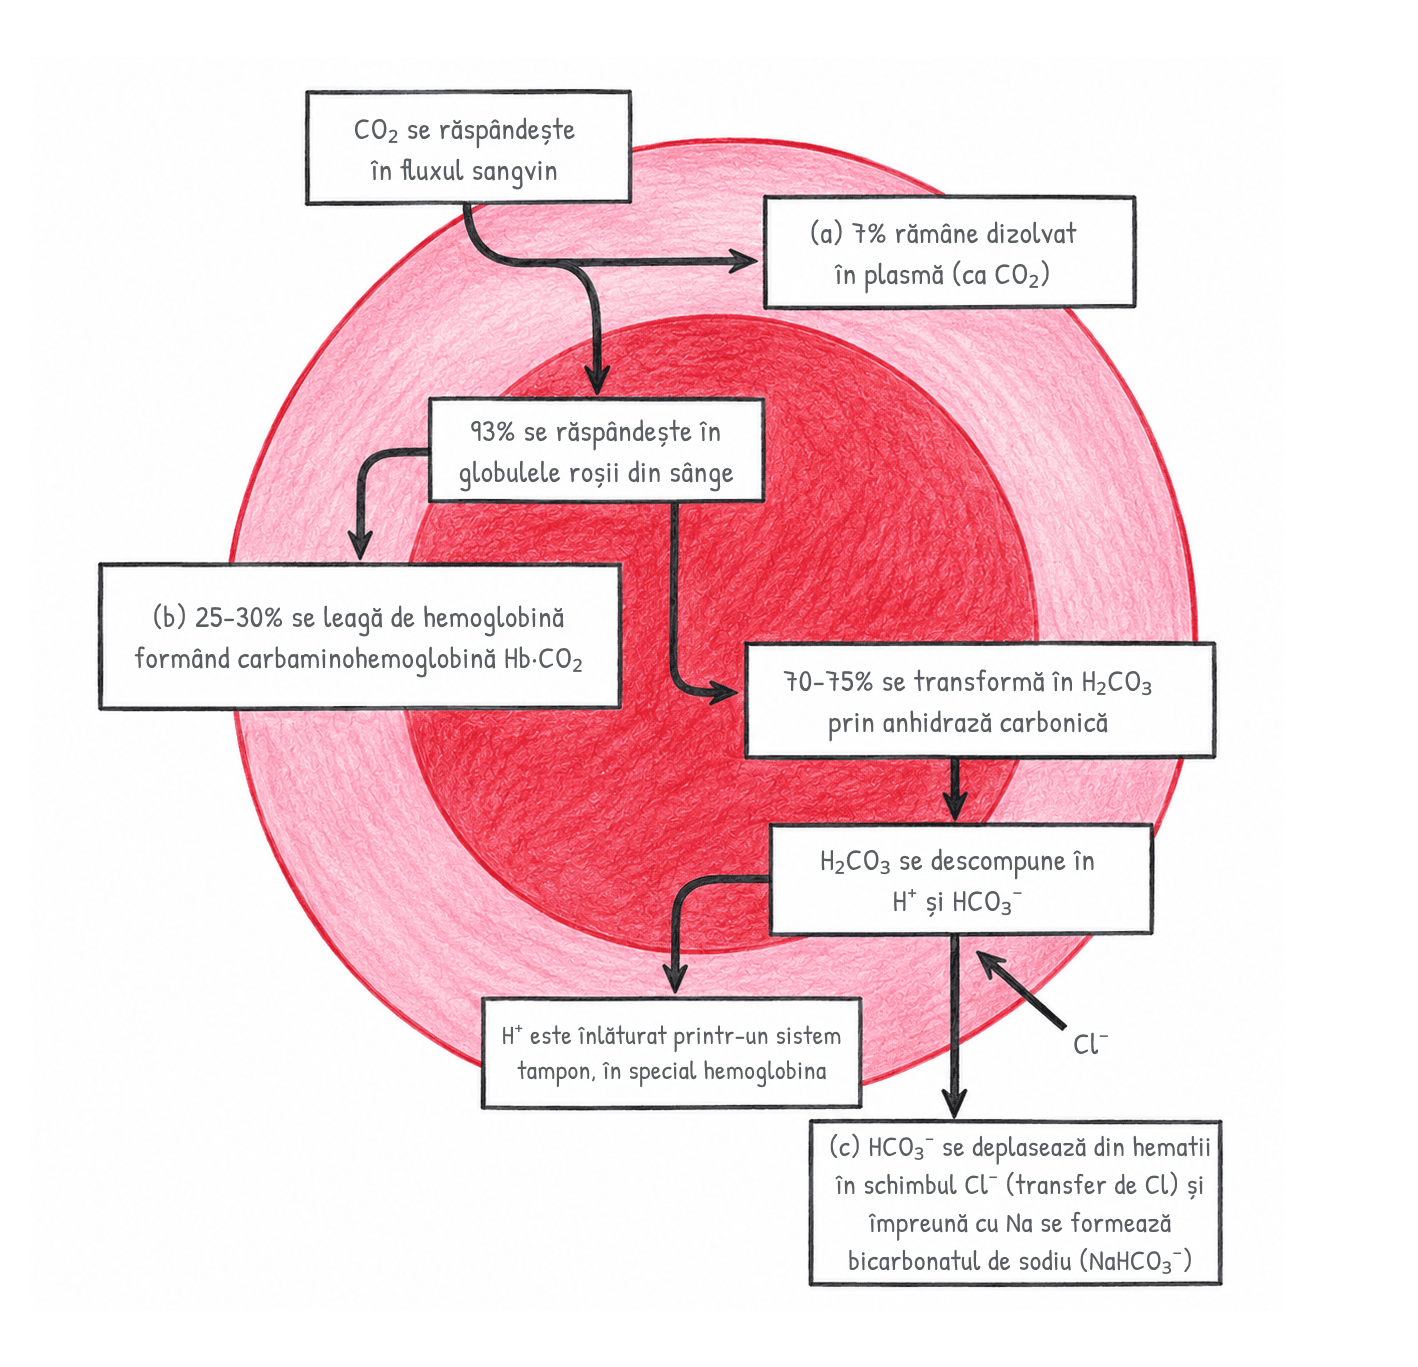
Fig. 17.8 · Biologie Barron's · p. 412
Transportul dioxidului de carbon în sângeFigura arată cum este transportat prin sânge dioxidul de carbon, de la țesuturi spre plămâni. Spre deosebire de oxigen, care circulă în proporție de 98% legat de hemoglobină, dioxidul de carbon este transportat prin trei mecanisme diferite, notate în desen cu (a), (b) și (c). Cercul mare reprezintă plasma, iar cercul mic din interiorul lui, o globulă roșie (hematie). Citirea începe cu caseta din stânga sus și continuă pe săgeți, iar fiecare ramură se oprește la una dintre cele trei forme de transport. Intrarea în sânge Produs rezidual al respirației celulare, dioxidul de carbon trece din țesuturi în sânge și pătrunde mai întâi în plasmă. Caseta din stânga sus marchează acest moment. Săgeata se ramifică apoi: o parte mică rămâne în plasmă, iar restul (93% în desen) pătrunde în globulele roșii. (a) Dioxidul de carbon dizolvat Ramura scurtă spre dreapta arată cea mai mică parte, aproximativ 7%, care circulă ca gaz dizolvat, $\ce{CO2}$, în plasmă și în citoplasma hematiilor. (b) Carbaminohemoglobina În globula roșie, săgeata spre stânga duce la a doua formă. Aproximativ 25-30% din dioxidul de carbon se leagă de hemoglobină și formează carbaminohemoglobina ($\ce{Hb*CO2}$), adică hemoglobina combinată cu dioxid de carbon. Dioxidul de carbon este preluat de moleculele de hemoglobină care și-au eliberat în prealabil oxigenul în țesuturi și se leagă de ele într-un loc diferit de cel în care se leagă oxigenul. (c) Ionii de bicarbonat și bicarbonatul de sodiu Săgeata care coboară spre dreapta arată calea principală. Aproximativ 70-75% din dioxidul de carbon este transportat sub formă de ioni de bicarbonat ($\ce{HCO3-}$), formați în globulele roșii: $$\ce{CO2 + H2O -> H2CO3 -> H+ + HCO3-}$$ Casetele următoare arată, în ordine, cum decurge această transformare și ce devin produșii ei: Dioxidul de carbon se combină cu apa și formează acid carbonic ($\ce{H2CO3}$). Reacția este catalizată de anhidraza carbonică, o enzimă prezentă în globulele roșii. Acidul carbonic disociază în ioni de hidrogen ($\ce{H+}$) și ioni de bicarbonat. Ionii de hidrogen sunt înlăturați de un sistem tampon, în special de hemoglobină (săgeata spre stânga, jos). Hemoglobina face parte din sistemul tampon al proteinelor, cel mai puternic din organism, și acceptă ionii de hidrogen, astfel încât pH-ul nu se modifică substanțial. Unii ioni de bicarbonat rămân în globulele roșii. Mulți difuzează însă în plasmă (săgeata care coboară spre caseta (c)), unde se combină cu ionii de sodiu ($\ce{Na+}$) și formează bicarbonat de sodiu ($\ce{NaHCO3}$). De fiecare dată când un ion de bicarbonat iese prin membrana globulei roșii, în ea intră un ion de clor (săgeata scurtă notată $\ce{Cl-}$, orientată în sens opus). Când în sânge intră multe molecule de $\ce{CO2}$, procesele se desfășoară rapid și apare un influx crescut de ioni de clor în eritrocite, fenomen numit transfer de clor. Acidul carbonic și bicarbonatul de sodiu formează împreună și un sistem tampon, sistemul acid carbonic-bicarbonat de sodiu, a cărui acțiune este prezentată în Figura 21.6. Ce se întâmplă în plămâni În alveole, drumul se parcurge în sens invers. Pe măsură ce oxigenul trece din sacul alveolar în globulele roșii, ionii de bicarbonat sunt convertiți din nou în molecule de dioxid de carbon. Acestea trec prin difuziune, un proces pasiv, din globulele roșii în sacul alveolar, pentru că hematiile sunt bogate în dioxid de carbon, iar aerul din alveole este sărac în acest gaz. Schimbul gazelor în plămâni și în țesuturi este rezumat în Figura 17.9.

Fig. 17.9 · Biologie Barron's · p. 414
Transportul și schimbul gazelor respiratorii în plămâni și în țesuturiFigura rezumă transportul gazelor respiratorii prin sânge și schimbul lor la cele două capete ale drumului. Panoul de sus (a) arată schimbul dintre aerul unei alveole și sângele din capilarele pulmonare, iar panoul de jos (b), schimbul dintre sângele din capilarele periferice și celulele țesuturilor. În plămâni, oxigenul ($\ce{O2}$) trece din alveole în sânge, iar dioxidul de carbon ($\ce{CO2}$) trece din sânge în alveole. În țesuturi se întâmplă invers: oxigenul trece din sânge în țesuturi, iar $\ce{CO2}$ trece din țesuturi în sânge. În fiecare capilar sunt desenate două globule roșii, fiecare ilustrând câte un proces, numit alături. Săgețile subțiri arată încotro se mișcă fiecare moleculă și în ce se transformă. Săgețile groase dintre globule și cele două săgeți mari dintre panouri arată sensul în care circulă sângele, într-un circuit închis: de la stânga la dreapta prin capilarul pulmonar, în jos spre țesuturi, de la dreapta la stânga prin capilarul periferic și înapoi în sus, spre plămâni. Procesele sunt desenate în globule diferite, dar textul vorbește despre aceleași hematii, care ajung la alveole puțin oxigenate și bogate în dioxid de carbon. Gazele trec dintr-un compartiment în altul prin difuziune, adică prin deplasarea moleculelor dintr-o zonă cu concentrație mare spre una cu concentrație scăzută. Este un proces pasiv, care nu necesită consum de energie. (a) În alveole Spațiul aerian alveolar conține aer bogat în oxigen și sărac în dioxid de carbon. Peretele alveolei stă lipit de cel al unui capilar pulmonar, unul dintre capilarele microscopice de pe suprafața sacului alveolar (Figura 17.5), iar gazele difuzează prin aceste membrane alveolare și capilare. Prin capilar trec globulele roșii (hematiile), niște saci plini cu hemoglobină. Preluarea oxigenului (globula din dreapta). Oxigenul difuzează prin membrana respiratorie în plasmă și apoi pătrunde în globula roșie. Acolo se leagă de ionul de fier din porțiunea hem a hemoglobinei (Hb) și formează oxihemoglobina ($\ce{Hb.O2}$). Având patru grupări hem, o moleculă de hemoglobină poate lega patru molecule de oxigen (Figura 14.3). Eliberarea $\ce{CO2}$ (globula din stânga). În același timp, sângele cedează dioxidul de carbon adus din țesuturi. Carbaminohemoglobina ($\ce{Hb.CO2}$) își desprinde $\ce{CO2}$, lăsând hemoglobina liberă. Ionii de bicarbonat ($\ce{HCO3-}$) intră din plasmă în globula roșie, iar ionii de clor ($\ce{Cl-}$) ies, adică invers față de țesuturi. În interior, bicarbonatul este reconvertit în dioxid de carbon: $\ce{H+ + HCO3- -> H2CO3 -> CO2 + H2O}$. Moleculele de $\ce{CO2}$ difuzează apoi în spațiul aerian alveolar, de unde sunt eliminate prin expirație. (b) În celulele corpului Jos, sângele trece prin capilarele periferice, lipite de celulele din țesuturile periferice (șirul de celule cu nucleu de sub capilar). Aici oxigenul este eliberat din globulele roșii prin mecanisme opuse celor din alveole, iar sângele preia o nouă încărcătură de dioxid de carbon. După regula difuziunii, sensul săgeților arată că acum oxigenul este mai concentrat în sânge, iar $\ce{CO2}$ în celule. Eliberarea oxigenului (globula din dreapta). Oxihemoglobina se desface în hemoglobină și oxigen, iar oxigenul difuzează din globulă, prin peretele capilarului, în celule. Acolo este utilizat în metabolismul celular, în procesul de eliberare de energie și formare a ATP-ului. Preluarea $\ce{CO2}$ (globula din stânga). Dioxidul de carbon difuzează din celule în plasmă și apoi în globula roșie. O parte se leagă de hemoglobina care tocmai a cedat oxigenul, într-un loc diferit de cel al oxigenului, și formează carbaminohemoglobina ($\ce{Hb.CO2}$). Cea mai mare parte se combină cu apa și formează acid carbonic, într-o reacție catalizată de anhidraza carbonică, o enzimă din globulele roșii. Acidul carbonic disociază apoi în ioni de hidrogen și ioni de bicarbonat: $\ce{CO2 + H2O -> H2CO3 -> H+ + HCO3-}$. Ionii de hidrogen sunt înlăturați de un sistem tampon, în special de hemoglobină. Mulți ioni de bicarbonat difuzează în plasmă, unde se combină cu ionii de sodiu și formează bicarbonat de sodiu ($\ce{NaHCO3}$). Fiecare ion de bicarbonat care iese este înlocuit de un ion de clor care intră: este transferul de clorură din desen, numit în text „transfer de clor”. Drumul dintre cele două panouri Între plămâni și țesuturi, oxigenul este transportat aproape în întregime (98%) de hemoglobina din globulele roșii, restul de aproximativ 2% fiind dizolvat în plasmă sau în citoplasma hematiilor. Dioxidul de carbon circulă în trei forme, detaliate în Figura 17.8: dizolvat în plasmă și în citoplasma hematiilor (aproximativ 7%), ca carbaminohemoglobină (25-30%) și ca ioni de bicarbonat (70-75%). Săgeata mare din dreapta reprezintă sângele oxigenat, care pleacă din plămâni prin venulele și venele pulmonare spre partea stângă a inimii, de unde ventriculul stâng îl pompează spre țesuturi. Săgeata mare din stânga aduce înapoi la plămâni sângele încărcat cu $\ce{CO2}$.
- 18Sistemul digestivPaginile 425 - 441

Fig. 18.1 · Biologie Barron's · p. 426
Organele sistemului digestiv, vedere anterioarăFigura arată unde se află, în corp, fiecare organ al sistemului digestiv, privit din față. Organele sunt desenate peste conturul corpului, așa că se vede și relația lor cu alte structuri ale corpului uman, de exemplu cu splina. Sistemul digestiv are două funcții importante: descompunerea moleculelor mari de alimente în molecule mici și absorbția moleculelor mici, a mineralelor și a apei în organism. Cele două componente ale sistemului Sistemul digestiv este format din tractul gastrointestinal și o serie de organe anexe. Organele tractului gastrointestinal sunt cavitatea orală, esofagul, stomacul, intestinul subțire și cel gros, iar organele anexe cuprind glandele salivare, ficatul și pancreasul. Tractul gastrointestinal este o structură tubulară, musculară, de aproximativ 9 m lungime, care se extinde de la cavitatea orală la anus. De la cavitatea orală la stomac Cavitatea orală asigură ingestia și digestia mecanică a alimentelor, reducându-le masa și amestecându-le cu salivă. Limba transformă alimentele în boluri alimentare, iar dinții realizează cea mai mare parte a digestiei mecanice. Glandele salivare (parotidă, sublinguală și submandibulară) lubrifiază alimentele și produc enzime care inițiază procesul de digestie (Figura 18.3). Faringele este segmentul comun cu sistemul respirator și conduce spre esofag. Esofagul transportă alimentele în stomac. Este un tub drept, distensibil, muscular, de aproximativ 25 cm, care traversează diafragma. Stomacul și intestinul subțire Stomacul este un organ de forma literei J, situat în porțiunea superioară stângă a abdomenului. Secretă acid clorhidric și enzime digestive cu rol în descompunerea proteinelor (Figura 18.5). Intestinul subțire are trei porțiuni, desenate una după alta: duodenul, jejunul și ileonul. Secretă enzime și alți factori necesari digestiei și are rol în absorbția nutrienților. Intestinul gros Intestinul gros începe cu cecul, din care ia naștere apendicele, și continuă cu colonul ascendent, colonul transvers, colonul descendent și colonul sigmoid, apoi cu rectul și cu anusul. Absoarbe apa din alimentele nedigerate și depozitează reziduuri, iar anusul se deschide la exterior și elimină materiile fecale (Figura 18.8). Organele anexe Ficatul secretă bila, necesară digestiei lipidelor, sintetizează proteinele din sânge și depozitează lipide și glucide. Vezica biliară depozitează bila și o eliberează în intestinul subțire. Pancreasul secretă enzime digestive și lichide alcaline (sisteme tampon), pe care le eliberează în intestinul subțire, și secretă hormoni.

Fig. 18.2 (a) · Biologie Barron's · p. 428
Structura unui dinte: regiuni și structuri componenteFigura arată secțiunea printr-un singur dinte, împreună cu gingia și osul din jurul rădăcinii. Dintele este tăiat pe toată înălțimea lui, așa că se văd deodată cele trei regiuni principale, de sus în jos, și straturile care le alcătuiesc, dinspre suprafața dintelui spre miezul lui. Dinții permanenți ai adultului, cu perioada de erupție a fiecăruia, sunt în Figura 18.2 (b). Cele trei regiuni ale dintelui Structura de bază a dintelui include coroana, acoperită de smalț, rădăcina, acoperită de cement, și gâtul (coletul) dintelui, care leagă coroana de rădăcina dintelui. Structurile componente Cele două componente principale ale dintelui sunt smalțul și dentina. Smalțul este cea mai dură substanță din organism și se găsește la suprafața exterioară a dintelui. Este alcătuit în principal din săruri de calciu, săruri care constituie componenta majoră a unei substanțe minerale numită hidroxiapatita. Dentina este mai moale decât smalțul și formează cea mai mare parte a dintelui. Este situată sub smalț și înconjoară pulpa dentară. Pulpa dentară, desenată în miezul dintelui, conține vasele de sânge, nervii și țesuturile conjunctive ale dintelui.

Fig. 18.2 (b) · Biologie Barron's · p. 428
Dinții permanenți ai adultului și perioada lor de erupțieFigura arată cele două arcade dentare ale adultului, desenate ca și cum am privi dinții de sus și de jos. Structura unui dinte, cu regiunile și structurile lui componente, este în Figura 18.2 (a). Cele două tipuri de dinți Dinții sunt de două tipuri. Dinții deciduali/temporari, în număr de 20, sunt cunoscuți și sub denumirea de „dinții de lapte”. Aceștia se pierd de obicei până la vârsta de șase ani și sunt înlocuiți de dinții permanenți, în număr de 32, adică exact cei desenați aici. Cele patru tipuri de dinți Există patru tipuri de dinți, iar în fiecare jumătate de arcadă ei se succed dinspre mijloc spre spate în aceeași ordine: Incisivii, folosiți pentru tăierea alimentelor de dimensiuni mari. Caninii, care au formă conică (de colți) și se folosesc la apucarea și sfâșierea alimentelor. Premolarii, care sunt plați și servesc la mărunțire/măcinare. Molarii, care de asemenea sunt dinți plați folosiți pentru mărunțire. Erupția dinților permanenți Fiecare arcadă are 16 dinți, câte opt de fiecare parte: doi incisivi, un canin, doi premolari bicuspizi și trei molari. Perioada de erupție nu este aceeași sus și jos. Primul molar apare cel mai devreme, la 6-7 ani, la ambele arcade, iar al treilea molar cel mai târziu, la 17-21 de ani. Dinții de jos ies, în general, mai devreme decât cei de sus: incisivul central inferior la 6-7 ani față de 7-8 ani sus, iar caninul inferior la 9-10 ani față de 11-12 ani sus.

Fig. 18.3 · Biologie Barron's · p. 429
Poziția celor trei glande salivare și a ductelor lorFigura arată capul văzut din profil și, sub piele, locul celor trei glande salivare mari, împreună cu ductele care duc saliva în gură. Toate trei sunt glande perechi, așa că fiecare apare și pe partea cealaltă a feței, iar toate secretă salivă în cavitatea orală. Ele sunt considerate organe anexe ale sistemului digestiv. Glanda parotidă Este prima glandă salivară și cea mai mare dintre ele. Se află în vecinătatea urechilor, în țesuturile profunde din regiunea feței, adică exact acolo unde o vezi desenată, înaintea și dedesubtul urechii. Este drenată de ductul parotidian, care se deschide pe partea internă a obrazului, opus celui de-al doilea molar superior. Glanda submandibulară A doua glandă salivară, numită și glanda submaxilară, este situată în planșeul oral, în apropierea suprafeței interne a mandibulei. În figură este cea mai de jos dintre cele trei, sub marginea mandibulei. Este drenată de ductul submandibular, care se deschide în cavitatea orală, deasupra planșeului oral, lateral de frâul limbii. Glanda sublinguală A treia glandă salivară este situată tot în planșeul oral, sub limbă, în fața glandelor submandibulare. Secrețiile ei sunt transportate în cavitatea orală, la nivelul planșeului oral, printr-o serie de ducte numite ducte sublinguale, care se deschid sub limbă. La ce folosește saliva Secreția glandelor salivare, saliva, facilitează lubrifierea și legarea particulelor alimentare și începe descompunerea moleculelor de glucide. Celulele seroase produc o enzimă cunoscută sub numele de amilază, care digeră chimic moleculele de amidon și de glicogen în dizaharide, adică în unități formate din două monozaharide. Dizaharidul produs prin descompunerea amidonului și a glicogenului se numește maltoză (Figura 2.5). Deoarece alimentele rămân în cavitatea orală pentru o perioadă scurtă de timp, numai o cantitate mică de amidon este digerată aici, cea mai mare parte fiind digerată în intestinul subțire. Celulele mucoase ale glandelor salivare produc mucus, un lichid gros, vâscos, care leagă particulele alimentare și lubrifiază tractul gastrointestinal.

Fig. 18.4 · Biologie Barron's · p. 430
Deglutiția și peristaltismulFigura urmărește un bol alimentar din gură până în esofag, în trei momente succesive. Cele trei panouri sunt aceeași secțiune prin cap și gât și se citesc de la stânga la dreapta, în ordinea săgeților mari dintre ele. Pentru ca alimentele să treacă din cavitatea orală în stomac, ele trebuie înghițite, iar acest proces se numește deglutiție. Cele trei momente Panoul din stânga: În procesul de înghițire, limba se ridică și comprimă bolul alimentar de palatul dur, împingându-l înspre faringe. Panoul din mijloc: Bolul alimentar trece de epiglotă, care acoperă laringele, și pătrunde în esofag. Palatul moale este ridicat. Panoul din dreapta: Mușchii esofagului se contractă, ceea ce este arătat prin săgețile mici, față în față, și împing bolul alimentar spre stomac. De la controlul voluntar la cel involuntar Deglutiția necesită activitățile coordonate ale limbii, palatului moale, faringelui și esofagului. Prima etapă se produce în cavitatea orală și este sub control voluntar: alimentele sunt mestecate și îmbibate cu salivă, pentru a forma bolul alimentar, care este împins către faringe cu ajutorul limbii. Din acest moment începe etapa involuntară: mușchii faringieni se contractă și împing bolul alimentar în esofag, iar nervii sistemului nervos autonom preiau controlul. Peristaltismul Contracțiile controlate de sistemul nervos autonom declanșează un proces denumit peristaltism, adică formarea unor unde de contracție ale stratului muscular neted al esofagului. În prima fază se contractă mușchii longitudinali, apoi cei circulari. Aceste contracții împing bolul alimentar până când acesta ajunge la un mușchi circular situat la extremitatea superioară a stomacului, numit sfincterul esofagian inferior sau sfincterul cardial (Figura 18.5). Manualul reține peristaltismul ca fiind contracția mușchilor netezi necesară progresiei alimentelor de-a lungul tractului digestiv, precum și mixării acestora cu conținutul tractului digestiv.

Fig. 18.5 (a) · Biologie Barron's · p. 432
Poziția stomacului în cavitatea abdominală superioarăFigura arată unde se află stomacul în corp, privit din față. Peste conturul trunchiului sunt desenate esofagul, diafragma și stomacul, așa că se vede cum trece esofagul din torace în abdomen. Alături de ele sunt desenate, fără să fie marcate, și organele vecine. Ficatul este organul cel mai mare din desen, iar marginea lui acoperă o parte din stomac. Vezica biliară este structura în formă de pară de sub marginea inferioară a ficatului, iar duodenul este tubul care coboară din capătul îngust al stomacului. Regiunile și straturile musculare ale stomacului sunt în Figura 18.5 (b), iar peretele gastric mărit, cu celulele glandelor gastrice, în Figura 18.5 (c). Poziția stomacului Stomacul se află sub diafragmă, mușchiul de mari dimensiuni, în formă de cupolă, care separă cavitatea toracică de cavitatea abdomino-pelviană. Legenda figurii îl plasează în cavitatea abdominală superioară, în regiunea epigastrică, situată deasupra regiunii ombilicale, între hipocondrul drept și cel stâng (Figura 1.5). Textul capitolului precizează că stomacul, un organ de forma literei J, ocupă porțiunea superioară stângă a abdomenului. Trecerea esofagului prin diafragmă Esofagul este o structură tubulară dreaptă, distensibilă și musculară, care leagă faringele de stomac. Măsoară aproximativ 25 cm și traversează diafragma către stomac, prin locul marcat în figură drept hiatus esofagian. Ajuns la stomac, esofagul se termină cu un mușchi circular situat la extremitatea superioară a stomacului, sfincterul esofagian inferior, numit și sfincterul cardial. Locul stomacului printre celelalte organe digestive se vede în Figura 18.1.

Fig. 18.5 (b) · Biologie Barron's · p. 432
Principalele regiuni anatomice și straturi musculare ale stomaculuiFigura prezintă stomacul, organul de forma literei J în care alimentele sunt stocate și în care se produce descompunerea chimică a anumitor molecule. Desenul îl arată întreg: esofagul intră în el prin partea de sus, iar din capătul lui îngust, în stânga desenului, pleacă duodenul. Peretele este tăiat în două locuri. La mijloc, o fereastră tăiată în trepte arată, de sus în jos, straturi musculare tot mai profunde. Mai jos, peretele este deschis de tot, ca să se vadă suprafața internă. Poziția stomacului în cavitatea abdominală, sub diafragmă, este în Figura 18.5 (a), iar peretele gastric mărit, cu celulele glandelor gastrice, în Figura 18.5 (c). Regiunile și curburile Stomacul se întinde de la sfincterul esofagian inferior până la sfincterul piloric, mușchiul circular de la capătul său distal. Părțile lui principale sunt: Cardia, situată în apropierea cordului, acolo unde se deschide esofagul. Aici, la extremitatea superioară a stomacului, se află sfincterul esofagian inferior, numit și sfincterul cardial. Fundul (fornixul), porțiunea bombată care se ridică deasupra locului de intrare a esofagului. Corpul stomacului, partea lui principală. Antrul piloric, porțiunea distală și îngustă, care se termină cu sfincterul piloric. Suprafața laterală convexă, marginea lungă și bombată a literei J, se numește marea curbură. Suprafața medială, concavă, se numește mica curbură. De la ficat la mica curbură se întinde micul epiplon, un strat dublu de peritoneu, iar marele epiplon, o altă prelungire a peritoneului, se extinde mai jos de stomac, deasupra organelor abdominale. Peretele stomacului Ca în tot tractul gastrointestinal, peretele are patru tunici. Partea deschisă din desen arată suprafața internă, căptușită de mucoasă, un epiteliu ce acoperă un țesut conjunctiv și care conține glande ce secretă enzime și mucus. Aici se văd pliurile gastrice (rugae), evidente când stomacul este gol și micșorat. Când stomacul este plin și destins, ele se întind și dispar. Sub mucoasă se află submucoasa, cu vase de sânge, vase limfatice și nervi. Tunica externă, seroasa, nu este marcată în figură. Între submucoasă și seroasă se află tunica musculară, din mușchi netezi. În restul tractului ea are doar două straturi, ca în peretele intestinului subțire (Figura 18.7), dar stomacul are trei, pe care fereastra din desen le arată de la exterior spre interior: Mușchiul longitudinal, stratul extern, dispus de-a lungul tubului digestiv. Contracția lui scurtează lungimea tubului. Mușchiul circular, care înconjoară tubul și, prin contracție, îi micșorează diametrul. Mușchiul oblic, al treilea strat, propriu stomacului, aflat între submucoasă și stratul circular. Împreună, cele trei straturi mixează și desfac bolul alimentar, transformându-l într-un amestec cu consistența unei supe, numit chim. Drumul chimului Mucoasa stomacului are și o funcție redusă de absorbție, pentru cantități mici de apă, glucoză, ioni și alcool. Restul alimentelor sunt transformate în chim gastric, pregătite astfel pentru procesele digestive ulterioare. Contracțiile peristaltice evacuează chimul prin sfincterul piloric în duoden, prima porțiune a intestinului subțire, organul în care are loc cea mai mare parte a digestiei.

Fig. 18.5 (c) · Biologie Barron's · p. 432
Structura peretelui gastric și celulele glandelor gastriceFigura mărește o porțiune din peretele stomacului. În stânga este un bloc tăiat din perete, cu mucoasa deasupra și submucoasa dedesubt. O glandă din mucoasă este încadrată și desenată mărit în dreapta, ca să se vadă celulele din peretele ei. Regiunile și straturile musculare ale întregului stomac sunt în Figura 18.5 (b). Criptele și glandele gastrice Mucoasa stomacului se invaginează și formează cripte gastrice profunde, în care se varsă secrețiile glandelor gastrice. Glandele gastrice secretă sucul gastric, care conține o multitudine de substanțe. Sub mucoasă se află submucoasa, cu vase de sânge, vase limfatice și nervi. Cele trei tipuri de celule Celulele parietale secretă acidul clorhidric ($\ce{HCl}$), necesar pentru activarea enzimelor proteolitice, și factorul intrinsec, necesar pentru absorbția vitaminei $B_{12}$ în intestinul subțire. Celulele mucoase produc mucusul, un strat vâscos, alcalin, care protejează peretele stomacului de autodigestie. Celulele principale secretă enzimele proteolitice. Pepsina și labfermentul Cea mai importantă enzimă proteolitică din stomac, pepsina, nu este secretată în forma activă. Celulele principale eliberează precursorul ei, pepsinogenul, care este convertit în pepsină în prezența acidului clorhidric. Pepsina descompune proteinele mari în proteine mai mici, denumite peptide. Labfermentul, o altă enzimă proteolitică, este produs în stomacul sugarilor, dar nu și în cel al adulților, și facilitează digestia laptelui. Controlul secreției Secreția de suc gastric este controlată de fibrele nervoase ale sistemului nervos parasimpatic. Celule din mucoasa stomacului, numite celule enteroendocrine, secretă și un hormon, gastrina, care controlează secreția de pepsinogen, de acid clorhidric și de mucus.

Fig. 18.6 · Biologie Barron's · p. 434
Digestia chimică a glucidelor, proteinelor și lipidelorFigura arată digestia chimică a celor trei categorii de nutrienți din alimente (glucide, proteine și lipide), așa cum are loc în duoden. Ea ilustrează prima dintre cele două funcții importante ale sistemului digestiv: descompunerea moleculelor mari din alimente în molecule mici, care pot fi apoi absorbite. Fiecare dintre cele trei rânduri este o reacție care se citește de la stânga la dreapta: molecula de digerat, apa care i se adaugă, săgeata și, după ea, produșii. Dedesubt, aceeași reacție este scrisă încă o dată în cuvinte, cu numele substanțelor. Deasupra săgeții este trecut tipul de enzime care intervin. Spre deosebire de apă, enzimele nu sunt consumate: ele catalizează reacția și rămân disponibile pentru reacțiile următoare. Rândul de sus: glucidele Se pleacă de la maltoză, un dizaharid alcătuit din două unități de glucoză, desenate în forma lor inelară și legate covalent printr-un atom de oxigen (Figura 2.5). Maltoza provine din amidon: amilaza salivară, în cavitatea orală, și amilaza pancreatică, în intestinul subțire, transformă amidonul în acest dizaharid. Cu o moleculă de $\ce{H2O}$, legătura dintre cele două inele se rupe și rezultă două monozaharide, două molecule de glucoză ($\ce{C6H12O6}$), combustibilul de bază al organismului. Enzima care descompune maltoza este maltaza, una dintre dizaharidazele produse de celulele intestinului subțire, alături de lactază și zaharază. Rândul din mijloc: proteinele Molecula din stânga are doi aminoacizi legați între ei. Un aminoacid are o grupare amino ($\ce{-NH2}$), o grupare carboxil ($\ce{-COOH}$) și un rest radical, notat cu R, partea prin care aminoacizii diferă între ei. Legătura dintre atomul de carbon și cel de azot din mijlocul moleculei este legătura peptidică. Acolo, gruparea carboxil a primului aminoacid s-a unit cu gruparea amino a celui de-al doilea printr-o deshidratare, adică cu eliminarea unei molecule de apă (Figura 2.7). Cu o moleculă de $\ce{H2O}$, această legătură se rupe și rezultă doi aminoacizi liberi. Digestia proteinelor are loc în mai multe etape: Pepsina din sucul gastric descompune proteinele în peptide, încă din stomac. Tripsina și alte proteaze din sucul pancreatic degradează, în duoden, proteinele și peptidele în dipeptide. Peptidazele, dipeptidazele și aminopeptidazele, produse de celulele intestinului subțire, duc digestia până la aminoacizi liberi. Reacția din figură, în care o dipeptidă se desface în doi aminoacizi, corespunde ultimei etape. Rândul de jos: lipidele În stânga este o grăsime. Coloana de trei atomi de carbon provine din glicerol, iar de fiecare atom de carbon este legat câte un acid gras, notat în desen $\ce{C17H35COO}$. O grăsime cu trei acizi grași este o trigliceridă. Pentru a o desface sunt necesare trei molecule de apă ($\ce{3H2O}$), câte una pentru fiecare legătură dintre un acid gras și glicerol. Rezultă trei molecule de acid gras ($\ce{C17H35COOH}$), fiecare cu un lanț de atomi de carbon, cu atomi de hidrogen asociați, și o grupare $\ce{-COOH}$ de acid organic. Alături rămâne o moleculă de glicerol, cu trei grupări $\ce{-OH}$. Reacția este inversul sintezei unei grăsimi, în care acizii grași se leagă de glicerol tot printr-o deshidratare (Figura 2.6). Înainte de această reacție, lipidele sunt emulsionate de sărurile biliare din bilă, produsă de ficat: globulele mari de lipide sunt descompuse în globule mici, care pot fi apoi ușor digerate. Bila nu conține enzime. Reacția din figură este realizată de lipaza pancreatică. Ce au în comun cele trei reacții În toate trei, apa este consumată, iar produșii de digestie conțin câte o parte din molecula ei. La fiecare legătură ruptă, unul dintre capete primește o grupare $\ce{-OH}$, iar celălalt un atom de hidrogen. În rândul proteinelor se vede cel mai ușor: primul aminoacid își reface gruparea carboxil, iar al doilea, gruparea amino. Digestia parcurge astfel drumul invers față de formarea acestor molecule, la care se elimină câte o moleculă de apă pentru fiecare legătură nou formată. Ce urmează: absorbția Produșii din dreapta figurii sunt suficient de mici pentru a fi absorbiți, mai ales în jejun și ileon. Monozaharidele, aminoacizii și acizii grași cu lanț scurt trec în capilarele sanguine ale vilozităților intestinale. Acizii grași cu lanț lung sunt resintetizați pentru a forma trigliceride, care difuzează apoi în chiliferul central, vasul limfatic din centrul vilozității (Figura 18.7).

Fig. 18.7 (a, b) · Biologie Barron's · p. 436
Straturile peretelui intestinal și structura unei vilozitățiFigura coboară în două trepte de mărire. Panoul din stânga, (a), arată o porțiune de intestin subțire tăiată transversal, cu straturile peretelui vizibile pe capătul tăiat, ca niște inele așezate unul în altul. Panoul din dreapta, (b), mărește o singură vilozitate, cu vasele din interiorul ei și cu tunicile peretelui de sub ea. Drumul ionilor de sodiu și al glucozei printr-o celulă epitelială a vilozității, din lumen până în sânge, este în Figura 18.7 (c). (a) Straturile peretelui intestinal Mucoasa este tunica internă, compusă dintr-un epiteliu ce acoperă un țesut conjunctiv, care conține mici cantități de mușchi neted. Ea conține glandele care secretă enzimele necesare digestiei și mucusul de protecție. Musculara mucoasei este stratul subțire de mușchi desenat la baza mucoasei, între ea și submucoasă. Submucoasa conține vase de sânge, vase limfatice și nervi. Mușchii dispuși circular înconjoară tractul și, prin contracție, îi micșorează diametrul, iar mușchii dispuși longitudinal, așezați în afara lor, îi scurtează lungimea. Seroasa este tunica externă, formată din peritoneul visceral, ale cărui celule secretă un lichid care umectează suprafața organelor și permite alunecarea lor liberă. (b) Structura unei vilozități Suprafața jejunului și a ileonului este crescută de mii de vilozități și microvilozități. Vilozitățile sunt prelungiri ale mucoasei, având formă de deget, iar microvilozitățile sunt prelungiri de dimensiuni electronomicroscopice ale membranei celulelor din mucoasă. În interiorul vilozității se găsește o rețea de capilare, alimentată de o arteriolă și drenată de venule, precum și un vas limfatic central, denumit chiliferul central. Împărțirea sarcinilor între ele este strictă: capilarele primesc produșii de degradare ai proteinelor, glucidelor și acizilor nucleici, adică monozaharidele, aminoacizii și acizii grași cu lanț scurt de carbon, dar și apa, electroliții și vitaminele. chiliferul central primește produșii rezultați în urma digestiei lipidelor. Acizii grași cu lanț lung sunt resintetizați pentru a forma trigliceride, care difuzează apoi în chiliferul central sub formă de picături microscopice numite chilomicroni. Produșii care ajung în capilare și în chiliferul central rezultă din digestia chimică a glucidelor, proteinelor și lipidelor (Figura 18.6).

Fig. 18.7 (c) · Biologie Barron's · p. 436
Absorbția ionilor de sodiu și a moleculelor de glucozăFigura mărește o singură celulă epitelială a mucoasei intestinale și urmărește două exemple, ionul de sodiu ($\ce{Na+}$) și molecula de glucoză, din lumenul intestinal până în capilarul sanguin. Săgețile negre arată drumul lor. Vilozitatea pe care o tapetează aceste celule, cu vasele ei, este în Figura 18.7 (a, b). Drumul prin celulă Ionii și moleculele pornesc din lumenul intestinal. Intră în celulă prin marginea ei dinspre lumen, acoperită de microvilozități, prelungiri de dimensiuni electronomicroscopice ale membranei, care cresc și mai mult suprafața de absorbție a intestinului subțire. Străbat celula epitelială cu ajutorul unei molecule de transport, trec în lichidul interstițial și de acolo în capilarul sanguin. Mecanismele absorbției Pasajul elementelor nutritive prin membrana celulelor epiteliale în lichidul interstițial și apoi în capilare este realizat în mare măsură prin transport activ, cu ajutorul moleculelor transportoare și al ATP-ului. ADP-ul desenat pe drum vine din ATP-ul consumat: când ATP-ul își cedează energia, rezultă adenozin-difosfat (ADP) și un ion fosfat. Absorbția se mai poate produce și prin difuziune, difuziune facilitată și pinocitoză, iar pentru lipide difuziunea reprezintă principalul mecanism de absorbție. Ce ajunge în capilarele sanguine Glucoza, ca toate monozaharidele, este absorbită în capilarele sanguine ale vilozităților intestinale, alături de aminoacizi și de acizii grași cu lanț scurt de carbon. Tot în capilarele sanguine sunt absorbite apa, electroliții, precum ionii de sodiu, și vitaminele. Toate acestea sunt produși ai digestiei chimice (Figura 18.6).
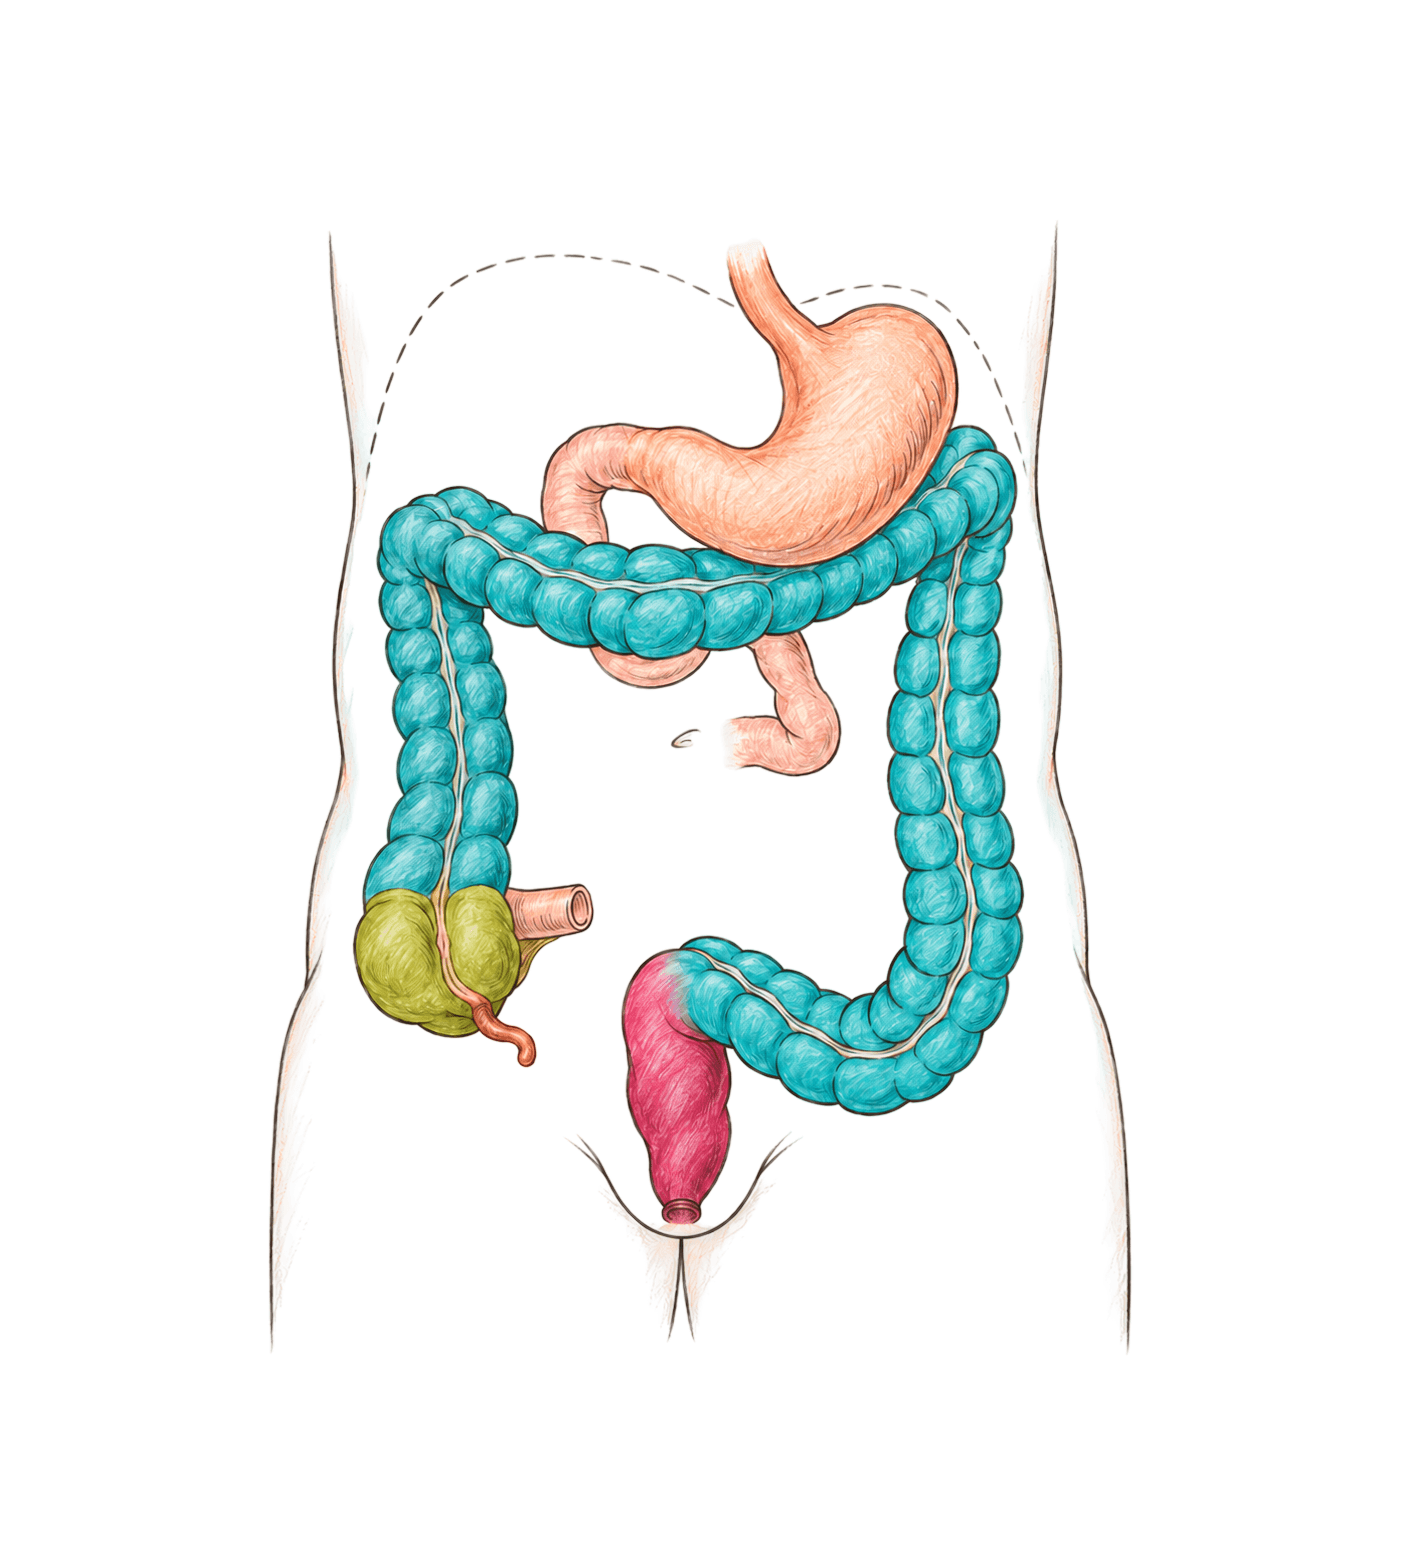
Fig. 18.8 · Biologie Barron's · p. 437
Intestinul gros în poziție anatomicăFigura arată intestinul gros așa cum stă el în cavitatea abdominală, văzut din față. Ca să fie vizibil pe tot traseul, intestinul subțire, de la duoden până la cec, a fost îndepărtat din figură, la fel și ficatul și pancreasul. Linia punctată din partea de sus reprezintă poziția diafragmei, iar stomacul este păstrat ca reper. Din ce este format intestinul gros Intestinul gros este format din cec, colon ascendent, colon transvers, colon descendent, colon sigmoid, rect, canal anal și anus. Poartă această denumire deoarece diametrul său este considerabil mai mare decât diametrul intestinului subțire. Măsoară aproximativ 1,5 m lungime, cu un diametru mediu de 6 cm, iar cea mai mare parte a lui este cunoscută sub denumirea de colon. Peretele lui prezintă numeroase dilatații cu aspect de mici buzunare, numite haustrații. Traseul, urmărit pe desen Alimentele nedigerate pătrund din ileon în colonul ascendent prin valva ileocecală. Chiar sub ea se află cecul, prima porțiune a intestinului gros, din care ia naștere apendicele vermiform. Colonul ascendent se află în poziție verticală, pe partea dreaptă a abdomenului, extinzându-se în sus, spre marginea inferioară a ficatului. Colonul transvers străbate în sens orizontal abdomenul, în apropierea stomacului și a splinei. El se continuă cu colonul descendent la nivelul flexurii splenice. Colonul descendent este poziționat din nou vertical, dar descendent, pe partea stângă a abdomenului. Colonul sigmoid este o structură în formă de S, care coboară și se continuă cu rectul. Rectul înseamnă ultimii 18-20 centimetri ai tractului gastrointestinal. El se continuă cu canalul anal și apoi cu orificiul extern al acestuia, anusul. Ce face intestinul gros Funcțiile lui includ absorbția apei și a ionilor, precum și formarea materiilor fecale. La acest nivel se absorb aproximativ 300-400 ml de apă zilnic, iar principalul ion absorbit este ionul de sodiu. Când absorbția este deficitară, se pierd cantități mari de apă prin materiile fecale, ceea ce duce la diaree. La nivelul intestinului gros nu au loc procese de digestie chimică. O altă funcție importantă este absorbția vitaminelor, unele dintre ele fiind produse chiar de bacteriile care se găsesc în mod normal în intestin. În final, intestinul gros înmagazinează și compactează materialele nedigerate, formând materiile fecale, alcătuite din apă, săruri anorganice, bacterii, celule epiteliale desprinse din tractul gastrointestinal și alimente nedigerate.
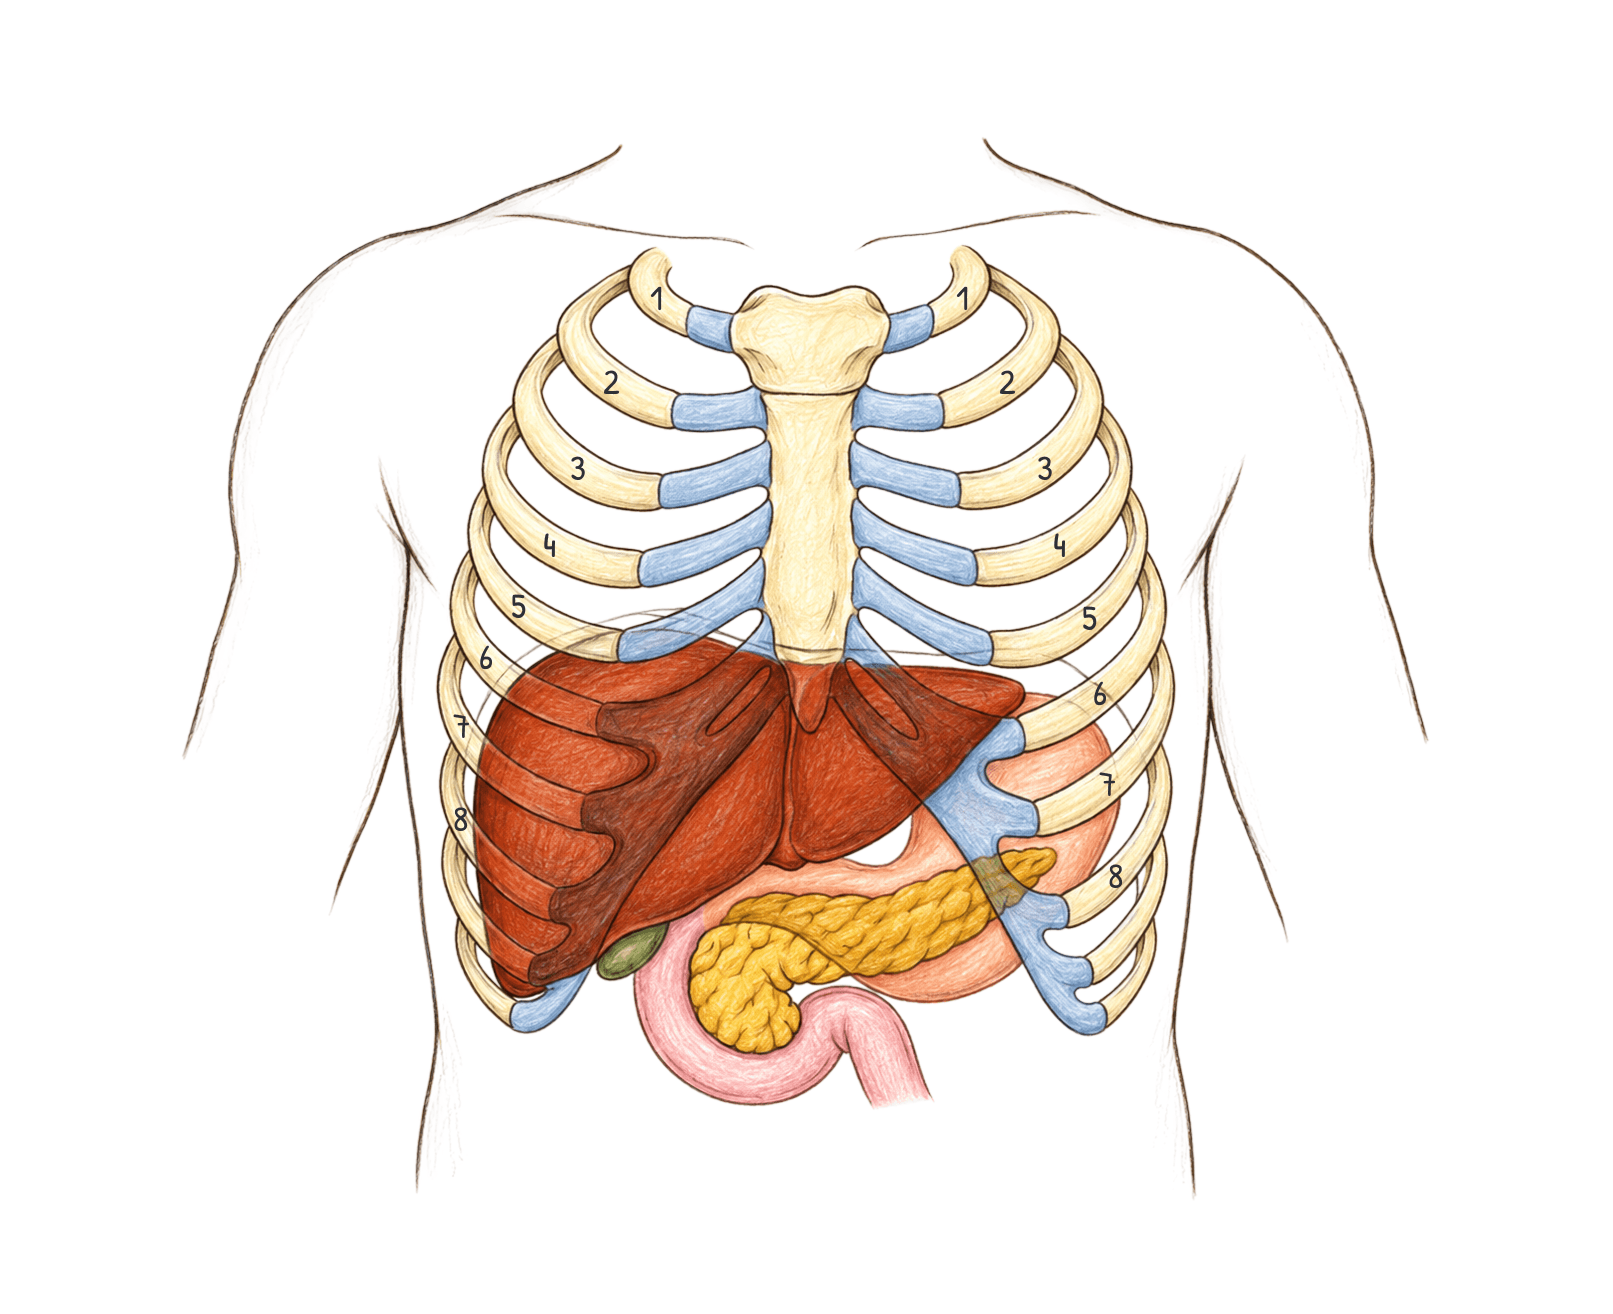
Fig. 18.9 · Biologie Barron's · p. 438
Poziția ficatului și a pancreasului în cavitatea abdominalăFigura arată unde stau ficatul și pancreasul în cavitatea abdominală, văzute dintr-o poziție ventrală, adică din față. Peste organe este desenată cutia toracică, cu coastele numerotate de la 1 la 8, ca să se vadă cât de sus urcă ficatul și câte coaste îl acoperă. Stomacul este desenat transparent, ca să se vadă prin el ce se află în spatele lui. Ficatul, sub diafragmă și sub coaste Ficatul este cea mai mare glandă din organism și unul dintre cele mai importante organe anexe ale tractului gastrointestinal. El se află sub diafragmă și ocupă cea mai mare parte a hipocondrului drept al cavității abdominale. Porțiunea lui superioară este lipită de diafragmă, iar organul este protejat de mai multe coaste, așa cum se vede din desen. Ficatul este divizat în patru lobi: lobul drept, lobul stâng, lobul caudat și lobul pătrat. Lobii sunt subîmpărțiți în lobuli, care conțin celule hepatice (hepatocite) și macrofage (celulele Kupffer). Vezica biliară Vezica biliară se află în partea inferioară a ficatului, pe suprafața lui viscerală, fiind dificil de vizualizat în această poziție. Ea depozitează și concentrează bila produsă de ficat până în momentul în care aceasta este necesară în procesul de digestie (Figura 18.10). Pancreasul, în spatele stomacului Pancreasul este o glandă alungită, de aproximativ 13 cm lungime și 2,5 cm grosime. Este localizat posterior față de marea curbură a stomacului, motiv pentru care în desen se vede prin stomacul transparent, și comunică cu duodenul prin intermediul a două ducte. El are un rol important în sistemul endocrin, dar și în sistemul digestiv (Figura 13.6). Legătura cu duodenul Duodenul îmbracă, în desen, capul pancreasului, sub ficat. Acolo își varsă pancreasul enzimele, iar ficatul și vezica biliară bila, prin ductele care se unesc în ampula hepatopancreatică.
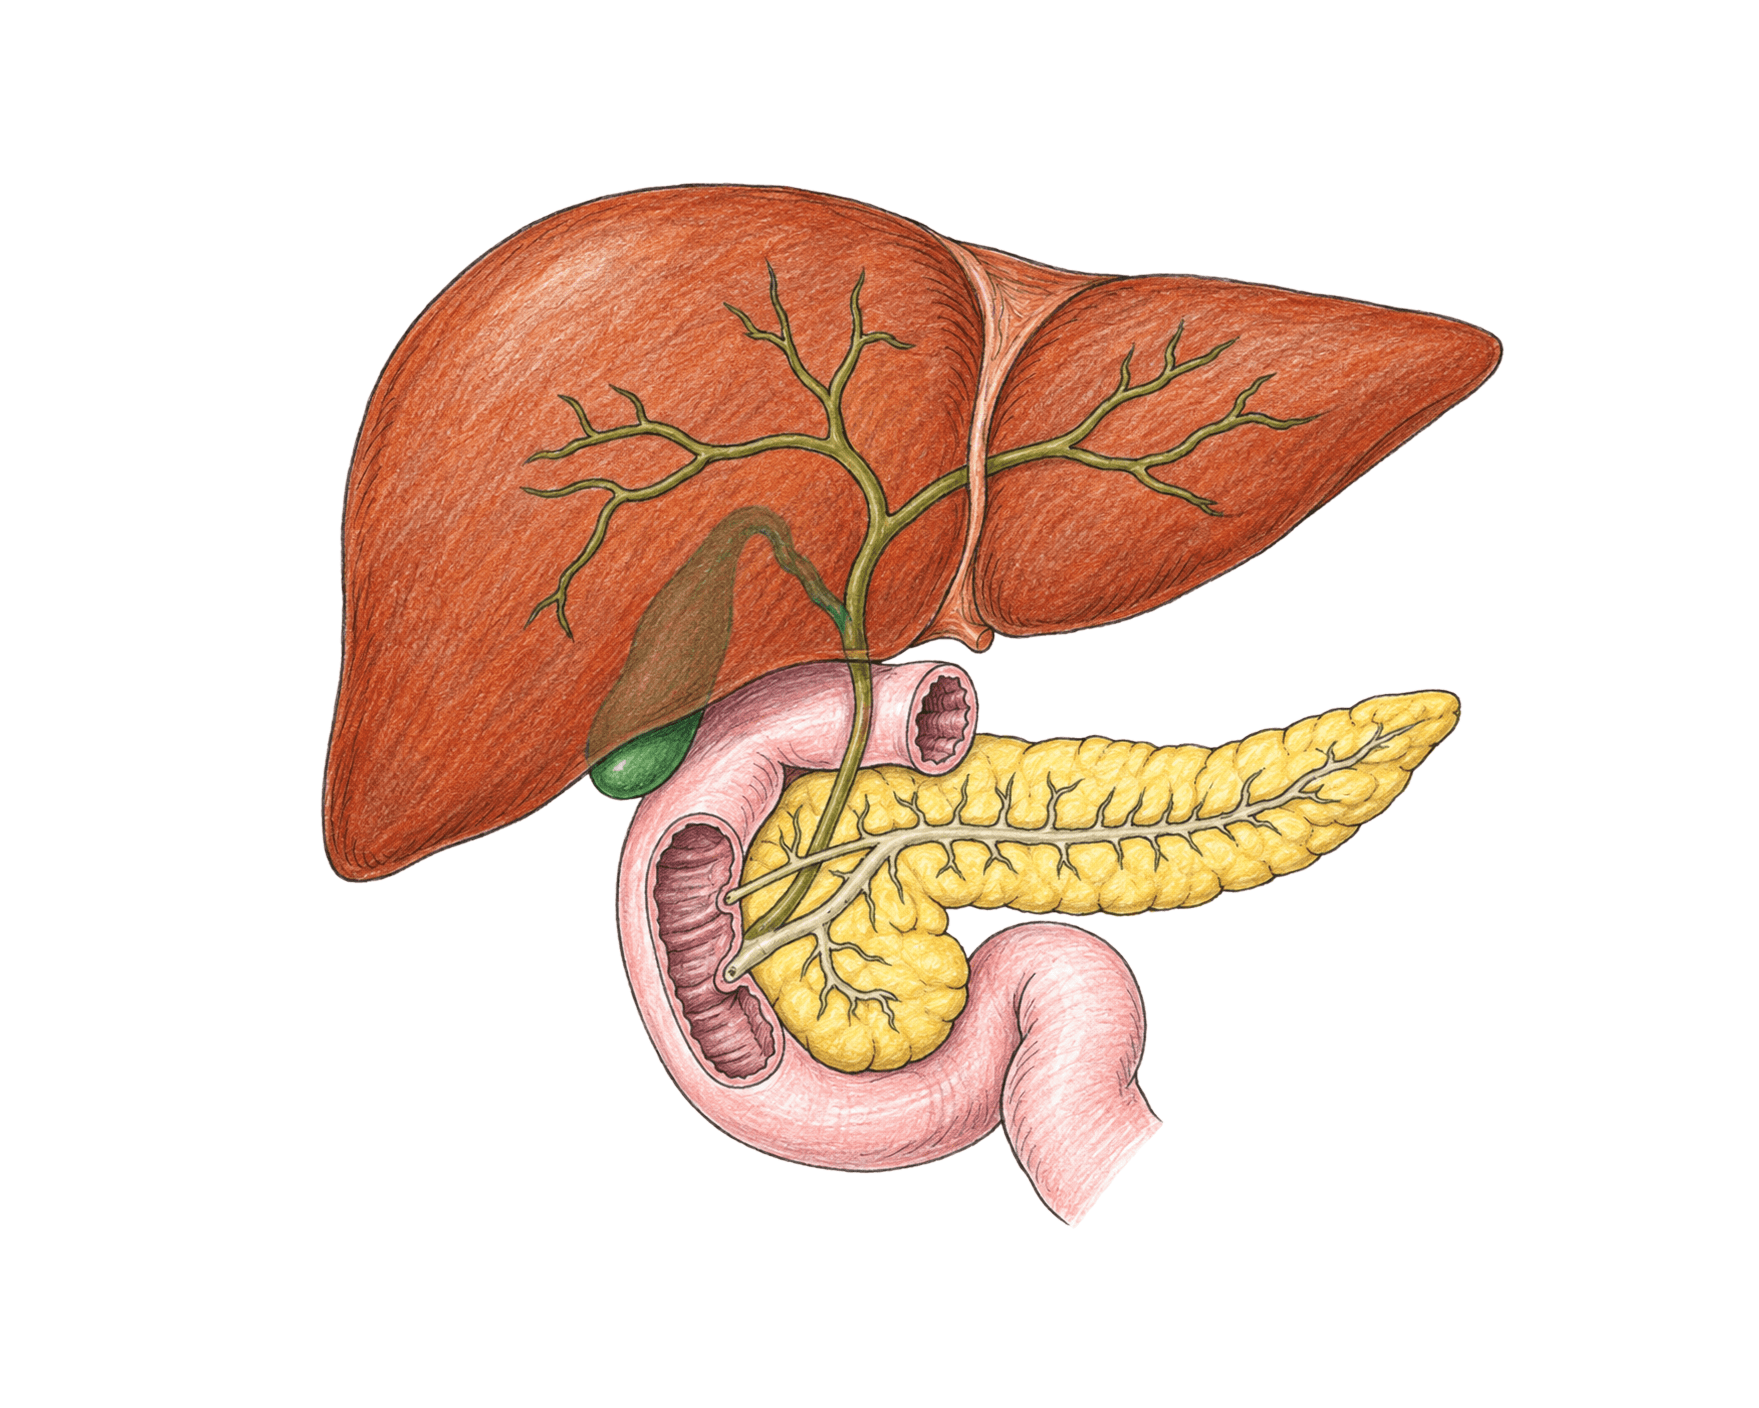
Fig. 18.10 · Biologie Barron's · p. 439
Ficatul, pancreasul și sistemul lor de ducteFigura arată ficatul, pancreasul și ductele lor, observate din poziție ventrală. Ficatul ocupă partea de sus a desenului, duodenul coboară sub el și îmbracă capul pancreasului, iar între ele se vede rețeaua de canale prin care bila și sucul pancreatic ajung în intestin. Toate aceste ducte se unesc la nivelul ampulei hepatopancreatice, la nivelul papilei duodenale (Figura 18.9). Ficatul și vezica biliară Ficatul este cea mai mare glandă din organism. Secreția lui, bila, se varsă în ductele hepatice, care apoi conduc în vezica biliară. Bila produsă de ficat este depozitată în vezica biliară, o structură în formă de pară, localizată pe suprafața viscerală a ficatului, care este drenată și umplută prin ductul cistic. Vezica biliară stochează și concentrează bila până în momentul în care aceasta este necesară în procesul de digestie. Drumul bilei, pas cu pas Bila iese din cei doi lobi mari prin ductul hepatic drept și ductul hepatic stâng. Cele două ducte se unesc și formează ductul hepatic comun. Prin ductul cistic, bila urcă în vezica biliară, unde este stocată, și tot pe acolo coboară atunci când este nevoie de ea. Ductul cistic al vezicii biliare se unește cu ductul hepatic comun și formează ductul biliar, care transportă bila în duoden. Ductul biliar se unește cu ductul pancreatic în ampula hepatopancreatică și se deschide în duoden la nivelul papilei duodenale. Pancreasul și ductele lui Pancreasul este desenat în lungime, cu capul prins în potcoava duodenului, cu corpul în mijloc și cu coada întinsă spre dreapta desenului, cel mai departe de duoden. El comunică cu duodenul prin intermediul a două ducte. Ductul mai mare este numit duct pancreatic, sau ductul Wirsung, iar cel de-al doilea este numit ductul accesoriu sau ductul Santorini. Ductul pancreatic se unește cu ductul biliar de la ficat și vezica biliară și intră în duoden la nivelul ampulei hepatopancreatice, în timp ce ductul accesoriu intră în duoden cu aproximativ 2,5 cm deasupra ampulei. Ce trece prin aceste ducte Bila este un lichid galben-maroniu sau verde-oliv, cu un pH cuprins între 7,6 și 8,6. În compoziția ei intră apă, săruri biliare, colesterol, un fosfolipid numit lecitină, pigmenți biliari și o serie de ioni. Principalul pigment biliar este bilirubina, o substanță derivată din fracțiunea hem a hemoglobinei din globulele roșii distruse (Figura 14.3). Bila nu conține enzime: ea conține bicarbonat pentru neutralizarea acidității gastrice și săruri biliare, care descompun globulele mari de lipide în globule mici, proces numit emulsionare. Sucul pancreatic este un lichid limpede, incolor, ce conține apă, săruri, ioni de bicarbonat și enzime, iar ionii de bicarbonat îi dau un pH ușor alcalin, care neutralizează aciditatea chimului gastric.
- 19Metabolism și nutrițiePaginile 453 - 474

Fig. 19.1 · Biologie Barron's · p. 454
Oxido-reducerea și ATP-ulFigura adună într-un singur loc două lucruri de care depinde toată producerea de energie din celulă. Panoul (a), în stânga, arată cum decurge o reacție de oxido-reducere, tipul de reacție întâlnit în multe dintre căile metabolice. Panoul (b), în dreapta, arată structura moleculei în care este stocată energia produsă, adenozin-trifosfatul (ATP). Cele două panouri se citesc separat, dar se completează: reacțiile din primul panou sunt cele care încarcă molecula din al doilea. (a) Reacția de oxido-reducere Compușii A și B sunt desenați ca două sfere, fiecare în două momente: sus, starea de la începutul reacției, jos, starea de la sfârșitul ei. La început, compusul A poartă cei doi electroni ($\ce{e-}$) desenați, iar compusul B nu îi are. Fiecare săgeată curbă duce un compus din starea de la început în cea de la sfârșit: una duce de la forma redusă la forma oxidată a lui A, cealaltă de la forma oxidată la forma redusă a lui B. Săgețile se încrucișează pentru că cele două schimbări au loc împreună: electronii pe care îi pierde A sunt cei pe care îi primește B. Reacția de oxidare este acea reacție în care substratul cedează electroni și devine oxidat. În desen, A este oxidat, așa că forma redusă a compusului A (sus) devine forma oxidată a compusului A (jos). Reacția de reducere constă în acceptarea de electroni, iar substratul devine astfel redus. B este redus, deci forma oxidată a compusului B (sus) devine forma redusă a compusului B (jos). Felul în care sunt desenate săgețile spune ceva important: cele două procese merg întotdeauna împreună. Fiecare reacție de oxidare este însoțită de una de reducere, pentru că electronii nu pot exista în stare liberă. Oxidarea poate implica și eliminarea unui atom de hidrogen, în timp ce reducerea poate însemna și acceptarea unui atom de hidrogen. (b) Structura adenozin-trifosfatului Molecula este desenată din trei părți, pornind din stânga: Grupurile fosfat, trei la număr, legate în lanț unul după altul. Grupul fosfat terminal este cel din capătul stâng, cel mai departe de riboză. Monozaharidul riboză, inelul de care se prinde lanțul de fosfați printr-un $\ce{CH2}$ și care poartă la bază două grupări $\ce{OH}$. Adenina, baza azotată din dreapta sus, legată de riboză. Împreună cu riboza formează restul de adenozină. Acoladele de sub desen arată că cele trei molecule înrudite se deosebesc doar prin numărul grupărilor fosfat: adenozin monofosfat (AMP) cuprinde adenozina și o singură grupare fosfat, adenozin difosfat (ADP) cuprinde două, iar adenozin trifosfat (ATP) cuprinde toate trei. Așa cum s-a descris în Capitolul 2, molecula de ATP constă dintr-un rest de adenozină și trei grupări fosfat. Cum se eliberează energia Când grupul fosfat terminal este atașat de molecula ATP, aceasta conține 7,3 kcalorii/mol (6x10²³ molecule). Pentru a elibera energia, enzima adenozin-trifosfatază scindează grupul fosfat terminal și îl eliberează ca ion fosfat. Rezultă astfel adenozin-difosfat și un ion fosfat, adică se urcă cu o acoladă pe desen, de la ATP la ADP. Cele două se pot lega din nou pentru a reforma ATP-ul, la fel cum o baterie se reîncarcă, iar energia necesară este obținută de celulă prin respirație celulară (Figura 19.2), în care cea mai mare parte a ATP-ului se sintetizează prin chemiosmoză (Figura 19.7). ATP-ul este produs prin respirație celulară și este materia primă energetică a celulei.

Fig. 19.2 · Biologie Barron's · p. 457
Privire de ansamblu asupra metabolismului glucidelorFigura este harta întregului capitol despre metabolismul glucidelor: arată în ce ordine se succed cele patru mari subdiviziuni ale respirației celulare și unde se petrece fiecare, fără detaliile chimice ale vreuneia. Se citește de sus în jos, urmărind săgețile: din glucidele alimentare se formează glucoza, care este apoi metabolizată prin procesele 1-4 pentru a elibera energie, energie care este stocată în moleculele de ATP, desenate la capătul de jos. Etapele procesului sunt desenate ca dreptunghiuri de aceeași culoare, la fel și cercul ciclului Krebs, iar ovalele sunt ce intră în proces sau rezultă din el. Cele patru etape sunt numerotate de la 1 la 4, cu cifra scrisă în stânga fiecăreia. Fiecare etapă este detaliată mai departe într-o figură proprie. De la glucidele din mâncare la glucoză Glucoza este principala glucidă disponibilă ca sursă de energie în corpul uman. Alte glucide consumate de om sunt fructoza, galactoza, zaharoza, lactoza, maltoza și amidonul, toate fiind transformate în glucoză sau într-un compus înrudit, pentru a fi folosite în metabolismul energetic. De aceea, ovalul „Glucide din mâncare”, desenat deasupra citoplasmei, duce printr-o singură săgeată la „Glucoză”. Unde se petrec reacțiile În procesul respirației celulare, glucidele sunt preluate de către celulă în citoplasmă și mitocondrii pentru a le descompune și a elibera energie. Zona de sus este citoplasma, unde are loc glicoliza. Acidul piruvic format aici trece, pe săgeata lungă, în zona de jos, mitocondria, unde se petrec toate celelalte etape. Unele reacții biochimice au loc așadar în citoplasmă, restul se petrec în mitocondriile celulei. Cele patru etape 1. Glicoliza: moleculele de glucoză sunt transformate în acid piruvic, ovalul de sub această etapă (Figura 19.3). Formarea acetil-CoA, pasul nenumerotat care leagă glicoliza de ciclul Krebs: acidul piruvic ajuns în mitocondrie este pregătit pentru ciclul Krebs și devine acetil-CoA, ovalul de sub această etapă (Figura 19.4). 2. Ciclul Krebs, desenat ca un cerc cu săgeți, pentru că este un ciclu: acetil-CoA pornește reacțiile ciclului, în care moleculele provenite din acidul piruvic sunt degradate în continuare, iar energia din molecule este folosită pentru a forma compuși cu potențial energetic ridicat cum este NADH (Figura 19.5). Săgeata curbă care iese din cerc duce spre etapa 3. 3. Transportul electronilor, care are loc pe lanțul transportor de electroni, scris în paranteză sub numele etapei. Lanțul este o serie de citocromi și coenzime, iar electronii sunt transportați de la unul la altul, eliberându-și energia (Figura 19.6). 4. Chemiosmoza: energia este folosită pentru pomparea transmembranară a protonilor și pentru a furniza energia necesară sintezei ATP-ului (Figura 19.7). Ovalul „Gradient protonic”, dintre etapele 3 și 4, arată cum se leagă cele două: energia eliberată din electroni în lanțul transportor este folosită pentru pomparea protonilor prin membrana mitocondriei, până se stabilește un gradient de protoni. Odată ce gradientul este obținut, protonii trec înapoi, conform gradientului, iar energia lor este folosită pentru sinteza ATP-ului. Ce rămâne la sfârșit Din toată această succesiune, celula obține molecule de ATP. În urma procesului, dioxidul de carbon și apa sunt eliminate ca produși reziduali.

Fig. 19.3 · Biologie Barron's · p. 458
Glicoliza: de la glucoză la acid piruvicFigura desfășoară pe etape prima parte a respirației celulare: glicoliza, procesul prin care o moleculă de glucoză este convertită în două molecule de acid piruvic. Se citește de sus în jos, pornind de la caseta glucozei. Cifrele încercuite de la 1 la 9 numerotează reacțiile, iar substanțele scrise lângă săgețile curbe (ATP, ADP, $\ce{NAD+}$) sunt cele care intră în reacție sau ies din ea. După reacția 4 desenul se dedublează în două coloane identice, pentru că de acolo înainte totul se petrece de două ori. În această cale metabolică acționează cel puțin nouă enzime, iar procesul are loc în citoplasma celulei. Etapele care consumă ATP Glucoza ($\ce{C6H12O6}$) devine glucozo-6-fosfat în reacția 1, apoi fructozo-6-fosfat în reacția 2 și fructozo 1,6-difosfat în reacția 3. În etapele 1 și 3 este folosită câte o moleculă de ATP pentru a furniza energia necesară acestor reacții chimice. Se vede ușor în desen: acolo unde ATP-ul intră în săgeata curbă, din el iese ADP. Ruperea în doi compuși cu 3 atomi de carbon Molecula de glucoză cu 6 atomi de carbon este convertită într-un produs intermediar, care se rupe în doi compuși cu câte 3 atomi de carbon. Aceasta este reacția 4: fructozo 1,6-difosfatul se rupe într-o moleculă de 3 fosfogliceraldehidă, în stânga, și una de dihidroxiaceton fosfat (DHAP), desenată în dreapta și legată de el prin săgeți în ambele sensuri. DHAP se transformă apoi, pe săgețile verticale din dreapta, tot în 3 fosfogliceraldehidă. Așa ajung să existe două molecule de 3 fosfogliceraldehidă, una în fiecare coloană, iar metabolizarea fiecăreia continuă până la acid piruvic. Etapele care produc ATP și NADH În reacția 5, un fosfat anorganic (notat $P_i$ în desen) se atașează, iar doi atomi de hidrogen (2H) sunt preluați de $\ce{NAD+}$, care se transformă în $\ce{NADH + H+}$. Așa se formează acidul 1,3-difosfogliceric și, în același timp, cele două molecule de NADH care vor intra în sistemul transportor de electroni. Urmează reacția 6, în care ADP-ul devine ATP și rezultă acidul 3-fosfogliceric, apoi reacțiile 7 și 8, care duc la acidul 2-fosfogliceric și la acidul fosfoenolpiruvic. În reacția 9 se produce a doua moleculă de ATP a coloanei și se ajunge la acidul piruvic ($\ce{C3H4O3}$). Bilanțul glicolizei În acest proces se utilizează 2 molecule de ATP (în reacțiile 1 și 3) și se produc 4 molecule de ATP (reacțiile 6 și 9, fiecare reacție având loc de două ori), rezultând în final un câștig net de două molecule de ATP. Se mai formează două molecule de NADH și două molecule de acid piruvic. Glicoliza nu necesită oxigen, deci este considerată un proces anaerob. Ce urmează după acidul piruvic De aici, acidul piruvic poate lua două drumuri. În mod obișnuit este pregătit pentru ciclul Krebs prin formarea acetil-CoA (Figura 19.4). În condiții anaerobe, în celulele musculare, apare transformarea enzimatică a acidului piruvic în acid lactic, reacție care eliberează $\ce{NAD+}$ pentru a fi refolosit în glicoliză. Săgețile desenate în sus, lângă fiecare treaptă, arată că se poate merge și înapoi, spre glucoză, cum se întâmplă în gluconeogeneză. Tot pe acest drum înapoi, glicerolul din lipide, transformat în dihidroxiaceton fosfat, poate fi folosit pentru a sintetiza glucoză (Figura 19.9).

Fig. 19.4 · Biologie Barron's · p. 459
Formarea acetil-CoA în mitocondrieFigura arată veriga dintre glicoliză și ciclul Krebs: transformarea acidului piruvic în acetil-CoA. Desenul are două zone. În stânga, în afara mitocondriei, este citoplasma, cu formula acidului piruvic (lanțul $\ce{OH}$, $\ce{C=O}$, $\ce{C=O}$, $\ce{CH3}$). În dreapta este o mitocondrie văzută în secțiune, cu membranele și compartimentele ei. Săgeata groasă orizontală arată drumul acidului piruvic dinspre citoplasmă spre interiorul mitocondriei, iar săgețile curbe din interior arată ce intră și ce iese din reacție. Mitocondria și compartimentele ei Mitocondria posedă o membrană internă și una externă, care o compartimentează. Între ele rămâne spațiul intermembranar, iar spațiul dinăuntru, delimitat de membrana internă, este matricea. Membrana internă este plicaturată și formează criste, cutele care se văd pătrunzând în interiorul organitului. De-a lungul acestor criste se află enzimele importante pentru pompa de protoni și formarea de ATP. Ce se întâmplă cu acidul piruvic Acidul piruvic este format din molecule de glucoză în decursul glicolizei, care are loc în citoplasmă (Figura 19.3). Acidul piruvic intră apoi în mitocondrie, iar în matrice desenul urmărește trei lucruri care se petrec deodată: Pierderea unui atom de carbon. O enzimă acționează asupra moleculei de acid piruvic pentru a elibera un atom de carbon sub forma unei molecule de dioxid de carbon. În desen, $\ce{CO2}$ pleacă pe săgeata curbă îndreptată în sus. Formarea acetil-CoA. Ceilalți 2 atomi de carbon rămași formează grupul acetil, evidențiat lângă formulă printr-un dreptunghi colorat și printr-o acoladă mică. El se combină cu o coenzimă numită coenzima A, care coboară pe săgeata curbă din partea de sus, și formează acetil-coenzima A, molecula întreagă pe care o cuprinde acolada mare din dreapta desenului. Legătura dintre ele se vede în formulă ca $\ce{S-CoA}$. Formarea NADH. În timpul acestui proces sunt transferați la $\ce{NAD+}$ electronii și un ion de hidrogen, pentru a forma NADH cu nivel energetic ridicat. În desen, $\ce{NAD+}$ intră de jos, iar $\ce{NADH + H+}$ iese pe săgeata care coboară. Ce face acetil-CoA mai departe Acetil-CoA se formează chiar în matrice, compartimentul mitocondrial intern. Acolo se unește cu acidul oxaloacetic și pornesc reacțiile ciclului Krebs (Figura 19.5), care are loc tot în mitocondrie. Molecula de NADH formată aici va fi utilizată pentru transportul electronilor.

Fig. 19.5 · Biologie Barron's · p. 460
Ciclul KrebsCiclul Krebs este un set complex de reacții biochimice ce au loc în mitocondria celulei, iar figura îl desenează ca un inel de compuși, fiecare cu formula lui de structură și, în afară de succinil CoA, cu numărul de atomi de carbon trecut în paranteză. Se citește în sensul acelor de ceasornic, pornind din stânga sus, de unde intră acetil-CoA. Cifrele încercuite de la 1 la 9 numerotează reacțiile, iar substanțele de pe săgețile curbe din interiorul și din exteriorul inelului sunt cele care intră sau ies la fiecare pas. Ciclul mai este numit și ciclul acidului citric sau ciclul acizilor tricarboxilici (CAT). Intrarea în ciclu Acetil-CoA ($C_2$), desenată pe fondul portocaliu din stânga sus, se unește cu un acid cu 4 atomi de carbon, numit acid oxaloacetic, și rezultă un acid cu 6 atomi de carbon, numit acidul citric. Aceasta este reacția 1, în care intră și o moleculă de $\ce{H2O}$, iar coenzima A se desprinde și pleacă sub forma HS-CoA. Traseul acizilor Acidul citric suferă o serie de transformări catalizate enzimatic, care implică numeroase reacții chimice produse sub acțiunea enzimelor: Acidul citric ($C6$) trece în acidul cis-aconitic ($C6$) în reacția 2, cu pierderea unei molecule de apă. Acidul cis-aconitic devine acidul izocitric ($C_6$) în reacția 3, prin adăugarea unei molecule de apă. Acidul izocitric devine acidul α cetoglutaric ($C_5$) în reacția 4, pierzând un atom de carbon sub formă de $\ce{CO2}$. Acidul α cetoglutaric trece în succinil CoA în reacția 5, cu încă o moleculă de $\ce{CO2}$ eliberată și cu o moleculă de CoA acceptată. Succinil CoA devine acidul succinic ($C_4$) în reacția 6, cu eliberarea coenzimei A. Acidul succinic trece în acidul fumaric ($C4$) în reacția 7, apoi în acidul malic ($C4$) în reacția 8, cu adăugarea unei molecule de apă. Acidul malic devine din nou acid oxaloacetic ($C_4$) în reacția 9, și inelul se închide. Ce se recoltează pe parcurs În multe din etapele ciclului se eliberează electroni cu nivel energetic ridicat către moleculele de $\ce{NAD+}$. Acestea primesc, de asemenea, și protoni și devin molecule de NADH: în desen, cele trei ovale portocalii cu NADH apar la reacțiile 4, 5 și 9. În reacția 7, FAD servește ca acceptor de electroni și acceptă doi atomi de hidrogen, devenind $\ce{FADH2}$. În reacția 6 se eliberează suficientă energie pentru a sintetiza o moleculă de ATP, prin bucla în care GDP devine GTP, iar apoi ADP devine ATP. Bilanțul și soarta produșilor Pentru că din cele două molecule de acid piruvic rezultă două molecule de acetil-CoA, care intră fiecare în câte un ciclu Krebs, în acest stadiu al respirației celulare rezultă două molecule de ATP formate dintr-o moleculă de glucoză. În cele două cicluri se formează șase molecule de NADH și două molecule de $\ce{FADH2}$, care vor fi acum utilizate în sistemul transportor de electroni (Figura 19.6). Cele două molecule de $\ce{CO2}$ ale unui ciclu, împreună cu cea formată la sinteza acetil-CoA (Figura 19.4), reprezintă carbonul din acidul piruvic rezultat din glicoliză și, la origine, din glucoză. Moleculele de $\ce{CO2}$ difuzează în afara celulei și în cele din urmă sunt îndepărtate din organism prin plămâni în timpul expirației. Acidul oxaloacetic format la sfârșit este identic cu cel care inițiază ciclul și este gata să accepte o nouă moleculă de acetil-CoA.

Fig. 19.6 · Biologie Barron's · p. 462
Lanțul transportor de electroniFigura desenează lanțul transportor de electroni ca o scară care coboară de la stânga sus spre dreapta jos. Fiecare treaptă este un transportor, iar săgeata din stânga arată ce se întâmplă pe măsură ce coborâm: de la nivel energetic ridicat, în sus, la nivel energetic scăzut, în jos. Pe săgețile curbe dintre trepte, bilele mici, albastru închis, sunt electronii, iar bilele portocalii, mai mari, sunt protonii. Cele trei săgeți groase care ies în sus, marcate ATP, arată locurile unde energia eliberată ajunge pentru sinteza unei molecule de ATP, din ADP și fosfat (ADP+P). Transportul electronilor are loc de-a lungul cristelor mitocondriei, unde sunt localizate coenzimele și citocromii implicați în acest proces. De unde vin electronii În partea de sus, săgeata „Reacțiile glicolizei și ale ciclului Krebs” aduce pe prima treaptă 2 electroni și 2 protoni. În lanțul transportor de electroni sunt folosite moleculele de NADH și $\ce{FADH2}$, rezultate din ciclul Krebs și glicoliză. Aceste molecule cedează electronii lor unei serii de pigmenți ce conțin fier (citocromi) și altor coenzime. Cum coboară electronii, treaptă cu treaptă Ordinea transportorilor, așa cum sunt desenați de sus în jos, este: NAD, FAD, citocromi Q, citocromi B, citocromi C, citocromi A, citocromi A₃ și, la capăt, citocromoxidaza și oxigenul. Citocromii și coenzimele își transferă electronii unul altuia și energia din electroni se pierde treptat, dar nu se risipește în mediul înconjurător. Protonii și cele trei molecule de ATP Energia rezultată din transferul electronilor este folosită pentru a pompa protoni prin membrana mitocondriei, din matrice în spațiul intermembranar. În desen, protonii pot fi urmăriți pe primele trepte. Perechea pornește ca „2 electroni, 2 protoni”, iar după prima treaptă este notată „2 electroni, 1 proton”. Pe treapta NAD i se alătură, printr-o linie punctată, un proton notat „Proton din matrice”, iar pe treapta FAD o săgeată duce doi protoni spre eticheta „Protoni către spațiul intermembranar”. Sub treapta FAD, pe scară coboară doar cei doi electroni. Cele trei linii orizontale care traversează scara, fiecare cu ADP+P scris dedesubt, marchează cele trei căderi de energie suficient de mari pentru a sintetiza câte o moleculă de ATP. Capătul lanțului Electronii transportați de citocromi și coenzime sunt în final preluați de oxigen printr-o reacție catalizată de enzima citocrom-oxidază. Primind doi electroni, atomii de oxigen devin încărcați electric negativ. Pentru a-și echilibra încărcătura electrică, oxigenul va prelua doi protoni din soluție (cei doi $\ce{H+}$ desenați în dreapta), formând astfel o moleculă de apă, iar $\ce{H2O}$ apare la baza desenului. Așadar, apa este un produs rezidual important al metabolismului. Oxigenul este receptorul final de electroni în lanțul transportor de electroni. Dacă el nu ar fi disponibil, electronii nu ar mai putea fi eliberați din coenzime și citocromi, pompa de protoni nu ar funcționa și ATP-ul nu s-ar mai putea produce. Energia adunată sub formă de gradient de protoni este folosită pentru sinteza moleculelor de ATP în procesul chemiosmozei (Figura 19.7).

Fig. 19.7 · Biologie Barron's · p. 463
Chemiosmoza și sinteza ATP-uluiFigura arată pasul în care se produce efectiv ATP-ul: chemiosmoza. Desenul este o bucățică de membrană mitocondrială, văzută dintr-o parte, cu matricea mitocondrială deasupra și spațiul intermembranar dedesubt. Sub desen se află legenda simbolurilor: cerc violet pentru transportorul de electroni, cerc galben cu plus pentru proton, două puncte pentru perechea de electroni și un cerc galben cu plus însoțit de două puncte pentru molecula de apă. Literele de la (a) la (e) marchează etapele procesului, în ordine, iar (f) marchează un proton alăturat unei perechi de electroni, adică simbolul moleculei de apă din legendă. Etapele, în ordinea literelor (a) Coenzimele care transportă electroni, rezultate din ciclul Krebs, inițiază procesul. În desen, săgeata „Din ciclul Krebs” aduce, în stânga sus, o pereche de electroni pe un transportor. (b) Electronii sunt eliberați din coenzime și trec printr-o serie de citocromi, cercurile înșiruite în grosimea membranei. (c) Energia este folosită pentru pomparea protonilor prin membrana mitocondrială, din matrice în compartimentul extern, adică în spațiul intermembranar, iar protonii se adună în acest compartiment. Săgețile subțiri care coboară prin membrană spre spațiul intermembranar sunt tocmai protonii pompați. (d) Instantaneu, ei traversează înapoi membrana, în matrice. Aceasta este săgeata groasă „Protoni care reintră”, care urcă spre canalul ce străbate ATP-sintetaza. (e) În acest pasaj, energia fluxului de protoni este folosită pentru sinteza moleculelor de ATP, din ADP și fosfat (ADP + P), așa cum arată săgeata care se întoarce spre eticheta ATP, deasupra membranei, în matrice. Structurile din desen Membrana mitocondrială este banda curbată care traversează imaginea și desparte cele două compartimente. În grosimea ei sunt înfipți citocromii, pe unde trec electronii, și ATP-sintetaza, străbătută de un canal. Protonii adunați în spațiul intermembranar se întorc în matrice numai prin acest canal, iar enzima folosește energia lor pentru a genera ATP, utilizând ca substrat ADP și ioni fosfat. Chemiosmoza are loc la nivelul cristelor mitocondriale, iar denumirea vine de la faptul că procesul implică o mișcare a unor compuși chimici (protoni) printr-o membrană semipermeabilă. Cât ATP se obține Energia produsă în timpul respirației celulare prin chemiosmoză este substanțială. Dintr-o singură moleculă de glucoză se pot produce în total 34 de molecule de ATP pe această cale. Adăugând cele două molecule de ATP care rezultă din ciclul Krebs și cele două produse prin glicoliză, se formează în total 38 de molecule de ATP. Ele nu pot fi depozitate pentru o perioadă lungă de timp, iar respirația celulară trebuie să continue pentru a regenera moleculele de ATP pe măsură ce sunt folosite. Electronii care intră aici în membrană vin din lanțul transportor de electroni (Figura 19.6).
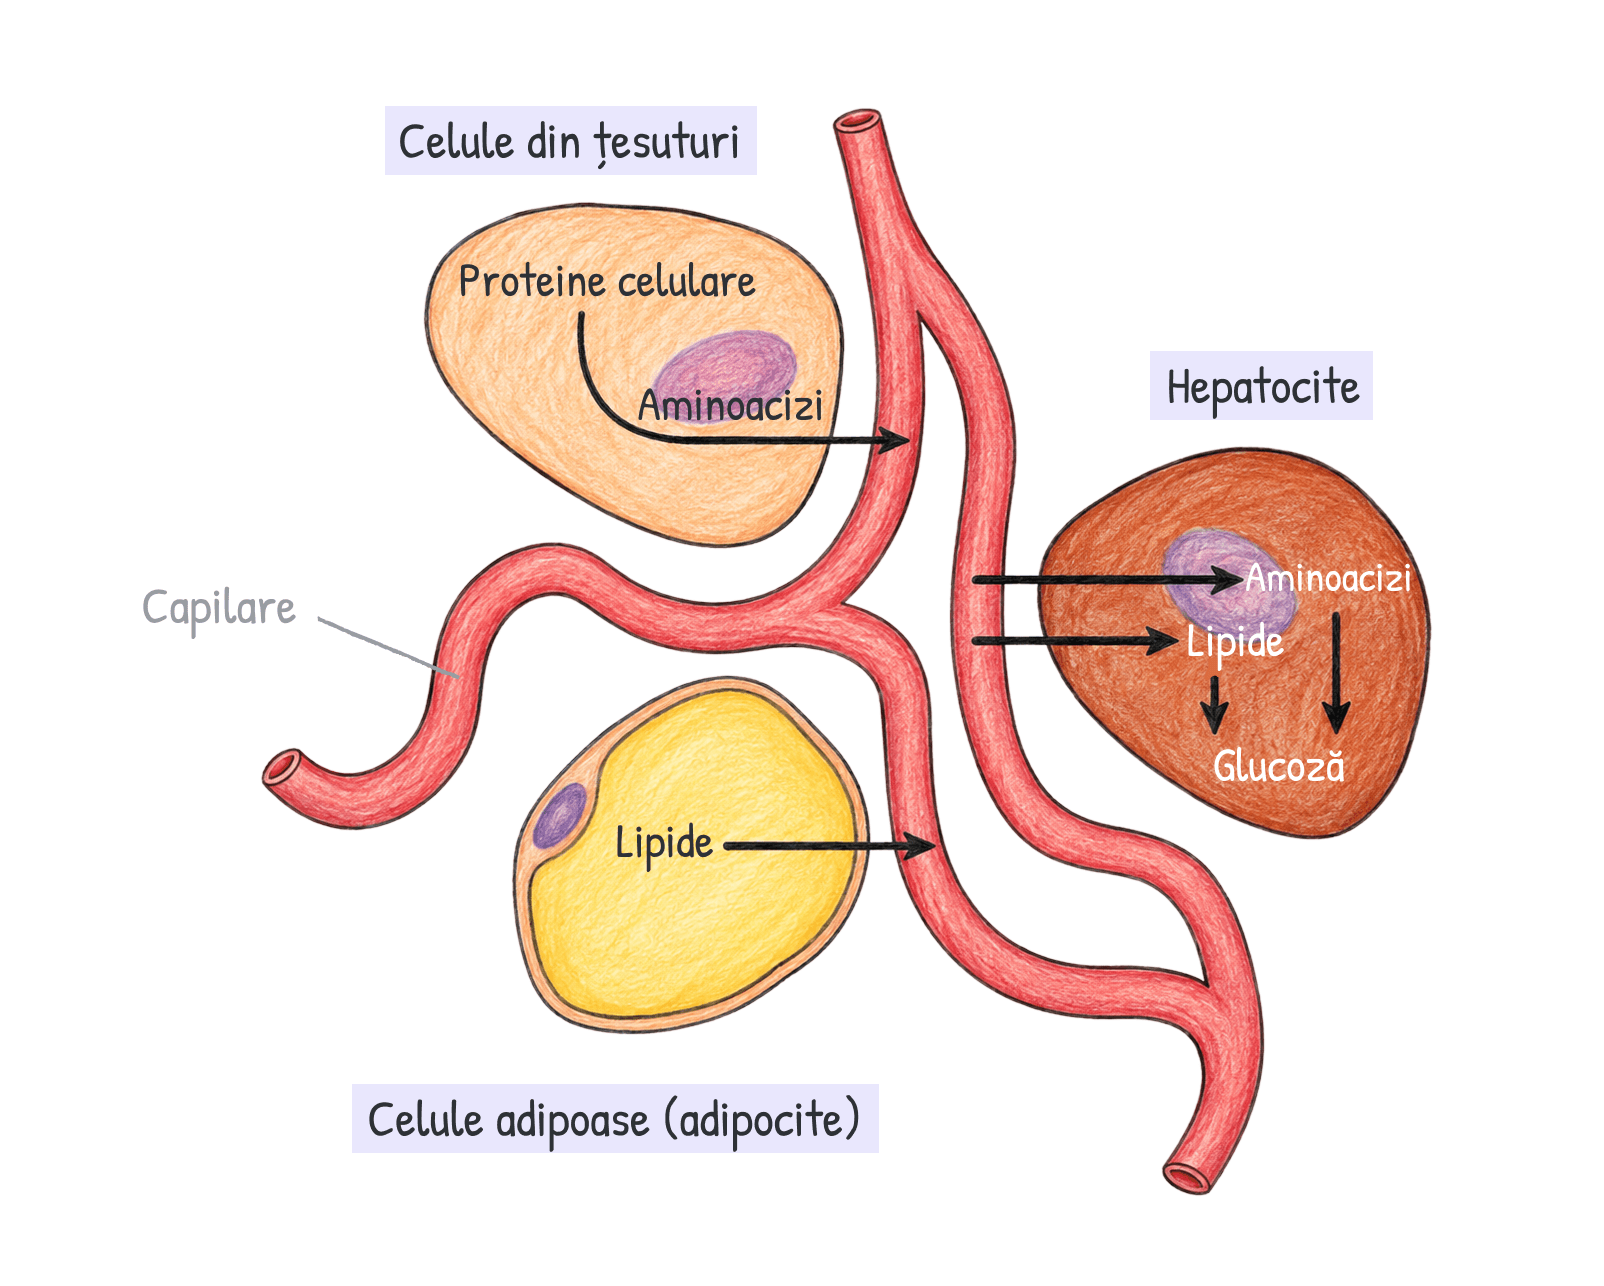
Fig. 19.8 · Biologie Barron's · p. 464
Gluconeogeneza: de la țesuturi la ficatFigura urmărește drumul pe care îl fac substanțele neglucidice până ajung să fie transformate în glucoză. Procesul gluconeogenezei transformă molecule neglucidice (non-carbohidrați) în molecule de glucoză pentru a fi folosite în metabolismul energetic. Desenul are trei celule și o rețea de vase care le leagă: sus, în stânga, o celulă dintr-un țesut, jos o celulă adipoasă, iar în dreapta un hepatocit. Săgețile arată mereu același sens, dinspre celulele care cedează materie primă spre capilare și, prin ele, spre ficat. Ce pleacă din celulele țesuturilor În celulele din țesuturi, proteinele celulare sunt descompuse în aminoacizi, care intră în capilarele sanguine. Săgeata care iese din celulă și intră în vas arată tocmai acest pas. Ce pleacă din celulele adipoase Lipidele sunt obținute din celulele adipoase și intră, la rândul lor, în capilar. De acolo sunt transportate împreună cu aminoacizii la ficat. Ce se întâmplă în ficat În hepatocit intră, prin două săgeți paralele, aminoacizii și lipidele. Înăuntru, ambele săgeți coboară spre același produs, glucoza. Procesul complex de transformare în molecule de glucoză are loc în ficat: acolo, unii aminoacizi pot fi folosiți pentru sinteza glucozei printr-un proces complex, iar moleculele de glicerol și acid lactic pot fi și ele transformate în glucoză prin gluconeogeneză. Gluconeogeneza printre celelalte procese ale ficatului Ficatul are trei feluri de a lucra cu glucoza, ușor de confundat între ele. Moleculele de glucoză sunt stocate în ficat sub formă de glicogen atunci când glicemia este ridicată, iar procesul de formare a glicogenului se numește glicogenogeneză. Când nivelul glicemiei este scăzut, glicogenul este scindat și glucoza este eliberată în fluxul sanguin, proces numit glicogenoliză, accelerat de glucagon și de epinefrină (adrenalină). Gluconeogeneza, cea din figură, este producerea de glucoză din surse neglucidice: unii aminoacizi, glicerol și acid lactic. Legătura dintre aceste căi și reacțiile glicolizei este arătată în Figura 19.9.

Fig. 19.9 · Biologie Barron's · p. 466
Metabolismul glucozei și al lipidelor: glicogen, glicerol și acizi grașiFigura pune alături câteva aspecte ale metabolismului glucozei și al lipidelor, folosind ca axă chiar calea glicolizei. Cheia citirii stă în felul săgeților: majoritatea legăturilor sunt desenate de două ori, cu o săgeată continuă și una întreruptă, câte una pentru fiecare sens. Excepție face trecerea de la acid piruvic la acetil-CoA, desenată o singură dată, cu săgeată continuă: din acetil-CoA nu se mai poate merge înapoi spre acid piruvic și glucoză. Coloana din mijloc coboară de la glucoză spre ciclul Krebs, iar din ea se ramifică depozitele: glicogenul, în vârful coloanei, și lipidele, în stânga jos. Coloana din mijloc: calea glicolizei De sus în jos se înșiruie glucozo-6-fosfat, fructozo-6-fosfat, fructozo-1,6-difosfat, gliceraldehid 3 fosfat și acid piruvic. De la acidul piruvic pleacă o moleculă de $\ce{CO2}$, iar ce rămâne devine acetil-CoA, care intră în ciclul Krebs, schițat jos cu linie întreruptă. Pe traseul lui sunt trecute acidul citric, un compus cu 5 atomi de carbon și acidul oxaloacetic, plus cele două molecule de $\ce{CO2}$ care se degajă. Detaliile acestei căi sunt în Figura 19.3, iar ale ciclului în Figura 19.5. Ramura glicogenului Moleculele de glucoză pot fi convertite în glicogen astfel: glucoza se transformă mai întâi în glucoză-6-fosfat, apoi aceasta în glucoză-1-fosfat și apoi în glicogen, pe săgeata curbă de sus. Săgeata întreruptă care coboară din caseta glicogenului arată drumul invers, cel pe care glicogenul este scindat și glucoza este eliberată. Ramura lipidelor În stânga jos, caseta lipidelor se leagă printr-o acoladă de doi compuși, glicerolul și acizii grași, fiecare intrând în coloana din mijloc în alt punct: Glicerolul se leagă de gliceraldehid 3 fosfat. În procesul de degradare a lipidelor, molecula de glicerol este separată de acizii grași, iar în citoplasmă enzimele o convertesc în dihidroxi-aceton-fosfat (DHAP), compus intermediar al glicolizei, care se transformă ușor în gliceraldehid 3 fosfat, punctul în care îl leagă desenul. Acizii grași se leagă direct de acetil-CoA. Ei sunt metabolizați în mitocondria celulei, unde sunt convertiți în fragmente de câte 2 unități de carbon (acetil-CoA), printr-un proces cunoscut ca beta-oxidare. O singură moleculă de acid gras cu 16 atomi de carbon duce la formarea a opt molecule de acetil-CoA și la circa 129 de molecule de ATP. Pentru sinteza lipidelor din glucoză se folosesc glicerol și acizi grași (săgeți întrerupte). Observați cum ambii compuși derivă din compuși ai glicolizei. Pentru degradarea lipidelor (săgeți continue), alte enzime fac ca reacțiile chimice să se desfășoare în sens invers. Ce se învață din schemă Schema biochimică arată cum un aport abundent de glucoză poate duce la o creștere a rezervelor de glicogen și de lipide ale corpului. Când dieta este bogată în glucide, glucoza este convertită în lipide prin procesul numit lipogeneză. Moleculele de acetil-CoA folosite în sinteza lipidelor sunt în general obținute din molecule de glucoză, ceea ce asigură tocmai mecanismul de conversie a glucozei în acizi grași.

Fig. 19.10 (a) · Biologie Barron's · p. 468
Dezaminarea aminoacizilor și formarea ureeiFigura arată chimia amănunțită a unei singure transformări din metabolismul proteic, dezaminarea, urmată de formarea ureei. Pentru a putea fi utilizate în metabolismul energetic, proteinele sunt mai întâi degradate la aminoacizi. Punctele în care aminoacizii intră în căile energetice, după ce au fost dezaminați, sunt în Figura 19.10 (b). Dezaminarea În stânga este scrisă formula acidului glutamic, dat ca exemplu de aminoacid. Deasupra săgeții groase stă numele enzimei, iar dedesubt intră în reacție $\ce{H2O}$ și $\ce{NAD+}$, din care iese $\ce{NADH + H+}$. În această reacție chimică, gruparea amino ($\ce{-NH2}$) este desprinsă din aminoacid de către enzima dezaminaza și este folosită pentru a forma o moleculă de amoniac. Comparați cele două formule: acolo unde acidul glutamic avea $\ce{NH2}$ și $\ce{H}$, produsul are un atom de oxigen legat dublu. Așa se obține un cetoacid, un compus care în mod normal se regăsește undeva în secvența metabolică a glicolizei sau a ciclului Krebs, iar alături de el rămâne $\ce{NH3}$, amoniacul. Ciclul ureei Partea de jos a figurii urmărește ce se întâmplă cu amoniacul rămas. Molecula de amoniac trece printr-o serie ciclică de reacții enzimatice numite ciclul ureei, unde se unește cu molecule de dioxid de carbon pentru a forma ureea. În desen, casetele $\ce{NH3}$ și $\ce{CO2}$ intră în cercul ciclului, iar din cerc iese caseta ureei, cu formula ei, $\ce{H2N-CO-NH2}$. Ureea ajunge în sânge și este eliminată de către rinichi.

Fig. 19.10 (b) · Biologie Barron's · p. 468
Intrarea aminoacizilor în ciclul KrebsFigura privește metabolismul proteic în ansamblu și arată în ce puncte ale căilor energetice intră aminoacizii, după ce au fost dezaminați. Chimia dezaminării și formarea ureei sunt în Figura 19.10 (a). Unde intră aminoacizii în ciclul Krebs Ciclul Krebs este desenat ca un cerc simplu, cu acetil-CoA venind de sus, iar în jurul lui stau casetele cu numărul de aminoacizi care intră în fiecare punct: Șase aminoacizi diferiți sunt transformați direct sau indirect în acid piruvic. Alți opt aminoacizi sunt convertiți la acetil-CoA prin dezaminare. Doi aminoacizi diferiți sunt transformați în acid oxaloacetic și alți doi în acid fumaric. Patru aminoacizi intră la nivelul acidului α cetoglutaric și trei la nivelul acidului succinic. Din fiecare conversie rezultă uree: fiecare casetă are lângă ea o săgeată mică pe care scrie $\ce{NH2}$ și care duce la cuvântul „Uree”. Ciclul Krebs în care intră toți acești compuși este cel din Figura 19.5. Când folosește organismul această cale Transformarea aminoacizilor în compuși energetici are loc în ficat, mai ales atunci când dieta este bogată în proteine. Molecula obținută poate fi utilizată pentru a obține energie în procesul respirației celulare sau, alternativ, pentru a forma molecule de acetil-CoA folosite la sinteza de acizi grași în procesul lipogenezei.

Fig. 19.11 · Biologie Barron's · p. 469
Starea de absorbție și starea postabsorbtivăFigura este o comparație a nivelului de nutrienți din sânge în timpul stării de absorbție (postprandiale) și a stării postabsorbtive (de post), cele două stări metabolice în care se poate afla organismul uman. Fiecare stare are o coloană de casete, iar cele două coloane sunt despărțite de linia punctată din mijloc și așezate la aceleași înălțimi, ca stările să poată fi comparate pas cu pas. Fiecare coloană se citește de sus în jos: întâi semnalul (nivelul glucozei din sânge), apoi răspunsul hormonal, raportul dintre cei doi hormoni, procesele pe care acesta le pornește și, în caseta de jos, nivelul celor patru nutrienți în sânge. Semnalul de sus declanșează starea, iar săgețile din caseta „În sânge” sunt efectul proceselor. De aceea, în starea de absorbție glucoza apare crescută sus și scăzută jos, iar în starea postabsorbtivă invers. Trecerea dintre stări După consumul unui prânz, organismul este în stare de absorbție, când substanțele nutritive sunt absorbite din tractul gastrointestinal în circulația sanguină. Când aceste procese de absorbție s-au încheiat, organismul intră în stare postabsorbtivă, iar necesitățile lui sunt acoperite doar din substanțele prezente în corp. La următorul prânz, organismul revine în starea de absorbție. Coloana din stânga: starea de absorbție Semnal și hormoni: glucoza din sânge crește, nivelul de insulină este ridicat, iar glucagonul scade, deci raportul insulină/glucagon crește (Figura 13.7). Procesele pornite: urmează formarea de glicogen, lipide și proteine, adică depozitarea surplusului adus de masă. Glucoza este transportată în celule, care o utilizează ca sursă principală de energie. Excesul de glucide este depozitat ca glicogen și lipide: ficatul convertește excesul de glucide în grăsime sau glicogen. Glucoza din sânge scade spre normal. Aminoacizii sunt folosiți pentru sinteza proteinelor, iar excesul este stocat tot sub formă de lipide. Aminoacizii din sânge scad. Acizii grași: ficatul eliberează cea mai mare parte a lipidelor în circulația sanguină, pentru a fi transportate la celulele țesutului adipos, unde sunt depozitate. Acizii grași din sânge scad, pentru că sunt depozitați, iar insulina oprește descompunerea grăsimilor. Corpii cetonici: insulina oprește descompunerea grăsimilor, așa că se formează puțini corpi cetonici. Corpii cetonici din sânge scad. Coloana din dreapta: starea postabsorbtivă Semnal și hormoni: glucoza din sânge scade, nivelul glucagonului este ridicat, iar insulina scade, deci raportul insulină/glucagon scade. Procesele pornite: urmează hidroliza glicogenului, a lipidelor și a proteinelor, la care se adaugă gluconeogeneza. Glucoza: organismul menține nivelul glucozei sanguine în homeostazie. Sursele de glucoză sunt suplimentate prin hidroliza glicogenului din ficat și prin gluconeogeneză (Figura 19.8). Glucoza din sânge crește spre normal. Aminoacizii provin din hidroliza proteinelor. În perioadele de post prelungit, organismul folosește în scop energetic proteinele musculare care nu sunt esențiale pentru funcționarea celulară. Aminoacizii din sânge cresc. Acizii grași provin din hidroliza lipidelor. Aproape toate țesuturile și organele depind acum în primul rând de lipide ca sursă de energie. Acizii grași din sânge cresc. Corpii cetonici se formează din catabolismul lipidelor, iar când acesta este accelerat se formează o cantitate mare de corpi cetonici. Corpii cetonici din sânge cresc. De ce contează diferența Folosirea lipidelor ca sursă de energie în starea postabsorbtivă economisește glucoza, pentru ca ea să fie folosită cu predilecție de către sistemul nervos, care în mod normal utilizează glucoza ca principală sursă de energie. Ficatul folosește, de asemenea, acizi grași, economisind astfel aminoacizii săi pentru a-i folosi în sinteza glucozei. Ca rezultat al acestor adaptări, o persoană poate supraviețui fără aport alimentar multe zile, în condițiile unei hidratări corespunzătoare.
- 20Sistemul urinarPaginile 485 - 497

Fig. 20.1 · Biologie Barron's · p. 486
Poziția sistemului urinar în corpul umanFigura arată unde se așază organele sistemului urinar în corpul uman, într-o vedere anterioară a trunchiului. Peste conturul corpului sunt desenate cutia toracică și, sub ea, cei doi rinichi, cu ureterele care coboară până la vezica urinară. Linia punctată care traversează figura la nivelul coastelor reprezintă poziția diafragmei, așa că poți vedea dintr-o privire cât de sus urcă de fapt rinichii, deasupra lor rămânând doar diafragma și plămânii. Rinichii Rinichii sunt localizați pe peretele abdominal posterior, în afara peritoneului (retroperitoneal). Ei se află lateral de coloana vertebrală și sunt susținuți în poziție de către țesutul adipos și conjunctiv. Merită observată poziția lor față de coaste: în desen, partea superioară a fiecărui rinichi urcă până în dreptul ultimelor coaste și se suprapune peste capetele lor. La adult, fiecare rinichi cântărește în medie 175 de grame și este aproximativ de mărimea unui pumn. Prin formarea urinei din plasma sanguină, rinichii reglează compoziția și concentrația lichidelor extracelulare care înconjoară celulele. Ei reglează volumul plasmei sanguine și, astfel, contribuie la reglarea presiunii sanguine, controlează concentrația produșilor de degradare din sânge, reglează concentrația electroliților plasmatici (inclusiv a ionilor de sodiu, potasiu, carbonați și bicarbonați) și contribuie la menținerea echilibrului acido-bazic din plasmă (pH-ul). Ureterele și vezica urinară Fiecare rinichi eliberează urina formată într-un organ cavitar cunoscut sub numele de pelvis renal. Din pelvisul renal, urina este condusă printr-un tub lung, numit ureter, iar din ureter se varsă în vezica urinară. În figură, cele două uretere coboară aproape vertical prin abdomen, iar vezica urinară apare jos, în pelvis, ca un sac rotunjit în care ajung amândouă. Ce nu se vede în figură Sub vezica urinară se vede doar începutul tubului care duce urina la exterior. Uretra nu este marcată aici, dar o vei găsi în Figura 20.8. Nici structura internă a rinichiului nu apare la această scară, ea este detaliată în Figura 20.2.
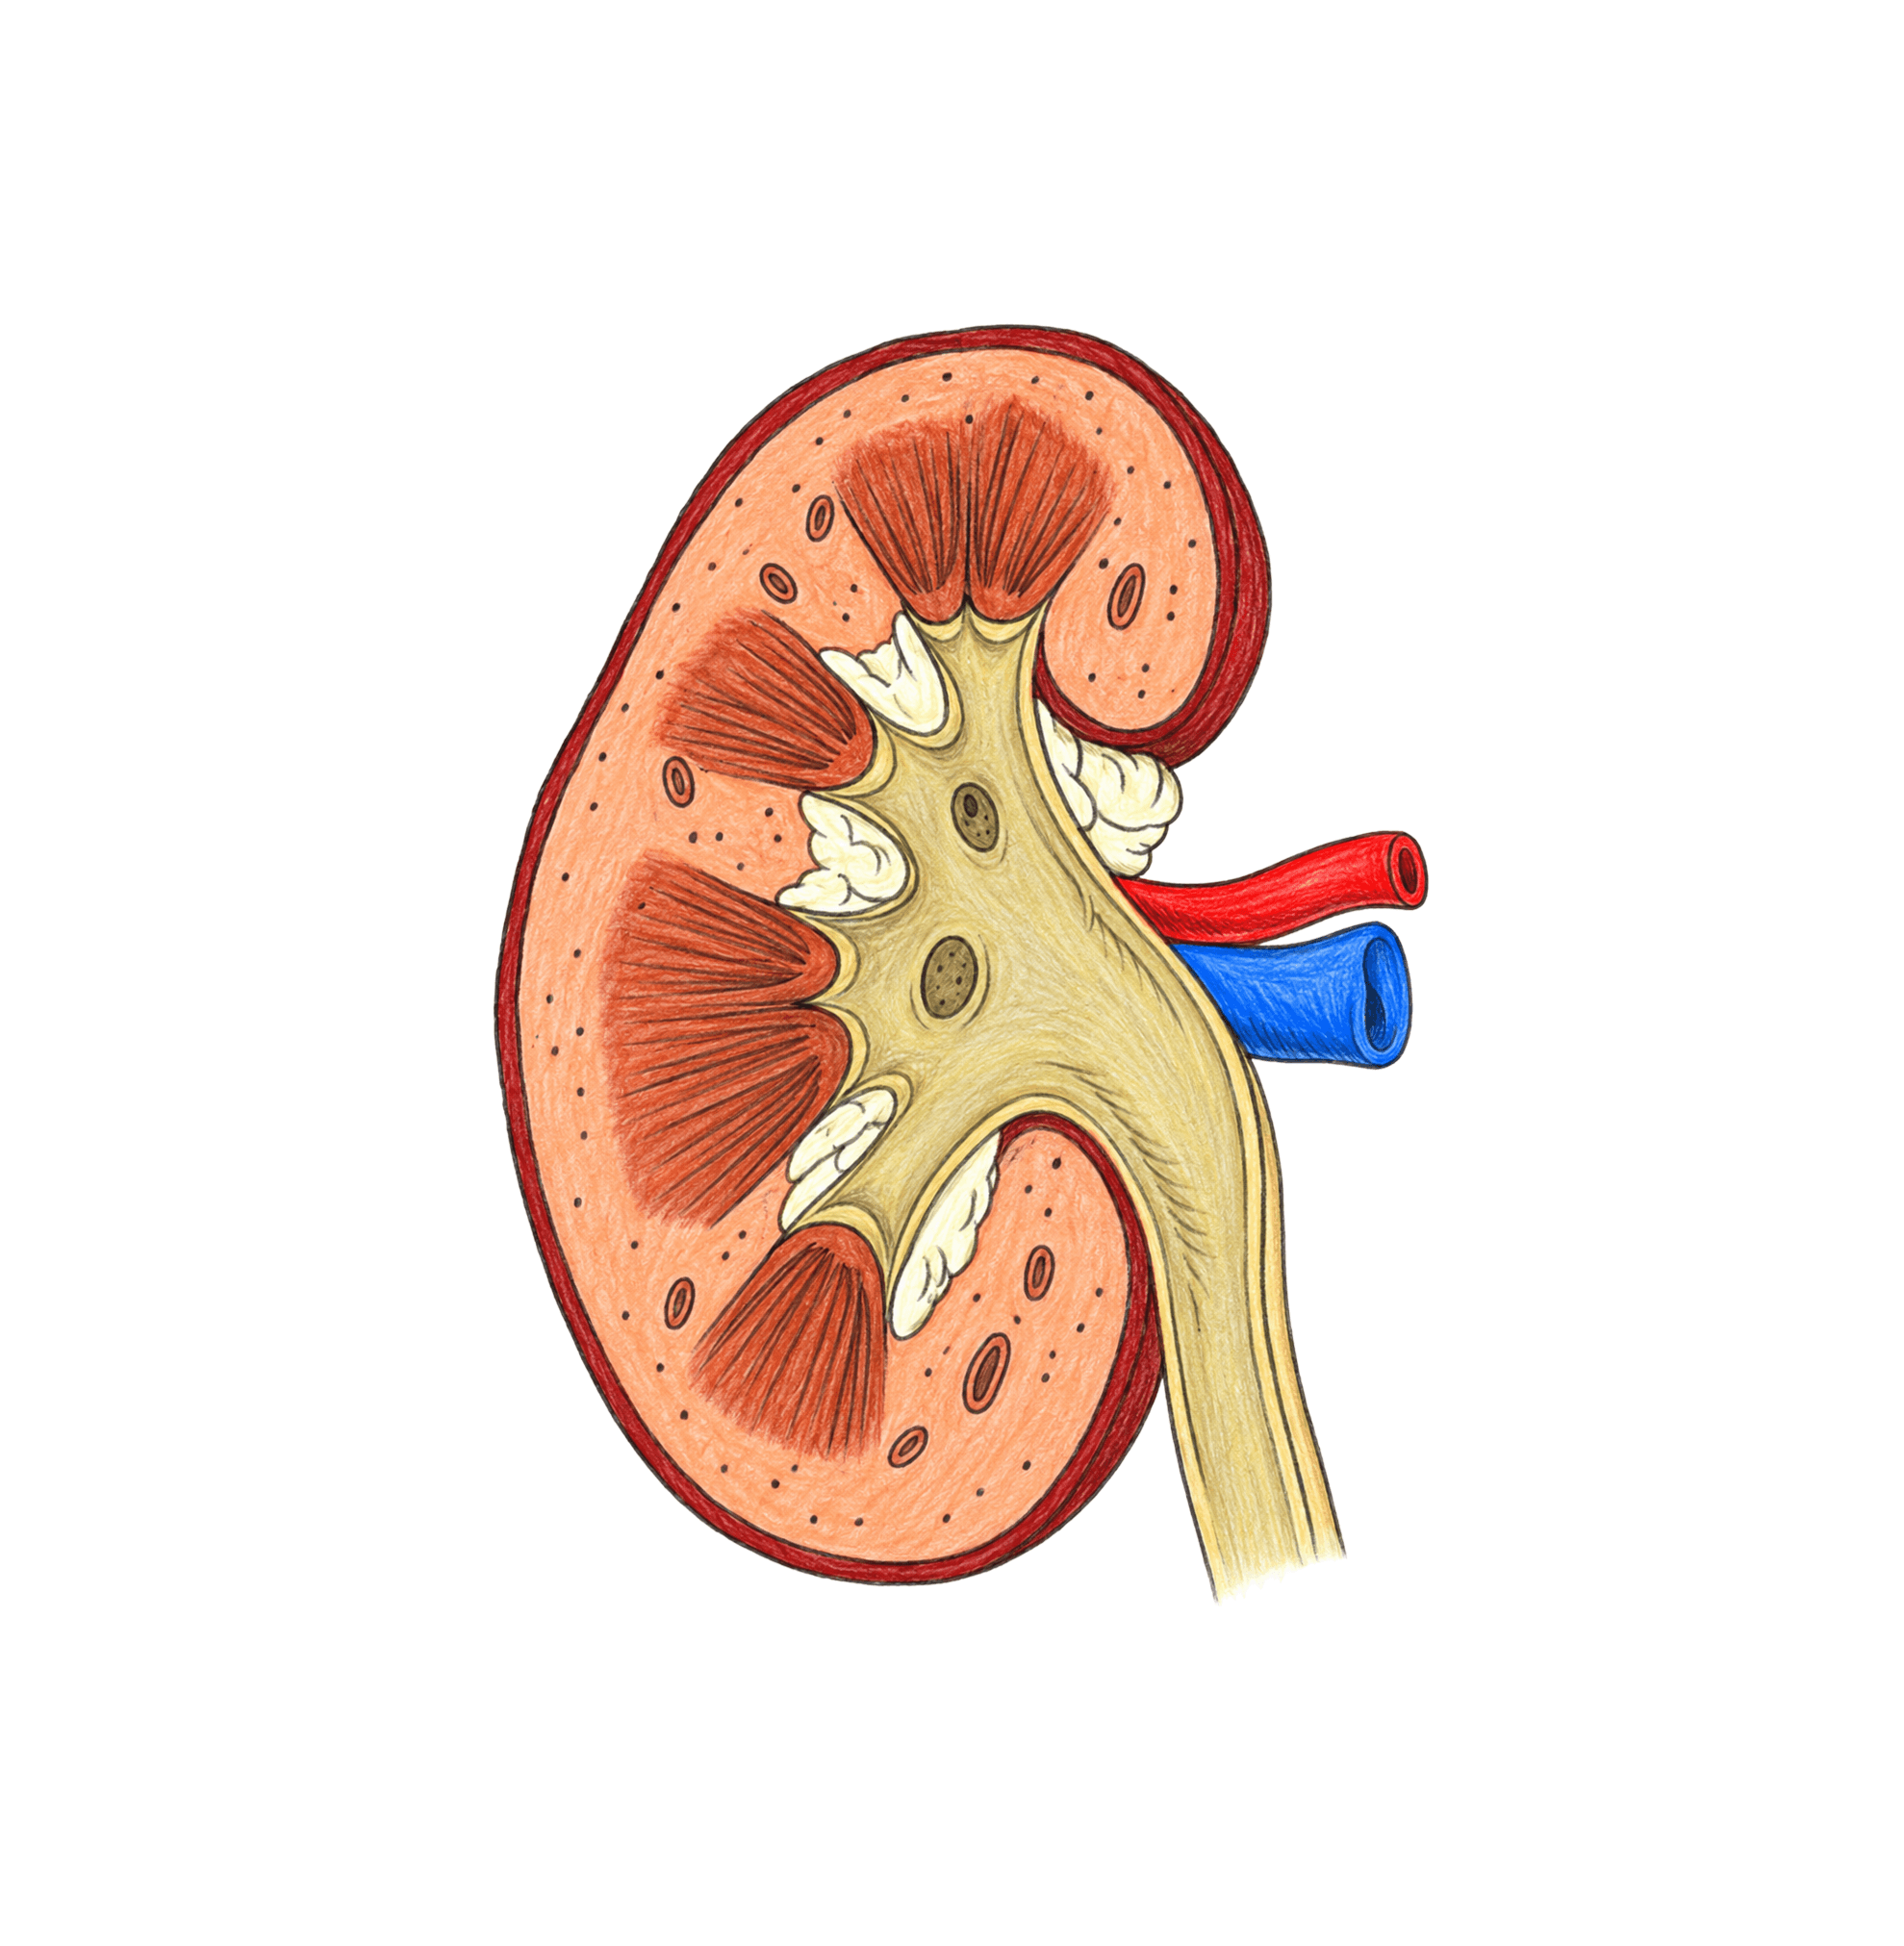
Fig. 20.2 (a) · Biologie Barron's · p. 487
Secțiunea frontală a rinichiuluiFigura arată rinichiul întreg, tăiat printr-o secțiune frontală, cu regiunile lui, cu vasele care intră și ies prin hil și cu drumul urinei până în ureter. Nefronii nu se văd la această scară: o felie din corticală și medulară, mărită până apar nefronii, și un singur nefron mărit sunt în Figura 20.2 (b, c). Regiunile rinichiului O secțiune frontală prin rinichi evidențiază două regiuni distincte: o regiune externă numită cortex (corticala renală) și o regiune profundă numită medulară. La exterior, rinichiul este învelit de o capsulă formată din țesut fibros de culoare albicioasă. Medulara renală este compusă din numeroase formațiuni triunghiulare, numite piramide renale, printre care se află prelungiri ale corticalei renale, numite coloane renale. Drumul urinei Vârful fiecărei piramide renale, papila renală, se deschide într-o cavitate mică, numită calicele mic. Câteva calice mici se unesc pentru a forma un calice mare, iar calicele mari converg în pelvisul renal, o structură în formă de pâlnie. Din pelvisul renal, urina este condusă printr-un tub lung, numit ureter, până în vezica urinară. Urmărește în desen acest drum, de la calicele mici spre calicele mari, apoi spre pelvisul renal și spre ureter. Vasele și hilul Pe suprafața medială, rinichiul prezintă o depresiune concavă, numită hil, prin care se văd intrând și ieșind artera renală, vena renală și ureterul. Sângele arterial pătrunde în rinichi prin artera renală, iar vena renală este cea care drenează sângele din rinichi.

Fig. 20.2 (b, c) · Biologie Barron's · p. 487
Așezarea nefronilor în rinichi și structura unui nefronFigura coboară de la rinichi la nefron în două trepte de mărire. Panoul (b) mărește o felie din corticala și medulara renală, ca să apară nefronii. Panoul (c) mărește un singur nefron atât cât să i se vadă tubii, unul câte unul. Săgeata pornește dintr-un nefron al panoului (b) și duce la el. Rinichiul întreg, în secțiune frontală, din care este luată felia din (b), este în Figura 20.2 (a). (b) Corticala și medulara mărite Cortexul renal și medulara renală sunt reprezentate mărit, astfel încât să se poată observa nefronii. Porțiunea dilatată a fiecărui nefron este capsula glomerulară și stă în corticală. Tubii coboară în medulară și apoi se întorc către cortex. Aici, ei se unesc cu niște tubi, care se vor deschide prin papilele renale în calicele mici. Panoul arată astfel exact locul în care nefronul se termină și încep căile urinare. (c) Nefronul mărit Un nefron este alcătuit din mai multe structuri, desenate aici în continuarea una alteia: capsula, ce înconjoară glomerulul, tubul contort proximal, ramura descendentă a ansei Henle, ansa Henle, ramura ascendentă a ansei Henle și tubul contort distal. La capăt, tubul distal se varsă în tubul colector. Observă localizarea capsulei și continuitatea ei cu tubul proximal, ansa Henle, tubul distal și tubul colector. De reținut Nefronul este unitatea funcțională a rinichiului și structura la nivelul căreia se formează urina. Fiecare rinichi conține mai mult de un milion de nefroni. Un nefron se compune din vase mici, care transportă sânge, și un set de tubi care transportă un fluid, filtratul, derivat din plasmă și obținut prin filtrare glomerulară. Dintre vasele mici, panoul (c) desenează doar firele subțiri de la capsulă, prin care sângele ajunge la glomerul și pleacă de la el. Rețeaua capilarelor peritubulare nu este ilustrată aici, dar o găsești în Figura 20.4.
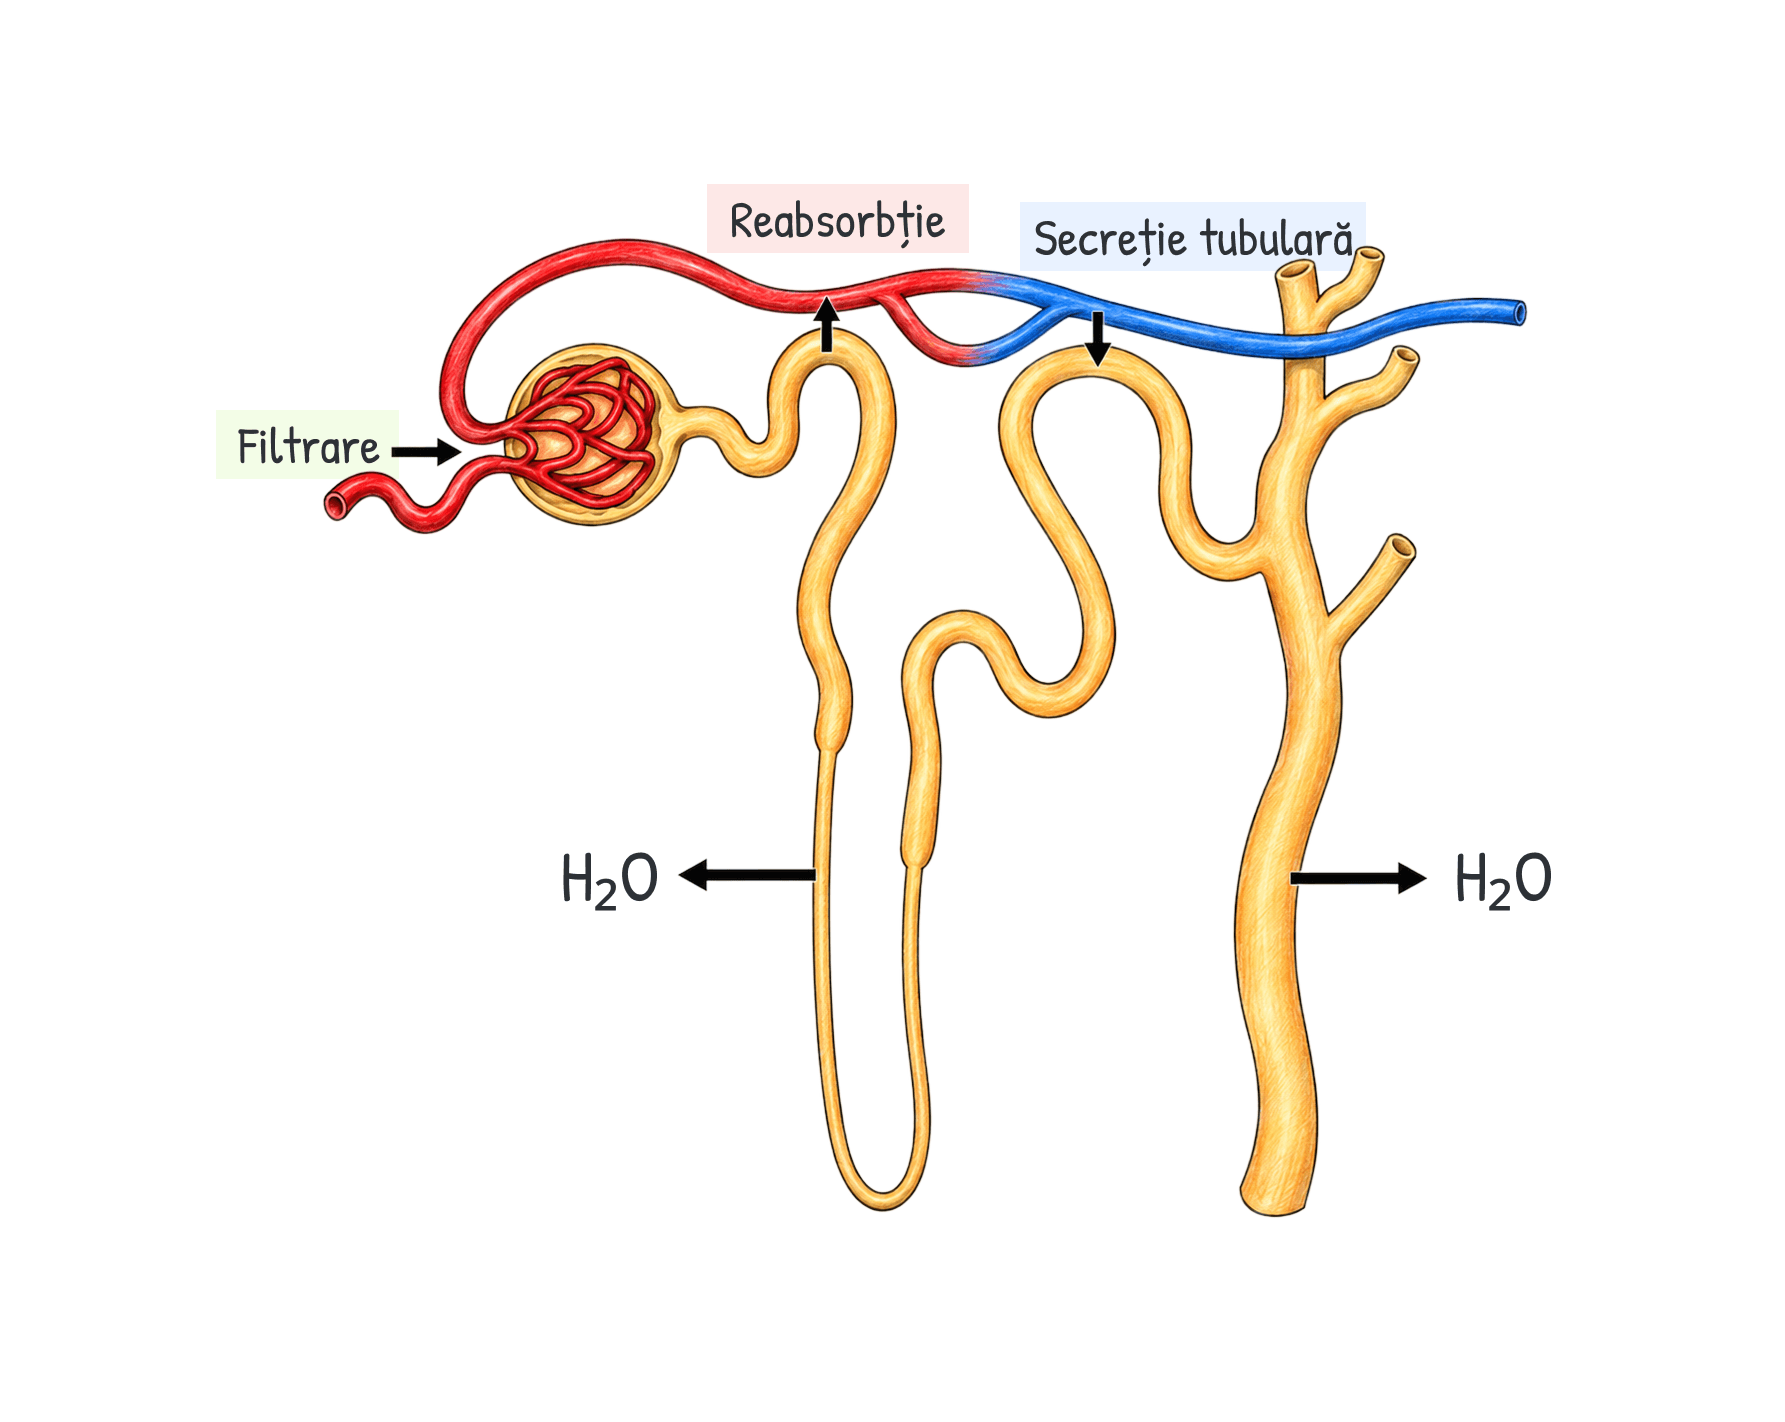
Fig. 20.3 · Biologie Barron's · p. 488
Schema simplificată a funcției nefronuluiFigura este o schemă simplificată a funcției nefronului, desenată ca un singur traseu pe care îl poți urmări cu degetul. Tubii nefronului sunt tubul galben care coboară și urcă în mijlocul desenului. Vasele de sânge formează traseul roșu care intră din stânga, se încolăcește într-un ghem în interiorul capsulei Bowman, iese, se așază peste tubi și se continuă spre dreapta cu traseul albastru, în care sângele părăsește rinichiul. Cele trei casete numesc, fiecare exact acolo unde se petrece, câte unul dintre procesele prin care nefronul formează urina. Traseul sângelui Sângele arterial pătrunde în rinichi prin artera renală și ajunge, prin arteriola aferentă, la ghemul de capilare din capsula Bowman. Sângele va părăsi acest ghem prin intermediul arteriolei eferente, care formează apoi rețeaua capilarelor peritubulare, dispusă peste tubii nefronului. Capilarele peritubulare drenează în vene mici, care se unesc și formează în cele din urmă vena renală. Filtrare În timpul procesului de filtrare, fluidul trece din sânge în capsula Bowman. Săgeata casetei „Filtrare” arată exact locul în care se petrece acest lucru, acolo unde vasul aduce sângele în capsulă. Filtratul astfel obținut intră în tubi, unde va fi modificat. Reabsorbție În timpul procesului de reabsorbție, substanțele trec din filtrat în capilarele peritubulare ce iau naștere din arteriola eferentă. Săgeata desenată sub caseta „Reabsorbție” urcă din tub spre capilar, deci arată sensul acestei treceri. Secreție tubulară Fluidul trece apoi prin ansa Henle și, prin secreție tubulară, primește mai multe substanțe, din capilarele peritubulare. Săgeata de sub caseta „Secreție tubulară” coboară din capilar spre tub, adică exact invers față de cea a reabsorbției. Merită comparate cele două săgeți vecine, pentru că tocmai sensul lor deosebește cele două procese. Apa și urina Cele două săgeți marcate $\ce{H2O}$ ies în afara tubilor, una din dreptul ansei Henle și una din dreptul tubului colector, și arată apa care părăsește nefronul. Sângele trece apoi într-o venă, în timp ce fluidul rezultat, numit acum urină, este preluat de tubul colector. De reținut Nefronul formează urina prin trei procese: filtrare, reabsorbție și secreție. O variantă mai detaliată a aceluiași traseu, cu tubii și capilarele desenate așa cum se împletesc de fapt, este Figura 20.4.
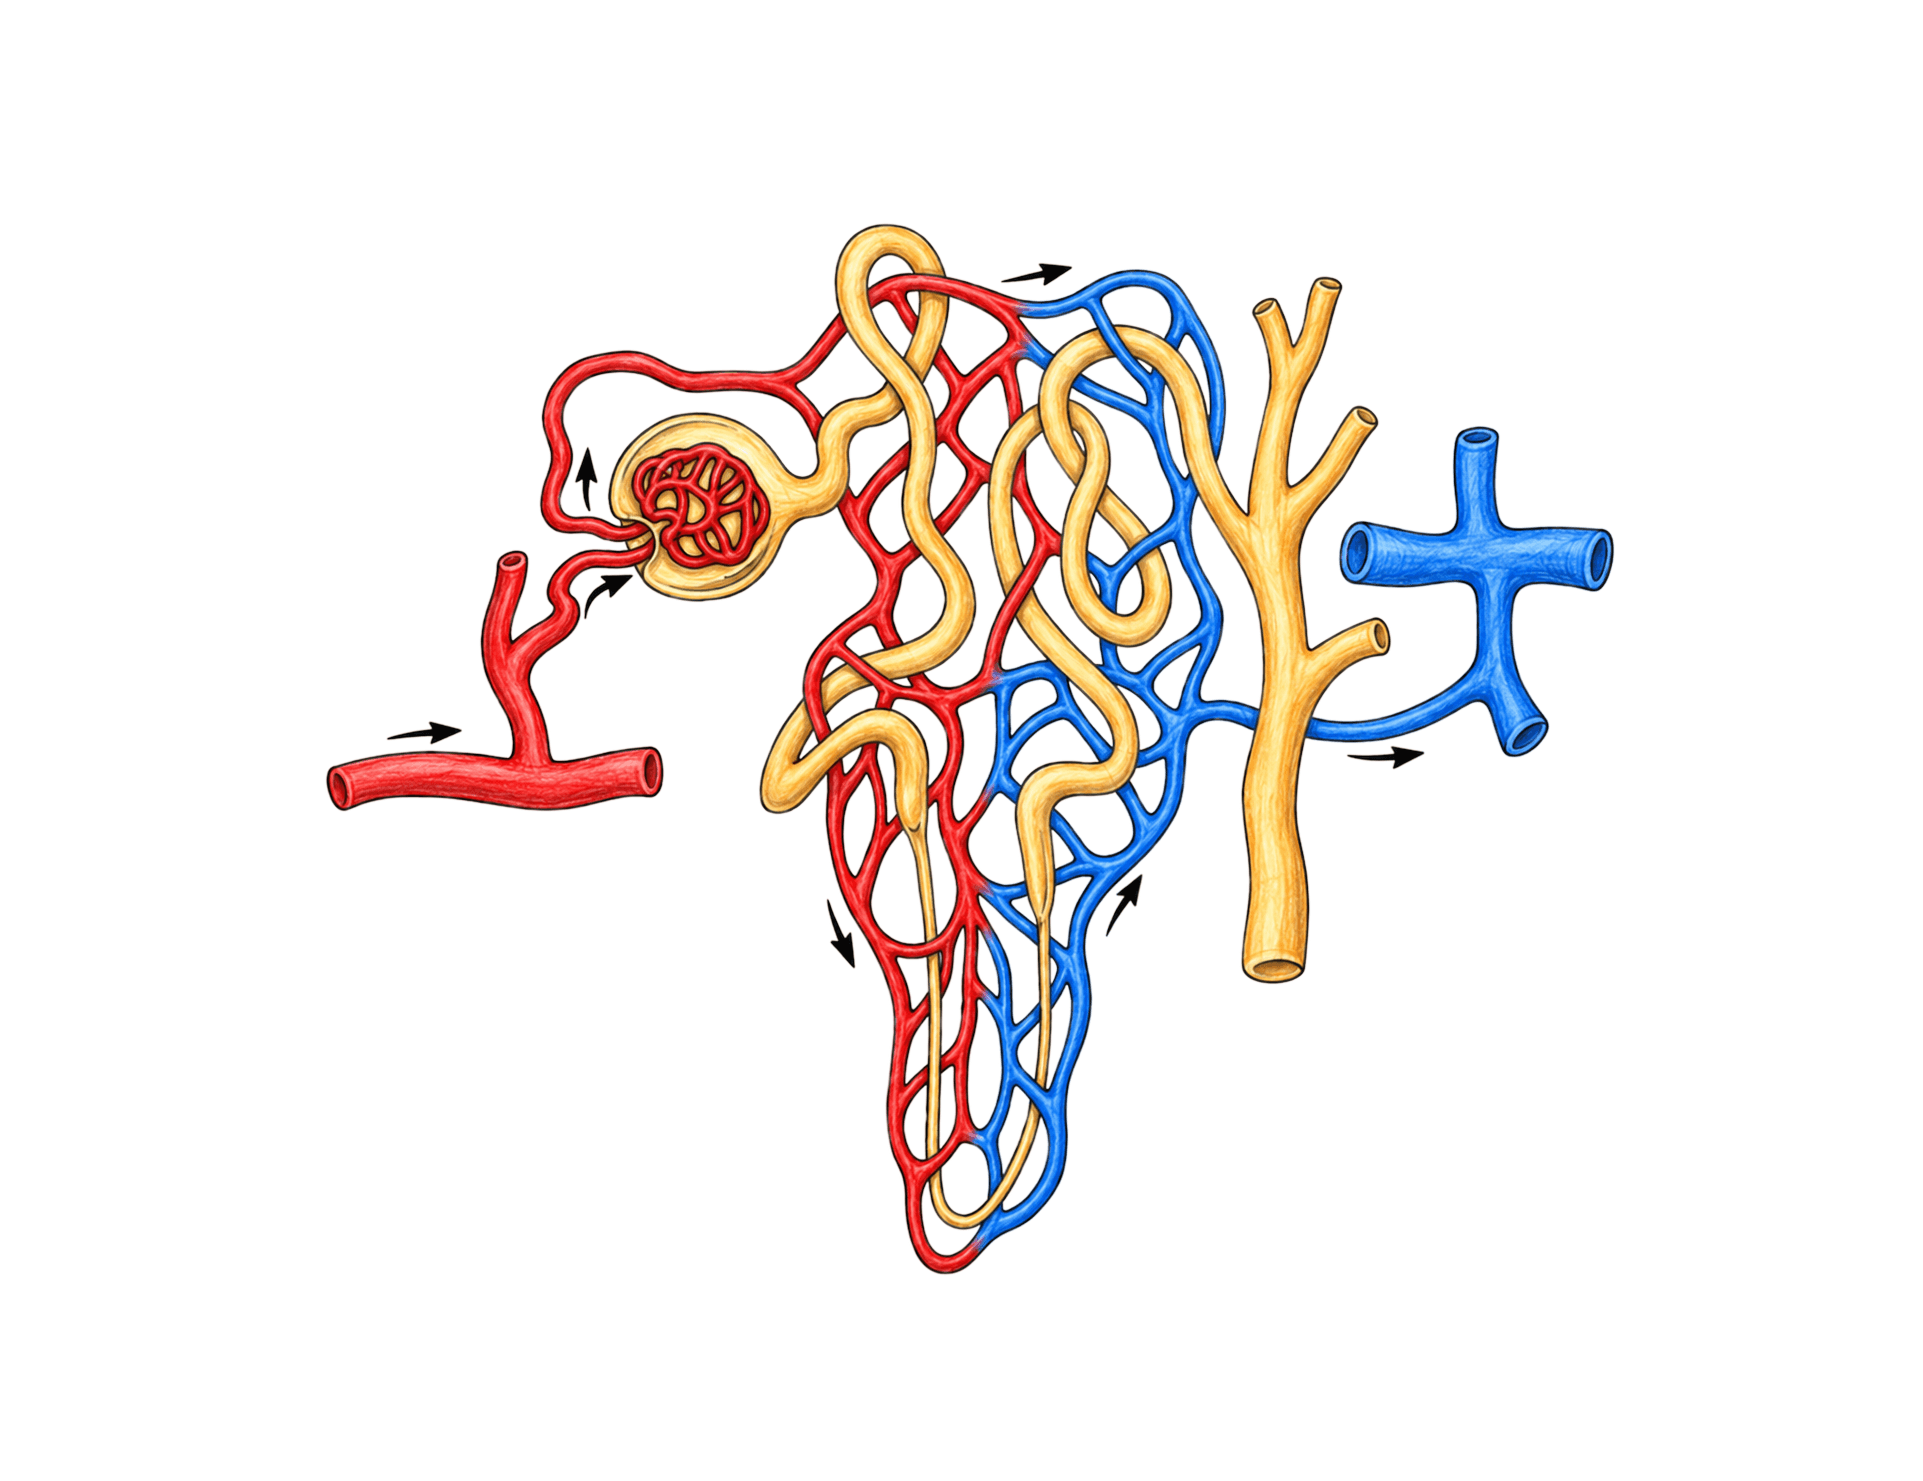
Fig. 20.4 · Biologie Barron's · p. 490
Schema detaliată a activității nefronuluiFigura este o schemă detaliată a activității nefronului, în care două rețele sunt desenate una peste alta: vasele de sânge, roșii și albastre, pe care sunt trasate săgeți mici de flux, și tubii nefronului, galbeni, care pornesc din capsula Bowman și se termină în tubul colector. Vasele sunt roșii de la arteră până în prima parte a rețelei de capilare, iar restul rețelei și vena sunt albastre. La stânga, două paranteze împart desenul în cele două regiuni ale rinichiului, corticala și medulara. Traseul sângelui Urmărește săgeata ce indică fluxul sângelui din arteră spre arteriola aferentă, care pătrunde în glomerul și îl părăsește prin intermediul arteriolei eferente. Sângele curge mai departe prin rețeaua de capilare peritubulare și este drenat apoi printr-o venă. Traseul plasmei și al filtratului Între timp, plasma pătrunde în capsula Bowman, apoi trece prin tubul contort proximal, ansa Henle și tubul contort distal, înainte să intre în tubul colector. Plasma modificată în tubii renali formează în final urina. Corticala și medulara După cum arată parantezele, anumite porțiuni din nefron sunt localizate în corticala renală, în timp ce altele sunt în medulară. În corticală stau artera și vena, arteriolele, glomerulul cu capsula lui și cei doi tubi contorți, iar în medulară coboară ansa Henle, rețeaua de capilare care o însoțește și tubul colector. Rețeaua interconectată Merită observată rețeaua interconectată a capilarelor peritubulare și a tubilor nefronului, care facilitează transferurile. Capilarele nu însoțesc tubii doar pe o porțiune, ci îi îmbracă pe tot parcursul, de la tubul contort proximal până în profunzimea ansei Henle, așa încât substanțele reabsorbite au mereu un vas alături în care să treacă. De asemenea, observă că tubul colector primește urina și de la alți nefroni din zonă, prin ramurile laterale desenate pe el. Un tub colector nu deservește deci un singur nefron. Legături Varianta simplificată a aceluiași traseu, cu cele trei procese numite pe desen, este Figura 20.3, iar substanțele care trec efectiv între tubi și capilare sunt arătate în Figura 20.5.

Fig. 20.5 · Biologie Barron's · p. 491
Pasajul moleculelor între tubii nefronului și capilarele peritubulareFigura este un sumar al pasajului moleculelor între tubi și capilarele peritubulare ale nefronului. Nefronul este desenat întins: în stânga sus capsula Bowman cu glomerulul, la mijloc tubul proximal care coboară, iar în dreapta tubul distal și tubul colector. Între ei trec capilarele peritubulare. Săgețile orizontale se citesc după aceeași regulă: punctul de la un capăt arată de unde pleacă substanța, iar vârful săgeții arată unde ajunge. Ce se întâmplă în glomerul Fluidul provenit din plasma sanguină intră în capsula glomerulară prin fante submicroscopice. Substanțele dizolvate, formate din molecule mici, trec din capilarele glomerulare în capsula glomerulară printr-un proces numit filtrare. Celulele sanguine și moleculele mari, cum sunt proteinele, rămân în sânge, în timp ce ionii și moleculele mai mici, precum glucoza, ajung în filtrat. Reabsorbția din tubul proximal Cele trei săgeți din stânga pleacă toate din tubul proximal și intră în capilarele peritubulare, iar figura scrie lângă fiecare și mecanismul: $\ce{H2O}$ (osmoză): apa se deplasează în direcția concentrației mai mari a clorurii de sodiu, deci în urma sărurilor deja trecute în capilare. $\ce{Na+}$ (transport activ): ionii de sodiu sunt transportați activ din fluidul tubului proximal în capilarele peritubulare. Glucoză (transport activ): reabsorbția glucozei și a aminoacizilor se realizează prin transport activ, un proces în care ATP-ul este utilizat ca sursă de energie. Proteinele transportoare specifice din membranele celulare transportă substanțele în afara celulelor tubulare și le transferă apoi în sângele capilarelor peritubulare. Textul adaugă un pas pe care desenul nu îl arată: ieșirea sodiului încarcat pozitiv creează un gradient electric de-o parte și de alta a peretelui tubului, iar acesta stimulează transportul facilitat al ionilor de clor, care părăsesc și ei filtratul, urmând ionii de sodiu. Secreția în tubul distal Cele două săgeți din dreapta merg invers, dinspre capilare spre tub. În tubii distali are loc secreția tubulară, un proces activ în care compușii chimici sunt transportați din capilarele peritubulare (din sânge) în tubul contort distal (în filtratul glomerular). Figura dă două exemple, amoniacul $\ce{NH3}$ și ionii de hidrogen $\ce{H+}$, aceștia din urmă cu mențiunea că trec prin transport activ. Printre moleculele secretate astfel se mai numără acidul uric, creatinina și antibiotice precum penicilina. De reținut Citind figura de la stânga la dreapta obții cele trei procese prin care nefronul formează urina: filtrare la glomerul, reabsorbție la tubul proximal și secreție la tubul distal. Cum se împletesc tubii și capilarele în realitate poți vedea în Figura 20.4.

Fig. 20.6 · Biologie Barron's · p. 492
Mecanismul contracurent al circulației apeiFigura arată mecanismul contracurent al circulației apei. Sus, în corticala renală, se recunosc glomerulul cu capsula Bowman și începutul tubilor. Sub linia orizontală întreruptă coboară în medulară ansa Henle, cu ramura ei descendentă și cea ascendentă, și, alături, tubul colector. Zona colorată din partea de jos este interstitiul medular, iar săgeata verticală marcată „Concentrație crescătoare de NaCl” arată sensul în care acesta devine tot mai sărat. Fiecare săgeată mică poartă numele substanței care iese din tubul de lângă ea. Ramura descendentă Filtratul glomerular pătrunde în ramura descendentă a ansei Henle, care coboară spre profunzimea medularei, unde se găsește ansa propriu-zisă. Atrasă de clorura de sodiu din interstitiu, apa trece aici din filtrat în afara tubului, ceea ce vezi în săgețile marcate $\ce{H2O}$ care pleacă din acest braț. Concentrația clorurii de sodiu crește către profunzimea medularei, ceea ce face posibil ca moleculele de apă să continue să părăsească ramura descendentă dinspre porțiunea proximală spre cea distală, precum și vârful ansei Henle. De aceea și săgeata de la baza ansei poartă tot $\ce{H2O}$. Ramura ascendentă Fluidul intră apoi în ramura ascendentă, care urcă din medulară înapoi către corticală. În ramura ascendentă, ionii de sodiu și clor ies din tubi și se acumulează în interstitiul medularei, adică în țesuturile din jurul tubilor. Acestea sunt săgețile marcate $\ce{Na+}$ și $\ce{Cl-}$, care pleacă în ambele părți. Din ramura ascendentă și din tubul distal apa nu este reabsorbită deloc, sau doar în cantități foarte mici, deoarece acești tubi sunt impermeabili pentru apă, dar permit reabsorbția ionilor de sodiu și clor. Tubul colector și ureea Tubul colector coboară și el în medulara renală și întâlnește mediul salin din interstitiul medular. Din cauză că acest mediu este hiperton, apa este extrasă din tubii colectori prin osmoză, ceea ce figura arată prin săgețile de apă care ies din tubul din dreapta. La baza lui, două săgeți curbate marcate „(Uree)” arată că anumite deșeuri azotate, în special ureea, părăsesc lumenul tubului colector în porțiunea lui profundă. Acumularea ureei acolo contribuie la creșterea concentrației moleculelor organice din medulară, iar în cele din urmă ureea trece înapoi în ansa Henle, de unde trece înapoi în tubul colector. De ce contează Acumularea de sare în interstitiu determină hipertonicitatea acestuia și crearea unui gradient osmotic, iar apa scoasă din tubi se reîntoarce în circulația sanguină prin capilarele din apropiere și prin vasele limfatice. Acest mecanism se numește mecanismul contracurent. Pierderea apei contribuie la concentrarea urinei și garantează faptul că fluidul care rămâne în nefron va deveni urină. Substanțele care trec între tubi și capilare în porțiunile de mai sus ale nefronului sunt rezumate în Figura 20.5.

Fig. 20.7 · Biologie Barron's · p. 494
Cei doi hormoni care controlează reabsorbția apei în nefronFigura pune față în față cei doi hormoni care controlează reabsorbția apei în nefron, fiecare cu glanda din care vine și cu structura asupra căreia acționează. Sus, în stânga, este hipofiza cu cei doi lobi ai ei, atârnată sub porțiunea de encefal din care coboară. Sus, în dreapta, este corticala suprarenalei, desenată în secțiune. Jos este un nefron, din care se văd tubul contort distal și tubul colector. Săgețile curbate leagă glandele de țintele lor, iar literele (a) și (b) marchează cei doi hormoni. (a) Hormonul antidiuretic (ADH) Rata reabsorbției apei din tubul contort distal și tubul colector este determinată de permeabilitatea membranei celulelor ce formează peretele tubului colector, iar această permeabilitate este controlată de hormonul antidiuretic (ADH). Printr-un mecanism chimic complex, ADH-ul deschide porii din membranele celulare și permite apei să treacă. Hormonul este produs de neuroni din hipotalamus și eliberat de către lobul posterior al glandei hipofize, de aceea săgețile (a) pornesc din hipofiza posterioară și ajung la tubul contort distal și la tubul colector. Secreția de ADH este stimulată când receptorii chimici din hipotalamus sunt stimulați de variațiile concentrației sodiului sau ale altor ioni în sânge. În caz de deshidratare, concentrația ionilor crește, receptorii semnalizează hipotalamusului să elibereze ADH, iar acesta crește permeabilitatea membranei celulelor din pereții tubilor, astfel încât este absorbită mai multă apă din filtratul glomerular. Când există un exces de apă în organism, concentrația ionilor scade, receptorii detectează scăderea și inhibă secreția de ADH, așa că în tubi este reabsorbită mai puțină apă, ea rămânând să dilueze urina. (b) Corticoizi (aldosteron) Al doilea hormon este aldosteronul, secretat de către cortexul glandelor suprarenale, de unde pleacă săgeata (b) spre tubul contort distal. Hormonul acționează în principal asupra tubului contort distal și are trei efecte importante: Reabsorbția sodiului: stimulează reabsorbția ionilor de sodiu din tubul contort distal. Reabsorbția apei: moleculele de apă „urmează” ionii de sodiu prin procesul de osmoză. Secreția potasiului: stimulează secreția potasiului din sânge în fluidul tubului contort distal. Ce se întâmplă fără aldosteron Eliminarea potasiului prin secreție tubulară este principala metodă de înlăturare a acestuia din organism. Fără aldosteron, tot potasiul ar fi reabsorbit, iar excesul lui în organism poate duce la insuficiență cardiacă. O secreție insuficientă de aldosteron apare și într-o afecțiune numită boala Addison. Săgeata dintre cele două glande În afară de traseele marcate cu (a) și (b), desenul mai are o săgeată, care pleacă din dreptul hipofizei anterioare și ajunge în corticala suprarenalei. Capitolul de față nu o explică, iar manualul trimite pentru hormonii hipofizari la Capitolul 13, unde vei găsi adenohipofiza cu organele ei țintă în Figura 13.3 și cele două regiuni ale glandei suprarenale în Figura 13.8.

Fig. 20.8 · Biologie Barron's · p. 496
Structurile anexe ale sistemului urinar masculinFigura arată structurile anexe ale sistemului urinar masculin, adică tot ce urmează după rinichi. Desenul este o secțiune văzută din față, iar drumul urinei se citește de sus în jos: cele două uretere ajung la vezica urinară, de la baza vezicii pleacă uretra, care străbate prostata și apoi penisul, până la orificiul uretral extern. Ureterele Ureterele sunt organe tubulare ce se întind de la rinichi la vezica urinară. Ele au o lungime de aproximativ 25-30 cm și transportă urina la vezică prin unde peristaltice produse de mușchii prezenți în pereții lor. Urina intră în vezica urinară sub formă de jeturi, care realizează un flux de 5 ml pe minut. În desen se văd amândouă, sosind de sus și intrând în vezică prin colțurile ei superioare. Vezica urinară Vezica se află poziționată posterior de simfiza pubiană. Este un sac distensibil constând dintr-o mucoasă ce tapetează cavitatea și din pereți formați din fibre musculare netede, iar secțiunea din figură arată tocmai aceste straturi. Este capabilă de o extensie considerabilă și are trei orificii: două spre uretere și unul către uretră. Poate acumula până la 600 ml de urină, pe care îi elimină prin uretră. Procesul de eliminare a urinei se numește micțiune, iar micțiunea care se produce involuntar este numită incontinență. Uretra Tubul care conduce urina de la baza vezicii la exterior este numit uretră. La bărbați, uretra trece prin penis și are aproximativ 15 cm lungime când penisul este relaxat, iar deschiderea ei spre exteriorul corpului se face prin orificiul uretral extern. Tot la bărbați, uretra servește de asemenea și ca pasaj pentru spermă. La femei, uretra este poziționată ventral față de vagin și are aproximativ 5 cm lungime, deci mult mai scurtă decât cea desenată aici. Structurile corelate cu sistemul reproducător La bărbați, uretra este înconjurată de glanda prostatică, iar creșterea în volum a acestei glande poate să împiedice curgerea normală a urinei. În desen se vede exact de ce: prostata stă ca un manșon în jurul primei porțiuni a uretrei, imediat sub col. Ceva mai jos, lângă uretră, sunt desenate glandele bulbo-uretrale. Prostata și glandele bulbouretrale sunt corelate cu sistemul reproducător. De reținut Rinichii produc urina, iar ureterele o transportă la vezica urinară. Uretra golește vezica urinară prin micțiune, atunci când acest lucru este oportun. Unde se află toate acestea în corp poți vedea în Figura 20.1.
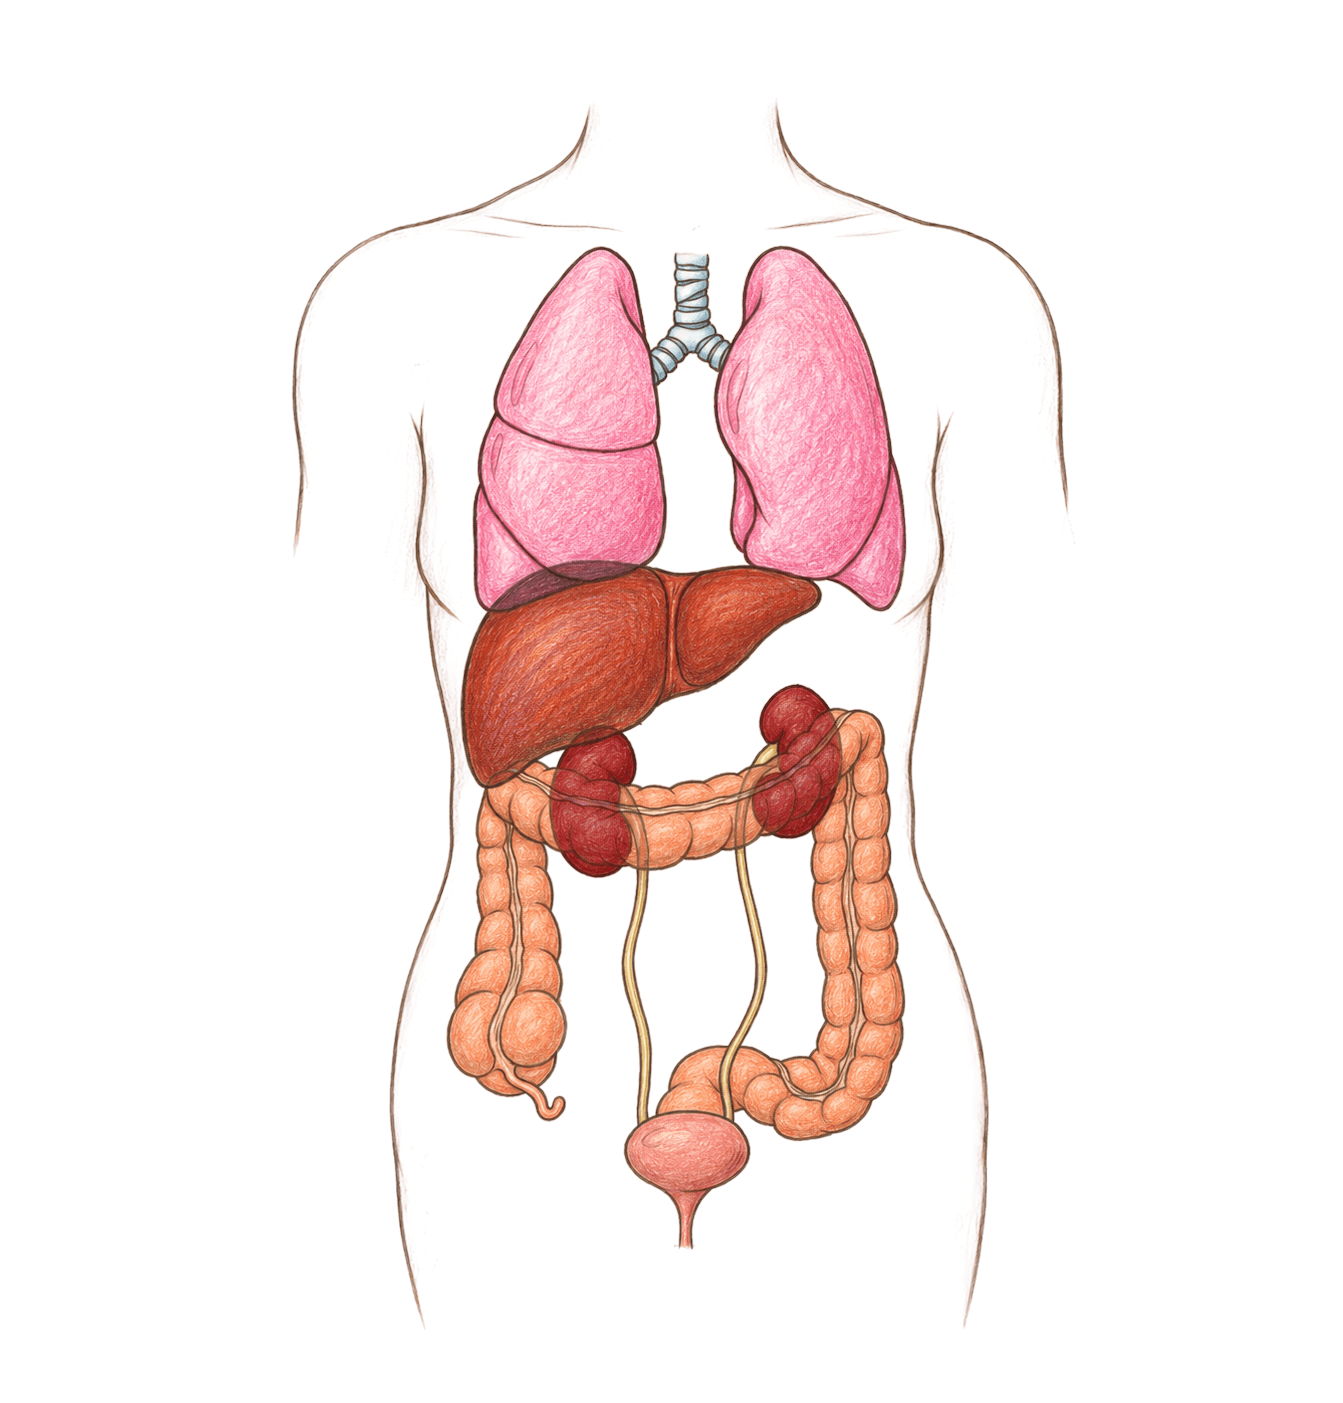
Fig. 20.9 · Biologie Barron's · p. 497
Alte organe excretorii ale organismului umanFigura strânge într-un singur desen alte organe excretorii ale organismului uman, care completează funcția sistemului urinar. Este o vedere anterioară a trunchiului, cu organele așezate în poziția lor reală: plămânii sus, ficatul sub ei, rinichii în spate, cu ureterele coborând spre vezica urinară, intestinul gros încadrând abdomenul, iar conturul corpului însuși fiind pielea. Pe lângă sistemul urinar, care excretă urină, în corp mai sunt și alte organe excretorii, iar figura le arată pe toate deodată. Ficatul Ficatul metabolizează produșii rezultați din degradarea hemoglobinei eritrocitelor și îi excretă ca și pigmenți biliari. O parte din pigmenții ce colorează urina provin de la ficat, deci cele două organe sunt legate chiar prin culoarea urinei. Plămânii Alte organe excretorii sunt plămânii. Aceștia excretă dioxidul de carbon și degajă o cantitate redusă de apă. Intestinul Intestinul și pielea sunt, de asemenea, considerate organe excretorii. Prin celulele epiteliale ce tapetează intestinul se pierd anumite săruri, cum ar fi sărurile de fier și de calciu, și se eliberează apă. Pielea Pielea este și ea un organ excretor minor, pentru că excretă sudoarea în cursul transpirației. Sudoarea conține apă, precum și mici cantități de săruri și anumite cantități de amoniac, uree și acid uric, adică unele dintre substanțele pe care le găsești și în urină. Transpirația este de fapt un proces de răcire, pentru că permite organismului să elimine excesul de căldură. Structura ei este detaliată în Figura 5.1. Ce nu este excreție Manualul face aici o distincție care merită reținută: defecația nu este considerată excreție, deoarece substanțele excretate sunt produși de degradare ai metabolismului, iar în procesul defecației sunt eliminate din corp materialele nedigerate. Organele sistemului urinar propriu-zis, pe care aceste organe doar îl completează, sunt arătate în Figura 20.1.
- IAlcătuirea corpului umanPaginile 4 - 11

Fig. 1 · Biologie Corint · p. 4
Cavitățile trunchiului: vedere anterioarăFigura este o vedere anterioară a trunchiului, adică trunchiul privit din față, dinspre fața lui ventrală. Peretele din față a fost îndepărtat, ca să se vadă cavitățile din interior. Textul de lângă figură spune că trunchiul este format din torace, abdomen și pelvis, iar în interiorul lor se găsesc cavitățile toracică, abdominală și pelviană, care adăpostesc viscerele, adică organele interne. Citește desenul de sus în jos, ca pe trei etaje suprapuse: granița dintre primul și al doilea etaj este banda arcuită de sub plămâni, diafragma. Cavitatea toracică Este etajul de sus. Aici se află plămânii și inima, organe protejate de cutia toracică, formată în față de stern, în spate de coloana vertebrală și lateral de coaste. În desen, plămânii ocupă cea mai mare parte a etajului, iar între ei, pe linia mediană, se văd vasele mari și un spațiu palid în formă de inimă. Legenda figurii împarte cavitatea toracică în trei spații: Mediastinul este regiunea mediană dintre cei doi plămâni. Prin partea lui de sus trec vasele mari, colorate în roșu și în albastru, care urcă spre gât și spre umeri. Cavitatea pleurală se găsește în jurul fiecărui plămân. Plămânul este învelit de o seroasă numită pleură, cu două foițe: foița parietală căptușește pereții toracelui, iar foița viscerală acoperă plămânul. Între ele există o cavitate virtuală, cavitatea pleurală, în care se află o lamă fină de lichid pleural. Prin pleură, plămânii sunt solidarizați cu cutia toracică și îi urmează mișcările. Fiind virtuală, cavitatea nu apare în desen ca un spațiu gol, ci se confundă cu conturul plămânului. Cavitatea pericardială se află tot pe linia mediană, sub vasele mari. Este spațiul palid în formă de inimă, cu câteva orificii rotunde, care se sprijină pe diafragmă între cei doi plămâni. Diafragma Cavitatea toracică este separată de cea abdominală printr-un mușchi numit diafragmă. Este un mușchi lat, așezat la baza cutiei toracice, în formă de cupolă, cu o față boltită spre torace și o față concavă spre abdomen. În desen, ea este banda arcuită pe care stau plămânii și cavitatea pericardială. Diafragma nu este însă un perete nemișcat. În inspirație se contractă și coboară, alungind cavitatea toracică, iar în expirația liniștită se relaxează și urcă, scurtând-o din nou (Figura 96). Cavitatea abdominală Este etajul mijlociu, cel mai întins din desen, aflat imediat sub diafragmă. Adăpostește viscerele abdominale. De exemplu, rinichii sunt așezați în cavitatea abdominală, de o parte și de alta a coloanei vertebrale, în regiunea lombară. În desen, cavitatea apare aproape goală, ca să i se vadă întinderea. Spre deosebire de granița cu toracele, între abdomen și pelvis nu există niciun perete: cavitatea abdominală se continuă cu cea pelviană, iar în desen un singur contur albastru le cuprinde pe amândouă. Felul în care cavitatea abdominală se împarte, la rândul ei, în regiuni este arătat în Figura 2. Cavitatea pelviană Este etajul de jos, continuarea cavității abdominale, desenată ca partea mai îngustă a aceluiași contur. Inferior, este limitată de diafragma perineală. Aici se află organele din bazin, ca vezica urinară și ultima porțiune a rectului, iar la femeie uterul, situat între vezica urinară și rect, și ovarele. Organele pelvine sunt protejate de bazinul osos, format din oasele coxale, unite în față prin simfiza pubiană și în spate cu sacrul.

Fig. 2 · Biologie Corint · p. 4
Subdiviziunile cavității abdominaleFigura arată abdomenul văzut din față, cu peretele anterior îndepărtat, astfel încât viscerele din cavitatea abdominală se văd direct. Peste ele sunt trasate două linii verticale și două linii orizontale, care împart cavitatea, ca un caroiaj, în nouă regiuni așezate pe trei rânduri. Manualul o prezintă împreună cu Figura 1, atunci când descrie trunchiul: acesta este format din torace, abdomen și pelvis, iar cavitatea abdominală, separată de cea toracică prin diafragmă, se continuă în jos cu cavitatea pelviană. Cum citești caroiajul Reperele sunt oasele desenate: sus sternul și coastele, jos oasele coxale ale bazinului. Prima linie orizontală este trasă la nivelul marginii de jos a cutiei toracice, a doua între cele două oase coxale. Liniile verticale coboară de la coaste până la oasele bazinului, de o parte și de alta a liniei mediane. Dreapta și stânga din numele regiunilor sunt ale persoanei desenate, care stă cu fața spre tine, nu ale celui care privește. De aceea regiunile drepte apar în stânga imaginii, iar cele stângi în dreapta ei. Trei regiuni mediane și trei perechi Coloana din mijloc stă pe linia mediană, între stern și simfiza pubiană, și cuprinde trei regiuni nepereche: epigastrul, regiunea periombilicală și hipogastrul. Celelalte șase formează trei perechi, câte o regiune în dreapta și una în stânga: hipocondrul, abdomenul lateral și regiunea inghinală. Planul medio-sagital, planul simetriei bilaterale (Figura 3), trece prin mijlocul coloanei centrale, așa că fiecare regiune din dreapta are o pereche în oglindă în stânga. Rândul superior Se află deasupra primei linii orizontale. Cum linia este trasă la marginea de jos a cutiei toracice, regiunile acestui rând sunt acoperite, în desen, de coastele de jos. Hipocondru drept, în partea dreaptă, acoperit de coaste. Epigastru, la mijloc, imediat sub capătul de jos al sternului, în unghiul deschis în jos dintre coastele celor două părți. Hipocondru stâng, în partea stângă, acoperit de coaste. Rândul mijlociu Este fâșia dintre cele două linii orizontale, adică dintre marginea de jos a coastelor și oasele coxale. În desen este ocupată de intestine. Abdomen lateral drept, regiunea laterală din partea dreaptă, sub hipocondrul drept. Periombilical, regiunea din centrul caroiajului, cea din jurul ombilicului, după cum îi arată și numele. Este înconjurată de celelalte opt regiuni. Abdomen lateral stâng, regiunea laterală din partea stângă, sub hipocondrul stâng. Rândul inferior Este fâșia de sub a doua linie orizontală, care coboară printre oasele coxale ale bazinului. Inghinal drept, în colțul din dreapta jos. În desen este un mic triunghi între linia verticală, linia orizontală de jos și marginea osului coxal drept. Hipogastru, la mijloc, sub regiunea periombilicală. Coboară între cele două oase coxale până deasupra simfizei pubiene, locul în care ele se unesc în față. Inghinal stâng, în colțul din stânga jos, perechea regiunii inghinale drepte, lângă osul coxal stâng.

Fig. 3 · Biologie Corint · p. 5
Planuri și axe ale corpuluiFigura arată elementele de orientare cu ajutorul cărora se precizează poziția segmentelor corpului: axele și planurile. Corpul omenesc este alcătuit după principiul simetriei bilaterale și, fiind un corp tridimensional, are trei axe și trei planuri. În desenul din stânga, planurile străbat corpul ca niște plăci care se taie între ele: două stau vertical, iar a treia este orizontală. Axele sagital și transversal nu au aici o linie separată: le găsești pe liniile de-a lungul cărora placa orizontală le taie pe cele verticale. În desenul din dreapta, corpul este văzut din profil, iar axul lungimii lui este trasat cu linie întreruptă. Cele trei axe Axele corespund dimensiunilor spațiului și se întretaie în unghi drept. Axul longitudinal este axul lungimii corpului. La om este vertical și are doi poli, superior (cranial) și inferior (caudal). Pleacă din creștetul capului și merge până la nivelul spațiului delimitat de suprafața tălpilor. În desenul din dreapta, el este linia verticală întreruptă care străbate corpul de sus până jos. Axul sagital, numit și anteroposterior, este axul grosimii corpului. Are un pol anterior și altul posterior. În desenul din stânga, el este linia întreruptă care traversează oblic partea de jos a trunchiului, acolo unde placa orizontală o taie pe cea a planului sagital. Axul transversal corespunde lățimii corpului. Este orizontal și are un pol stâng și altul drept. În desenul din stânga, el este linia de-a lungul căreia placa orizontală o taie pe cea a planului frontal, bine vizibilă în dreapta corpului, lângă marginea acestei plăci. Cele trei planuri Prin câte două din axele de mai sus trece câte un plan al corpului. De aceea fiecare ax se află chiar pe linia în care se taie cele două planuri care trec prin el. Planul sagital trece prin axul longitudinal și prin cel sagital, deci este vertical și orientat dinspre față spre spate. În desen este placa verticală așezată oblic, care străbate corpul pe această direcție. Planul care trece prin mijlocul corpului (median), împărțindu-l în două jumătăți simetrice, se numește plan medio-sagital și este planul simetriei bilaterale. Planul frontal merge paralel cu fruntea și trece prin axul longitudinal și prin cel transversal. În desen este placa verticală lată, întinsă de-a latul corpului, dincolo de ambele brațe. El împarte corpul într-o parte anterioară (ventrală) și alta posterioară (dorsală). Planul transversal sau orizontal trece prin axul sagital și prin cel transversal. În desen este singura placă culcată, la nivelul șoldurilor. El împarte corpul într-o parte superioară (cranială) și alta inferioară (caudală) și este numit planul metameriei corpului. Atenție la denumiri: sagital și transversal numesc atât un ax, cât și un plan, pe când longitudinal este numai un ax, iar frontal numai un plan. Nomenclatura anatomică Aceleași axe și planuri servesc și la precizarea poziției elementelor componente din fiecare organ, nu doar a segmentelor corpului întreg. Odată cu ele ai cunoscut și câțiva termeni ai nomenclaturii anatomice: cranial, caudal, ventral, dorsal, medial, lateral, sagital, frontal, transversal.

Fig. 4 · Biologie Corint · p. 6
Nivelurile de organizare a corpului umanFigura urmărește corpul uman pe nouă niveluri de organizare, de la atom până la organismul întreg. Fiecare dintre ele contribuie, în final, la nivelul morfo-funcțional al întregului organism. Șirul începe cu atomul, desenat deasupra moleculei, fără o săgeată proprie. De la moleculă încolo, urmărește săgețile: ele coboară pe partea stângă a figurii până la celule, cotesc jos, spre țesut, apoi urcă spre dreapta, prin organ și sistemul de organe, până la corpul întreg. Primele niveluri: atom, moleculă, macromoleculă Atomul este o singură bilă mică, în colțul din stânga sus. Molecula, chiar sub el, este un grup de trei bile prinse între ele: una mai mare și două mai mici, asemănătoare celei care reprezintă atomul. Macromolecula este un lanț lung, răsucit în spirală, mult mai mare decât molecula. Spre ea duce prima săgeată a figurii. Organitul și celula Organitul este desenat alungit și secționat, ca să i se vadă interiorul. După aspect este o mitocondrie: are un înveliș extern, iar spre interior o membrană plicaturată, care formează creste mitocondriale. Organitele celulare alcătuiesc partea structurată a citoplasmei și sunt de două tipuri: comune tuturor celulelor și specifice, prezente numai în anumite celule. Organitele comune, printre care și mitocondria, sunt prezentate împreună în Figura 6. Celula este reprezentată prin două celule alăturate. În fiecare se recunosc cele trei părți principale ale celulei: membrana celulară, care o înconjoară și îi dă forma, citoplasma și nucleul, corpul oval din interior. La polul de sus, fiecare are prelungiri fine. Manualul arată că la unele celule citoplasma formează astfel de prelungiri, acoperite de plasmalemă. Celula este unitatea de bază morfofuncțională și genetică a organizării materiei vii. Poate exista singură sau în grup, constituind diferite țesuturi. De la țesut la sistemul de organe În corpul omenesc, celulele și țesuturile alcătuiesc organe și sisteme de organe. Figura parcurge aceste niveluri pe rând. Țesutul este desenat ca un bloc tăiat dintr-un strat de celule asemănătoare, strânse unele lângă altele. Țesuturile sunt sisteme organizate de materie vie formate din celule similare, care îndeplinesc în organisme aceeași funcție sau același grup de funcții. Celulele sunt unite între ele printr-o substanță intercelulară, numită „substanță de ciment” când este în cantitate mică și „substanță fundamentală” când este în cantitate mare. Manualul grupează țesuturile în patru categorii: țesutul epitelial, conjunctiv, muscular și nervos. Organul ales ca exemplu este stomacul, prezentat în detaliu în Figura 76. Organele sunt formate din grupări de celule și țesuturi care s-au diferențiat în vederea îndeplinirii anumitor funcții în organism. Pentru organele interne se folosește curent termenul de viscere. Sistemul de organe este sistemul digestiv: ficatul, stomacul și intestinele, desenate împreună. Stomacul de la nivelul anterior se regăsește aici, lângă ficat, deasupra intestinelor. Sistemele de organe sunt unități morfologice care îndeplinesc principalele funcții ale organismului: de relație, de nutriție și de reproducere. Manualul prezintă sistemul digestiv la funcțiile de nutriție: la nivelul organelor lui se realizează digestia alimentelor, transformarea lor în produși absorbabili și eliminarea resturilor neabsorbite. Organismul Ultimul desen este corpul uman întreg, văzut din față, cu segmentele lui: capul, gâtul, trunchiul și membrele. Este nivelul la care contribuie, în final, toate celelalte. În interiorul trunchiului se găsesc cavitățile toracică, abdominală și pelviană, care adăpostesc viscerele, printre ele și organele digestive de la nivelul anterior. Organele lucrează împreună Manualul subliniază că organele nu funcționează izolat în organism, ci în strânsă corelație unele cu altele. Se vede și în figură: stomacul nu rămâne singur, ci reapare alături de celelalte organe digestive, iar șirul se încheie cu organismul întreg.
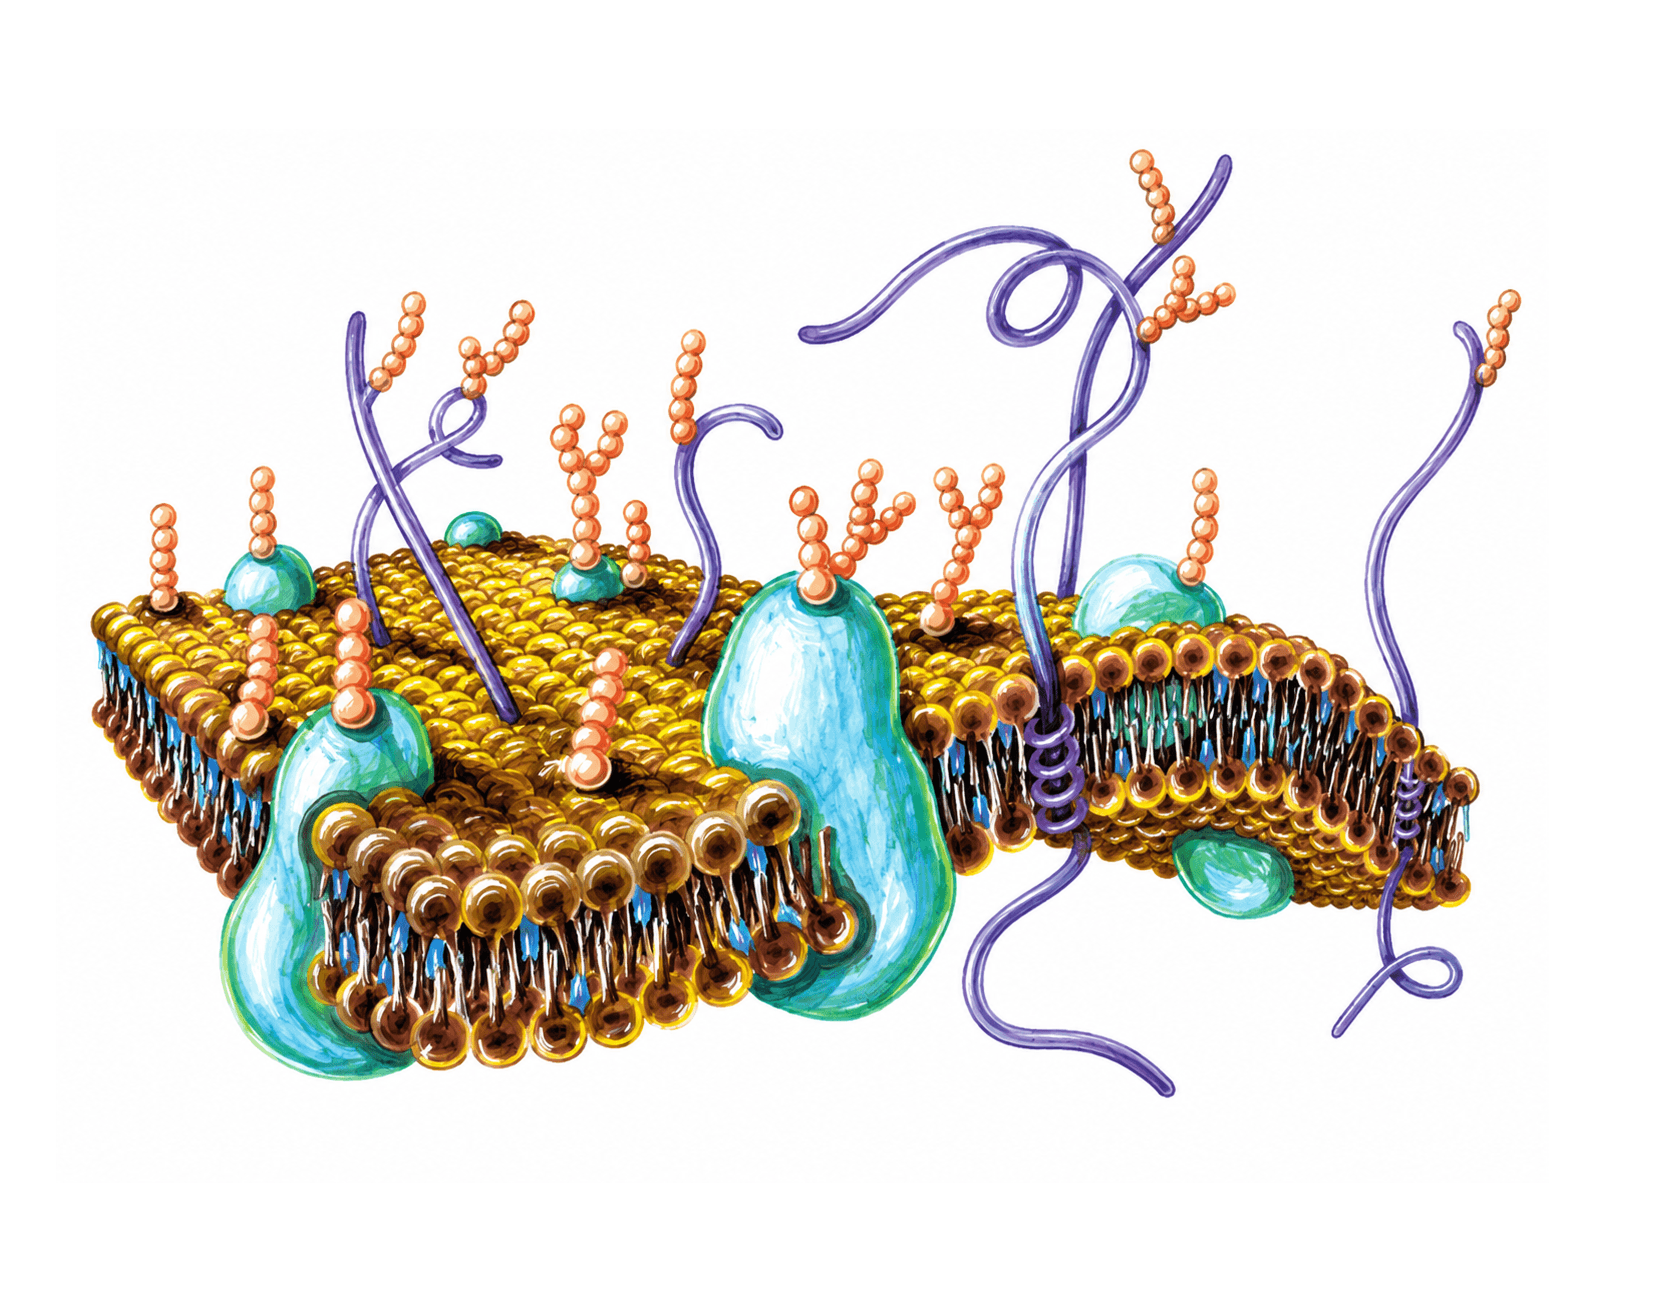
Fig. 5 · Biologie Corint · p. 6
Modelul mozaic fluid al membranei celulareFigura arată o bucată de membrană celulară (membrana plasmatică, plasmalema), desenată în spațiu și secționată pe margini, ca să vezi în același timp suprafața ei și alcătuirea ei în grosime. Membrana este una dintre cele trei părți componente principale ale celulei, alături de citoplasmă și nucleu. Ea înconjoară celula, îi conferă forma și separă structurile interne ale celulei de mediul extracelular. În Figura 6 apare ca învelișul exterior al întregii celule, iar aici este mărită până la nivelul moleculelor care o alcătuiesc: în principal fosfolipide și proteine, la care se adaugă glucide. Cele două spații pe care le desparte Deasupra membranei se află spațiul extracelular, iar dedesubt spațiul intracelular. Ele îți arată cum să orientezi desenul: fața de sus a membranei este fața ei externă, iar cea de jos este fața internă. Orientarea contează, pentru că proteinele se pot afla pe oricare dintre fețe, pe când glucidele sunt atașate numai pe fața externă. Bistratul de fosfolipide Fosfolipidele sunt așezate astfel încât porțiunea lor hidrofilă formează un bistrat, iar porțiunea lor hidrofobă rămâne cuprinsă în interiorul acestuia. În desen, fiecare fosfolipid are un cap rotund, din care pornesc cozi subțiri. Fața de sus a membranei este acoperită de astfel de capete, iar marginile secționate arată cum sunt dispuse fosfolipidele în grosimea ei: Straturile hidrofile sunt cele două rânduri de capete, unul spre spațiul extracelular și celălalt spre spațiul intracelular. Stratul hidrofob este miezul dintre ele, unde se află cozile fosfolipidelor din ambele rânduri. Acest miez restricționează pasajul transmembranar al moleculelor hidrosolubile și al ionilor. Printre cozile fosfolipidelor, în miezul hidrofob, sunt desenate și molecule mici de colesterol. La fel ca fosfolipidele, colesterolul este o substanță lipidică, iar la metabolism manualul arată că lipidele au și rol plastic: intră în constituția tuturor sistemelor de citomembrane. Proteinele și modelul mozaic fluid Componenta proteică este cea care realizează funcțiile specializate ale membranei și mecanismele de transport transmembranar. În desen, proteinele apar în două forme: ca mase rotunjite, de mărimi diferite, și ca filamente lungi care se răsucesc prin grosimea membranei. Le găsești în toate cele trei poziții pe care le descrie manualul: Pe fața externă: mase mici, așezate deasupra bistratului. Pe fața internă: masa care atârnă sub partea din dreapta a membranei. Transmembranar: masele mari care străbat toată grosimea bistratului și filamentele care îl traversează și ies pe ambele fețe. Proteinele nu sunt distribuite uniform în cadrul structurii lipidice, ci sunt împrăștiate neregulat printre fosfolipide. Tocmai de aceea, acest model structural a fost denumit modelul mozaic fluid. Glucidele de pe fața externă Membrana conține și glucide, atașate pe fața ei externă și puternic încărcate negativ. În desen sunt lanțurile scurte, unele ramificate la capăt, care se ridică din membrană spre spațiul extracelular. Manualul le enumeră ca glicoproteine și glicolipide, iar desenul arată deosebirea: unele lanțuri sunt prinse de proteine, în vârful filamentelor sau pe masele proteice, altele pornesc direct din stratul de lipide, cum este glicolipidul de la marginea din stânga. Legătura cu transportul transmembranar Structura membranei explică permeabilitatea ei selectivă, pe care manualul o prezintă la transportul transmembranar. Moleculele nepolarizate (liposolubile), de exemplu $\ce{O2}$ sau hormonii steroizi, difuzează prin membrană, care nu reprezintă o barieră pentru ele. Ionii, în schimb, nu trec liber, ci doar prin canale ionice cu structură proteică (Figura 7). Moleculele polarizate mai mari, cum este glucoza, au nevoie de proteine transportoare. Tot proteinele transportoare asigură transportul activ, prin care molecule și ioni sunt deplasați împotriva gradientului de concentrație, cu consum de ATP (Figura 8).
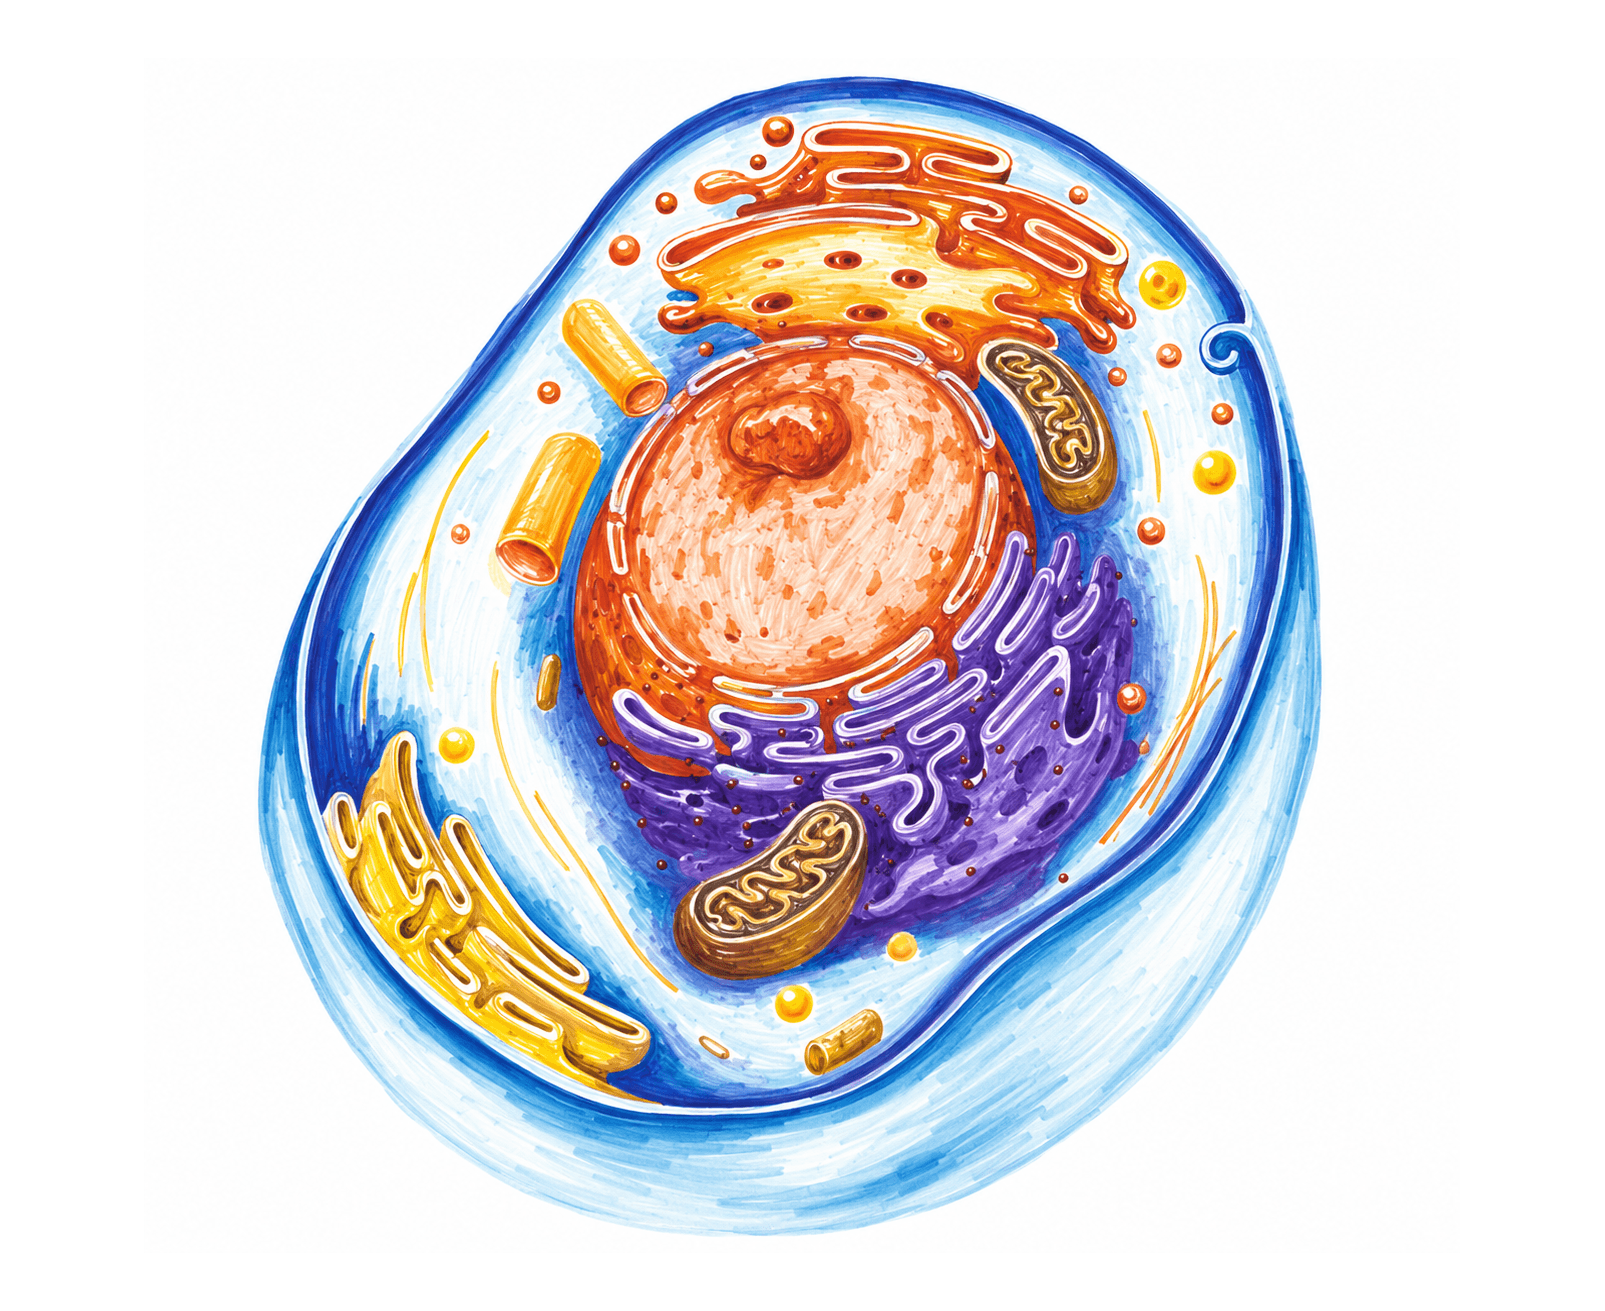
Fig. 6 · Biologie Corint · p. 6
Organizarea generală a celuleiFigura arată o celulă tăiată în secțiune, în care se văd deodată toate componentele ei. Celula este unitatea de bază morfofuncțională și genetică a organizării materiei vii, nivelul aflat între organit și țesut în Figura 4. În alcătuirea ei distingem trei părți componente principale, pe care le întâlnești citind desenul de la margine spre centru: membrana celulară, citoplasma și nucleul. Cele trei părți principale Membrana celulară (membrana plasmatică, plasmalema) este învelișul de la marginea desenului. Ea înconjoară celula, îi conferă forma și separă structurile interne de mediul extracelular. Este alcătuită, în principal, din fosfolipide și proteine, organizate după modelul mozaic fluid din Figura 5. Citoplasma ocupă tot spațiul dintre membrană și nucleu, iar la nivelul ei se desfășoară principalele funcții vitale. Este un sistem coloidal, în care mediul de dispersie este apa. Funcțional, are o parte nestructurată, hialoplasma, și o parte structurată, organitele celulare. Nucleul este masa rotundă din mijlocul desenului. Are rolul de a coordona procesele biologice celulare fundamentale: conține materialul genetic, controlează metabolismul celular și transmite informația genetică. Înăuntrul nucleului Structura nucleului cuprinde membrana nucleară, carioplasma și unul sau mai mulți nucleoli. Membrana nucleară apare în desen ca un contur dublu. Este poroasă și dublă, cu două foițe separate de spațiul perinuclear: cea externă prezintă ribozomi și se continuă cu citomembranele reticulului endoplasmic, iar cea internă este aderentă miezului nuclear. Sub membrană se află carioplasma, cu o rețea de filamente subțiri formate din granulații fine de cromatină, din care, la începutul diviziunii celulare, se formează cromozomii. Nucleolul este micul corpuscul distinct din partea de sus a nucleului. Organitele comune În citoplasmă sunt desenate toate cele șase organite comune tuturor celulelor. Organitele specifice (miofibrilele, neurofibrilele, corpii Nissl) apar numai în anumite celule și nu sunt reprezentate aici. Reticulul endoplasmatic este un sistem canalicular care leagă plasmalema de stratul extern al membranei nucleare, cu rol de sistem circulator intracitoplasmatic. Reticulul endoplasmatic rugos (ergastoplasma) este o formă diferențiată a lui, care prezintă ribozomi pe suprafața externă a peretelui membranos și are rol în sinteza de proteine. În desen, el pornește chiar din membrana nucleară, sub nucleu. Reticulul endoplasmatic neted, desenat jos, în stânga, este o rețea de citomembrane cu aspect diferit în funcție de activitatea celulară și are rol important în metabolismul glicogenului. Ribozomii (corpusculii lui Palade) sunt granule ovale sau rotunde, bogate în ribonucleoproteine, și reprezintă sediul sintezei proteice. Există ribozomi liberi în matricea citoplasmatică și ribozomi asociați reticulului endoplasmatic neted, care formează ergastoplasma. Ribozomul marcat în figură este o granulă liberă din partea de jos a celulei, aproape de membrana celulară. Aparatul Golgi (dictiozomii) este sistemul de micro- și macrovezicule și de cisterne alungite desenat chiar deasupra nucleului, în zona cea mai activă a citoplasmei. Are rol în excreția unor substanțe celulare. Mitocondriile sunt organite ovale sau rotunde, cu perete de structură trilaminară. Membrana lor internă este plicaturată și formează crestele mitocondriale, care se văd în desen ca pliuri în interior. Sunt sediul fosforilării oxidative (sinteza $\ce{ATP}$), cu eliberare de energie. În figură apar două mitocondrii, iar cea marcată se află în dreapta nucleului. Lizozomii sunt corpusculi sferici răspândiți în întreaga hialoplasmă, care conțin enzime hidrolitice. Digeră substanțele și particulele pătrunse în celulă, precum și fragmentele de celule sau țesuturi, și au rol important în celulele fagocitare (leucocite, macrofage). Centriolul face parte din centrozom, organitul situat în apropierea nucleului care se manifestă în timpul diviziunii celulare. Centrozomul este format din doi centrioli cilindrici, orientați perpendicular unul pe celălalt și înconjurați de centrosferă, o zonă de citoplasmă vâscoasă. În stânga nucleului se văd două formațiuni cilindrice, iar cea marcată este un centriol. Centrozomul are rol în diviziunea celulară și lipsește în neuroni. Incluziunile citoplasmatice Pe lângă organite, în citoplasmă se găsesc și incluziunile citoplasmatice, care au caracter temporar și sunt reprezentate prin granule de substanță de rezervă, produși de secreție și pigmenți. Granula de secreție din figură, o granulă rotundă desenată lângă aparatul Golgi, este un astfel de produs de secreție.

Fig. 7 · Biologie Corint · p. 8
Difuziunea prin membrana celularăFigura ilustrează difuziunea, unul dintre mecanismele prin care substanțele traversează membrana celulară. Vedem în secțiune o porțiune de membrană care desparte două compartimente: interiorul celulei, în stânga, și exteriorul, în dreapta. Triunghiurile mici sunt ionii, iar cele două săgeți arată încotro se deplasează ei: dinspre exterior spre interior, prin proteinele care străbat membrana. De ce se deplasează ionii Compară cele două părți ale desenului. În exterior, ionii sunt mulți și înghesuiți, iar în interior sunt puțini și rari, deci între cele două compartimente există o diferență de concentrație, numită gradient de concentrație. Moleculele unui gaz, ca și moleculele și ionii dintr-o soluție, se află permanent într-o mișcare dezordonată, datorată propriei lor energii. Această mișcare se numește difuziune și duce la răspândirea uniformă a moleculelor în tot volumul de gaz sau de soluție. Oriunde apare un gradient de concentrație între două compartimente ale unei soluții, mișcarea moleculară tinde să îl elimine, distribuind moleculele uniform. De aceea ionii din figură trec din partea aglomerată spre cea săracă, adică se deplasează conform gradientului de concentrație. Pe unde trec ionii: proteina integrată Săgețile nu străpung membrana oriunde. Ele sunt desenate în dreptul formațiunilor mari care o străbat de la o față la cealaltă, proteinele integrate. Desenul are două astfel de proteine, una sus și una jos, iar manualul o numerotează doar pe cea de sus. Fiecare este desenată din două părți alăturate. Săgeata de sus vine din exterior și țintește locul dintre cele două părți ale proteinei de sus, iar săgeata de jos iese dintre părțile proteinei de jos și intră în interior. Împreună arată traseul ionilor: din exterior, prin proteine, în celulă. Explicația o dă textul: membrana nu permite pasajul ionic liber, acesta având loc doar la nivelul canalelor ionice cu structură proteică. Canalele sunt formațiuni membranare atât de mici, încât nu pot fi văzute nici cu microscopul electronic. Proteinele membranei se pot afla pe fața ei externă, pe cea internă sau transmembranar, ca în desen, iar componenta proteică este cea care realizează mecanismele de transport transmembranar. Tot prin canale ionice difuzează și ionii de $\ce{Na+}$ și de $\ce{K+}$ în timpul potențialului de acțiune, când canalele voltaj-dependente pentru acești ioni se deschid (Figura 10). Straturile fosfolipidice: bariera pentru ioni În afara proteinelor, membrana este alcătuită din două straturi fosfolipidice, unul orientat spre interior și celălalt spre exterior. Fosfolipidele sunt astfel dispuse, încât porțiunea lor hidrofilă formează un bistrat, în interiorul căruia rămâne cuprinsă porțiunea lor hidrofobă. În desen, cerculețele care căptușesc cele două fețe corespund porțiunii hidrofile, iar liniile ondulate care se întâlnesc la mijloc alcătuiesc miezul hidrofob. Acest miez restricționează trecerea moleculelor hidrosolubile și a ionilor, de aceea niciun ion din figură nu străbate membrana prin straturile fosfolipidice. Alcătuirea completă a membranei, după modelul mozaic fluid, apare în Figura 5. Ce alte substanțe difuzează prin membrană Figura arată doar ioni, dar textul spune ce se întâmplă și cu alte molecule: Moleculele nepolarizate (liposolubile), de exemplu $\ce{O2}$ sau hormonii steroizi: datorită structurii sale, membrana nu reprezintă o barieră în difuziunea lor. Moleculele organice cu legături covalente polare, dar neîncărcate electric, de exemplu $\ce{CO2}$, etanolul sau ureea: pot și ele difuza prin membrană. Moleculele polarizate mai mari, de exemplu glucoza: nu pot traversa membrana prin difuziune, de aceea au nevoie de proteine transportoare. Locul difuziunii în transportul transmembranar Manualul clasifică transportul transmembranar în două feluri, iar difuziunea intră de fiecare dată în prima grupă: După proteinele transportoare (cărăuși): difuziunea și osmoza nu au nevoie de ele, spre deosebire de difuziunea facilitată și de transportul activ. După consumul de energie: difuziunea face parte din transportul pasiv, care nu necesită energie, alături de osmoză și de difuziunea facilitată. Transportul activ, în schimb, consumă energie furnizată de $\ce{ATP}$. Diferența se vede bine în Figura 8, unde o proteină transportoare deplasează ionii împotriva gradientului de concentrație, cu consum de $\ce{ATP}$.
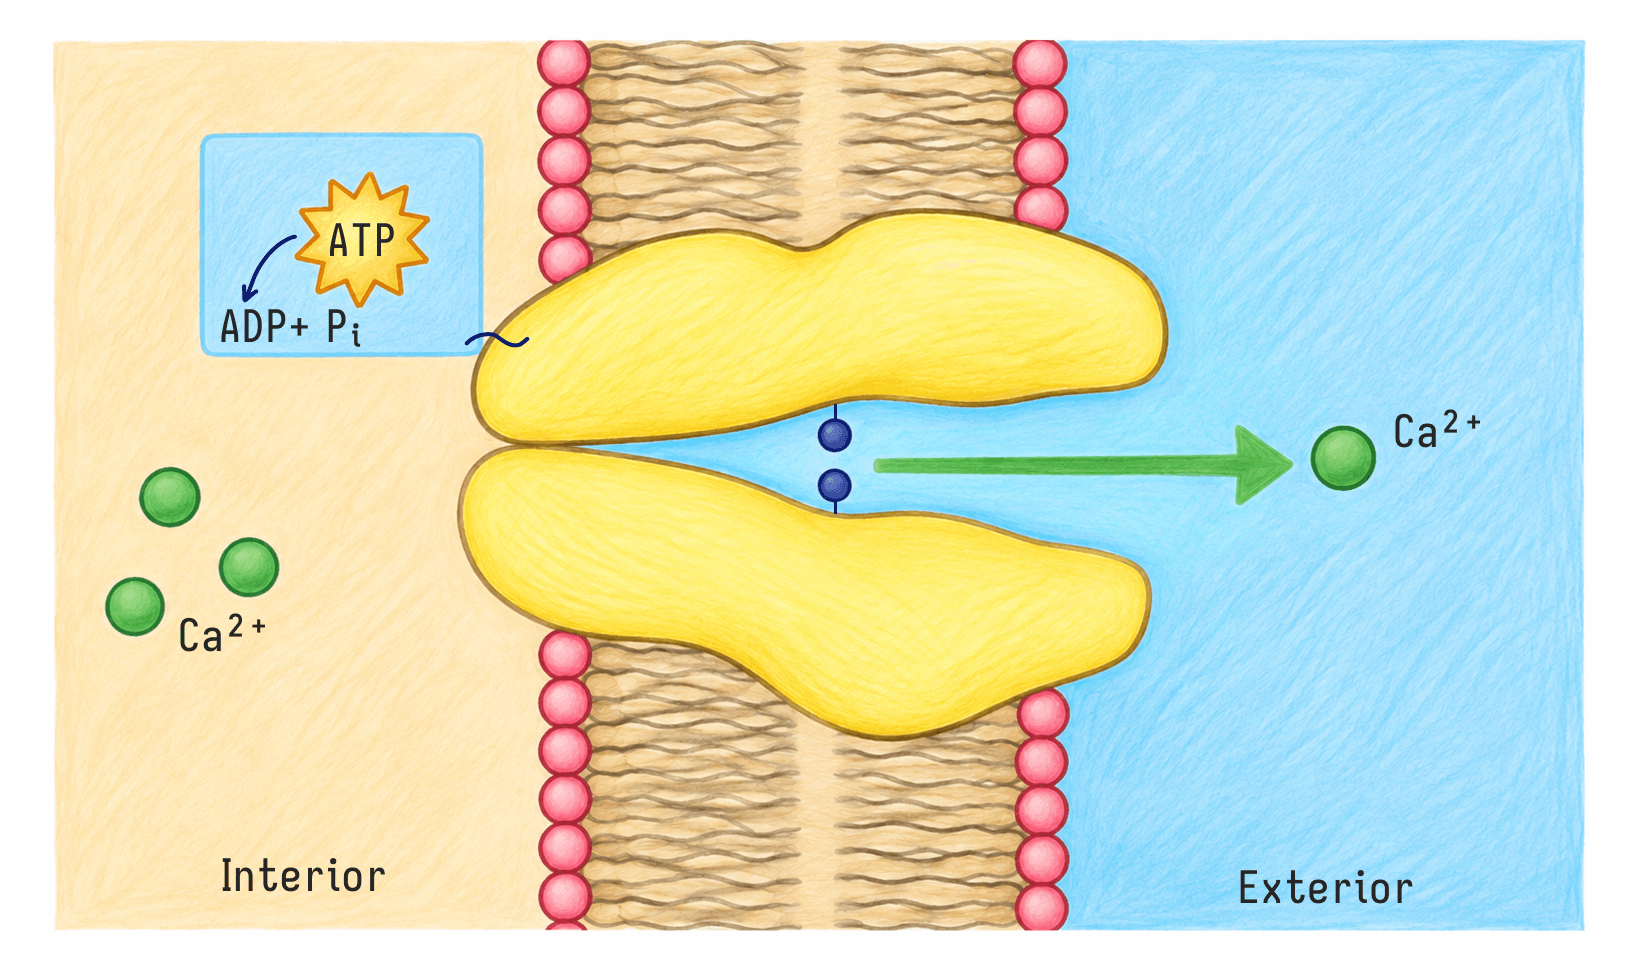
Fig. 8 · Biologie Corint · p. 9
Transportul activFigura ilustrează transportul activ printr-un exemplu: un ion de $\ce{Ca^2+}$ este trecut prin membrana celulară, din interiorul celulei spre exterior, de o proteină transportoare care consumă energie din $\ce{ATP}$. Interiorul celulei este în stânga, exteriorul în dreapta, iar între ele se află membrana, străbătută de proteină. Săgeata verde arată drumul ionului, iar caseta din interior, cu $\ce{ATP}$ și $\ce{ADP + P_i}$, arată de unde vine energia. Membrana Membrana apare ca un bistrat de fosfolipide. Bilele înșirate pe cele două fețe formează straturile hidrofile, iar firele ondulate dintre ele, stratul hidrofob. Acest miez hidrofob restricționează trecerea ionilor, iar membrana nu permite pasajul ionic liber. De aceea, ionul de $\ce{Ca^2+}$ nu traversează stratul de fosfolipide, ci trece prin proteină. Alcătuirea membranei, cu fosfolipidele și proteinele ei, este prezentată în Figura 5. Proteina transportoare și locul de conexiune Proteina transportoare este așezată transmembranar: străbate toată grosimea membranei și iese din ea pe ambele fețe, mai ales spre exterior. Este desenată din două jumătăți care se ating spre interior și lasă între ele un canal ce se lărgește spre exterior. În acest canal, două puncte așezate pe o linie care unește cele două jumătăți marchează locul de conexiune, unde, după cum îi spune și numele, ionul se leagă de proteină. De acolo pornește săgeata spre exterior. În interior se văd trei ioni de $\ce{Ca^2+}$, iar în exterior, la vârful săgeții, ionul transportat. Transportul realizat cu ajutorul proteinelor transportoare este specific și saturabil (există un transport maxim pentru o anumită substanță), iar moleculele care folosesc aceeași proteină pot intra în competiție. Sursa de energie În caseta de lângă proteină, pe partea internă a membranei, o săgeată curbă arată transformarea $\ce{ATP}$ în $\ce{ADP + P_i}$, adică hidroliza ATP-ului. ATP-ul (acidul adenozintrifosforic) este un compus macroergic: înmagazinează o cantitate mare de energie în cele două legături fosfat macroergice ale sale. Prin hidroliză, el pierde un fosfat și devine $\ce{ADP}$, iar energia eliberată este folosită de proteina transportoare. Semnul $\sim$, desenat chiar la marginea proteinei, leagă această reacție de proteină. Ce înseamnă transport activ Transportul activ deplasează moleculele și ionii împotriva gradientelor lor de concentrație, adică spre compartimentul în care concentrația lor este mai mare, și se desfășoară cu consum de energie furnizată de $\ce{ATP}$. Aplicată desenului, regula arată că ionul de $\ce{Ca^2+}$ este dus spre exterior, unde concentrația lui este mai mare decât în interior. Consumul de energie deosebește transportul activ de transportul pasiv (difuziunea, osmoza și difuziunea facilitată). Difuziunea facilitată folosește și ea proteine transportoare, dar mută moleculele conform gradientului de concentrație, fără energie. Difuziunea este ilustrată în Figura 7. Transport activ primar și secundar Manualul deosebește două tipuri: Primar: pentru funcționarea proteinei transportoare este necesară hidroliza directă a ATP-ului. În acest caz, proteinele transportoare se numesc pompe. Desenul arată acest tip, cu $\ce{ATP}$ hidrolizat chiar lângă proteină. Secundar (cotransport): energia necesară pentru a trece o moleculă sau un ion împotriva gradientului său de concentrație provine din transferul altei substanțe conform gradientului ei de concentrație. Ca exemplu, manualul dă pompa de $\ce{Na+}$/$\ce{K+}$. Legătura cu potențialul de membrană Pe aceeași pagină, manualul arată ce face pompa de $\ce{Na+}$/$\ce{K+}$: reintroduce în celulă $\ce{K+}$ difuzat la exterior și expulzează $\ce{Na+}$ pătruns în celulă, în raport de 2 $\ce{K+}$ la 3 $\ce{Na+}$. Astfel, celula își menține relativ constantă concentrația intracelulară a acestor ioni, iar activitatea pompei contribuie la distribuția inegală a sarcinilor de o parte și de alta a membranei, adică la potențialul de membrană.

Fig. 9 · Biologie Corint · p. 10
Potențialul de acțiune la trei tipuri de celuleFigura pune unul sub altul trei grafice ale potențialului de acțiune, adică ale modificării temporare a potențialului de membrană: la un neuron, la o celulă miocardică ventriculară și la o fibră musculară netedă din stomac, de la nivelul antrului piloric. Manualul o folosește ca să arate că mecanismele de producere, aspectul și durata potențialului de acțiune diferă de la un tip de celulă la altul. Principiul de bază este însă același: potențialul de membrană se modifică datorită unor curenți electrici, produși de trecerea ionilor prin canale membranare specifice, care se deschid sau se închid în funcție de valoarea potențialului de membrană. Cum citești graficele Pe verticală este potențialul de membrană, cu două repere, 0 mV și -80 mV. Semnele + și - de lângă 0 mV arată că deasupra acestei linii valorile sunt pozitive, iar dedesubt negative. Pe orizontală este timpul, în milisecunde, dar scara nu este aceeași peste tot: la neuron și la fibra netedă, reperele numerotate sunt 0 și 5 ms, cu o gradație la fiecare milisecundă, iar la celula miocardică sunt 0, 100 și 200 ms. Curba miocardică pare la fel de lată ca celelalte, însă durează de zeci de ori mai mult. Fiecare curbă începe cu un segment orizontal la -80 mV. Acesta este potențialul membranar de repaus, potențialul membranei atunci când la nivelul ei nu se produc impulsuri electrice. Manualul îi dă valori medii între -65 mV și -85 mV, iar valoarea lui se datorează activității pompei $\ce{Na+}$/$\ce{K+}$. Neuronul: fazele potențialului de acțiune Pentru a descrie fazele, manualul ia ca exemplu neuronul, adică primul grafic. Pragul: celula se depolarizează rapid atunci când potențialul de membrană este redus până la un nivel critic, numit potențial prag. Odată atins pragul, depolarizarea este spontană. Panta ascendentă (depolarizarea): urcarea aproape verticală de la -80 mV până la +40 mV, în mai puțin de o milisecundă, cu trecere în valori pozitive. Se datorează creșterii permeabilității membranei pentru $\ce{Na+}$, care intră în celulă prin canale voltaj-dependente, deschise când potențialul de membrană atinge valoarea prag. Panta descendentă (repolarizarea): potențialul revine spre valoarea de repaus, pentru că $\ce{K+}$ iese din celulă prin canale proprii, care se deschid și ele în prezența stimulului. Pe grafic, curba ajunge înapoi la -80 mV în mai puțin de 2 ms, coboară puțin sub această linie și se întoarce la ea după aproximativ 5 ms. Circulația celor doi ioni în timpul celor două pante este schematizată în Figura 10, unde apare și valoarea de +40 mV. Potențialul de acțiune este un răspuns de tip „tot sau nimic”. Stimulii mai slabi decât pragul (subliminari) nu provoacă depolarizarea și nu declanșează un impuls, iar stimulii supraliminari nu produc o reacție mai amplă decât stimulul prag. Vârful de +40 mV nu devine, așadar, mai înalt dacă stimulul este mai puternic. Perioada refractară Este intervalul de timp în care se obține greu un nou potențial de acțiune. Există două perioade refractare: perioada refractară absolută: oricât de intens ar fi stimulul, nu apare un nou potențial de acțiune. Cuprinde panta ascendentă și o porțiune din cea descendentă, deci, pe graficul neuronului, urcarea și partea de sus a coborârii. Se datorează inactivării canalelor pentru $\ce{Na+}$. perioada refractară relativă: un al doilea potențial de acțiune poate fi inițiat dacă stimulul este suficient de puternic, dar panta lui ascendentă apare mai lent, iar amplitudinea lui este mai mică decât în mod normal. Celula miocardică ventriculară Urcarea este la fel de bruscă, dar vârful depășește doar puțin 0 mV. Curba scade apoi ușor și rămâne mult timp aproape orizontală, în jurul lui 0 mV. Abia pe la 150 ms începe să coboare și atinge din nou -80 mV după mai bine de 250 ms. Pragul de excitabilitate și legea „tot sau nimic” sunt comune cu cele ale altor celule excitabile. Inima are însă o particularitate: este excitabilă numai în faza de relaxare (diastolă) și inexcitabilă în faza de contracție (sistolă). Aceasta este legea inexcitabilității periodice a inimii. În sistolă, inima se află în perioada refractară absolută, iar un stimul rămâne fără efect oricât de puternic ar fi. Astfel, stimulii cu frecvență mare nu pot tetaniza inima prin sumarea contracțiilor (tetanosul, o sumație de secuse, apare în Figura 73), iar funcția ei de pompă ritmică se păstrează. Manualul explică starea refractară a inimii prin forma particulară a potențialului de acțiune al fibrei miocardice, adică tocmai forma din acest grafic, cu porțiunea lungă, aproape orizontală. Fibra musculară netedă de la nivelul antrului piloric (gastric) Graficul are aceeași scară a timpului ca al neuronului. Curba urcă brusc de la -80 mV, dar vârful rămâne sub 0 mV, deci potențialul nu trece în valori pozitive. După acest prim vârf, curba scade puțin, apoi se ridică din nou într-o a doua ridicătură, mai joasă și rotunjită, și revine la -80 mV la puțin peste 5 ms. Față de neuron, vârful este mult mai jos, dar curba rămâne mai mult timp departe de valoarea de repaus. Ce urmează: propagarea Odată generat într-un punct al unei membrane excitabile, potențialul de acțiune stimulează zonele vecine și se propagă în ambele sensuri, până la depolarizarea completă a membranei. Transmiterea depolarizării în lungul unei fibre nervoase sau musculare se numește impuls (nervos sau muscular). Cum se deplasează impulsul de-a lungul unui axon și de ce acolo perioada refractară absolută îl face să meargă într-un singur sens vezi în Figura 12.

Fig. 10 · Biologie Corint · p. 10
Difuziunea ionilor de sodiu și de potasiuFigura nu este desenul unei celule, ci o schemă cu săgeți, care arată cum produc ionii de sodiu și de potasiu potențialul de acțiune, adică modificarea temporară a potențialului de membrană. Pornește din mijloc, de la caseta Stimul depolarizant, de unde pleacă două căi: una în sus (notată cu 1), spre chenarul cu $\ce{Na+}$, și una în jos (notată cu 2), spre chenarul cu $\ce{K+}$. Cele două căi corespund celor două pante ale potențialului de acțiune, iar textul scris în dreapta săgeților spune ce devine potențialul de membrană pe fiecare dintre ele. Stimulul depolarizant Nu orice stimul declanșează ce arată figura. Celulele excitabile se depolarizează rapid dacă potențialul lor de membrană este redus până la un nivel critic, numit potențial prag. Potențialul de acțiune este un răspuns de tip „tot sau nimic”: stimulii mai slabi decât pragul (subliminari) nu provoacă depolarizarea, iar cei mai puternici (supraliminari) nu produc o reacție mai amplă decât stimulul prag. Stimulul depolarizant din figură este deci unul care atinge pragul. Calea de sus: intrarea sodiului Stimulul deschide canalele voltaj-dependente pentru $\ce{Na+}$, iar $\ce{Na+}$ difuzează în celulă, ceea ce face ca depolarizarea să crească. Aici este partea de observat: săgețile din chenarul de sus se închid într-un cerc. De la „Depolarizarea crește”, o săgeată însoțită de semnul + se întoarce la deschiderea canalelor pentru $\ce{Na+}$, deci depolarizarea se întreține singură. Asta se potrivește cu ce spune textul despre prag: odată pragul atins, depolarizarea este spontană. Calea aceasta produce panta ascendentă a potențialului de acțiune. Ea apare după atingerea pragului și se datorează creșterii permeabilității membranei pentru $\ce{Na+}$, care intră prin canale specifice acestui ion. Canalele sunt voltaj-dependente: se deschid atunci când potențialul de membrană atinge valoarea prag. Rezultatul este scris alături de săgeată: potențialul de membrană variază de la -65 mV la +40 mV, trecând de la o valoare negativă la una pozitivă. Calea de jos: ieșirea potasiului Același stimul deschide și canalele voltaj-dependente pentru $\ce{K+}$, iar $\ce{K+}$ difuzează în afara celulei, ceea ce face ca depolarizarea să scadă. De data aceasta săgețile nu se mai închid într-un cerc: lanțul se oprește la „Depolarizarea scade”, iar rezultatul scris alături este că potențialul de membrană revine la -65 mV. Aceasta este panta descendentă, adică repolarizarea. Potențialul se întoarce spre valoarea de repaus pentru că $\ce{K+}$ iese din celulă prin canale specifice acestui ion, care se deschid și ele în prezența stimulului. Pe scurt, sodiul intră și urcă potențialul, iar potasiul iese și îl readuce jos. În figură, -65 mV este valoarea de repaus. Pentru potențialul membranar de repaus, manualul dă valori medii între -65 mV și -85 mV. Curba neuronului din Figura 9 pornește de la -80 mV, o valoare din același interval, și urcă tot până la +40 mV. De ce este vorba de difuziune Membrana nu lasă ionii să treacă liber, ci doar prin canale ionice cu structură proteică, cum sunt cele din figură. Odată deschise canalele, ionii le străbat prin difuziune, un transport pasiv, fără consum de energie, care tinde să elimine diferența de concentrație dintre cele două părți ale membranei. Faptul că $\ce{Na+}$ difuzează spre interior, iar $\ce{K+}$ spre exterior, arată că sodiul este mai concentrat în afara celulei, iar potasiul în interiorul ei. Concentrațiile acestea sunt menținute relativ constante de pompa de $\ce{Na+}$/$\ce{K+}$, un mecanism de transport activ, care reintroduce în celulă $\ce{K+}$ difuzat la exterior și expulzează $\ce{Na+}$ pătruns în celulă, în raport de 2 $\ce{K+}$ la 3 $\ce{Na+}$. Perioada refractară și impulsul Inactivarea canalelor pentru $\ce{Na+}$, cele din chenarul de sus, explică perioada refractară absolută. Ea cuprinde panta ascendentă și o porțiune din cea descendentă, iar pe durata ei nu se poate obține un nou potențial de acțiune, oricât de intens ar fi stimulul. Odată generat într-un punct al membranei, potențialul de acțiune stimulează zonele vecine și se propagă. Transmiterea depolarizării în lungul unei fibre nervoase sau musculare se numește impuls. Aceleași mișcări de $\ce{Na+}$ și $\ce{K+}$ apar, de-a lungul unui axon amielinic, în Figura 12.
- IIFuncțiile fundamentale ale organismului umanPaginile 13 - 126
- AFuncțiile de relațiePaginile 13 - 72
- 1Sistemul nervosPaginile 13 - 37
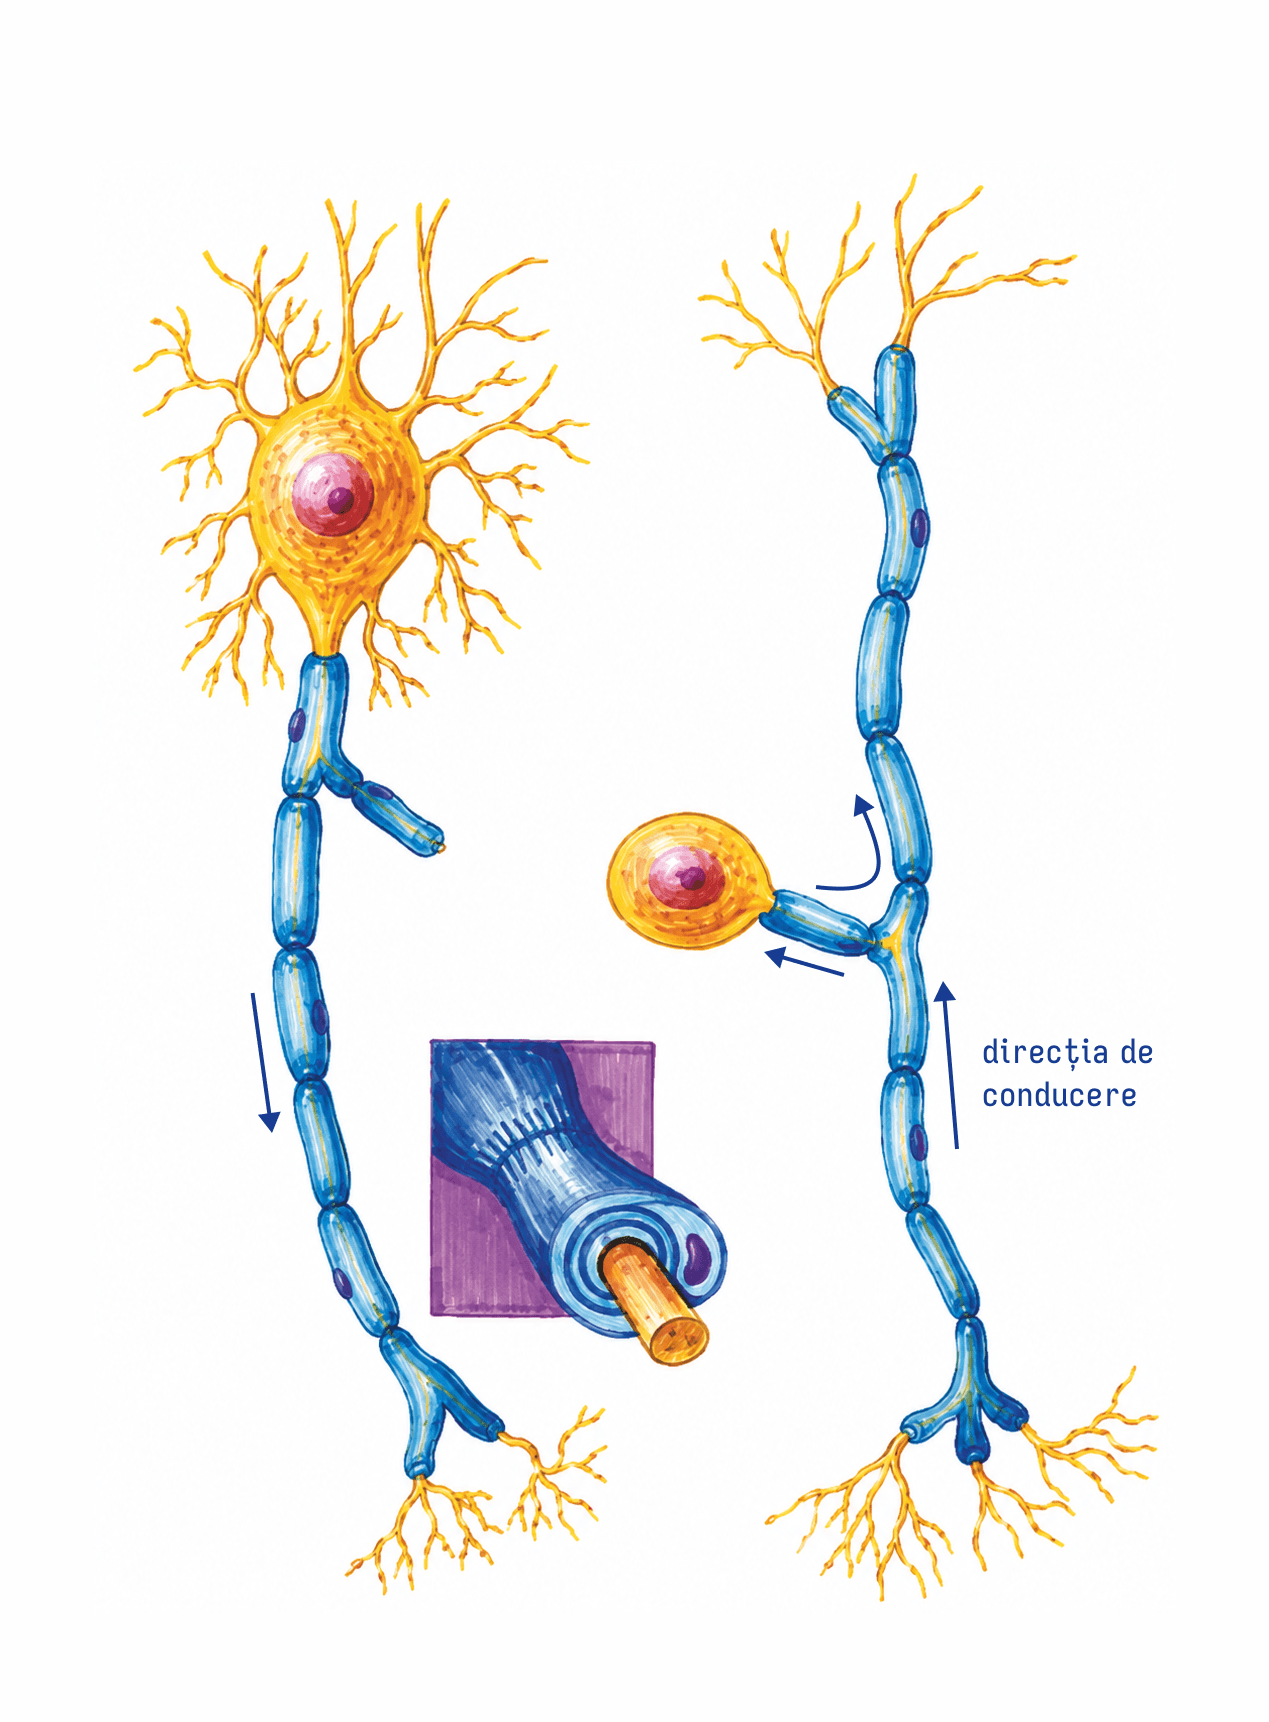
Fig. 11 · Biologie Corint · p. 14
Structura neuronuluiFigura arată alcătuirea neuronului, unitatea morfo-funcțională a sistemului nervos, pe două exemple așezate unul lângă altul: un neuron motor (a), în stânga, și un neuron senzitiv (b), în dreapta. Fiecare are un corp celular și prelungiri de două tipuri, dendritele și axonul. Săgețile de lângă prelungiri, printre care cea marcată „direcția de conducere”, arată sensul în care circulă impulsul nervos. În chenarul din mijloc este mărită o porțiune de fibră mielinizată, secționată ca să se vadă ce învelește axonul. a. Neuronul motor Din corpul lui, de formă stelată, pleacă în toate direcțiile numeroase dendrite scurte și ramificate. Prelungirea lungă care coboară este axonul. Aproape de corp, el emite o colaterală, apoi continuă învelit în celule Schwann și se ramifică la capătul de jos al figurii. Săgeata de lângă axon arată impulsul îndepărtându-se de corpul celular. Forma stelată, numeroasele prelungiri dendritice și axonul unic sunt trăsăturile neuronilor multipolari, cum sunt cei din coarnele anterioare ale măduvei spinării. Neuronii motori au axonii în legătură cu organele efectoare. b. Neuronul senzitiv Corpul, rotunjit, stă deoparte și este legat de fibra lungă printr-o singură prelungire scurtă, care se divide în „T”. Este aspectul neuronilor pseudounipolari din ganglionul spinal, la care dendrita se distribuie la periferie, iar axonul pătrunde în sistemul nervos central. În desen, ramura de jos este dendrita, încheiată prin ramificațiile din dreapta jos, iar ramura de sus este axonul, care se termină prin ramificații cu butoni terminali. Săgețile arată impulsul urcând pe dendrită spre corpul celular și continuând apoi în sus, pe axon. După funcție, manualul îi numește neuroni receptori: prin dendritele lor, ei recepționează stimulii din mediul exterior sau din interiorul organismului. Corpul neuronal (pericarionul) Corpul neuronului este format din neurilemă (membrana plasmatică), neuroplasmă (citoplasma) și nucleu. Neurilema este subțire, delimitează neuronul și are o structură lipoproteică. Celulele nervoase motorii, senzitive și de asociație au un nucleu unic, cu 1-2 nucleoli, iar în desen fiecare nucleu are câte un nucleol. Neuroplasma conține organitele celulare comune (mitocondrii, ribozomi, reticul endoplasmatic), dar nu și centrozomul, pentru că neuronul nu se divide. Mai conține incluziuni pigmentare și două organite specifice: Corpii tigroizi (Nissl), din corpul celular și de la baza dendritelor, sunt echivalenți ai ergastoplasmei pentru celula nervoasă și au rol în metabolismul neuronal. Neurofibrilele formează o rețea care se întinde în neuroplasmă și în prelungiri. Au rol mecanic, de susținere, și în conducerea impulsului nervos. Granulațiile desenate în corpul celular al celor doi neuroni sunt numite în legendă substanță cromatofilă. Prelungirile Dendritele sunt prelungiri celulipete, iar majoritatea neuronilor au mai multe. Sunt mai groase în porțiunea inițială, apoi se subțiază, conțin neurofibrile, recepționează impulsul nervos și îl conduc spre corpul neuronului. Axonul este prelungirea unică, celulifugă, lungă (uneori de 1 m) și mai groasă. Citoplasma lui, axoplasma, conține mitocondrii, vezicule ale reticulului endoplasmatic și neurofibrile, iar membrana care o acoperă, axolema, are un rol important în propagarea impulsului nervos. Colateralele axonice sunt ramuri pe care axonul le emite de-a lungul traseului său, perpendicular pe direcția lui. Ramificațiile cu butoni terminali încheie axonul. Butonii conțin mici vezicule pline cu mediatori chimici, care înlesnesc transmiterea influxului nervos la nivelul sinapselor, precum și neurofibrile și mitocondrii. Tecile axonului Prelungirile lungi ale ambilor neuroni sunt învelite de celule Schwann, un tip de nevroglie care produce teaca de mielină în sistemul nervos periferic, câte o celulă pentru un singur axon. În chenar, capătul secționat al fibrei arată straturile concentrice de mielină din jurul axonului. Mielina are rol de izolator electric, care accelerează conducerea impulsului nervos. Teaca prezintă discontinuități, nodurile Ranvier, care reprezintă spațiul dintre două celule Schwann și se văd ca strangulații de-a lungul fibrelor. Fiecărui segment de mielină dintre două strangulații Ranvier îi corespunde o singură celulă Schwann. Tot la periferie, în jurul tecii de mielină se află teaca Schwann, formată de celulele Schwann, iar teaca Henle separă membrana plasmatică a celulei Schwann de țesutul conjunctiv din jur, cu rol în permeabilitate și rezistență. În sistemul nervos central, mielina este produsă de oligodendrocite, câte o celulă pentru mai mulți axoni, iar tecile Schwann și Henle lipsesc. Axonii cu diametrul mai mic de 2 μ și fibrele postganglionare nu au teacă de mielină. Ce urmează Mielina schimbă și felul în care circulă impulsul. Într-o fibră amielinică, potențialul de acțiune se regenerează de-a lungul axonului (Figura 12). Într-o fibră mielinizată, el apare la nivelul nodurilor Ranvier și „sare” de la un nod la altul, în conducerea numită „saltatorie” (Figura 13), cu viteze mult mai mari (100 m/s, față de 10 m/s în fibrele amielinice). La capătul axonului, veziculele din butonii terminali înlesnesc transmiterea impulsului la nivelul sinapselor (Figura 14).

Fig. 12 · Biologie Corint · p. 15
Conducerea impulsului nervos într-o fibră amielinicăFigura ilustrează conductibilitatea celulei nervoase, adică faptul că potențialul de acțiune apărut într-un punct al axonului se propagă de-a lungul lui. Această transmitere a depolarizării în lungul fibrei nervoase este ceea ce numim impuls nervos. Axonul din desen este amielinic, adică nu are teacă de mielină. Manualul numește două astfel de cazuri: axonii cu diametrul mai mic de 2 µ și fibrele postganglionare. La un astfel de axon, potențialul de acțiune poate să apară în orice zonă a axolemei, membrana care acoperă axoplasma. Același axon este desenat de două ori, iar în ambele desene impulsul înaintează de la stânga la dreapta. Liniile verticale întrerupte împart fibra în trei zone. Desenul de sus arată sarcinile electrice de pe cele două fețe ale membranei, iar cel de jos, ionii care trec prin ea. Desenul de sus: sarcinile de pe membrană În cele două zone laterale, semnele arată distribuția din repaus: sarcini pozitive pe fața externă a membranei și negative pe fața internă. Această distribuție inegală se datorează permeabilității selective a membranei, moleculelor nedifuzibile încărcate negativ din interior și pompei de $\ce{Na+}$/$\ce{K+}$. În zona din mijloc, notată „impuls”, semnele sunt inversate: minus la exterior, plus la interior. Acolo membrana trece prin potențialul de acțiune, o modificare temporară a potențialului de membrană. Săgețile negre curbe leagă zona impulsului de vecinele ei. În afara axonului, ele pornesc din zonele vecine și se îndreaptă spre zona impulsului, iar în interior pleacă din zona impulsului spre cele două zone vecine. Ele ilustrează ideea din manual că proprietățile electrice ale membranei permit depolarizarea regiunilor adiacente. Așa ajunge un potențial de acțiune să producă un nou potențial de acțiune în zona de alături. De ce impulsul merge într-un singur sens Săgețile leagă zona impulsului de ambele zone vecine, nu doar de cea din față. În capitolul despre celulă, manualul arată că un potențial de acțiune stimulează zonele adiacente ale membranei, propagându-se în ambele sensuri. Pe axon, însă, impulsul este condus într-o singură direcție, iar etichetele de sub desen spun de ce: Zona refractară, în stânga, este locul în care s-a produs potențialul de acțiune anterior. Membrana ei se află în stare refractară absolută: canalele pentru $\ce{Na+}$ sunt inactivate, iar oricât de intens ar fi stimulul, aici nu se poate obține un nou potențial de acțiune. Zona ce va fi stimulată, în dreapta, nu a fost încă străbătută de impuls și poate răspunde. Doar aici poate apărea următorul potențial de acțiune. Desenul de jos: ionii care trec prin membrană Zonele poartă acum numele a trei potențiale de acțiune succesive: impuls anterior (fosta zonă refractară), impuls și impuls următor (zona ce va fi stimulată). Citite de la dreapta la stânga, ele arată ce se petrece, pe rând, în același punct al axonului când impulsul trece prin el: Impuls următor: aici ajung sarcinile pozitive venite din zona impulsului (săgeata orizontală îndreptată spre dreapta). În partea dinspre impuls, interiorul are deja câteva sarcini pozitive, iar mai departe este încă negativ, ca în repaus. Membrana se depolarizează, iar când potențialul de membrană atinge potențialul prag, se deschid canalele voltaj-dependente pentru $\ce{Na+}$ și sodiul începe să intre (săgeata albastră întreruptă). Odată pragul atins, depolarizarea este spontană. Impuls: $\ce{Na+}$ intră în axon (săgeata albastră plină), iar interiorul devine pozitiv. Este panta ascendentă a potențialului de acțiune, în care potențialul de membrană variază de la $-65\,\mathrm{mV}$ la $+40\,\mathrm{mV}$. Impuls anterior: $\ce{K+}$ iese din axon (săgeata roșie), iar potențialul revine către valoarea de repaus. Este panta descendentă, adică repolarizarea, și interiorul redevine negativ. Sarcinile pozitive ajung și aici (săgeata orizontală îndreptată spre stânga), dar membrana este încă refractară și nu poate genera un nou potențial de acțiune. Un potențial de acțiune nou în fiecare zonă Fiecare potențial de acțiune de pe axon apare prin depolarizarea produsă de cel dinaintea lui, deci toate sunt consecința primului potențial de acțiune generat pe acel axon. De aceea, manualul consideră termenul de „conducere” impropriu: orice nou potențial de acțiune este un eveniment complet nou, care se regenerează de-a lungul axonului. În fibrele amielinice, viteza este de 10 m/s. În fibrele mielinizate, potențialul de acțiune apare la nivelul nodurilor Ranvier și „sare” de la un nod la altul, cu viteze mult mai mari, de 100 m/s (Figura 13). Potențialul de acțiune și rolul ionilor de sodiu și de potasiu sunt explicate în capitolul despre celulă (Figura 9 și Figura 10).
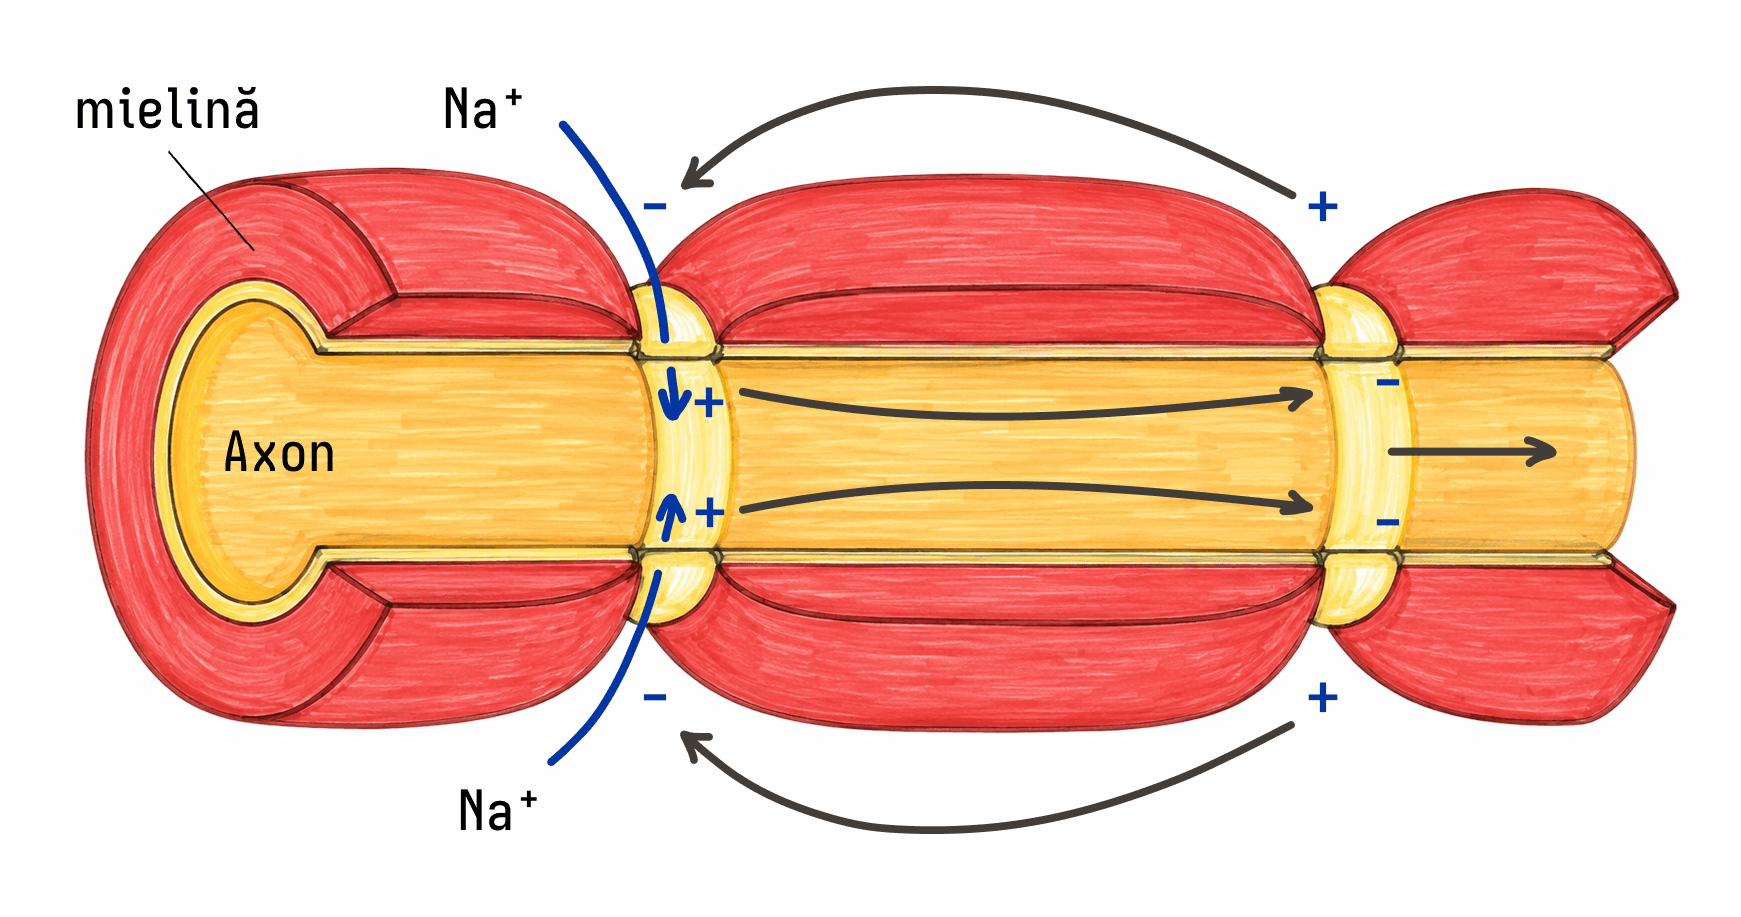
Fig. 13 · Biologie Corint · p. 16
Conducerea saltatorie într-o fibră mielinizatăFigura arată conducerea saltatorie, felul în care se propagă impulsul nervos de-a lungul unui axon învelit în teacă de mielină. Fibra este desenată pe lungime, cu mielina tăiată, ca să se vadă axonul din interior. La capătul din stânga, acolo unde este scris „mielină”, se vede în secțiune grosimea tecii. Impulsul avansează de la stânga la dreapta, în sensul săgeții drepte din axon, de după al doilea nod. Axonul, mielina și nodurile Ranvier Axonul este prelungirea unică și lungă a neuronului și străbate fibra de la un capăt la altul. Membrana lui, axolema, are un rol important în propagarea impulsului nervos. Mielina învelește axonul în segmente groase, așezate unul după altul. Porțiunea de mielină dintre două noduri se numește segment internodal. În sistemul nervos periferic, mielina este produsă de celulele Schwann, iar fiecărui segment internodal îi corespunde o singură celulă Schwann. Rolul mielinei este de izolator electric, care accelerează conducerea impulsului nervos. Nodurile Ranvier nu sunt scrise pe desen, dar se recunosc ușor: sunt cele două strangulații înguste dintre segmentele de mielină. Ele sunt discontinuitățile tecii și reprezintă spațiul dintre două celule Schwann, așa că aici axonul nu mai este acoperit de mielină. De ce „sare” impulsul Într-o fibră amielinică (Figura 12), potențialul de acțiune poate apărea în orice zonă a membranei, iar fiecare zonă o depolarizează pe cea vecină. Aici, datorită proprietăților izolatoare ale mielinei, potențialul de acțiune apare numai la nivelul nodurilor Ranvier. De aceea el „sare” de la un nod la altul, peste segmentele internodale, într-un tip de conducere numit „saltatorie”. Cum se citește desenul Nodul din stânga este cel activ. Săgețile marcate cu $\ce{Na+}$ arată ionii de sodiu care intră în axon, pe deasupra și pe dedesubt. Ca în panta ascendentă a potențialului de acțiune, după atingerea potențialului prag s-au deschis canalele voltaj-dependente pentru $\ce{Na+}$, iar potențialul de membrană a variat de la -65 mV la +40 mV (Figura 10). Semnele desenate arată rezultatul acestei depolarizări: minus la exterior și plus la interior, invers față de repaus. Nodul din dreapta este încă în repaus, cu plus la exterior și minus la interior. El este următorul care va fi stimulat. Săgețile arcuite leagă direct cele două noduri. Prin interiorul axonului, ele merg de la nodul activ spre cel în repaus, iar pe dinafară ocolesc segmentul internodal, pe deasupra și pe dedesubt, înapoi spre nodul activ. Ele ilustrează faptul că potențialul de acțiune de la un nod îl stimulează direct pe următorul, fără ca porțiunea acoperită de mielină să mai genereze un potențial de acțiune. Săgeata dreaptă de după nodul din dreapta arată sensul în care merge impulsul. Când acest nod atinge pragul, apare aici un nou potențial de acțiune, care îl va stimula, la rândul lui, pe nodul următor. Cât de repede Acest tip de conducere permite viteze mult mai mari: 100 m/s, față de 10 m/s în fibrele amielinice. Aceasta explică apariția mai rapidă a unor reflexe decât altele. Nu toate fibrele au însă mielină: axonii cu diametrul mai mic de 2 μ și fibrele postganglionare nu au teacă de mielină, așa că în ele impulsul se propagă ca într-o fibră amielinică. Mielina, celulele Schwann și nodurile Ranvier sunt marcate, pe desenul întregului neuron, în Figura 11.
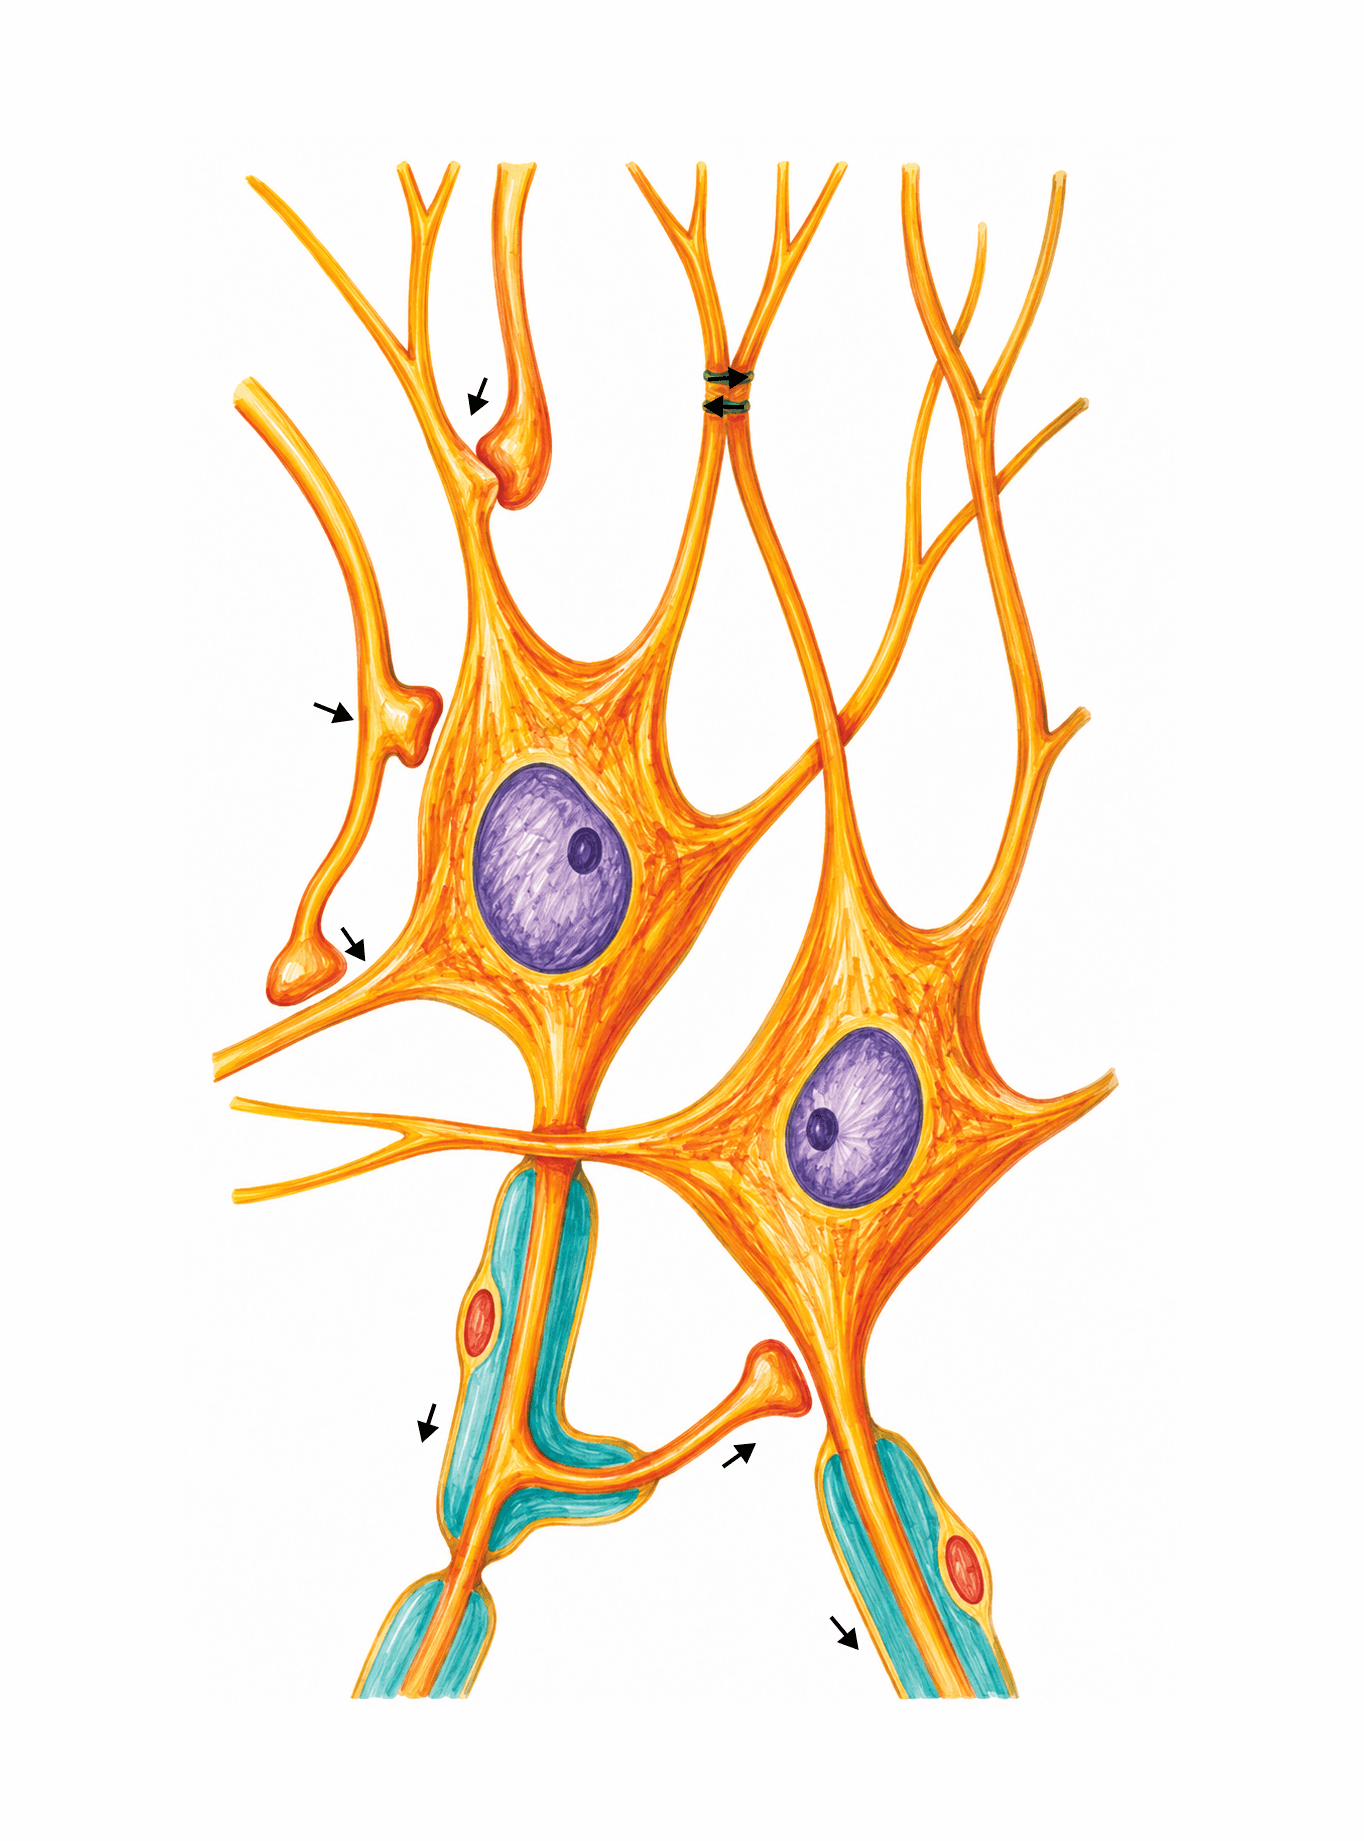
Fig. 14 · Biologie Corint · p. 16
Tipuri de sinapseFigura arată cum iau contact neuronii între ei, prin sinapse. Sunt desenați doi neuroni multipolari, cu formă stelată: unul sus, în stânga, și celălalt mai jos, în dreapta. Fiecare are corpul celular, un nucleu cu nucleol, numeroase dendrite și un singur axon. Printre prelungirile lor apar și capetele unor axoni veniți din afara desenului. Cele mai multe săgeți arată locurile de contact, iar fiecare loc este notat cu o literă, după părțile neuronilor care se întâlnesc acolo. Ce este sinapsa Sinapsa este conexiunea funcțională dintre un neuron și o altă celulă. În sistemul nervos central (SNC), a doua celulă este tot un neuron, dar în sistemul nervos periferic (SNP) ea poate fi o celulă efectoare, musculară sau secretorie. Deși seamănă cu sinapsa neuro-neuronală, sinapsa neuromusculară are un nume propriu: placă motorie sau joncțiune neuromusculară. Toate contactele din figură sunt sinapse neuro-neuronale. Cum recunoști prelungirile Ca să numești o sinapsă, trebuie să știi ce părți ale neuronilor se întâlnesc în ea. Pe lângă corpul celular (pericarionul), neuronul are prelungiri de două tipuri, prezentate pe larg în Figura 11: Dendritele sunt prelungirile numeroase și ramificate care pleacă din fiecare corp celular, mai ales în sus. Ele recepționează impulsul nervos și îl conduc spre corpul neuronului. Axonul este prelungirea unică, cea care coboară spre partea de jos a desenului, unde este îmbrăcată în teaca de mielină. Cele două săgeți îndreptate în jos, de-a lungul axonilor mielinizați, arată direcția de conducere, dinspre corpul celular spre terminații, pentru că axonul este celulifug. Axonul emite colaterale, iar ultimele lui ramificații, butonii terminali, conțin mici vezicule cu mediatori chimici, care înlesnesc transmiterea la nivelul sinapselor. În desen, butonii sunt umflăturile rotunjite lipite de celula vecină. Cele patru tipuri din figură După părțile neuronilor care vin în contact, sinapsele neuro-neuronale pot fi de patru tipuri, toate prezente în desen: Axodendritice, între axonul unui neuron și dendrita altuia. Apar în două locuri: sus, unde butonul unui axon coborât din afara desenului se sprijină pe o dendrită a neuronului din stânga, și mai jos, pe marginea stângă, unde un axon lung se termină pe o altă dendrită a aceluiași neuron. Axoaxonice, între axonii a doi neuroni. În partea de jos, o colaterală a axonului neuronului din stânga se termină cu un buton pe axonul neuronului din dreapta, puțin sub corpul celular al acestuia. Dendrodendritice, între dendritele a doi neuroni. Sus, în centru, o dendrită a neuronului din stânga și una a neuronului din dreapta vin în contact, iar două săgeți mici marchează locul. Axosomatice, între axonul unui neuron și corpul celular al altuia. Axonul lung de pe marginea stângă trimite un buton scurt care se lipește direct de corpul neuronului din stânga. Sinapse chimice și sinapse electrice După mecanismul prin care se face transmiterea, sinapsele pot fi chimice sau electrice. Legenda figurii o notează ca electrică doar pe cea dendrodendritică. Celelalte trei se fac prin butoni terminali, cu vezicule de mediator, deci sunt sinapse chimice. Manualul le compară astfel: Alcătuire. Sinapsa chimică are o terminație presinaptică, ce conține vezicule cu mediator chimic (se cunosc peste 40 de mediatori chimici, cel mai răspândit fiind acetilcolina), fanta sinaptică și celula postsinaptică, care prezintă receptori pentru mediatorul chimic. Sinapsa electrică este formată din două celule de aceleași dimensiuni, alipite în zonele lor de rezistență electrică minimă. Mod de funcționare. La sinapsa chimică, sub acțiunea impulsului nervos, se eliberează cuante de mediator în fanta sinaptică. Mediatorul interacționează cu receptorii specifici de pe membrana postsinaptică și determină modificări ale potențialului acesteia. Conducerea este unidirecțională, dinspre terminația presinaptică spre cea postsinaptică. La sinapsa electrică, ionii și moleculele trec prin locurile de joncțiune, iar conducerea este, se pare, bidirecțională. Exemple. Sunt chimice aproape toate sinapsele din SNC, placa motorie și sinapsele din sistemul nervos vegetativ. Sinapse electrice se găsesc în miocard, în mușchiul neted și în anumite regiuni din creier. Mai departe: transmiterea sinaptică O sinapsă chimică văzută de aproape, cu terminația presinaptică, fanta sinaptică și receptorii membranei postsinaptice, este desenată în Figura 15. Interacțiunea mediatorului cu receptorii produce depolarizarea membranei postsinaptice. Când celula postsinaptică este un neuron, cum se întâmplă la sinapsele chimice din această figură, depolarizarea se numește potențial postsinaptic excitator.

Fig. 15 · Biologie Corint · p. 17
Transmiterea sinapticăFigura arată o sinapsă chimică și drumul pe care îl face semnalul nervos prin ea. Sinapsa este conexiunea funcțională dintre un neuron și o altă celulă. În SNC, a doua celulă este tot un neuron, iar în SNP ea poate fi o celulă efectoare, musculară sau secretorie. Desenul se citește de sus în jos. Sus se află butonul terminal al unui axon, una dintre ultimele lui ramificații (Figura 11), iar dedesubt, celula cu care acesta face sinapsă. Cercul mic desenat peste zona de contact este mărit în cercul mare din dreapta, unde se văd cele două membrane și spațiul dintre ele. Alcătuirea sinapsei chimice Terminația presinaptică este butonul terminal, umflătura mare din partea de sus. Conține vezicule cu mediator chimic: în desen se văd cinci vezicule rotunde, verzi, iar alte două s-au lipit de membrana presinaptică și s-au deschis spre fantă. Acetilcolina este mediatorul chimic din vezicule, desenat ca puncte verzi. Se cunosc peste 40 de mediatori chimici, numiți și neurotransmițători, iar acetilcolina este cel mai răspândit dintre ei. Fanta sinaptică este spațiul îngust dintre membrana presinaptică și cea postsinaptică, banda albă în care se împrăștie punctele verzi ale mediatorului eliberat. Celula postsinaptică este celula care primește semnalul, desenată sub fantă. Pe membrana ei, membrana postsinaptică, se află receptorii pentru mediatorul chimic. Receptorii sunt fixați în membrana postsinaptică și se văd cel mai bine în detaliul mărit. Sunt specifici pentru mediatorul chimic. Cum decurge transmiterea Eliberarea mediatorului. Sub acțiunea impulsului nervos, din terminația presinaptică se eliberează cuante de mediator chimic în fanta sinaptică. În detaliul mărit se vede de aproape una dintre veziculele deschise: membrana presinaptică se arcuiește ca o boltă deschisă spre fantă, iar din ea ies punctele verzi. Traversarea fantei. Mediatorul străbate fanta până la membrana postsinaptică. Cele trei săgeți mici din detaliul mărit arată acest sens, de sus în jos. Interacțiunea cu receptorii. Mediatorul chimic interacționează cu receptorii specifici de pe membrana postsinaptică și determină modificări ale potențialului acesteia. Depolarizarea membranei postsinaptice. Ea se numește potențial postsinaptic excitator când celula postsinaptică este un neuron și potențial terminal de placă când este o fibră musculară scheletică. Sinapsa neuromusculară se numește placă motorie sau joncțiune neuromusculară (Figura 74). Acest potențial nu trebuie confundat cu potențialul de acțiune. De ce transmiterea are un singur sens La nivelul sinapselor, transmiterea se face într-un singur sens, dinspre terminația presinaptică spre celula postsinaptică. Desenul sugerează și motivul: veziculele cu mediator se află numai în terminația presinaptică, iar receptorii numai pe membrana postsinaptică, așa că mediatorul nu poate porni decât dintr-o parte. Sumația temporală și sumația spațială Potențialul postsinaptic are două proprietăți speciale: Sumația temporală: două asemenea potențiale, produse prin descărcări de mediator din aceeași fibră presinaptică, se pot suma, rezultând un potențial mai mare. Sumația spațială: potențialele postsinaptice excitatorii produse de două terminații presinaptice vecine pe aceeași membrană postsinaptică se pot cumula. Sinapsa chimică și sinapsa electrică După mecanismul prin care se face transmiterea, sinapsele pot fi chimice, ca aceea din figură, sau electrice. Sunt chimice aproape toate sinapsele SNC, placa motorie și sinapsele din SN vegetativ. La o sinapsă electrică, două celule de aceleași dimensiuni sunt alipite în zonele lor de rezistență electrică minimă, iar transmiterea se face prin trecerea ionilor și a moleculelor prin aceste locuri de joncțiune. Conducerea lor este, se pare, bidirecțională. Sinapse electrice există în miocard, în mușchiul neted și în anumite regiuni din creier. După prelungirile care se întâlnesc, sinapsele neuro-neuronale pot fi axosomatice, axodendritice, axoaxonice sau dendrodendritice (Figura 14). Oboseala transmiterii sinaptice Dacă sinapsele excitatorii sunt stimulate repetat și rapid, neuronul postsinaptic produce la început descărcări foarte numeroase, dar în milisecundele următoare numărul lor scade accentuat. Este un mecanism de protecție împotriva suprastimulării, care se realizează prin epuizarea depozitelor de mediator chimic din terminația presinaptică. Transmiterea sinaptică este influențată și de medicamente: unele cresc excitabilitatea sinapselor (cofeina), altele o scad (unele anestezice).
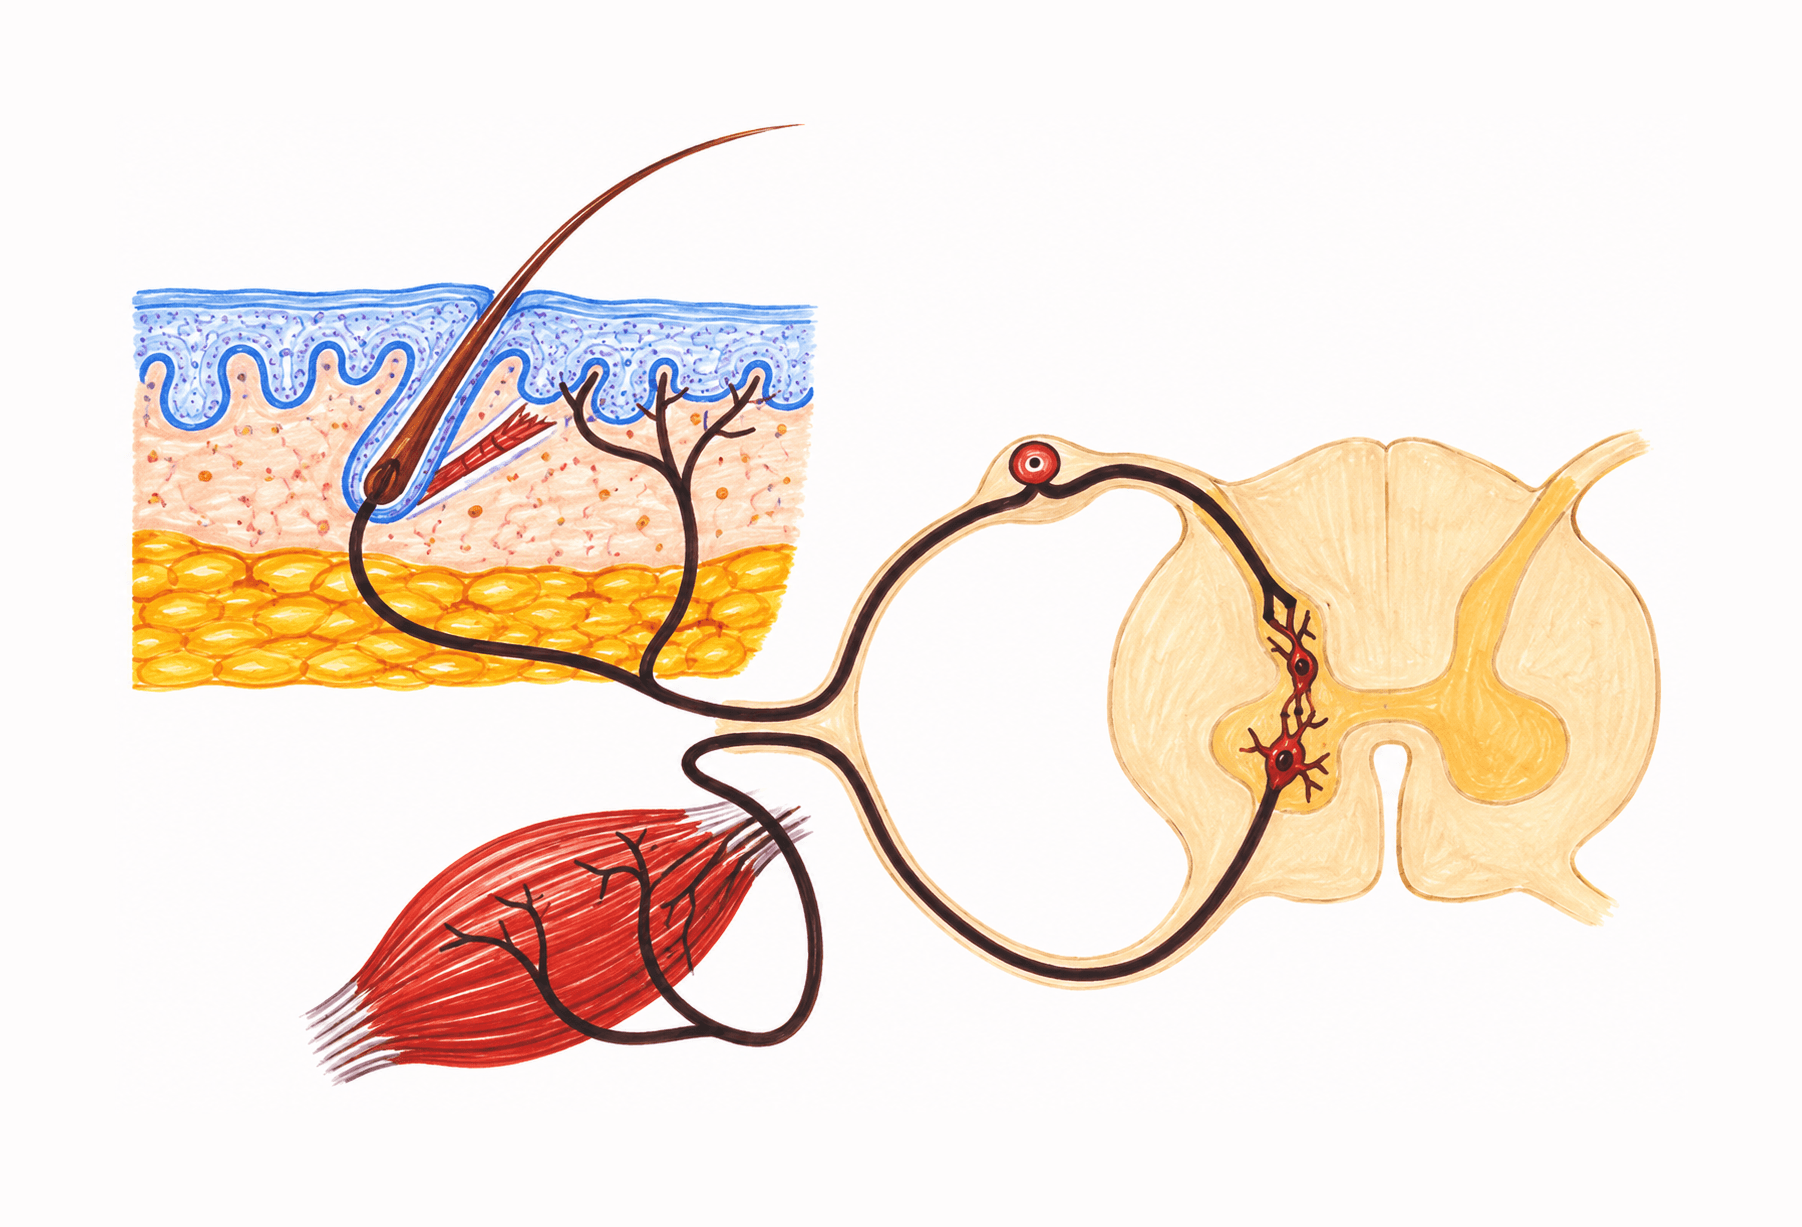
Fig. 16 · Biologie Corint · p. 17
Arcul reflexFigura prezintă arcul reflex, baza anatomică a actului reflex. Desenul se citește urmărind fibrele nervoase: traseul pornește din fragmentul de piele din stânga sus, ajunge la măduva spinării, desenată în secțiune transversală în dreapta, și se întoarce la mușchiul din stânga jos. Pe acest drum, cele cinci componente se succed în ordinea în care circulă informația: receptor → cale aferentă → centru → cale eferentă → efector. Reflexul și arcul reflex Mecanismul fundamental de funcționare a sistemului nervos este actul reflex. Reflexul reprezintă reacția de răspuns a centrilor nervoși la stimularea unei zone receptoare, iar răspunsul poate fi excitator sau inhibitor. Termenul de reflex a fost introdus de matematicianul și filozoful francez René Descartes (1596-1650). Țineți minte diferența dintre cele două noțiuni: reflexul este răspunsul, iar arcul reflex este suportul lui anatomic. Cele cinci componente, pe desen Receptorul este o structură excitabilă care răspunde la stimuli prin variații de potențial gradate proporțional cu intensitatea stimulului. La nivelul lui, energia stimulului este transformată în impuls nervos. În desen, receptorul este reprezentat de terminațiile ramificate ale fibrei nervoase din grosimea pielii. Calea aferentă duce impulsul de la receptor spre centru. Receptorii vin în contact sinaptic cu terminațiile dendritice ale neuronilor senzitivi din ganglionii spinali sau de pe traiectul unor nervi cranieni. În desen, fibra pornește din piele și intră în măduvă prin partea de sus a secțiunii, adică prin rădăcina posterioară. Mica formațiune rotundă de pe acest traseu, chiar lângă măduvă, este ganglionul spinal, în care se află corpul neuronului senzitiv: dendrita lui, lungă, ajunge la receptorii din piele, iar axonul pătrunde în măduvă. Centrul unui reflex înseamnă totalitatea structurilor din sistemul nervos central care participă la actul reflex respectiv. În desen, centrul se află în substanța cenușie a măduvei, zona în formă de „H” din mijlocul secțiunii. Aici, fibra aferentă se termină pe un prim neuron, iar acesta se leagă de un al doilea neuron, mai mare, așezat în cornul anterior. Sistemul nervos central are trei niveluri majore, cu atribute funcționale specifice: nivelul măduvei spinării, nivelul subcortical și nivelul cortical. Arcul din desen se închide la nivelul măduvei spinării. Calea eferentă este formată din axonii neuronilor motori somatici și vegetativi, prin care se transmite comanda către organul efector. În desen, axonul neuronului motor din cornul anterior iese prin partea de jos a secțiunii, adică prin rădăcina anterioară, și ajunge fără întrerupere la mușchi. Aproape de măduvă, el trece pe lângă fibra aferentă, acolo unde cele două rădăcini se unesc în trunchiul nervului spinal, care este mixt, cu fibre atât senzitive, cât și motorii. Efectorul execută răspunsul. Principalii efectori sunt mușchii striați, mușchii netezi și glandele exocrine. În desen, efectorul este un mușchi scheletic, în care fibra eferentă se ramifică. Câți neuroni are arcul din desen Urmărind fibrele, puteți număra trei neuroni: neuronul senzitiv din ganglionul spinal, neuronul din substanța cenușie pe care se termină fibra aferentă și neuronul motor din cornul anterior. Fibra aferentă nu se leagă direct de neuronul motor, așa că centrul cuprinde mai multe sinapse. Aceasta este alcătuirea reflexelor polisinaptice, cum sunt reflexele nociceptive, în al căror arc apare un neuron de asociație (Figura 24). La reflexele monosinaptice, precum reflexul rotulian, centrul este chiar sinapsa dintre neuronul senzitiv și cel motor (Figura 23). Calea eferentă din desen are un singur neuron, al cărui axon ajunge direct la mușchi, deci arcul desenat este unul somatic. Arcul reflex vegetativ are aceleași componente, dar calea lui eferentă cuprinde doi neuroni, preganglionar și postganglionar, care fac sinapsă într-un ganglion vegetativ (Figura 40). Mai multe despre receptori Majoritatea receptorilor sunt celule epiteliale diferențiate și specializate în celule senzoriale (gustative, auditive, vestibulare). Alții sunt corpusculi senzitivi, mici organe pluricelulare alcătuite din celule, fibre conjunctive și terminații nervoase dendritice (receptorii tegumentari, proprioceptorii). Uneori, rolul de receptori îl îndeplinesc chiar terminațiile butonate ale dendritelor (neuronul receptorului olfactiv, receptorii dureroși). Receptorii se clasifică: după proveniența stimulului: exteroreceptori (stimuli din afara organismului), interoreceptori sau visceroreceptori (stimuli din interiorul organismului) și proprioreceptori (stimuli de la mușchi, tendoane, articulații) după tipul de energie prelucrată: chemoreceptori, fotoreceptori, termoreceptori și mecanoreceptori după viteza de adaptare: fazici, a căror activitate scade deși stimulul se menține (receptorul olfactiv), și tonici, cu activitate relativ constantă pe toată durata stimulului (receptorul vizual)
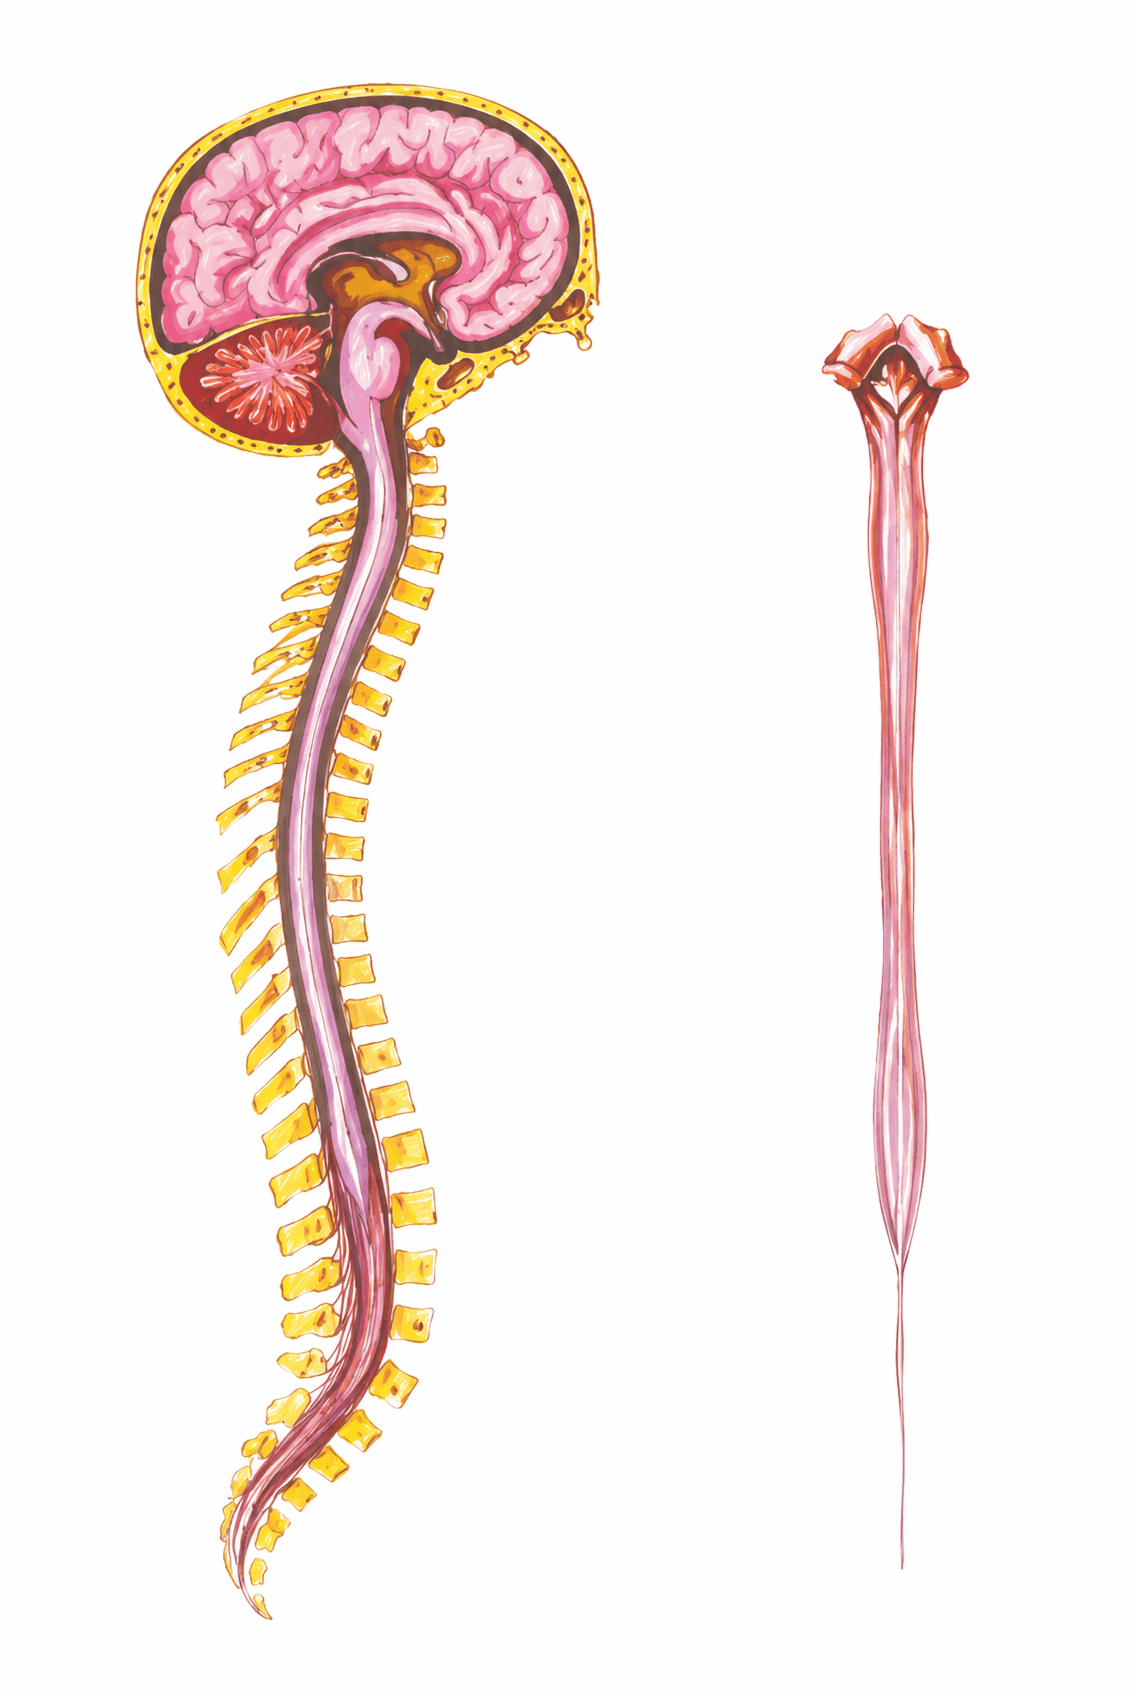
Fig. 17 · Biologie Corint · p. 18
Creierul și măduva spinării (secțiune sagitală)Figura arată unde se află măduva spinării și cum arată ea de la un capăt la altul. Are două desene. Cel din stânga este o secțiune sagitală prin cap și prin coloana vertebrală: sus, în craniu, se vede encefalul, iar de la baza craniului măduva coboară prin coloană, urmându-i curburile. Cel din dreapta prezintă doar măduva, scoasă din coloană și așezată drept, ca să i se vadă mai bine forma. Dilatația cervicală și cea lombară sunt însemnate în ambele desene, așa că le poți compara. Encefalul și măduva spinării Cele două organe din desenul din stânga alcătuiesc împreună sistemul nervos central. Encefalul, adăpostit de cutia craniană, cuprinde trunchiul cerebral, cerebelul, diencefalul și emisferele cerebrale. Măduva spinării este protejată de coloana vertebrală, în canalul vertebral, pe care manualul îl numește și canal rahidian. În desen, măduva se continuă fără întrerupere cu encefalul. Bulbul, unul dintre cele trei etaje ale trunchiului cerebral, poartă chiar numele de „măduva prelungită”. Limita superioară: gaura occipitală Măduva începe la baza craniului. Limita ei superioară corespunde găurii occipitale, aflată în desenul din stânga chiar sub encefal, sau, altfel spus, emergenței primului nerv spinal (C1). Cele două repere sunt la același nivel: la nervii spinali, manualul arată că primul nerv cervical iese între osul occipital și prima vertebră cervicală, adică exact la granița dintre craniu și coloană. Măduva în canalul vertebral Canalul vertebral se formează prin suprapunerea orificiilor vertebrale. În vertebra tip, orificiul vertebral este delimitat de corpul vertebral, de pediculii vertebrali și de arcul vertebral (Figura 66). Măduva stă în acest canal, dar nu îl ocupă în întregime. Pe lungime, ea se oprește în dreptul vertebrei L2, a doua vertebră lombară, deși coloana continuă mai jos cu celelalte vertebre lombare, cu osul sacru și cu coccigele. Cele două dilatări Măduva nu are aceeași grosime pe toată lungimea. În dreptul regiunilor cervicală și lombară, ea prezintă două porțiuni mai voluminoase, intumescențele (dilatările) cervicală și lombară, care corespund membrelor. Se văd cel mai bine în desenul din dreapta: dilatația cervicală în partea de sus, puțin sub capătul superior al măduvei, iar dilatația lombară în partea de jos, chiar deasupra conului medular. Manualul revine la ele când descrie substanța cenușie: coarnele anterioare conțin dispozitivul somatomotor, care este mai bine dezvoltat tocmai în regiunile dilatărilor (Figura 19). Sub vertebra L2: conul medular și filum terminale Sub vertebra L2, măduva se prelungește cu conul medular, porțiunea în care se îngustează treptat până la un vârf, iar conul se continuă cu filum terminale, un fir subțire. Amândouă sunt însemnate în desenul din dreapta, la capătul de jos al măduvei. De o parte și de alta a conului medular și a filumului terminal, nervii lombari și sacrali, cu direcție aproape verticală, formează „coada de cal”. Aceasta nu este însemnată în figură. În jurul măduvei Nici pe lățime măduva nu umple canalul vertebral. Între peretele osos al vertebrelor și măduvă se află cele trei membrane ale meningelor spinale (dura mater, arahnoida și pia mater), care asigură protecția și nutriția măduvei (Figura 18).

Fig. 18 · Biologie Corint · p. 19
Meningele spinale și raporturile măduvei cu vertebraFigura arată o vertebră secționată transversal, cu măduva spinării așezată în orificiul vertebral și învelită de cele trei membrane ale meningelor spinale. Desenul este orientat cu partea anterioară în jos: corpul vertebral ocupă jumătatea de jos a figurii, iar apofiza spinoasă, posterioară, se află în vârf. Se citește cel mai ușor de la peretele osos spre centru, adică de la vertebră la membranele meningelor și apoi la măduvă. La final, urmărește nervii spinali, care pleacă din dreptul măduvei și ies lateral din canal. Vertebra și canalul vertebral Vertebra tip are în partea anterioară corpul vertebral, iar posterior arcul vertebral, legat de corp prin doi pediculi vertebrali. Între corp, pediculi și arc rămâne orificiul vertebral. Prin suprapunerea orificiilor vertebrale se formează canalul vertebral, care adăpostește măduva. Protejarea măduvei spinării este, de altfel, unul dintre cele trei roluri ale coloanei vertebrale. Din arcul vertebral pornesc apofiza spinoasă, care iese pe linia mediană, spre spate, și cele două apofize transverse, câte una de fiecare parte, îndreptate lateral. Părțile vertebrei tip sunt prezentate în Figura 66, unde vertebra este desenată invers, cu corpul în sus. Cele trei membrane, de la exterior spre interior Între peretele osos și măduvă se află cele trei membrane ale meningelor vertebrale, care asigură protecția și nutriția măduvei. În desen, ele o înconjoară ca niște inele concentrice: Dura mater este membrana exterioară, cea mai apropiată de os. Are o structură fibroasă, rezistentă, și este separată de pereții canalului vertebral prin spațiul epidural. Arahnoida urmează spre interior. Are o structură conjunctivă și este separată de pia mater printr-un spațiu care conține lichidul cefalorahidian (LCR). În figură, acest spațiu este inelul dintre arahnoidă și suprafața măduvei. Pia mater este membrana cea mai profundă, conjunctivo-vasculară, cu rol nutritiv. Învelește măduva și aderă la ea, pătrunzând în șanțuri și în fisuri. În grosimea ei se găsesc vase arteriale. Măduva spinării În secțiune transversală, măduva are în centru substanța cenușie, cu aspectul literei „H”, iar la periferie substanța albă, dispusă sub formă de cordoane (Figura 19). Linia adâncă din partea ei de jos este fisura mediană anterioară, orientată spre corpul vertebral. Măduva nu ocupă în întregime canalul vertebral: limita ei inferioară se află în dreptul vertebrei L2. Nervul spinal De fiecare parte, desenul arată câte un nerv spinal care iese lateral din canal, între apofiza transversă și corpul vertebral, și se ramifică la scurtă distanță după ieșire. Nervii spinali sunt formați din două rădăcini: una anterioară, motorie, și una posterioară, senzitivă, care prezintă pe traiect ganglionul spinal. Rădăcinile se unesc în trunchiul nervului spinal, care este mixt și iese din canalul vertebral prin gaura intervertebrală (orificiul intervertebral sau de conjugare), pe care o delimitează pediculii vertebrali suprapuși. După un scurt traiect, nervul se desface în ramurile sale: ventrală, dorsală, meningială și comunicanta albă. Ramura meningială se leagă direct de subiectul acestei figuri, pentru că duce fibre senzitive și vasomotorii la meninge. Componentele nervului spinal sunt arătate în Figura 38. Legătura cu patologia Inflamația meningelor, la nivel spinal sau cerebral, se numește meningită și poate avea multiple etiologii, bacteriene sau virale.
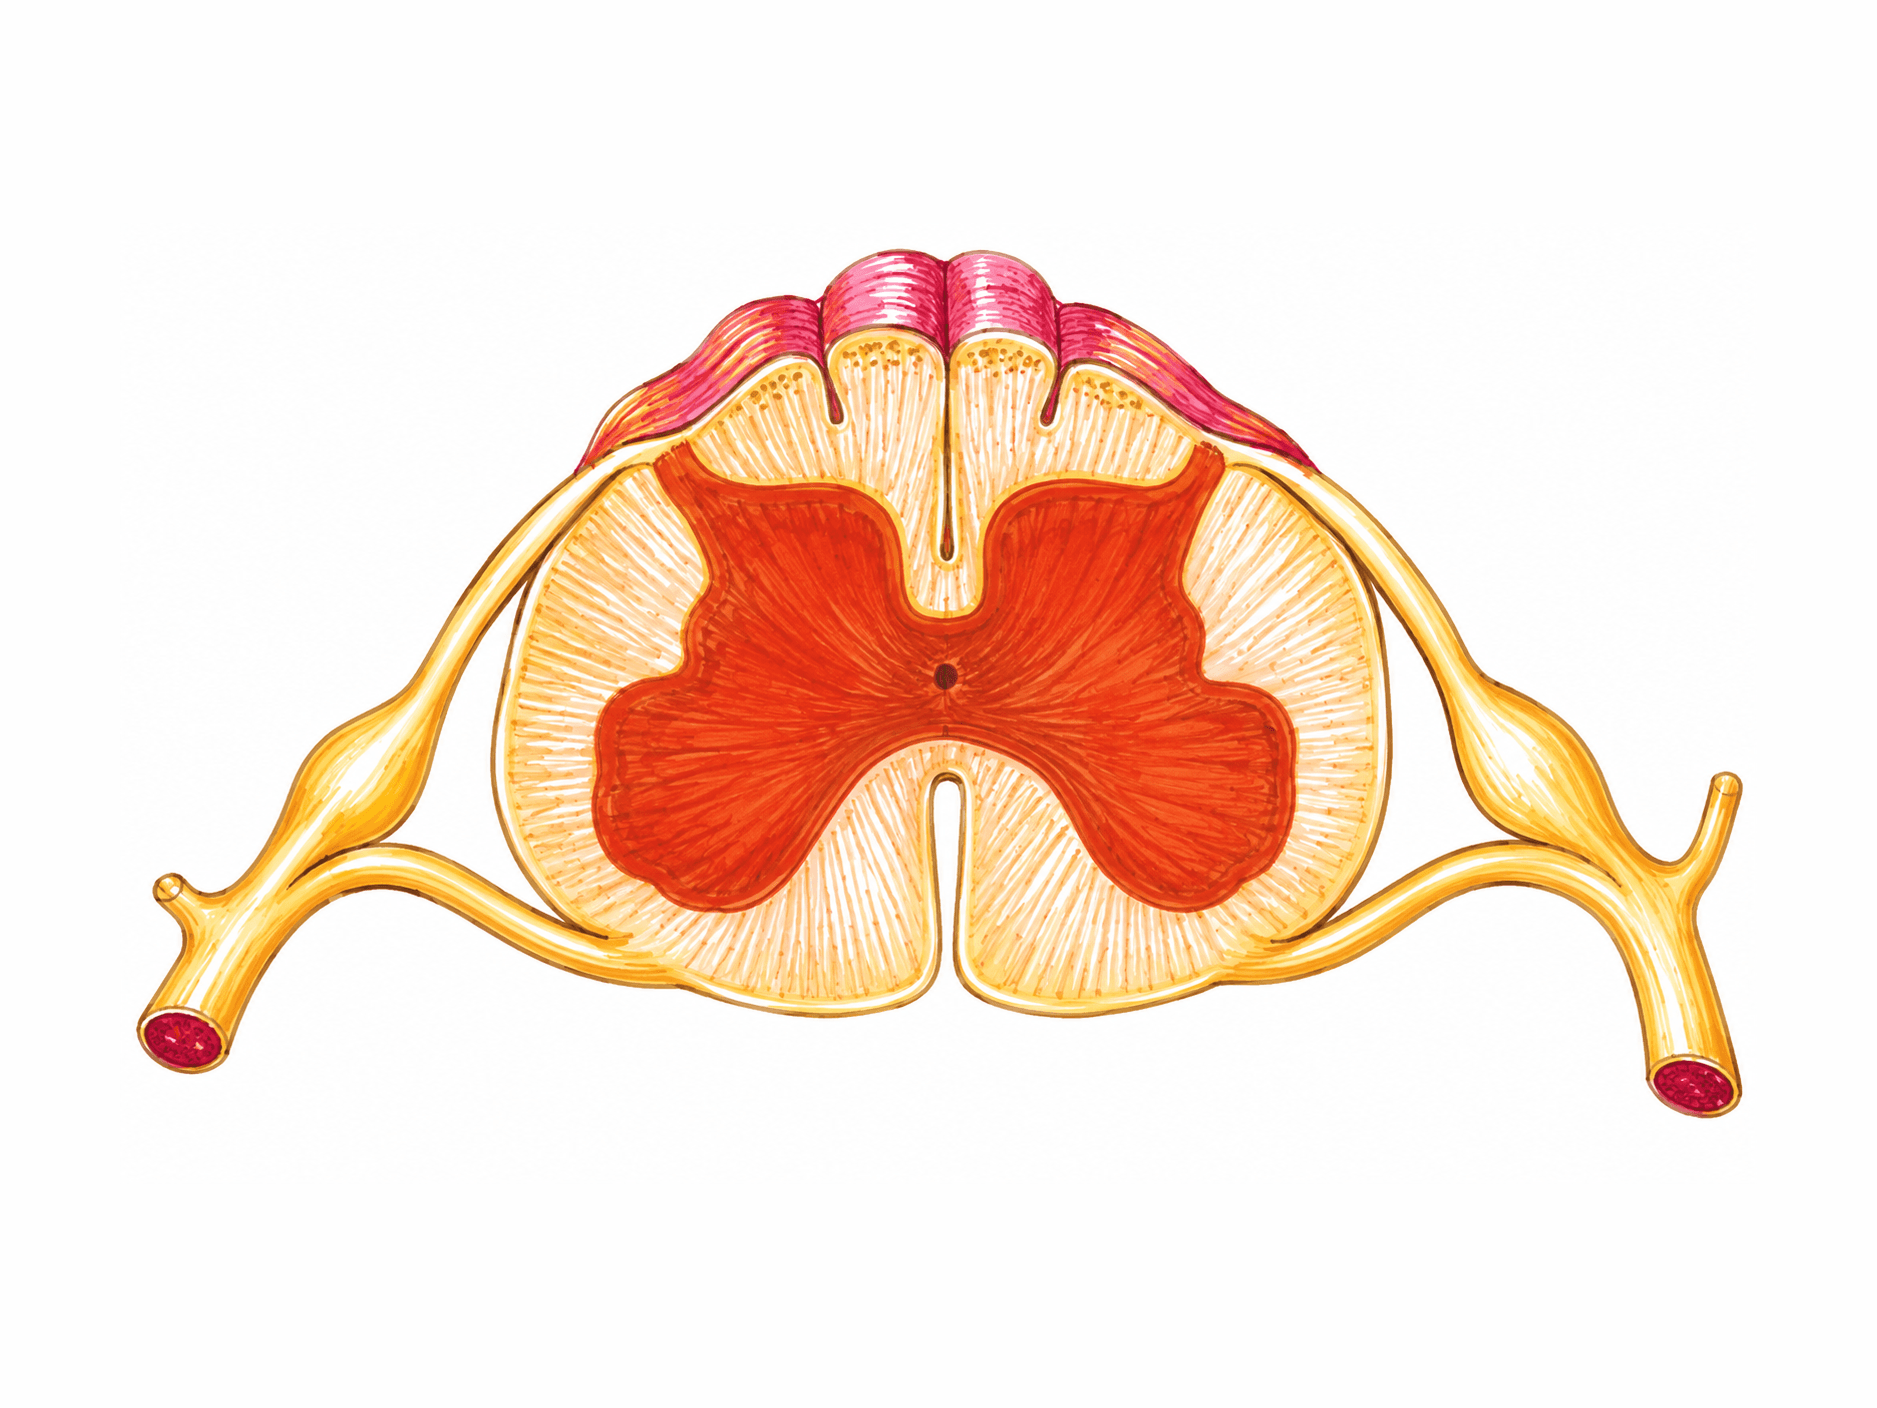
Fig. 19 · Biologie Corint · p. 19
Măduva spinării (secțiune transversală)Figura arată măduva spinării secționată transversal, adică tăiată de-a curmezișul. Fața posterioară (dorsală) este desenată sus, iar cea anterioară (ventrală) jos. Pe linia mediană, șanțul median posterior, îngust, și fisura mediană anterioară, mai largă, marchează granița dintre cele două jumătăți simetrice ale măduvei. De aceea, coarnele, cordoanele și rădăcinile numerotate într-o singură parte a desenului există și în cealaltă jumătate. Secțiunea arată cele două substanțe ale măduvei: substanța cenușie, dispusă în centru sub formă de coloane, cu aspectul literei „H” în secțiune transversală, și substanța albă, așezată la periferie sub formă de cordoane. Lateral, de fiecare parte, două rădăcini se unesc și formează nervul spinal. Pe aceeași pagină, Figura 18 arată măduva la locul ei, în canalul vertebral, învelită de meninge. Substanța cenușie Este formată din corpul neuronilor. Bara transversală a „H”-ului, comisura cenușie, unește cele două jumătăți și are în centru canalul ependimar, desenat ca un punct, care conține lichid cefalorahidian (LCR). Porțiunile laterale ale „H”-ului se împart în coarne: Coarnele posterioare (dorsale), îndreptate în sus, spre fața posterioară, sunt mai înguste și mai lungi decât cele anterioare. Conțin neuroni ai căilor senzitive care au semnificația de deutoneuron (al II-lea neuron). Protoneuronul (I-ul neuron) se află în afara măduvei, în ganglionul spinal. Coarnele laterale sunt vizibile în regiunea cervicală inferioară, în regiunea toracală și în cea lombară superioară, deci secțiunea desenată provine dintr-una dintre aceste regiuni. Conțin neuroni vegetativi simpatici preganglionari, ai căror axoni părăsesc măduva pe calea rădăcinii anterioare și formează fibrele preganglionare ale sistemului simpatic. Coarnele anterioare (ventrale), îndreptate în jos, sunt mai late și mai scurte. Conțin dispozitivul somatomotor, cu două tipuri de neuroni somatomotori ai căror axoni formează rădăcina anterioară. Acest dispozitiv este mai bine dezvoltat în dreptul intumescențelor (dilatărilor) cervicală și lombară, porțiunile mai voluminoase ale măduvei, care corespund membrelor. Între coarnele laterale și cele posterioare, în substanța albă, se află substanța reticulată a măduvei, pe care figura nu o marchează. Este formată din neuroni dispuși în rețea, prezenți și în jurul canalului ependimar, pe toată lungimea lui, și este mai bine individualizată în regiunea cervicală. Substanța albă Înconjoară „H”-ul și formează, în fiecare jumătate, trei cordoane, pe care le poți delimita după coarne și după linia mediană: Cordonul posterior, între șanțul median posterior și cornul posterior, conține fasciculele gracilis (Goll) și cuneat (Burdach), ale sensibilității tactile epicritice și kinestezice. Cordonul lateral, între cornul posterior și cel anterior, conține, printre altele, fasciculul spinotalamic lateral, fasciculele spinocerebeloase și fasciculul piramidal încrucișat. Cordonul anterior, între cornul anterior și fisura mediană anterioară, conține, printre altele, fasciculul spinotalamic anterior și fasciculul piramidal direct, situat lângă fisură. Sub comisura cenușie, chiar deasupra capătului fisurii mediane anterioare, o punte îngustă de substanță albă, comisura albă, unește cordoanele anterioare ale celor două jumătăți. În cordoane, fasciculele ascendente sunt situate, în general, periferic, cele descendente spre interior față de acestea, iar fasciculele de asociație profund, în imediata vecinătate a substanței cenușii. Poziția fiecărui fascicul se vede în Figura 22. Rădăcinile și nervul spinal Nervii spinali leagă măduva de receptori și de efectori și se formează din două rădăcini: Rădăcina posterioară (dorsală), desenată deasupra, este senzitivă. Pe traiectul ei se află ganglionul spinal, în care sunt localizați neuronii somatosenzitivi și viscerosenzitivi. Dendrita lor lungă ajunge la receptori, iar axonul intră în măduvă pe calea rădăcinii posterioare. Rădăcina anterioară (ventrală), desenată dedesubt, este motorie. Conține axonii neuronilor somatomotori din cornul anterior și ai neuronilor visceromotori din jumătatea ventrală a cornului lateral. Cele două rădăcini se unesc în trunchiul nervului spinal, care este mixt: are fibre somatomotorii, visceromotorii, somatosenzitive și viscerosenzitive. Din nerv se desprinde, în desen, o ramură subțire, pe care figura nu o numește. Manualul explică, la nervii spinali, că după un scurt traiect nervul se desface în ramurile sale: ventrală, dorsală, meningială și ramurile comunicante. Cele două funcții ale măduvei Măduva are o funcție reflexă și una de conducere, iar pe secțiune se pot urmări structurile pe care le folosește fiecare. Funcția reflexă: în reflexul miotatic (Figura 23), axonul neuronului senzitiv din ganglionul spinal pătrunde în măduvă prin rădăcina posterioară și se bifurcă. O ramificație face sinapsă cu neuronul motor din cornul anterior de aceeași parte, închizând arcul reflex, iar cealaltă cu al II-lea neuron proprioceptiv din cornul posterior, de unde pleacă fasciculele spinocerebeloase. Axonul neuronului motor, calea eferentă, iese din măduvă prin rădăcina anterioară. Funcția de conducere este asigurată de căile ascendente și descendente din cordoane, dar și de căi scurte, de asociație.
Fig. 20 · Biologie Corint · p. 20
Căile ascendente ale sensibilitățiiFigura urmărește drumul informației senzitive de la receptori până la scoarța cerebrală sau, pentru o singură cale, până la cerebel. Cele două desene alăturate sunt alcătuite din aceleași secțiuni, așezate una sub alta. Sus sunt emisferele cerebrale, cu talamusul în mijloc. Urmează cele trei etaje ale trunchiului cerebral: mezencefalul, puntea (desenată în aceeași secțiune cu cerebelul, aflat înapoia ei) și bulbul. Jos sunt două secțiuni prin măduva spinării, dintre care cea de sus este în regiunea cervicală. Receptorii sunt desenați lângă secțiunile de măduvă. Fiecare cale este o linie care pornește de la un receptor și se citește de jos în sus, iar punctele îngroșate de pe ea cad exact în locurile în care se află neuronii căii: în ganglionul spinal, în cornul posterior sau în bulb și în talamus. Calea cordoanelor posterioare (desenul din stânga) Pe această cale urcă sensibilitatea tactilă fină (epicritică) și sensibilitatea kinestezică (simțul poziției și al mișcării în spațiu). În desen, ea pornește de la receptorul tactil din piele și de la receptorul articular de întindere. Pentru sensibilitatea tactilă epicritică, receptorii sunt aceiași ca pentru cea protopatică (corpusculii Meissner și discurile Merkel), dar au câmp receptor mai mic. Pentru sensibilitatea kinestezică, receptorii sunt corpusculii neurotendinoși ai lui Golgi și corpusculii Ruffini. Protoneuronul se află în ganglionul spinal. Dendrita lui, lungă, ajunge la receptori, iar axonul, tot lung, pătrunde în cordonul posterior, unde formează fasciculul gracilis (Goll) și fasciculul cuneat (Burdach), numite și fascicule spinobulbare. În desen, fibra de la receptorul tactil intră în secțiunea de jos și urcă prin fasciculul gracilis, iar cea de la receptorul articular intră în regiunea cervicală și urcă prin fasciculul cuneat. Se potrivește cu faptul că fasciculul cuneat apare numai în măduva toracală superioară și în cea cervicală. Deutoneuronul se află în nucleii gracilis și cuneat din bulb. Axonul lui se încrucișează în bulb și formează decusația senzitivă, după care fibrele devin ascendente și alcătuiesc lemniscul medial, care se îndreaptă spre talamus. Al III-lea neuron se află în talamus, iar axonul lui se proiectează în aria somestezică I. În desen, fibrele se termină pe girul postcentral, în lobul parietal. Tractul spinocerebelos dorsal (tot în desenul din stânga) A treia linie a desenului pornește de la fusul neuromuscular, din grosimea mușchiului. Ea aparține căii sensibilității proprioceptive de control al mișcării (simțul tonusului muscular). Calea are două tracturi, spinocerebelos dorsal (direct) și spinocerebelos ventral (încrucișat), iar figura îl arată doar pe primul. Protoneuronul este tot în ganglionul spinal, iar axonul lui intră pe calea rădăcinii posterioare în substanța cenușie. Deutoneuronul, din cornul posterior, își trimite axonul în cordonul lateral de aceeași parte. Fasciculul format astfel străbate numai bulbul și ajunge la cerebel pe calea pedunculului cerebelos inferior. Calea sensibilității termice și dureroase (desenul din dreapta) Receptorii se găsesc în piele. Atât pentru durere, cât și pentru temperatură, ei sunt terminațiile nervoase libere. În desen apar doi: receptorul pentru durere, a cărui fibră intră în măduvă în regiunea cervicală, și receptorul termic, a cărui fibră intră în secțiunea de jos. Protoneuronul se află în ganglionul spinal. Dendrita lui, lungă, ajunge la receptori, iar axonul pătrunde în măduvă. Deutoneuronul se află în neuronii senzitivi din cornul posterior. Axonul lui trece în cordonul lateral opus, unde formează fasciculul spinotalamic lateral, care străbate măduva și trunchiul cerebral și se îndreaptă spre talamus. În desen, ambele fibre trec de partea cealaltă chiar în secțiunea de măduvă în care au intrat, apoi urcă alăturate. Al III-lea neuron se află în talamus. Axonul lui se proiectează pe scoarța cerebrală, în aria somestezică I din lobul parietal, tot pe girul postcentral. Tot în cornul posterior se află și deutoneuronul căii sensibilității tactile grosiere (protopatice), care nu e desenată aici. Axonul lui trece însă în cordonul anterior opus și formează fasciculul spinotalamic anterior. Ce au în comun și prin ce se deosebesc Cele două căi care ajung la scoarță au câte trei neuroni. Primul stă în ganglionul spinal, al III-lea în talamus, iar proiecția se face în aria somestezică I. Diferă locul deutoneuronului și, odată cu el, nivelul la care fibrele trec de partea opusă. La calea cordoanelor posterioare, deutoneuronul este în bulb, iar încrucișarea se face tot acolo, prin decusația senzitivă. La calea termică și dureroasă, deutoneuronul este în cornul posterior, iar fibrele trec de partea cealaltă încă din măduvă. De aceea, în ambele desene, fibrele pornite de la receptorii de o parte a măduvei ajung în emisfera cerebrală opusă. Tractul spinocerebelos dorsal face excepție: fiind direct, rămâne de aceeași parte cu fusul neuromuscular, nu trece prin talamus și se oprește în cerebel. Unde mai apar aceste căi Poziția fiecărui fascicul pe secțiunea transversală a măduvei este arătată în Figura 22, unde tractul spinocerebelos dorsal apare ca fascicul spinocerebelos direct Flechsig. În capitolul despre analizatori, căile ascendente alcătuiesc segmentul intermediar (de conducere), iar căile sensibilității cutanate și kinestezice sunt reluate în Figura 44. Drumul invers, al comenzii motorii, este desenat în Figura 21.
Fig. 21 · Biologie Corint · p. 22
Căile descendente ale motricitățiiFigura urmărește căile descendente, pe care comanda motorie coboară de la scoarța cerebrală până la mușchii scheletici. Ambele desene sunt construite ca un șir de secțiuni așezate de sus în jos: emisferele cerebrale, mezencefalul, puntea împreună cu cerebelul, bulbul rahidian și măduva spinării. Căile sunt linii colorate, săgețile arată sensul impulsului, iar punctele reprezintă neuronii. Desenul din stânga arată calea piramidală și împărțirea ei în bulb, alături de o cale senzitivă care urcă. Cel din dreapta urmărește cele două fascicule piramidale și o cale extrapiramidală până la mușchi. Nivelurile desenate, de sus în jos Cortexul cerebral este punctul de plecare al comenzii. În desenul din stânga, cele cinci puncte roșii din scoarță, ale căror fibre se strâng într-o singură linie, amintesc de originile corticale diferite ale fasciculului piramidal. Talamusul, din diencefal, este releu pentru toate sensibilitățile, cu excepția celor olfactive, vizuale și auditive. Calea senzitivă din desenul din stânga face aici sinapsă, iar linia roșie a căii motorii trece pe lângă el. Mezencefalul este etajul superior al trunchiului cerebral. La baza secțiunii lui, desenul din dreapta marchează pedunculul cerebral. Puntea (puntea lui Varolio) este etajul mijlociu. Apare în aceeași secțiune cu cerebelul, recunoscut după conturul festonat. Cerebelul este situat înapoia bulbului și a punții și nu face parte din trunchiul cerebral. Bulbul rahidian este etajul inferior, locul în care se încrucișează atât fibrele căii piramidale, cât și cele ale căii senzitive desenate. Regiunea cervicală și regiunea lombară sunt secțiuni prin măduvă. În dreptul lor, măduva prezintă intumescențele (dilatările) care corespund membrelor. Desenul din stânga o are doar pe cea cervicală. Calea sistemului piramidal Își are originea în cortexul cerebral și controlează motilitatea voluntară. Fasciculul piramidal (corticospinal) pornește din aria motorie, aria premotorie, aria motorie suplimentară și aria motorie secundară, suprapusă ariei senzitive secundare. Din cele aproximativ 1 000 000 de fibre ale sale, circa 700 000 sunt mielinizate. Fibrele străbat toate cele trei etaje ale trunchiului cerebral, iar în bulb se despart: Fasciculul corticospinal lateral (piramidal încrucișat) cuprinde în jur de 75 % din fibre. Ele se încrucișează în bulb, în decusația piramidală, și ajung în cordonul lateral al măduvei. În desenul din stânga, încrucișarea este segmentul roșu care traversează partea de jos a bulbului. Fasciculul corticospinal anterior (piramidal direct) cuprinde restul de circa 25 %, fibre care nu se încrucișează. Ele coboară în cordonul anterior de aceeași parte, lângă fisura mediană, și apar în desenul din stânga ca ramura roșie care continuă drept în jos. În dreptul fiecărui segment, o parte din ele se încrucișează și trec în cordonul anterior opus. Tot în trunchiul cerebral, din fasciculul piramidal se desprind fibre corticonucleare, spre nucleii motori ai nervilor cranieni, similari cornului anterior al măduvei. Calea are, așadar, doi neuroni: unul cortical, central, de comandă (punctele din scoarță) și unul inferior, periferic sau de execuție, aflat în măduvă (punctele din coarnele anterioare) sau în nucleii motori ai nervilor cranieni. Cele două fascicule în desenul din dreapta Aici albastrul nu mai înseamnă o cale senzitivă: fibrele încrucișate sunt roșii, iar cele directe, tot motorii, sunt albastre. Linia roșie trece de partea opusă și coboară până în regiunea lombară, unde se oprește pe neuronii din cornul anterior. Linia albastră coboară neîncrucișată, lângă fisura mediană, și trece de partea opusă abia în dreptul segmentului lombar. Astfel, ambele ajung la neuronii din aceeași jumătate a măduvei, ai căror axoni pleacă spre mușchiul de jos. În acest desen, fasciculul piramidal este marcat în punte pe linia albastră, iar fasciculul corticospinal lateral tot în punte, pe linia roșie a fibrelor care îl vor forma după încrucișare. Calea sistemului extrapiramidal Își are originea în etajele corticale și subcorticale și controlează motilitatea involuntară automată și semiautomată. Căile extrapiramidale corticale ajung la nucleii bazali (corpii striați), situați deasupra și lateral de talamus. De aici, prin eferențele lor (fibre strionigrice, striorubrice și strioreticulate), ajung la nucleii din mezencefal, adică nucleul roșu, substanța neagră și formația reticulată, și se continuă spre măduvă prin fasciculele nigrospinale, rubrospinale și reticulospinale. De la nucleii bulbari, olivari și vestibulari, calea se continuă cu fasciculele olivospinale și vestibulospinale. Toate aceste fascicule ajung, în final, la neuronii motori din cornul anterior al măduvei. În desenul din dreapta, calea extrapiramidală este reprezentată de fasciculul rubrospinal, linia verde. Pornește de la nucleul roșu din mezencefal, trece de partea opusă imediat sub mezencefal și coboară până în regiunea cervicală, la un neuron din cornul anterior, al cărui axon merge la mușchiul de sus. Linia albastră din desenul din stânga: o cale senzitivă Este singura linie care urcă în figură. Impulsul senzitiv de la piele intră în măduvă, iar axonul primului neuron, aflat în ganglionul spinal, urcă prin cordonul posterior, în fasciculul cuneat. Acesta apare numai în măduva cervicală și în cea toracală superioară și se oprește în bulb, la nucleul cuneat, unde se află al doilea neuron. Axonul acestuia se încrucișează (decusația senzitivă, linia în formă de V din bulb), apoi urcă, sub numele de lemniscul medial, până la talamus. Al treilea neuron, din talamus, trimite axonul în scoarță, în aria somestezică I. Căile ascendente sunt prezentate pe larg în Figura 20. La intrarea în bulb, cele două linii sunt marcate împreună ca fibre senzitive și motorii care se încrucișează în bulb: aici își schimbă partea atât calea piramidală, cât și această cale senzitivă. Rolul căilor descendente Prin căile descendente, centrii encefalici exercită asupra musculaturii scheletice un control motor voluntar, prin calea piramidală, și unul automat, prin căile extrapiramidale. Astfel sunt reglate tonusul muscular și activitatea motorie și sunt menținute postura și echilibrul corpului. Poziția fiecărui fascicul în secțiunea măduvei se vede în Figura 22.
Fig. 22 · Biologie Corint · p. 23
Fasciculele substanței albe a măduvei spinăriiFigura arată o secțiune transversală prin măduva spinării, pe care au fost delimitate fasciculele substanței albe. Secțiunea este așezată ca în Figura 19: sus este partea posterioară, cu coarnele posterioare ale substanței cenușii, mai lungi și mai înguste, iar jos partea anterioară, cu coarnele anterioare, mai late și mai scurte, și cu fisura mediană anterioară. În centru se vede canalul ependimar. Fasciculele sunt desenate numai în jumătatea stângă, jumătatea dreaptă rămânând de o singură culoare. Culorile arată ce fel de cale este fiecare fascicul: albastru pentru căile ascendente (ale sensibilității), roșu pentru căile descendente (ale motricității) și galben pentru fasciculele fundamentale, lipite de substanța cenușie. Cum sunt așezate fasciculele Substanța albă se află la periferia măduvei și este dispusă sub formă de cordoane: posterior, lateral și anterior. În ele, fasciculele ascendente sunt situate, în general, periferic, cele descendente spre interior față de precedentele, iar fasciculele de asociație profund, în imediata vecinătate a substanței cenușii. În cordonul posterior și în cea mai mare parte a cordonului lateral, desenul respectă regula dinspre margine spre interior: albastru, roșu (numai în cordonul lateral), apoi galben. În partea din față a măduvei însă, fasciculele roșii ajung până la margine și cuprind între ele un mic fascicul albastru, de aceea regula este valabilă doar „în general”. Căile ascendente (albastru) În cordonul posterior se află fasciculul gracilis (Goll), lângă linia mediană, și fasciculul cuneat (Burdach), lateral de el, formate din axonii protoneuronilor din ganglionul spinal. Numite și fascicule spinobulbare, ele urcă până la deutoneuronii din nucleii gracilis și cuneat ai bulbului și conduc sensibilitatea kinestezică și pe cea tactilă fină (epicritică). Fasciculul cuneat apare numai în măduva toracală superioară și în cea cervicală. În cordonul lateral se află cele două fascicule ale sensibilității proprioceptive de control al mișcării, ai căror receptori sunt fusurile neuromusculare: fasciculul spinocerebelos direct (Flechsig), sus, la margine, și fasciculul spinocerebelos încrucișat (Gowers), mai jos. Spre interior, lângă fasciculele roșii, se află fasciculul spinotalamic lateral, calea sensibilității termice și dureroase, care urcă spre talamus. În partea de jos a cordonului este desenat, tot în albastru, și fasciculul spinotectal. În cordonul anterior, micul fascicul albastru dintre fasciculele roșii de la margine este fasciculul spinotalamic ventral, calea sensibilității tactile grosiere (protopatice). Îl formează axonii deutoneuronilor care trec în cordonul anterior opus și urcă până la talamus. Căile descendente (roșu) Calea piramidală își are originea în cortexul cerebral și controlează motilitatea voluntară. Ajunse la nivelul bulbului, fibrele ei se comportă diferit și formează două fascicule, pe care desenul le arată în cordoane diferite: Fasciculul piramidal încrucișat (corticospinal lateral), zona roșie mare din cordonul lateral, cuprinde în jur de 75 % din fibre, cele care se încrucișează în bulb (decusația piramidală). Fasciculul piramidal direct (corticospinal anterior), din cordonul anterior, de-a lungul fisurii mediane, cuprinde în jur de 25 % din fibre, cele care nu se încrucișează în bulb. În dreptul fiecărui segment, o parte din fibrele lui se încrucișează și trec în cordonul anterior opus. Calea extrapiramidală își are originea în etajele corticale și subcorticale și controlează motilitatea involuntară automată și semiautomată. Ea trece prin nucleii bazali și ajunge la nucleii din mezencefal și din bulb, de unde se continuă spre măduvă. Din mezencefal coboară fasciculul rubrospinal, de la nucleul roșu, și fasciculul reticulospinal, de la formația reticulată. Din bulb coboară fasciculul olivospinal, de la nucleii olivari, și cele două fascicule vestibulospinale, lateral și ventral, de la nucleii vestibulari. Toate ajung, în final, la neuronii motori din cornul anterior al măduvei. Textul mai numește și fasciculele nigrospinale, de la substanța neagră, care nu sunt marcate în figură. În schimb, figura mai arată, tot în roșu, la marginea cordonului anterior, fasciculul tectospinal, pe care textul nu îl descrie. Prin aceste căi descendente, centrii encefalici controlează musculatura scheletică voluntar (calea piramidală) și automat (căile extrapiramidale). Așa sunt reglate tonusul muscular și activitatea motorie și sunt menținute postura și echilibrul corpului. Fasciculele fundamentale (galben) Fasciculul fundamental posterior, fasciculul fundamental lateral și fasciculul fundamental anterior formează banda galbenă care mărginește substanța cenușie, câte unul în fiecare cordon. Numele de „fascicul fundamental” nu apare în text, dar poziția lor, profund, în imediata vecinătate a substanței cenușii, este cea pe care manualul o dă fasciculelor de asociație. Funcția de conducere a măduvei este asigurată de căile ascendente și descendente, dar și de astfel de căi scurte, de asociație. Unde regăsiți aceste căi Traseul complet al căilor ascendente este desenat în Figura 20, iar al celor descendente în Figura 21.
Fig. 23 · Biologie Corint · p. 24
Reflexul monosinaptic: reflexul rotulianFigura prezintă arcul unui reflex monosinaptic, cel al reflexelor miotatice, pe exemplul reflexului rotulian. În stânga sus este desenată o porțiune din măduva spinării, cu substanța cenușie în formă de „H”. Spre dreapta se întinde coapsa, cu mușchiul efector așezat deasupra femurului, apoi genunchiul, în fața căruia lovește un ciocan de cauciuc, și gamba, care atârnă. Aceeași gambă mai apare o dată, desenată mai palid și ridicată înainte, spre dreapta. Această a doua poziție arată răspunsul, extensia gambei pe coapsă. Între măduvă și mușchi merg două fibre nervoase, una senzitivă și una motorie. Săgețile mici de pe traseul lor arată sensul impulsului nervos: spre măduvă pe fibra senzitivă, spre mușchi pe fibra motorie. Cel mai ușor este să pornești de la genunchiul lovit și să urmărești apoi impulsul din mușchi până în măduvă și înapoi. Reflexul rotulian, un reflex miotatic Reflexele miotatice constau în contracția bruscă a unui mușchi, ca răspuns la întinderea tendonului său, și se pun în evidență lovind tendonul cu un ciocan de cauciuc. De obicei se cercetează la tendonul lui Ahile (reflexul ahilian) și la tendonul de inserție a mușchiului cvadriceps pe gambă (reflexul rotulian). În lucrările practice, reflexul rotulian mai este numit reflex patelar și este trecut printre reflexele osteotendinoase. În figură, locul lovit este ligamentul rotulian, banda care trece prin fața genunchiului, în dreptul ciocanului, și coboară spre gambă. El corespunde tendonului de inserție a cvadricepsului pe gambă, adică tendonului prin care mușchiul se prinde de osul mobil. Cum reflexul este contracția mușchiului al cărui tendon a fost întins, efectorul desenat pe coapsă este chiar cvadricepsul femural, din loja anterioară a coapsei. Sub el se află femurul, osul care formează scheletul coapsei, cel mai lung os din corp. La genunchi, epifiza lui distală se articulează cu fața posterioară a rotulei, osul triunghiular aflat în tendonul cvadricepsului. Drumul impulsului prin arcul reflex Arcul are aceleași cinci componente anatomice ca schema generală din Figura 16. În ordinea în care le parcurge impulsul, ele sunt: Receptorii, proprioceptorii musculari, adică fusurile neuromusculare. În desen, fibra senzitivă se termină în mușchi, aproape de tendon. Calea aferentă, asigurată de primul neuron senzitiv proprioceptiv, cu corpul în ganglionul spinal (îngroșarea de pe rădăcina posterioară, aproape de măduvă). Dendrita lui, lungă, merge la periferie și se termină la nivelul receptorului. Axonul, scurt, pătrunde în măduvă prin rădăcina posterioară și se bifurcă. O ramificație face sinapsă cu neuronul motor din cornul anterior de aceeași parte, închizând arcul reflex, iar cealaltă face sinapsă cu al II-lea neuron proprioceptiv din cornul posterior, de unde pleacă fasciculele spinocerebeloase. Centrul, care este chiar sinapsa dintre neuronul senzitiv și cel motor. Ea se află în cornul anterior, acolo unde ramificația axonului senzitiv ajunge la dendrita neuronului motor. Calea eferentă, adică axonul neuronului motor, care iese din măduvă prin rădăcina anterioară. Dincolo de ganglion, cele două rădăcini se unesc, iar fibra motorie și cea senzitivă merg împreună, în același nerv, până la coapsă. În mușchi, axonul se ramifică printre fibrele musculare. Efectorul, fibra musculară striată a cvadricepsului. Contracția bruscă a mușchiului este o secusă, o contracție musculară unică, și produce extensia gambei pe coapsă. De ce se numește monosinaptic Reflexele miotatice sunt monosinaptice: centrul lor se reduce la o singură sinapsă, cea dintre neuronul senzitiv și cel motor, fără alți neuroni intercalați. La reflexele nociceptive, din Figura 24, centrii sunt polisinaptici, formați din neuroni senzitivi de ordinul al doilea, neuroni de asociație și neuroni motori. Împreună cu reflexul de mers, reflexele miotatice și cele nociceptive sunt principalele reflexe spinale somatice. La ce folosesc reflexele miotatice Reflexele miotatice au rol în menținerea tonusului muscular și a poziției corpului. Tonusul muscular este o stare de tensiune permanentă, de natură reflexă, a mușchilor cu inervația motorie somatică și senzitivă intactă, și dispare după denervare. Mecanismul este explicat la analizatorul kinestezic (Figura 43): fibrele intrafusale ale fusurilor sunt dispuse paralel cu cele extrafusale și se întind odată cu ele, iar întinderea și activarea fusurilor declanșează o contracție reflexă, care împiedică relaxarea mușchiului.
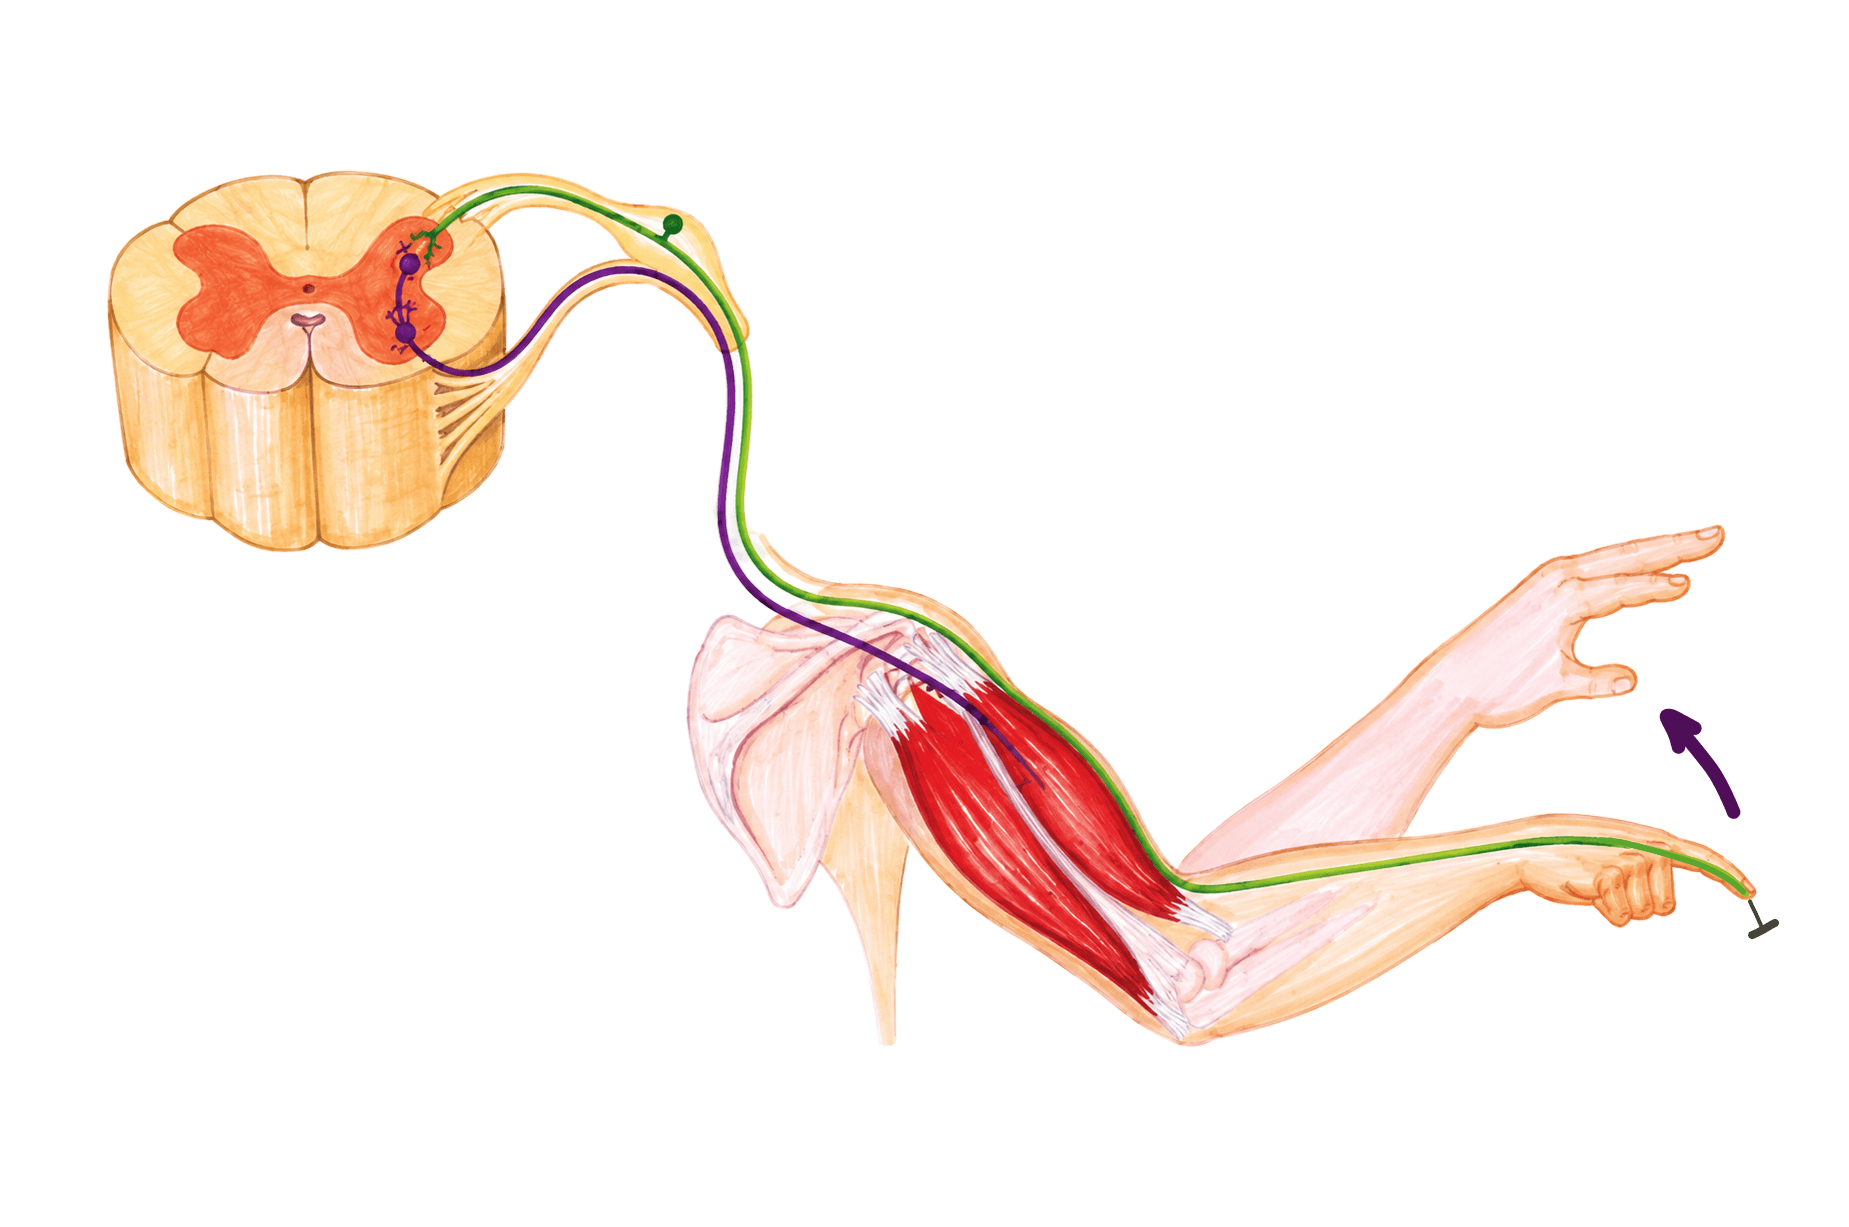
Fig. 24 · Biologie Corint · p. 24
Reflexul polisinaptic: reflexul nociceptivFigura urmărește arcul reflex al reflexului nociceptiv, un reflex polisinaptic, de la degetul care atinge un obiect ascuțit până la mușchiul care retrage mâna. Sus, în stânga, este desenat un segment de măduvă a spinării, văzut în perspectivă, cu secțiunea transversală deasupra: substanța cenușie, în formă de „H”, ocupă centrul, iar substanța albă se află la periferie. Din măduvă pornesc două fibre care coboară împreună spre membrul superior. Una merge până în vârful degetului, cealaltă se oprește în mușchiul de pe braț. Antebrațul și mâna desenate estompat, mai sus, arată mișcarea de retragere, adică răspunsul reflex. Ce este reflexul nociceptiv Reflexele nociceptive țin de funcția reflexă a măduvei și sunt, alături de cele miotatice, principalele reflexe spinale somatice. Ele constau în retragerea unui membru ca răspuns la stimularea lui dureroasă, așa că sunt reflexe de apărare. Receptorii se află în piele și sunt mai ales terminații nervoase libere: la receptorii durerii, chiar terminațiile dendritelor îndeplinesc rolul de receptor. Nociceptorii sunt considerați chemoreceptori, deoarece sunt stimulați de substanțe chimice eliberate de celulele distruse. Drumul impulsului, pas cu pas Arcul are cele cinci componente anatomice ale oricărui arc reflex (Figura 16). Le poți urmări în desen de la deget spre măduvă și înapoi spre braț: Receptorul: terminațiile nervoase libere din pielea degetului, acolo unde se termină dendrita. Aici energia stimulului este transformată în impuls nervos. Calea aferentă: prelungirile neuronului senzitiv din ganglionul spinal. Acest neuron este pseudounipolar, cu o singură prelungire care se divide în „T”, iar corpul lui apare ca un mic glob prins lateral de fibră, în afara măduvei. Dendrita, lungă, merge la periferie, până în deget, și conduce impulsul spre corpul neuronului. Axonul, scurt, pătrunde în măduvă prin rădăcina posterioară. Centrul: în substanța cenușie, axonul senzitiv nu ajunge direct la neuronul motor, ci la un neuron de asociație intercalat între ei. Centrii reflexului nociceptiv sunt polisinaptici, formați din neuroni senzitivi de ordinul al doilea, neuroni de asociație și neuroni motori. Desenul reduce acest lanț la esențial, cu un singur neuron de asociație. Calea eferentă: axonul neuronului motor, al cărui corp se află în cornul anterior. Axonul iese din măduvă prin rădăcina anterioară. Cele două rădăcini se unesc în trunchiul nervului spinal, care este mixt, de aceea fibra motorie și cea senzitivă coboară împreună spre membru. Efectorul: mușchiul flexor de pe braț, care retrage mâna din fața agentului cauzator al durerii. Axonul motor se termină pe mușchi printr-o sinapsă neuromusculară, numită placă motorie. Monosinaptic și polisinaptic Sinapsa este conexiunea funcțională dintre un neuron și o altă celulă. La reflexul miotatic din Figura 23, centrul este chiar sinapsa dintre neuronul senzitiv și cel motor, de aceea reflexul este monosinaptic. La reflexul nociceptiv, neuronul de asociație adaugă în măduvă cel puțin încă o sinapsă, iar centrul devine polisinaptic. Cum la nivelul sinapselor transmiterea se face într-un singur sens, impulsul străbate arcul numai de la receptor spre efector. Reflexele polisinaptice au proprietatea de a iradia la nivelul sistemului nervos central, antrenând un număr crescut de neuroni la elaborarea răspunsului. Legile care guvernează iradierea au fost studiate de Pflüger. Legile lui Pflüger În lucrarea practică din manual, iradierea este demonstrată pe o broască spinală (decapitată, cu centrii medulari intacți). Pe pielea gambei se aplică bucăți de hârtie de filtru îmbibate cu acid sulfuric tot mai concentrat, iar răspunsul devine tot mai amplu: Legea localizării (0,1-0,3%): o ușoară flexie a labei piciorului. Legea unilateralității (0,5%): flexia întregului membru inferior. Legea simetriei (0,7%): flexia puternică a membrului stimulat și, concomitent, a membrului inferior de partea opusă. Legea iradierii (1%): contracții ale tuturor extremităților. Legea generalizării (2%): convulsii generalizate ale musculaturii membrelor și trunchiului.
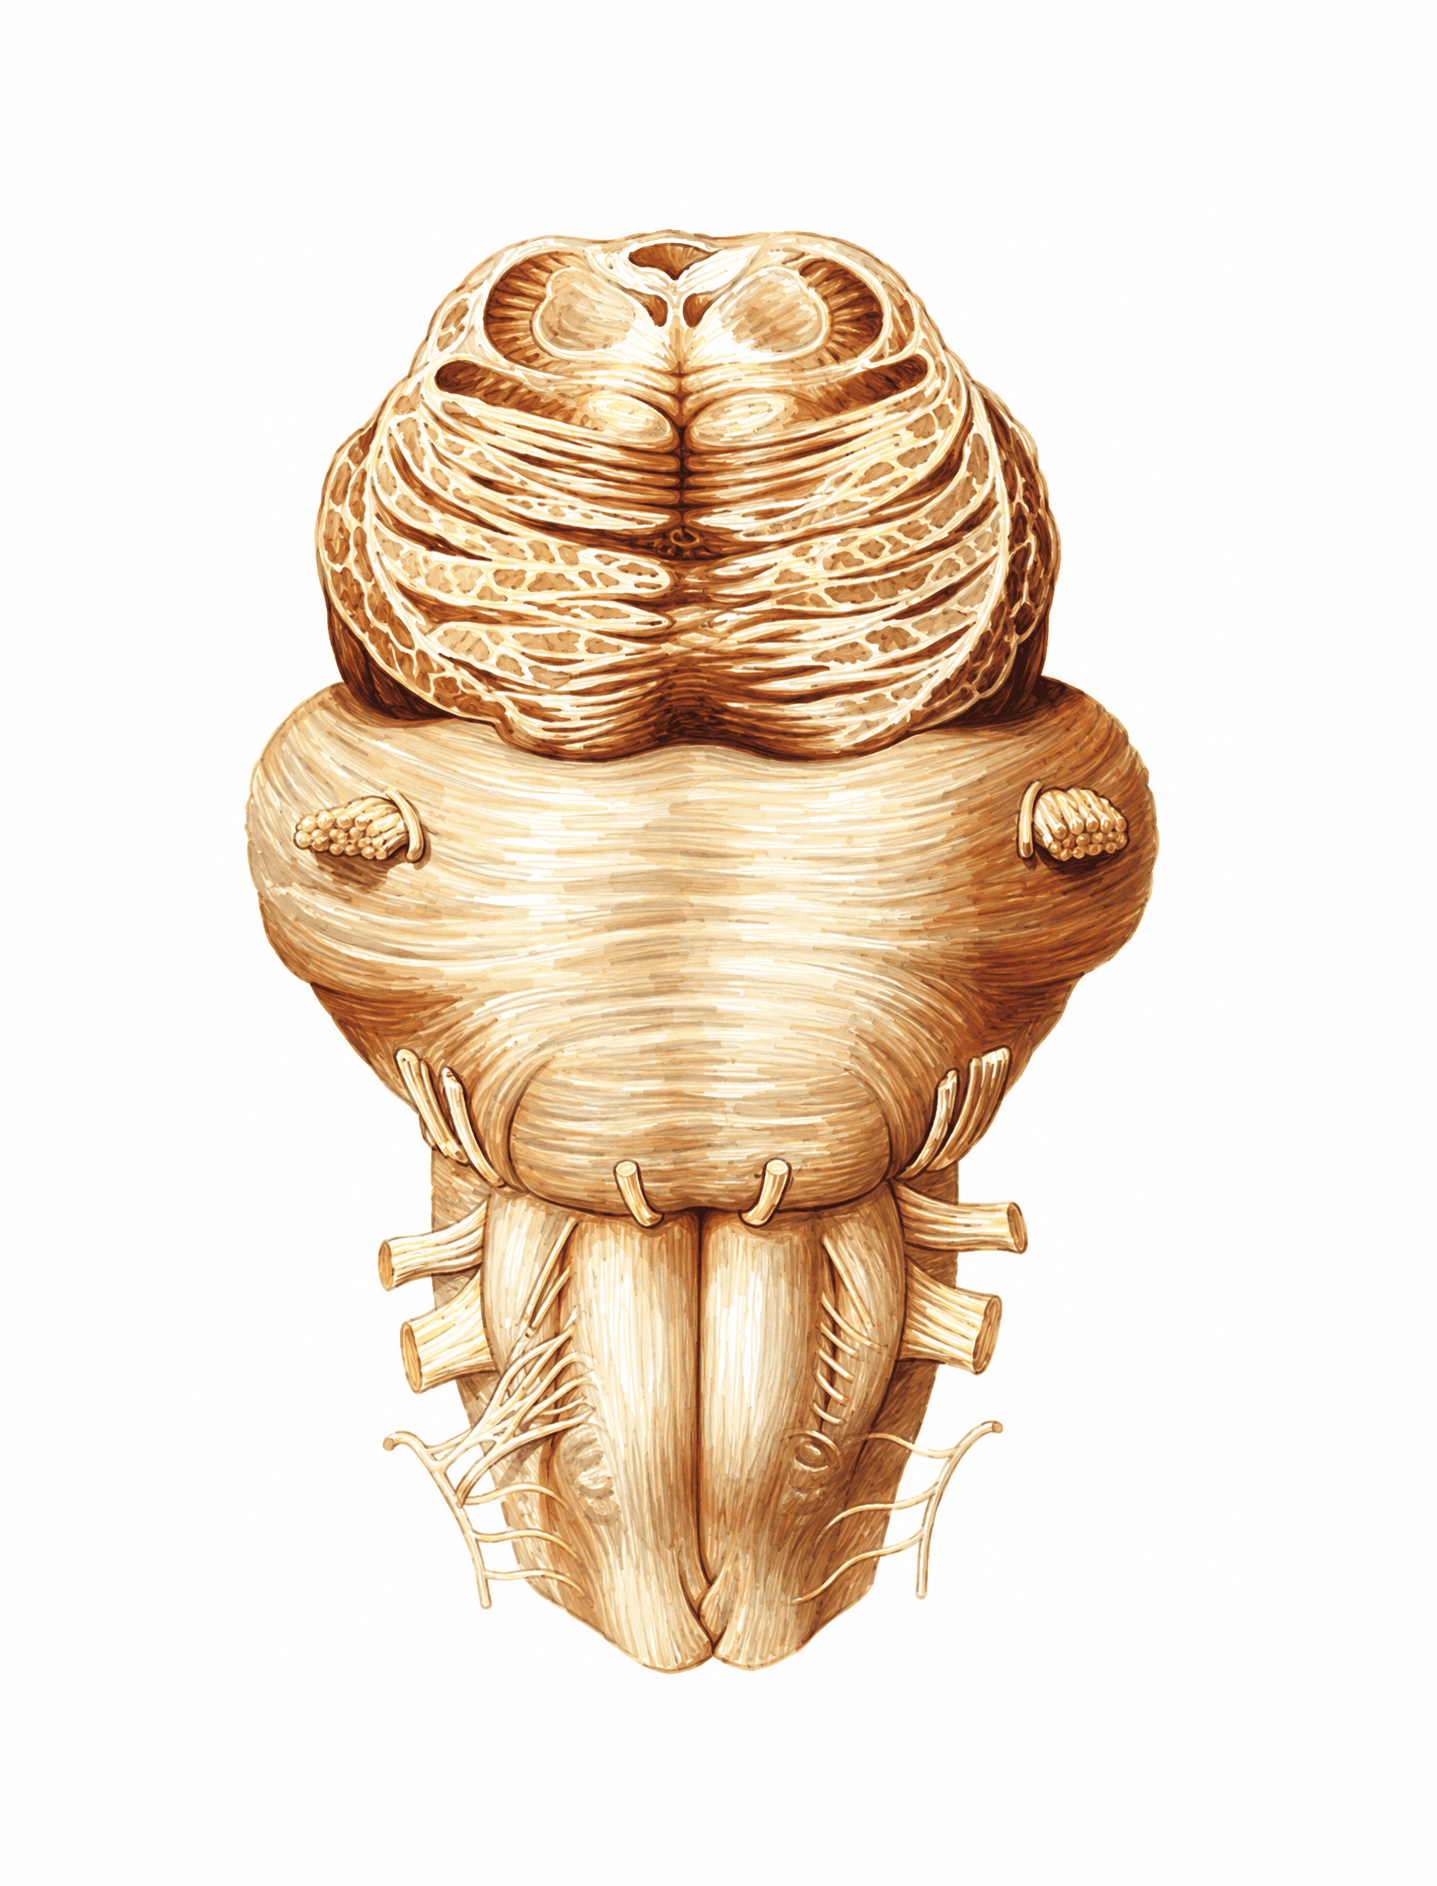
Fig. 25 · Biologie Corint · p. 26
Trunchiul cerebral, fața anterioară (ventrală)Figura prezintă trunchiul cerebral privit din față, adică fața lui anterioară (ventrală). Desenul se citește de sus în jos, pe cele trei etaje ale trunchiului, iar în dreptul fiecărui etaj este însemnată câte o pereche de pedunculi cerebeloși, prin care trunchiul se leagă de cerebel. De o parte și de alta a liniei mediane se văd nervii cranieni, însemnați cu cifre romane în dreptul originii lor aparente, adică al locului de pe suprafața trunchiului unde se prinde fiecare nerv. Originea aparentă nu trebuie confundată cu originea reală, locul unde se află corpii neuronilor din care provin fibrele nervului, cum sunt nucleii din trunchiul cerebral sau ganglionii de pe traseul nervilor. Cele trei etaje Trunchiul cerebral este format din trei etaje, pe care desenul le arată unul sub altul: Mezencefalul, sus, este etajul superior. Aici se află nucleii nervilor oculomotor (III) și trohlear (IV), precum și nucleul roșu, substanța neagră și formația reticulată, din care pornesc spre măduvă fascicule extrapiramidale. Puntea lui Varolio, la mijloc, este porțiunea cea mai lată. Adăpostește nucleii motori ai trigemenului, ai nervului abducens și ai facialului, nucleul lacrimal, nucleul salivator superior și nucleii cohleari. Bulbul (măduva prelungită), jos, este etajul inferior. Aici se găsesc nucleul ambiguu, nucleul solitar, nucleul salivator inferior, nucleul motor al hipoglosului și nucleii vestibulari. Etajele sunt despărțite de două șanțuri transversale: șanțul ponto-mezencefalic, între punte și mezencefal, și șanțul bulbo-pontin, între bulb și punte. Reliefurile bulbului Pe fața anterioară a bulbului se văd două perechi de reliefuri: Piramidele bulbare, două reliefuri alungite, verticale, așezate de o parte și de alta a liniei mediane. Oliva bulbară, un relief oval, prezent de fiecare parte, lateral de piramidă. Șanțurile care mărginesc oliva sunt locuri de origine aparentă: prin șanțul preolivar, dintre olivă și piramidă, iese nervul hipoglos, iar prin șanțul retroolivar, dinapoia olivei, ies nervii glosofaringian și vag. Pedunculii cerebeloși Cerebelul este legat de bulb, punte și mezencefal prin trei perechi de pedunculi: Pedunculii cerebeloși inferiori îl leagă de bulb. Pe calea lor ajunge la cerebel fasciculul spinocerebelos dorsal (direct). Pedunculii cerebeloși mijlocii îl leagă de punte și sunt singurii care conțin numai fibre aferente. Pedunculii cerebeloși superiori îl leagă de mezencefal. De-a lungul lor ajunge la cerebel fasciculul spinocerebelos ventral (încrucișat). Pedunculii inferiori și superiori conțin atât fibre aferente, cât și eferente. Cerebelul, împreună cu pedunculul cerebelos mijlociu, apare în Figura 32. Nervii cranieni Nervii cranieni fac parte din sistemul nervos periferic și sunt în număr de 12 perechi. Se deosebesc de nervii spinali prin aceea că nu au o dispoziție metamerică și nu au două rădăcini (dorsală și ventrală). Zece perechi își au originea în trunchiul cerebral. Nervii I, II și VIII sunt senzoriali, conducând excitații olfactive (I), optice (II) și statoacustice (VIII), nervii III, IV, VI, XI și XII sunt motori, iar nervii V, VII, IX și X sunt micști. Nervii III, VII, IX și X au în plus fibre parasimpatice preganglionare, cu origine în nucleii vegetativi (parasimpatici) ai trunchiului cerebral. Nervii din figură V, trigemenul (mixt) are originea aparentă pe partea anterioară a punții. Pe nervul secționat, legenda deosebește fibrele motorii (m), cu originea reală în nucleul motor al trigemenului din punte, și fibrele senzitive (s), cu originea reală în ganglionul trigeminal de pe traseul nervului. VI, abducensul (motor) iese prin șanțul bulbo-pontin, aproape de linia mediană, chiar deasupra piramidelor. VII, facialul (mixt) iese tot prin șanțul bulbo-pontin, spre capătul lui lateral. VIII, vestibulocohlearul (senzorial) iese în desen alături de facial, la capătul lateral al aceluiași șanț. IX, glosofaringianul, și X, vagul, ambii micști, ies prin șanțul retroolivar, vagul sub glosofaringian. XI, accesorul (motor) se prinde cel mai jos, pe marginea laterală a bulbului. Are o rădăcină bulbară, cu originea în nucleul ambiguu, și una spinală, cu originea în cornul anterior al măduvei cervicale. XII, hipoglosul (motor) iese prin șanțul preolivar, printr-un șir de fire subțiri așezate între piramidă și olivă. Reflexele trunchiului cerebral Bulbul, puntea și mezencefalul sunt sediul unor reflexe somatice și vegetative: salivator, de deglutiție, de vomă, tuse, strănut, masticator, cardioacceleratori, cardioinhibitori, de clipire, lacrimal, pupilare de acomodare și fotomotor. Cu excepția perechii VIII, drumul nervilor din figură până la organele pe care le inervează este urmărit în figurile următoare, de la Figura 26 la Figura 31.
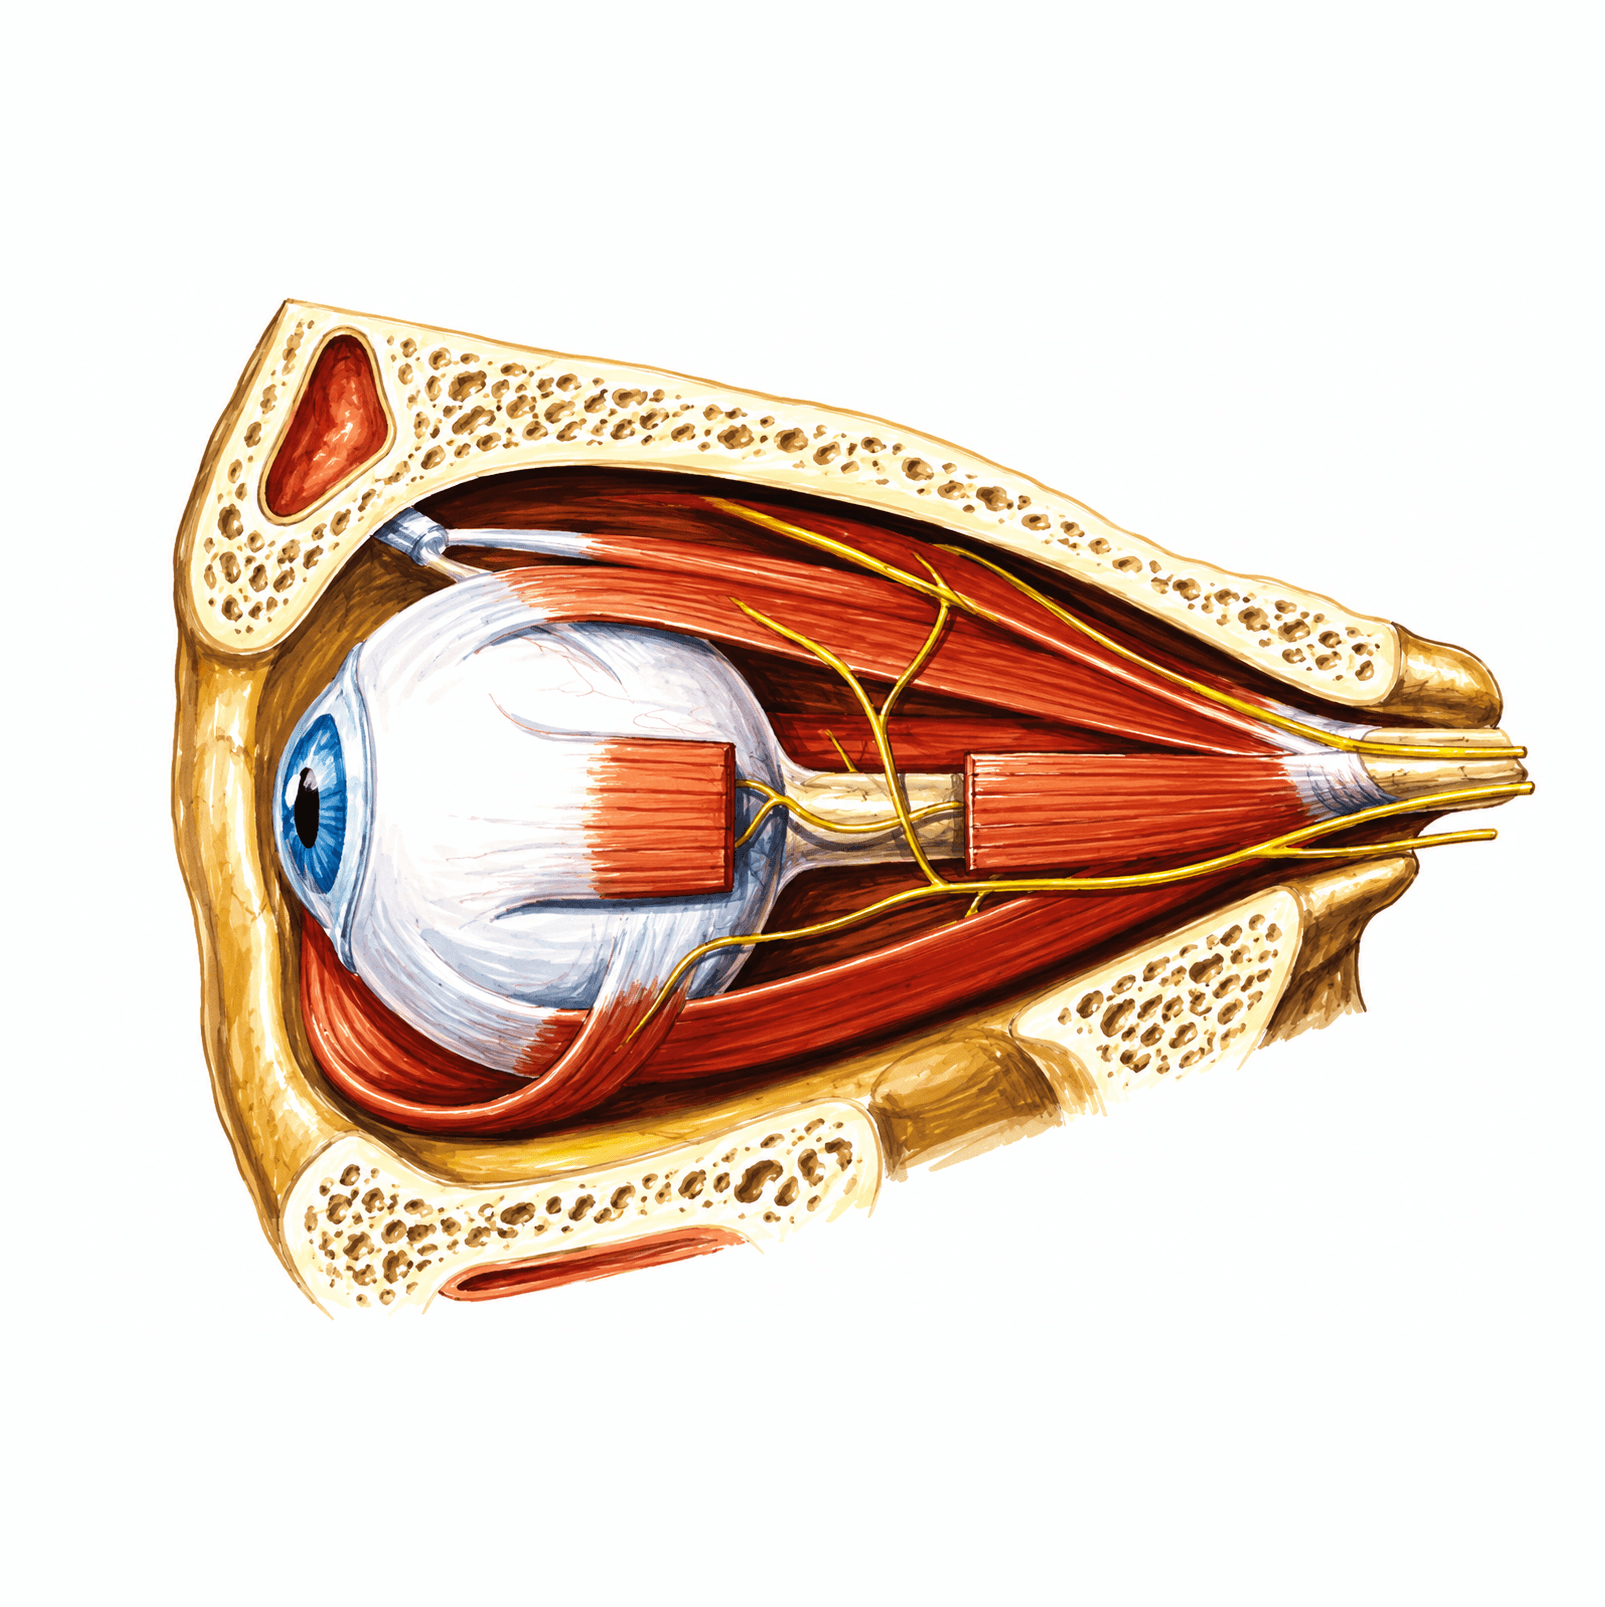
Fig. 26 · Biologie Corint · p. 27
Mușchii globului ocular și nervii cranieni III, IV, VIFigura deschide orbita, privită dintr-o parte, și arată globul ocular cu mușchii care se prind de el și cu nervii care ajung la acești mușchi. Nervii sunt desenați ca fire subțiri, ramificate pe mușchi. Figura însoțește descrierea a trei perechi de nervi cranieni motori, III, IV și VI, care își împart acești mușchi, așa că se citește cel mai ușor pornind de la mușchi și asociind fiecăruia nervul care îl inervează. Mușchii globului ocular Mușchii din figură sunt mușchii extrinseci ai globului ocular, care se inseră pe sclerotică, porțiunea din spate a tunicii externe. Pe desen sunt numerotați cinci dintre ei: Mușchiul oblic superior, mușchiul subțire din partea de sus a orbitei, care se întinde spre partea din față a globului. Mușchiul drept superior, banda lungă care trece deasupra globului, dinspre fundul orbitei. Mușchiul drept intern, mănunchiul scurt de fibre din mijlocul desenului, prins pe glob lângă locul de unde pleacă nervul optic. Mușchiul drept inferior, banda lungă de sub glob. Mușchiul oblic inferior, care trece pe sub partea din față a globului. Dacă adunăm mușchii pe care manualul îi atribuie celor trei perechi de nervi, globul ocular are patru mușchi drepți (intern, superior, inferior și extern) și doi oblici (superior și inferior). Dreptul extern este singurul fără număr pe desen. Nervul optic Din partea din spate a globului pleacă nervul optic, care trece printre mușchi spre fundul orbitei. El iese din glob în dreptul petei oarbe, străbătând sclerotica, și este format din axonii celulelor multipolare din retină. Nervii optici formează perechea a II-a de nervi cranieni și sunt nervi senzoriali, nu motori ca perechile III, IV și VI. Dreptul superior, dreptul inferior și nervul optic apar și în secțiunea prin glob din Figura 48. Ce nerv ajunge la fiecare mușchi Perechea III, nervii oculomotori, sunt nervi motori care au și fibre parasimpatice. Fibrele motorii au originea reală în nucleul motor al oculomotorului din mezencefal și merg la mușchii drepți intern, superior și inferior, la oblicul inferior și la mușchiul ridicător al pleoapei. Fibrele parasimpatice pornesc din nucleul accesor al nervului III, tot din mezencefal, și ajung la mușchiul sfincter al irisului și la fibrele circulare ale mușchiului ciliar. Originea aparentă a nervului se află în spațiul dintre picioarele pedunculilor cerebrali. Perechea IV, nervii trohleari, sunt nervi motori, cu originea reală în nucleul nervului, tot din mezencefal, și cu originea aparentă pe fața posterioară a trunchiului cerebral, sub lama cvadrigemina. Fibrele lor merg la un singur mușchi, oblicul superior. Perechea VI, nervii abducens, sunt nervi motori, cu originea reală în nucleul motor al nervului abducens din punte și cu originea aparentă în șanțul bulbo-pontin. Fibrele lor inervează mușchiul drept extern al globului ocular. Pe scurt, nervul III inervează toți mușchii globului în afară de doi: oblicul superior revine nervului IV, iar dreptul extern nervului VI. Dintre cele trei perechi, doar originea aparentă a nervului VI este numerotată în Figura 25, care arată fața anterioară a trunchiului cerebral. Nervul IV iese pe fața posterioară, așa că nu are cum să apară acolo. Legătura cu vederea Fibrele parasimpatice ale nervului III ajung la mușchi din tunica medie a globului. Stimularea parasimpatică îngustează pupila (mioză) și contractă mușchiul ciliar, pentru vederea de aproape. În acomodare (Figura 50), centrii corticali și coliculii cvadrigemeni superiori comandă contracția mușchiului ciliar prin nucleul vegetativ parasimpatic anexat nervului oculomotor din mezencefal. La răspunsul efector participă și mușchii irisului și mușchii extrinseci ai globului ocular, adică tocmai mușchii din această figură.
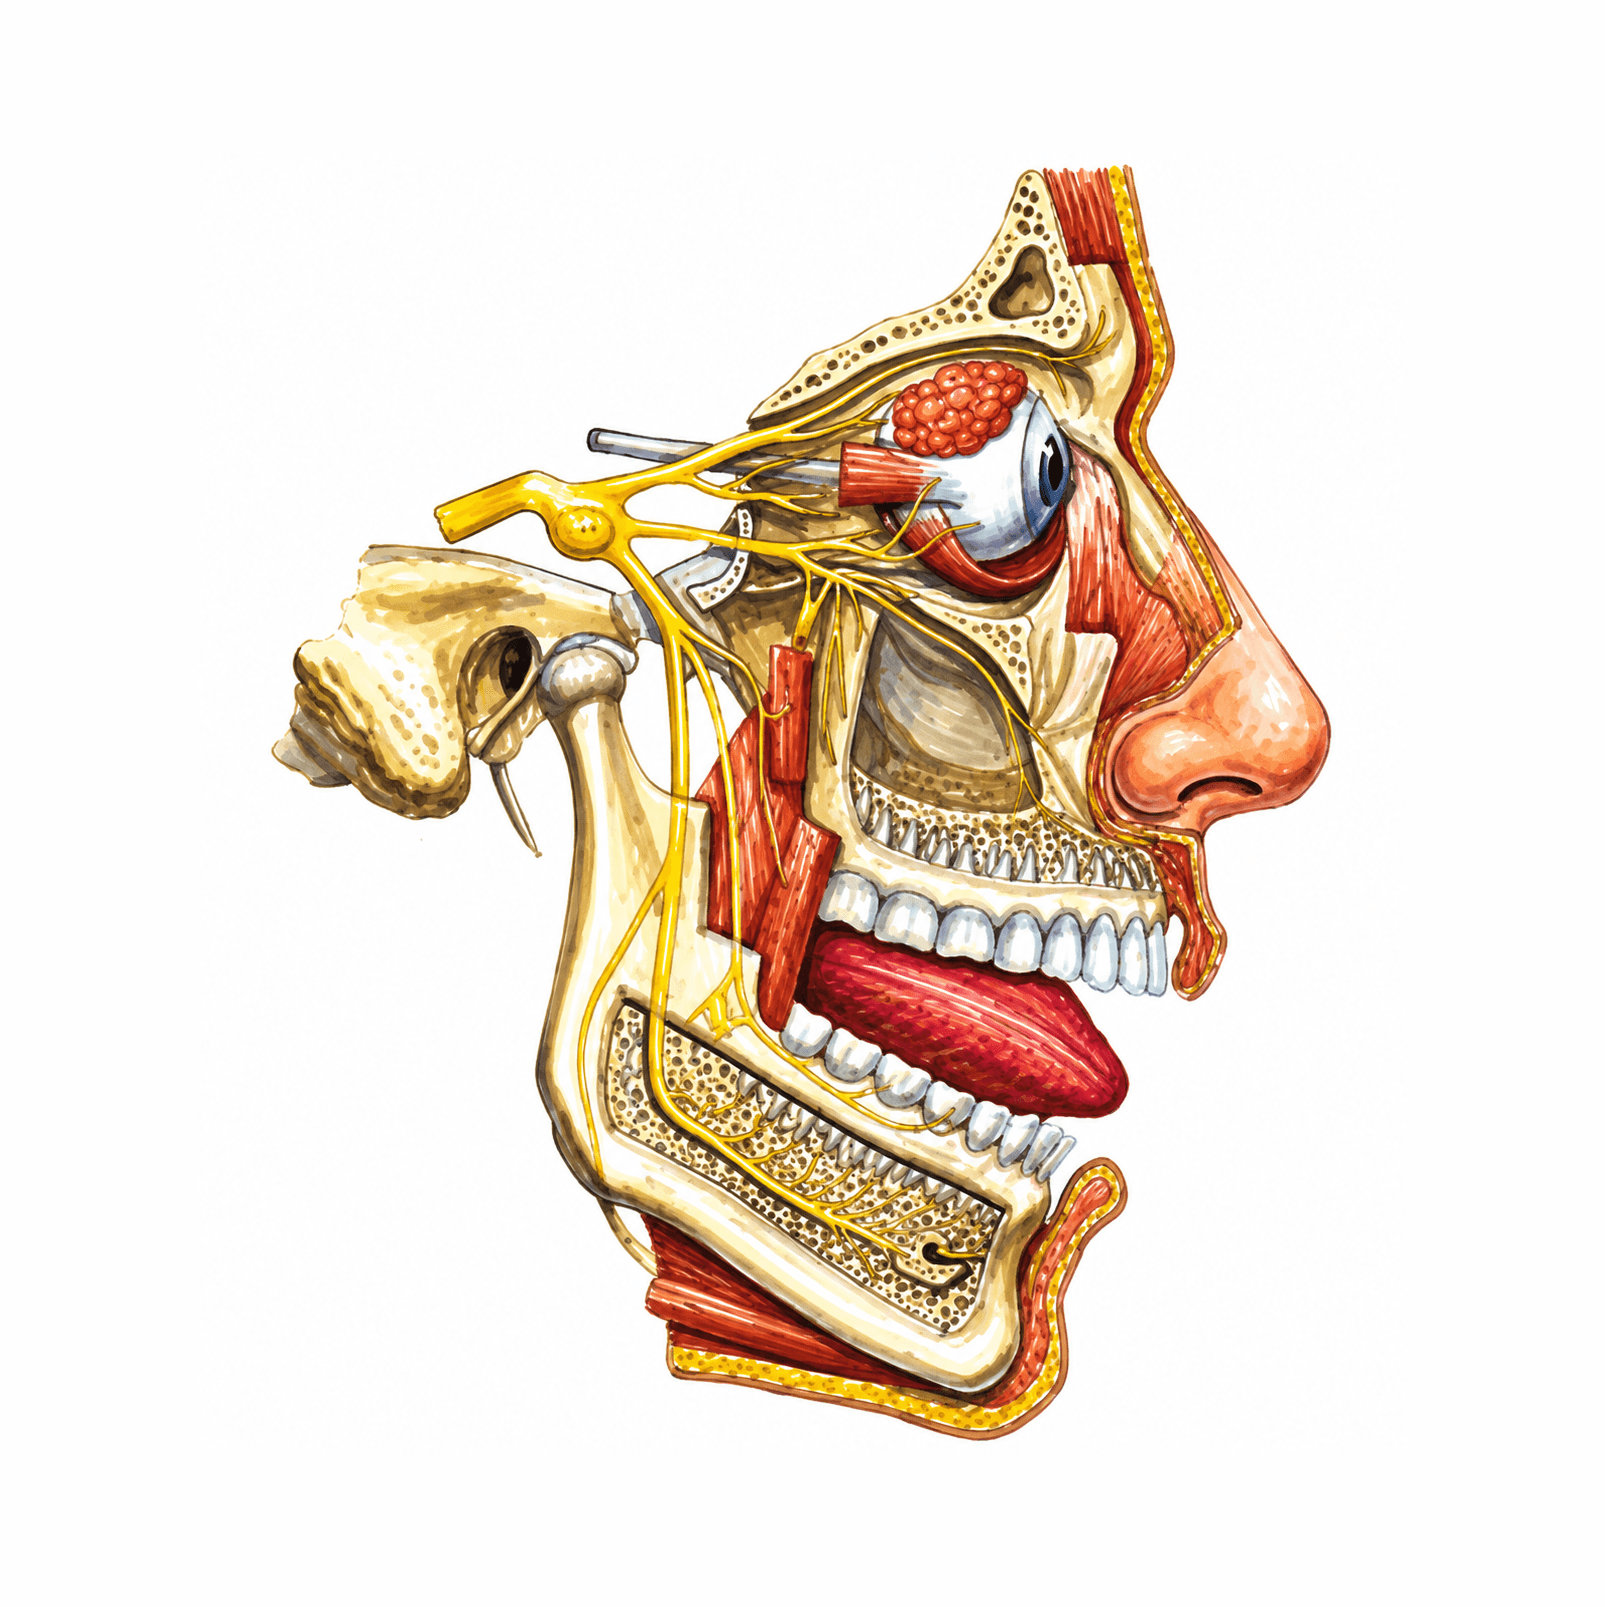
Fig. 27 · Biologie Corint · p. 27
Nervul trigemen (perechea V) și ramurile luiFigura prezintă nervul trigemen, perechea V de nervi cranieni, pe un cap văzut din profil, cu fața spre dreapta. Din peretele orbitei, din maxilar și din mandibulă s-au îndepărtat porțiuni de os, ca să se vadă cum trece nervul prin interiorul lor. Citește desenul din spate spre față: în stânga, capătul tăiat al nervului vine dinspre trunchiul cerebral, iar nervul se îngroașă imediat în ganglionul trigeminal. Din ganglion pornesc cele trei ramuri principale, care se despart spre etajele de sus, de mijloc și de jos ale feței. Un nerv mixt: fibrele și originile lor Nervii trigemeni sunt nervi micști: au atât fibre senzitive, cât și fibre motorii, iar fiecare categorie are altă origine reală. Fibrele senzitive au originea reală în ganglionul trigeminal, de pe traseul nervului. Acolo se află protoneuronul, primul neuron al căii, la fel cum protoneuronul căilor senzitive ale măduvei se află în ganglionii spinali. Al doilea neuron, deutoneuronul, este în nucleii trigeminali din trunchiul cerebral. Fibrele senzitive se distribuie la pielea feței. Fibrele motorii au originea reală în nucleul motor al trigemenului, din punte, și inervează mușchii masticatori. Originea aparentă, locul în care nervul apare pe suprafața trunchiului cerebral, este pe partea anterioară a punții. În Figura 25 o găsești la cifra V, unde fibrele motorii (m) și cele senzitive (s) sunt însemnate separat. Deși este mixt, trigemenul nu are fibre parasimpatice. Manualul le atribuie fibre parasimpatice doar perechilor III, VII, IX și X, așa că, dintre nervii micști (V, VII, IX, X), trigemenul este singurul fără componentă parasimpatică. Cele trei ramuri Dintre cele trei ramuri principale, două sunt senzitive, iar una este mixtă. Toate se desprind din ganglionul trigeminal: Ramura oftalmică, senzitivă, este cea de sus. Urcă spre orbită, trece pe deasupra globului ocular și se continuă spre frunte. Manualul o leagă de reflexul cornean de clipire: atingerea corneei cu vată produce clipitul, un răspuns motor de apărare, dar reflexul nu se produce dacă sunt lezate nucleul senzitiv al trigemenului sau ramura oftalmică. Ramura maxilară, tot senzitivă, este cea din mijloc. Pleacă înainte, pe sub globul ocular, și merge prin maxilar spre mijlocul feței. Ramura mandibulară, singura mixtă, este cea de jos. Coboară aproape vertical spre mandibulă, pătrunde în os și merge pe sub dinții de jos. Pentru că celelalte două ramuri sunt doar senzitive, ea este cea care duce fibrele motorii la mușchii masticatori. Nu confunda trigemenul cu nervul facial Pe aceeași pagină, manualul descrie și nervul facial (perechea VII), tot un nerv mixt care se distribuie la față. Fibrele lui motorii inervează însă mușchii mimicii, care prin contracție dau diferitele expresii ale feței. Trigemenul, în schimb, are fibre senzitive pentru pielea feței și inervează mușchii masticatori.
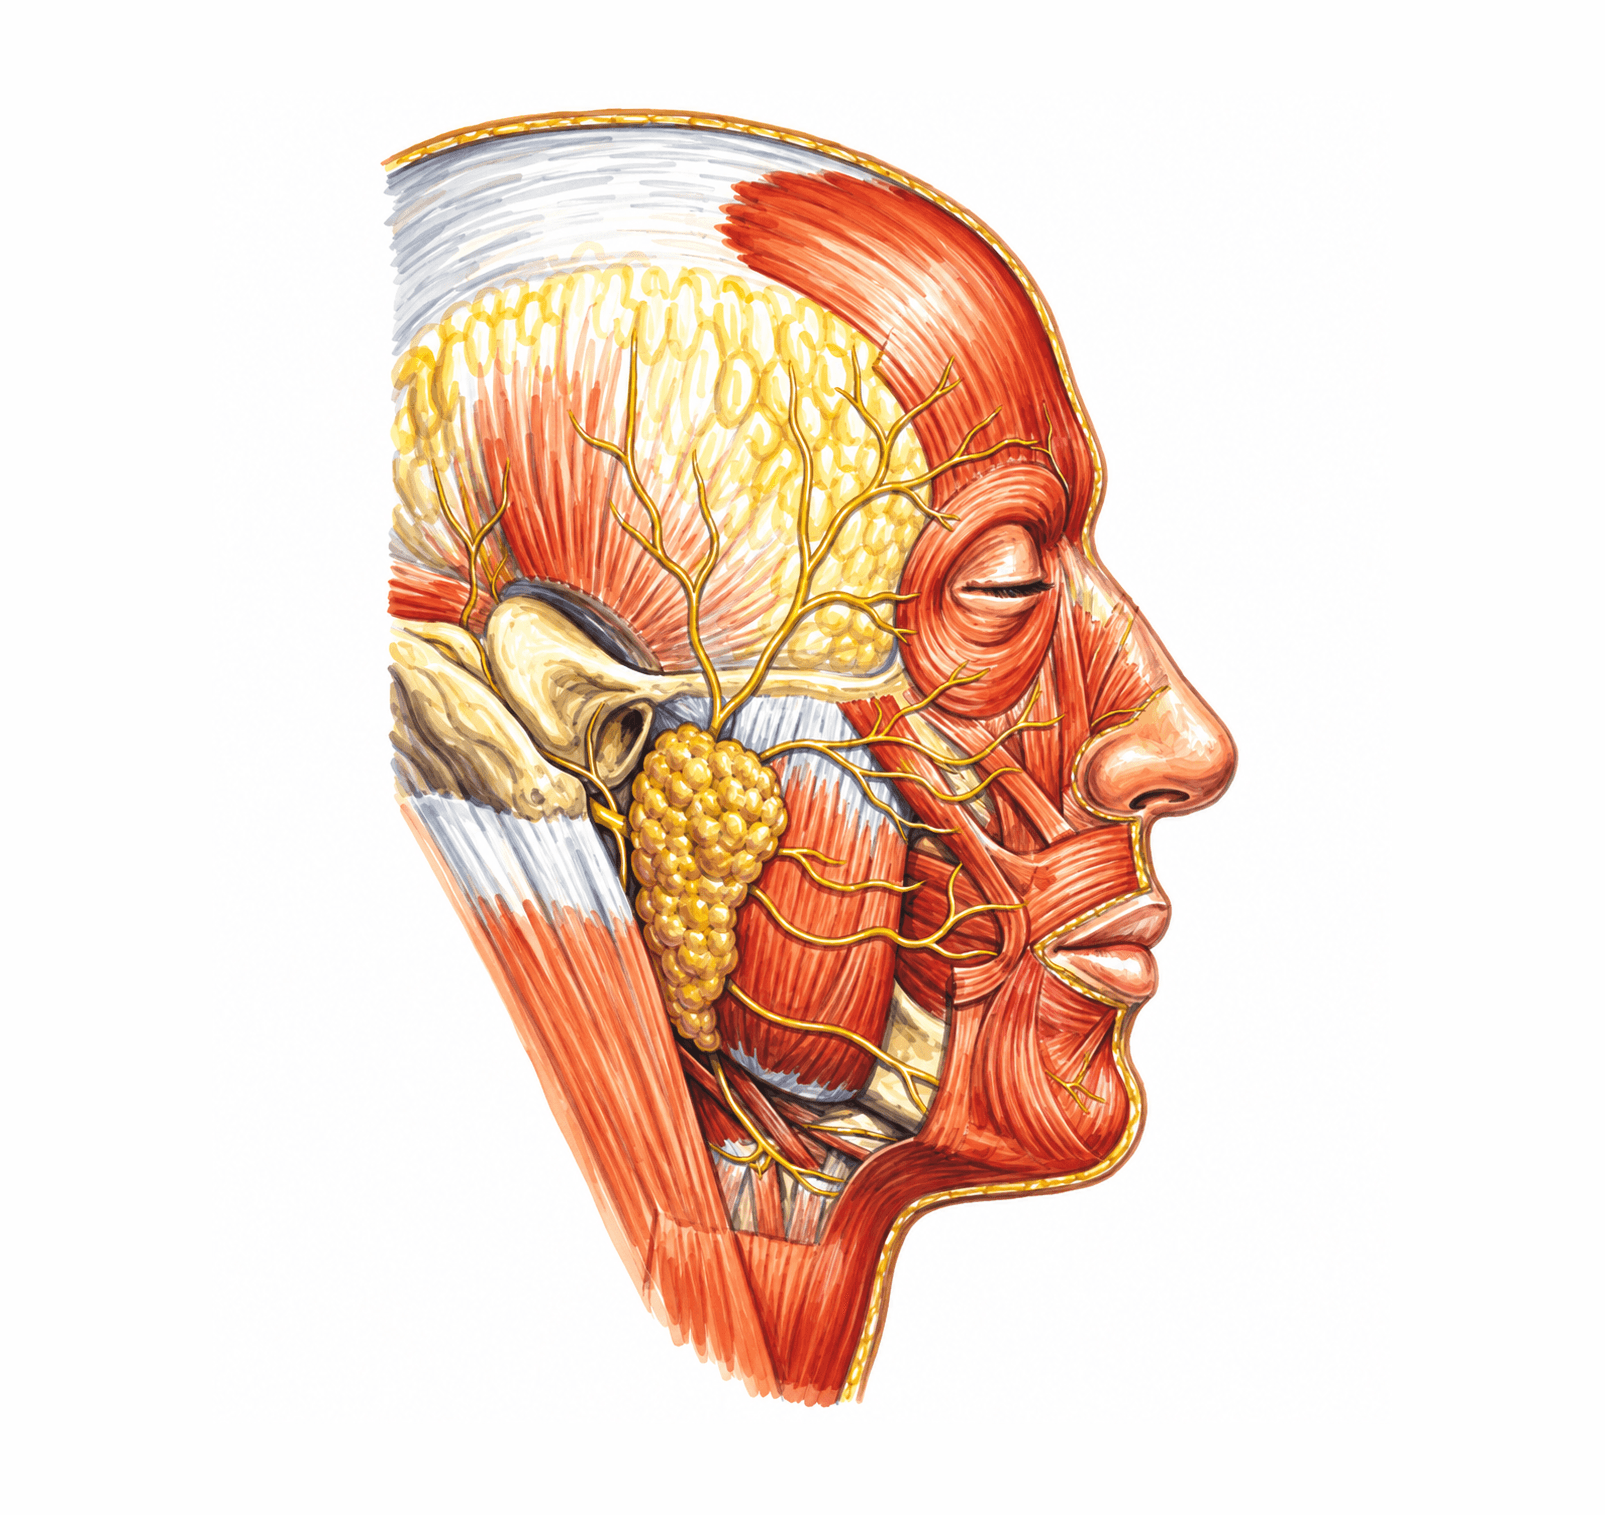
Fig. 28 · Biologie Corint · p. 27
Distribuția nervului facial (perechea VII)Figura arată capul și gâtul din profil, cu pielea îndepărtată, astfel încât se văd mușchii feței și, peste ei, ramurile subțiri ale nervului facial, perechea VII de nervi cranieni. Desenul se citește cel mai ușor pornind din fața urechii: acolo ramurile pleacă aproape din același punct și se desfac în evantai. Unele urcă spre tâmplă și frunte, altele merg înainte, spre ochi și obraz, iar altele coboară spre mandibulă și pe gât. Legenda figurii nu numește ramurile, ci cele cinci regiuni în care se distribuie nervul. Cele cinci regiuni Regiunea temporală și frontală cuprinde tâmpla și fruntea, în dreptul oaselor temporal și frontal. Ramurile care ajung aici urcă din evantai peste tâmplă, spre mușchiul lat de pe frunte și spre partea de sus a mușchilor din jurul ochiului. Regiunea auriculară înconjoară urechea, chiar lângă punctul din care pornește evantaiul. Aici ajung ramuri subțiri, care nu merg spre față, ci rămân în jurul urechii. Regiunea zigomatică se află sub ochi, în dreptul osului zigomatic. Ramurile ei pleacă aproape orizontal din fața urechii și merg înainte, spre ochi și spre obraz. Regiunea mandibulară se întinde de-a lungul mandibulei, pe partea de jos a feței. Ramurile care ajung aici coboară din evantai și merg apoi înainte, pe lângă mandibulă, spre bărbie. Regiunea cervicală este singura aflată în afara feței: gâtul, sub mandibulă. Aici coboară ramurile cele mai de jos ale nervului. Cele trei feluri de fibre Nervii faciali sunt nervi micști, care au și fibre parasimpatice. Desenul arată doar ramurile din cele cinci regiuni, dar nervul conține trei feluri de fibre, fiecare cu originea reală și țintele lui: Fibrele motorii au originea reală în nucleul motor din punte și inervează mușchii mimicii, adică mușchii care, prin contracția lor, determină diferite expresii ale feței. Spre acești mușchi duc ramurile desenate pe față. Nu îi confunda cu mușchii maseteri, cealaltă categorie de mușchi ai capului, care intervin în masticație: mușchii masticatori primesc fibrele motorii ale trigemenului. Fibrele gustative au protoneuronul în ganglionul geniculat, de pe traiectul nervului, iar deutoneuronul în nucleul solitar din bulb. Ele culeg excitații gustative de la corpul limbii, unde terminațiile lor ajung la polul bazal al celulelor gustative din mugurii gustativi. Fibrele parasimpatice provin din doi nuclei din punte, nucleul lacrimal și nucleul salivator superior. Sunt fibre preganglionare și inervează glandele lacrimale, submandibulare și sublinguale (ultimele două sunt glande salivare). Stimularea parasimpatică mărește secreția acestor glande, iar saliva secretată astfel este apoasă. Drumul acestor fibre spre glande apare în Figura 41. Dintre nucleii de care ține facialul, doar nucleul solitar se află în bulb. Ceilalți trei, motor, lacrimal și salivator superior, sunt în punte. Originea aparentă a nervului se găsește în șanțul bulbo-pontin, dintre bulb și punte (Figura 25). Facialul printre ceilalți nervi cranieni Facialul face parte atât dintre nervii micști (V, VII, IX, X), cât și dintre nervii cranieni cu fibre parasimpatice (III, VII, IX, X). Nu este însă singurul nerv al gustului. Glosofaringianul culege excitațiile gustative din treimea posterioară a limbii, iar vagul, pe cele de la baza rădăcinii limbii. Toți trei au deutoneuronul căii gustative în nucleul solitar din bulb.

Fig. 29 · Biologie Corint · p. 28
Nervul glosofaringian (perechea IX)Figura urmărește nervul glosofaringian, perechea IX de nervi cranieni, de la bulb până la structurile pe care le deservește. Capul este desenat în profil, cu fața spre stânga și cu conturul feței doar schițat, ca să se vadă ce se află în profunzime: bulbul în spate, limba în față, iar între ele glanda parotidă și, sub ea, artera carotidă. Nervul însuși nu are etichetă: este firul subțire și ramificat care pornește din bulb, trece pe lângă marginea dinapoi a parotidei și pe lângă carotidă și ajunge, prin ramurile lui, în partea dinapoi a limbii și în mușchii din spatele ei. Ce fel de nerv este Nervii glosofaringieni sunt nervi micști, care au și fibre parasimpatice. Originea aparentă se află în șanțul retroolivar, adică înapoia olivei bulbare, în locul marcat cu IX pe fața anterioară a trunchiului cerebral din Figura 25. Fiecare fel de fibre are originea și destinația lui: Fibrele motorii au originea reală în nucleul ambiguu din bulb și se distribuie mușchilor faringelui. Fibrele senzoriale (gustative) au primul neuron în ganglionii de pe traiectul nervului, iar deutoneuronul în nucleul solitar din bulb. Ele culeg excitațiile gustative din treimea posterioară a limbii, porțiunea în care se răsfiră, în figură, ramurile nervului. Fibrele parasimpatice provin din nucleul salivator inferior din bulb și ajung la glandele parotide. Toți cei trei nuclei ai nervului (ambiguu, solitar și salivator inferior) se află așadar în bulb. Ganglionii de pe traiectul nervului nu sunt marcați în figură. Drumul informației gustative Receptorii gustului sunt mugurii gustativi din papilele limbii. La polul bazal al celulelor gustative sosesc terminațiile nervilor faciali, glosofaringieni și vagi (Figura 46). Pentru treimea posterioară a limbii, calea este: Mugurii gustativi → ganglionii de pe traiectul glosofaringianului (protoneuronul) → nucleul solitar din bulb (deutoneuronul, ai cărui axoni se încrucișează) → talamus → aria gustativă, în partea inferioară a girului postcentral. Parotida și fibrele parasimpatice Parotidele sunt, alături de glandele submandibulare și sublinguale, glande salivare, adică glande anexe ale tubului digestiv. Fibrele parasimpatice ale nervului IX sunt preganglionare. Ca în tot sistemul parasimpatic, ele fac sinapsă cu fibra postganglionară într-un ganglion aflat aproape de organ sau chiar în peretele lui, așa că fibra preganglionară este lungă, iar cea postganglionară, scurtă. Ganglionul nu este marcat în această figură, dar îl vezi în Figura 41, pe drumul nervului cranian IX spre glanda parotidă. Stimularea parasimpatică crește secreția salivară și o face apoasă, pe când cea simpatică o scade și o face vâscoasă. Nervii limbii, pe scurt Limba și glandele salivare își împart inervația între mai mulți nervi cranieni, ușor de confundat: Facialul (VII) culege gustul de la corpul limbii, iar fibrele lui parasimpatice, din nucleii lacrimal și salivator superior din punte, inervează glandele lacrimale, submandibulare și sublinguale. Glosofaringianul (IX) culege gustul din treimea posterioară a limbii și trimite fibre parasimpatice, din nucleul salivator inferior din bulb, la glandele parotide. Vagul (X) culege sensibilitatea gustativă de la baza rădăcinii limbii. Hipoglosul (XII), nerv motor, inervează musculatura limbii. Fibrele motorii ale glosofaringianului merg la mușchii faringelui, nu la cei ai limbii.

Fig. 30 · Biologie Corint · p. 28
Nervul vag (perechea X) și organele pe care le inerveazăFigura urmărește nervul vag (perechea X de nervi cranieni) de la gât până la organele din torace și din abdomen. Corpul este desenat din față, de la gât până în partea de jos a abdomenului, cu toracele și abdomenul deschise, astfel încât organele se văd direct. Sunt numerotate cinci dintre organele la care ajunge nervul: două în torace (plămânul și inima) și trei în abdomen (ficatul, stomacul și colonul). Cum urmărești nervul în desen Nervul însuși nu are un număr. El apare ca fire galbene subțiri, care intră în desen pe la partea de sus a gâtului, venind dinspre cap. Fiind o pereche, nervii sunt doi și coboară câte unul de fiecare parte a traheei (tubul inelat din mijlocul gâtului), alături de vasele mari de sânge. În torace, ramificațiile lor se întind pe suprafața inimii și ajung la plămâni. Mai jos, în abdomen, se strâng la partea de sus a stomacului și se răsfiră ca un evantai în mijlocul abdomenului, printre intestine. Desenul arată astfel ce spune textul: fibrele parasimpatice ale vagului se distribuie organelor din torace și abdomen. Ce fel de nerv este Nervii vagi, numiți și pneumogastrici, sunt nervi micști, care au și fibre parasimpatice. Originea lor aparentă se află în șanțul retroolivar. Pe fața anterioară a trunchiului cerebral, ea este notată, alături de originile aparente ale celorlalți nervi cranieni, în Figura 25. Nervul conține trei feluri de fibre: Fibrele motorii au originea reală în nucleul ambiguu și inervează musculatura laringelui și a faringelui. Tot prin nervii vagi ajung la mușchii laringelui și fibrele ramurii interne a nervului accesor (perechea XI). Fibrele senzoriale au primul neuron în ganglionii de pe traiectul nervului, iar deutoneuronul în nucleul solitar din bulb. Ele culeg sensibilitatea gustativă de la baza rădăcinii limbii. Fibrele parasimpatice provin din nucleul dorsal al nervului vag și se distribuie organelor din torace și abdomen. Pe ele le urmărește figura. Calea parasimpatică a vagului Parasimpaticul cranian folosește calea a patru nervi cranieni: III, VII, IX și X. Primii trei își trimit fibrele parasimpatice la structuri din cap: nervul III la mușchiul sfincter al irisului și la fibrele circulare ale mușchiului ciliar, nervul VII la glandele lacrimale, submandibulare și sublinguale, iar nervul IX la glandele parotide. Dintre ei, numai vagul coboară până la organele din torace și din abdomen. Fibrele parasimpatice ale vagului sunt fibre preganglionare, cu originea în trunchiul cerebral. Ele fac sinapsă cu neuronul postganglionar abia în ganglionii juxtaviscerali (aproape de viscer) sau intramurali (aflați chiar în peretele organului), cum sunt plexurile din pereții tubului digestiv. De aceea, la parasimpatic fibra preganglionară este lungă, iar cea postganglionară este scurtă, foarte aproape de organ. Drumul lung pe care îl vezi în figură, de la gât până la organe, este deci parcurs de fibre preganglionare. Mediatorul chimic eliberat atât în ganglion, cât și la capătul fibrei postganglionare, în organ, este acetilcolina. Ce face parasimpaticul în organele numerotate Componenta parasimpatică produce, cel mai adesea, efecte antagoniste simpaticului. Tabelul manualului cu efectele stimulării sistemului nervos vegetativ (SNV) arată, pentru fiecare organ din figură: Plămânul: stimularea parasimpatică produce constricția arborelui bronșic și stimulează secreția glandelor mucoase. Simpaticul dilată arborele bronșic și inhibă secreția. Inima: scad frecvența și conducerea, iar asupra forței de contracție stimularea parasimpatică nu are efect. Simpaticul le crește pe toate trei. Ficatul: stimularea parasimpatică nu are efect. Singurul efect trecut în tabel pentru ficat aparține simpaticului, care stimulează glicogenoliza. Stomacul: sunt stimulate secreția glandelor gastrice și mișcarea, iar sfincterele sunt relaxate, de cele mai multe ori. Simpaticul scade secreția gastrică, inhibă mișcarea și stimulează închiderea sfincterelor. Colonul, porțiune a intestinului gros: ca parte a tractului gastrointestinal, primește aceleași efecte asupra mișcării și a sfincterelor, iar secreția glandelor intestinale este stimulată. Inervația dublă a viscerelor Majoritatea viscerelor sunt prevăzute cu inervație dublă, simpatică și parasimpatică, iar cele două sisteme pot acționa antagonist, complementar sau cooperant. Există însă și organe asupra cărora numai unul dintre sisteme are efect, cum apare ficatul în tabel. Vagul apare, alături de celelalte căi ale sistemului nervos vegetativ, în schema de ansamblu din Figura 41.

Fig. 31 · Biologie Corint · p. 28
Nervii accesor și hipoglos (perechile XI și XII)Figura urmărește ultimele două perechi de nervi cranieni, nervii accesori (perechea XI) și nervii hipogloși (perechea XII), pe un cap desenat din profil, cu fața spre stânga și cu mușchii limbii și ai gâtului lăsați la vedere. Sus, trunchiul cerebral și cerebelul sunt desenate doar în contur. Partea de jos a trunchiului cerebral, bulbul, este evidențiată cu galben, iar sub el măduva spinării continuă în jos, prin gât. Nervii sunt desenați ca fire verzi care se desprind din dreptul bulbului. Cei doi sunt marcați chiar acolo, la ieșire, unde firele lor stau foarte aproape, hipoglosul puțin mai sus decât accesorul. Ca să îi deosebești, urmărește-le drumul: hipoglosul merge înainte și se ramifică în limbă, iar accesorul coboară spre mușchii gâtului și ai cefei. Perechea XI, nervii accesori Manualul îi numește și nervi spinali, dar sunt nervi cranieni, din grupa celor motori. Au o alcătuire aparte, fiind formați din două rădăcini: Rădăcina bulbară are originea în nucleul ambiguu din bulb, același nucleu în care se află originea reală a fibrelor motorii ale nervilor glosofaringieni și vagi. Rădăcina spinală are originea în cornul anterior al măduvei cervicale, partea substanței cenușii a măduvei care conține neuronii somatomotori. Atenție, acestea nu sunt rădăcinile dorsală și ventrală ale nervilor spinali, pe care nervii cranieni nu le au. Ambele rădăcini ale accesorului sunt motorii și se deosebesc prin locul din care pornesc, bulbul sau măduva cervicală. Fibrele accesorului se distribuie apoi pe două ramuri: Ramura internă pătrunde în nervii vagi, iar pe această cale fibrele ajung la mușchii laringelui. Ramura externă duce fibrele la mușchii sternocleidomastoidian, din regiunea anterolaterală a gâtului, și trapez, așezat superficial în partea de sus a spatelui și a cefei. Îi găsești pe amândoi în Figura 71. În desen, accesorul coboară spre gât, iar jos, spre ceafă, i se văd ramificațiile în mușchii din spatele gâtului. Perechea XII, nervii hipogloși Sunt tot nervi motori. Au originea reală în nucleul motor al nervului, situat în bulb, iar originea aparentă în șanțul preolivar, pe fața anterioară a bulbului. Nervii glosofaringieni și vagi au, în schimb, originea aparentă în șanțul retroolivar. Hipoglosul inervează musculatura limbii: în desen iese din bulb, merge înainte și în jos, apoi pătrunde în limbă și se ramifică în masa ei musculară. Hipoglosul este nervul motor al limbii, nu nervul gustului. Excitațiile gustative de pe limbă sunt culese de fibrele senzoriale ale altor nervi cranieni: ale facialului de la corpul limbii, ale glosofaringianului din treimea posterioară și ale vagului de la baza rădăcinii limbii. Ce le apropie și ce le desparte Amândoi fac parte din grupa nervilor cranieni motori, alături de perechile III, IV și VI, și niciunul nu are fibre parasimpatice, pe care manualul le descrie doar la perechile III, VII, IX și X. Amândoi au origine în bulb, dar numai hipoglosul pornește în întregime de acolo, pentru că accesorul își adună fibrele și din măduva cervicală. Diferă și teritoriul: hipoglosul inervează musculatura limbii, iar accesorul, prin cele două ramuri, mușchii laringelui, sternocleidomastoidianul și trapezul. Originile lor aparente, pe bulb, sunt marcate în Figura 25, împreună cu ale altor nervi cranieni.
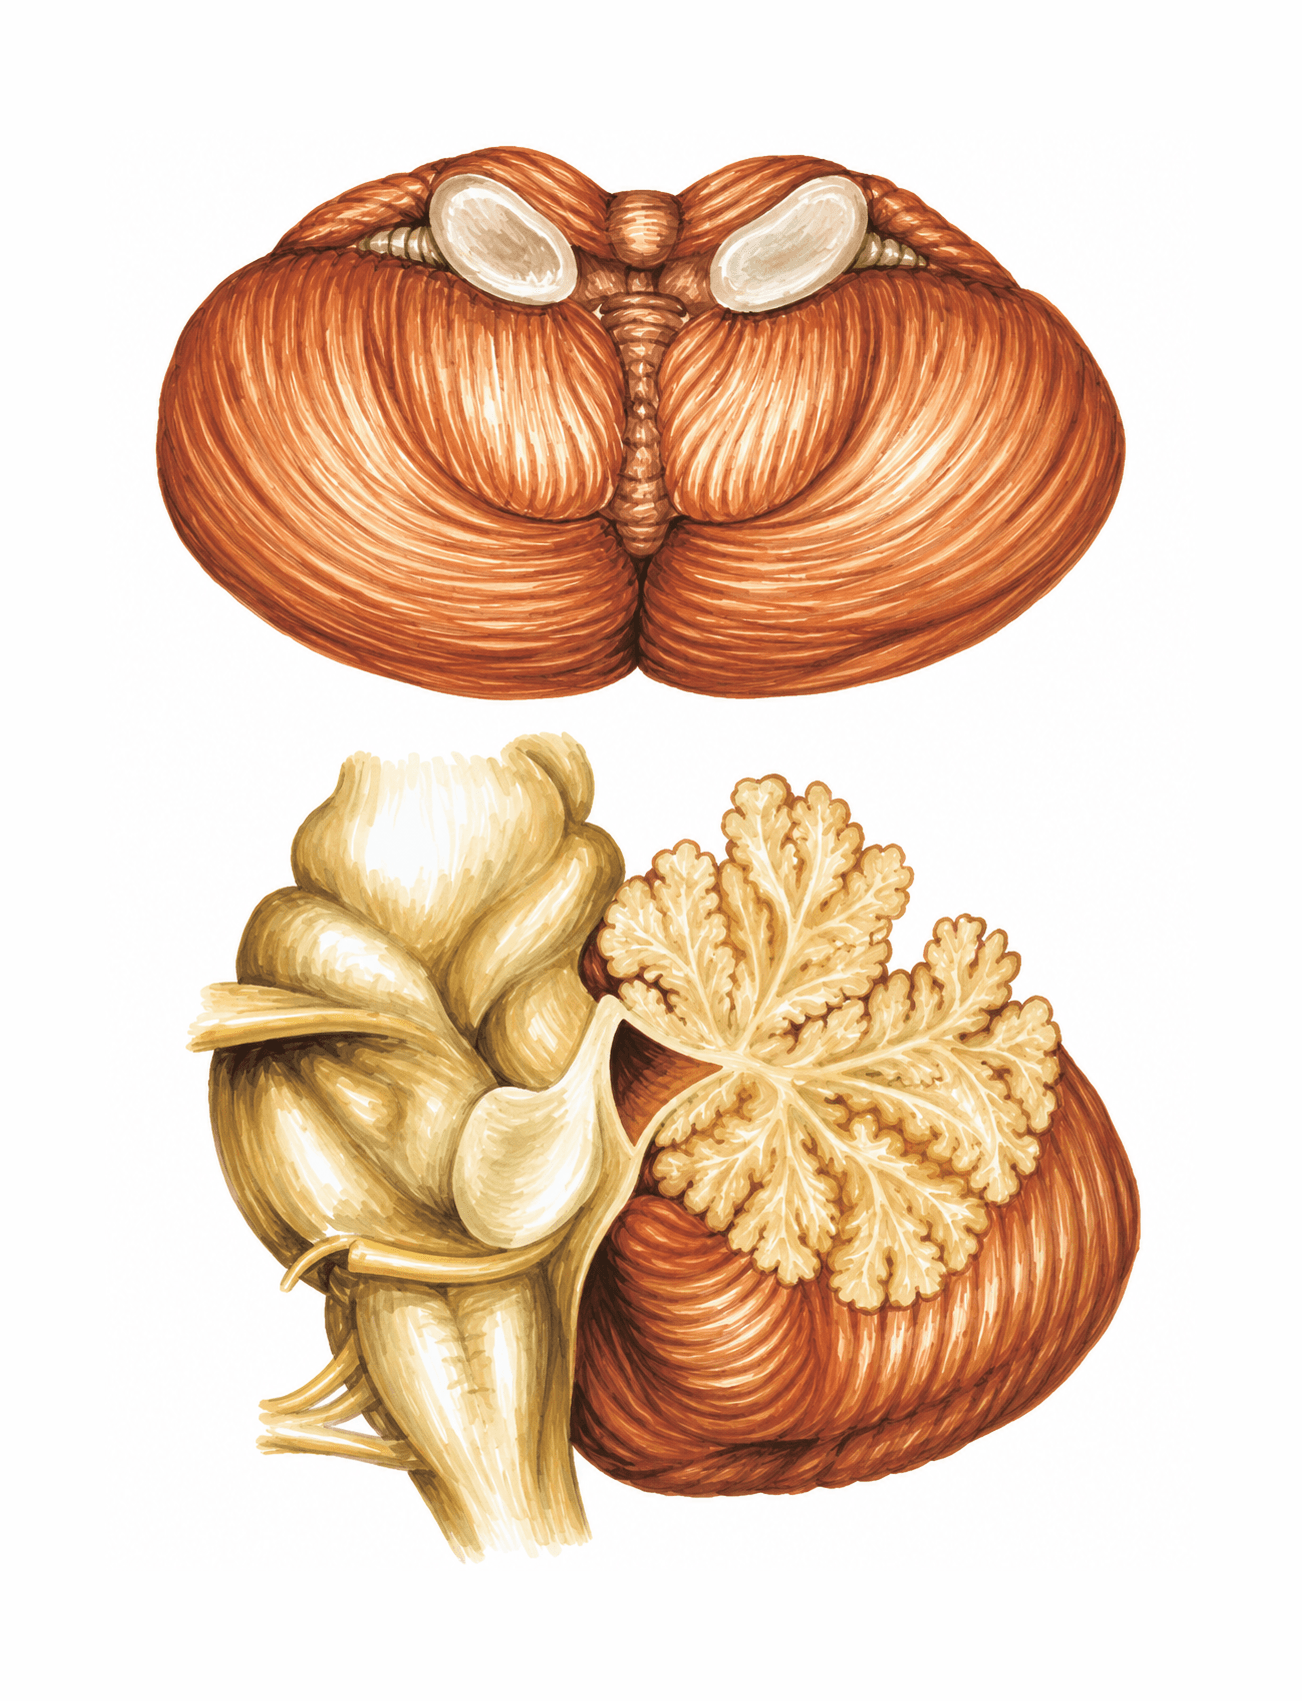
Fig. 32 · Biologie Corint · p. 29
Lobulația cerebeluluiFigura arată cerebelul în două desene care se completează. În desenul de sus, cerebelul este întreg, desprins de trunchiul cerebral și privit de deasupra. Marginea dinspre trunchi se află sus în desen, acolo unde se văd două suprafețe ovale, netede. În desenul de jos, trunchiul cerebral este văzut dintr-o parte, iar cerebelul se află în spatele lui, în dreapta. Aici cerebelul este secționat în partea de sus, ca să i se vadă și interiorul. Împreună, cele două desene arată lobulația cerebelului, adică felul în care șanțurile îl împart în lobi și lobuli. Unde se află cerebelul Cerebelul ocupă fosa posterioară a craniului. De emisferele cerebrale îl desparte cortul cerebelului, o excrescență a durei mater cerebrale. Se află înapoia bulbului și a punții, iar împreună cu ele delimitează cavitatea ventriculului IV. Desenul de jos arată această vecinătate: în stânga se văd puntea, masa rotunjită și voluminoasă, și, sub ea, bulbul rahidian, mai îngust. Ele sunt două dintre cele trei etaje ale trunchiului cerebral, al treilea fiind mezencefalul. Vermisul și emisferele Cerebelul are forma unui fluture: o porțiune mediană, îngustă, numită vermis, și două porțiuni laterale, voluminoase, numite emisfere cerebeloase. În desenul de sus, vermisul este banda îngustă, brăzdată de-a curmezișul, care urmează linia mediană de la o margine la cealaltă, iar emisferele sunt cele două mase mari, rotunjite, de pe laturi. Pe această bandă sunt însemnate două porțiuni: vermisul superior, sus, între cele două suprafețe ovale, și vermisul inferior, jos, acolo unde emisferele se apropie una de alta. Pedunculii cerebeloși Cerebelul este legat de bulb, de punte și de mezencefal prin pedunculii cerebeloși inferiori, mijlocii și, respectiv, superiori. În desenul de sus, pedunculul cerebelos mijlociu, cel care leagă cerebelul de punte, este suprafața ovală din stânga vermisului superior, locul în care cerebelul a fost desprins de trunchi. Suprafața din dreapta este pedunculul de partea opusă. Pedunculii inferiori și superiori conțin atât fibre aferente, cât și eferente, pe când cei mijlocii conțin numai fibre aferente. Tot prin pedunculi ajung la cerebel fasciculele spinocerebeloase, care urcă prin măduva spinării. Fasciculul spinocerebelos dorsal (direct) străbate numai bulbul și intră în cerebel pe calea pedunculului cerebelos inferior. Fasciculul spinocerebelos ventral (încrucișat) străbate bulbul, puntea și mezencefalul și ajunge la cerebel de-a lungul pedunculului cerebelos superior. Pedunculii inferiori, mijlocii și superiori se văd, toți trei, pe trunchiul cerebral din Figura 25. Șanțurile, lobulii și lobii Suprafața cerebelului este brăzdată de șanțuri paralele, de adâncimi diferite: Șanțurile numeroase și superficiale delimitează lamelele (foliile) cerebeloase. În ambele desene, ele sunt liniile fine, paralele, care acoperă toată suprafața. Șanțurile mai adânci delimitează lobulii cerebelului. Șanțurile foarte adânci, doar două la număr, delimitează lobii cerebelului. Toți cei trei lobi sunt însemnați în figură: Lobul anterior (paleocerebelul) se află, în desenul de sus, la marginea dinspre trunchi, lângă pedunculi. În desenul de jos corespunde părții de sus a cerebelului, cea secționată. Lobul posterior (neocerebelul) se află, în desenul de sus, pe partea mare, rotunjită, a emisferelor, spre marginea opusă pedunculilor. În desenul de jos se vede pe suprafața din spate a cerebelului. Lobul floculonodular (arhicerebelul) apare numai în desenul de jos, în partea de jos a cerebelului, aproape de trunchiul cerebral. În interior: scoarța și arborele vieții La exterior, cerebelul are un strat de substanță cenușie, scoarța cerebelului. Ea înconjoară substanța albă centrală, care trimite prelungiri și, în ansamblu, are aspectul unei coroane de arbore, de unde și numele de arborele vieții. Pe suprafața secționată din desenul de jos se vede tocmai acest aspect ramificat, cu ramuri care se desfac dintr-o zonă centrală spre marginea cerebelului. În masa de substanță albă se găsesc și zone de substanță cenușie, nucleii cerebelului, care nu sunt însemnați în figură. Ce se întâmplă fără cerebel Extirparea cerebelului produce astenie (scăderea forței voluntare), astazie (tulburări ale ortostatismului) și atonie (diminuarea tonusului muscular). După câteva luni, tulburările se atenuează prin compensare corticală. Și alte capitole ale manualului leagă cerebelul de tonus și de echilibru: fasciculele spinocerebeloase conduc spre el sensibilitatea proprioceptivă de reglare a mișcării (simțul tonusului muscular), iar fasciculul vestibulo-cerebelos controlează echilibrul static și dinamic. Alături de simțul vestibular și de analizatorii kinestezic, vizual și tactil, cerebelul contribuie la reglarea echilibrului.
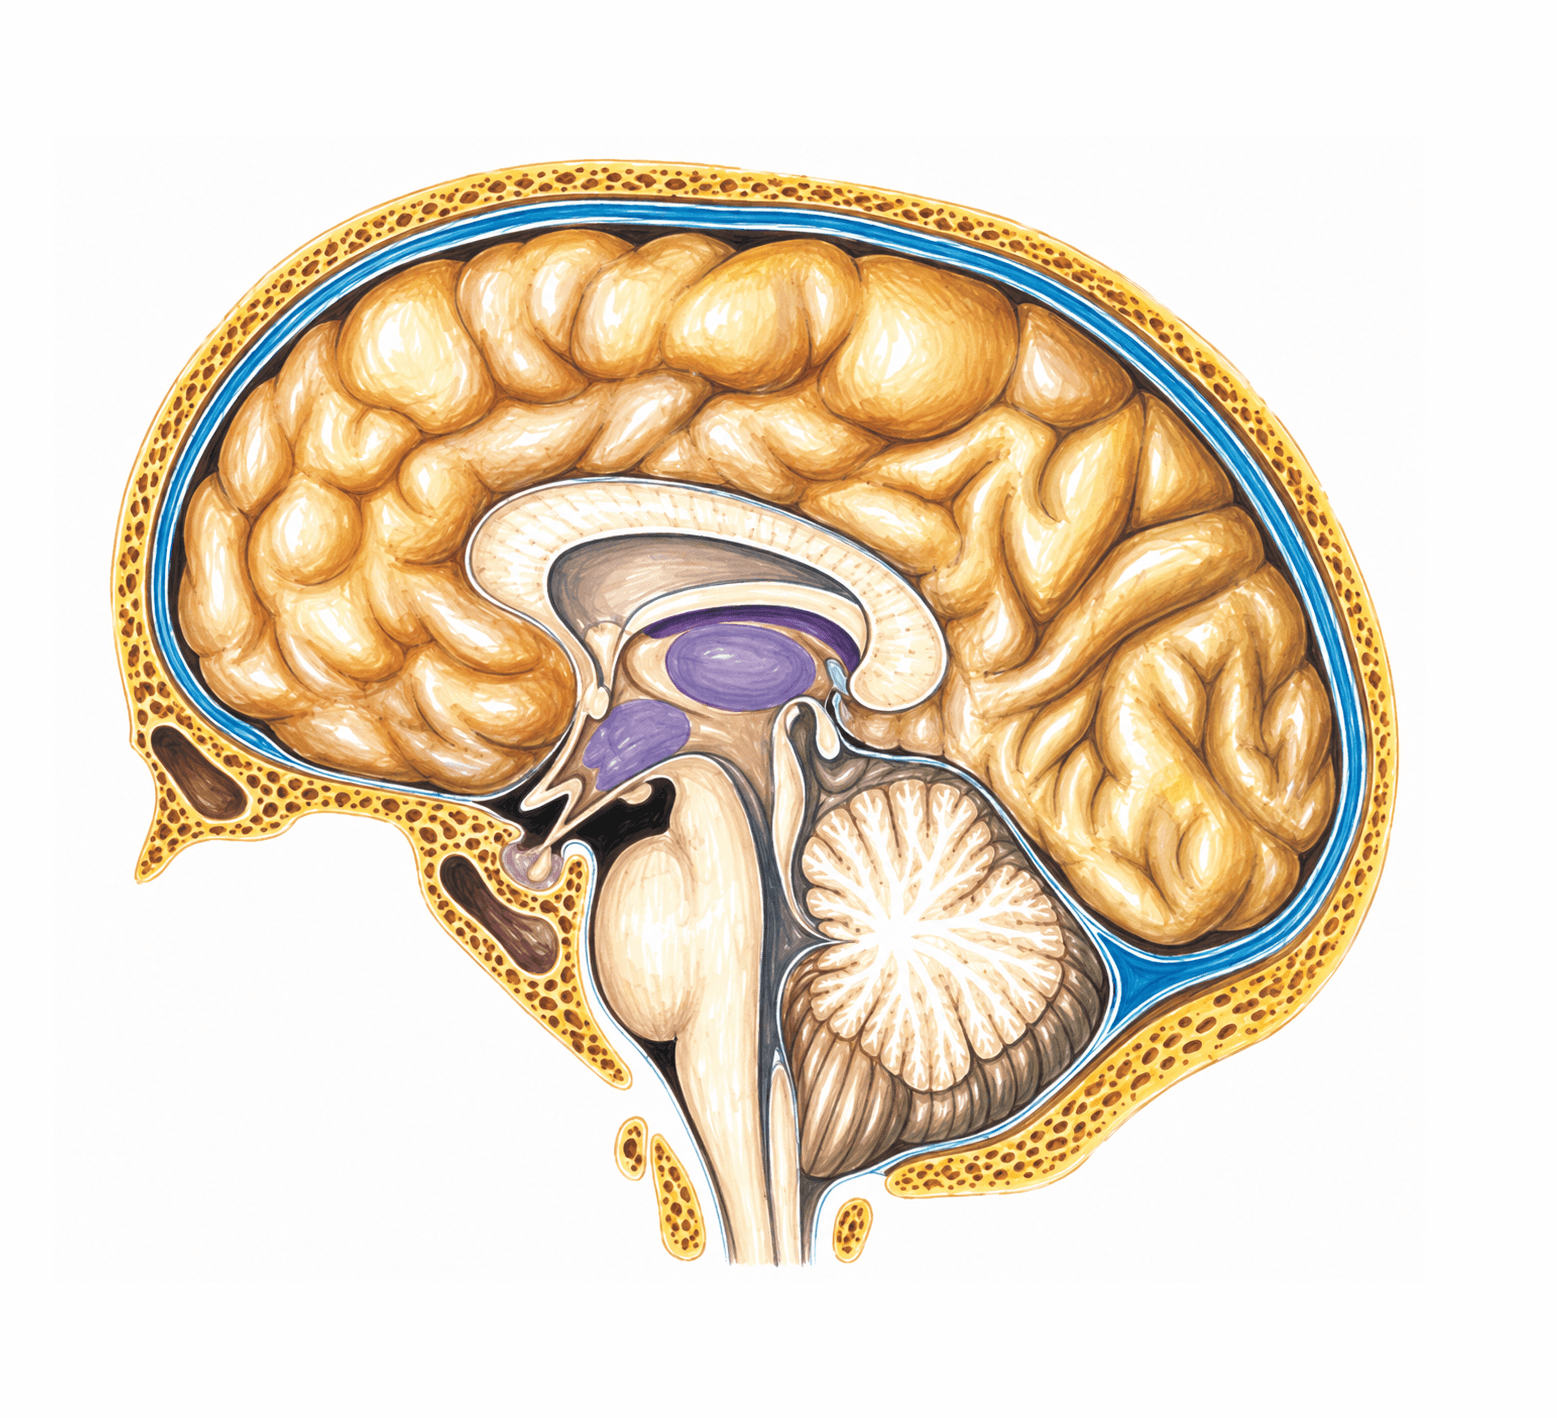
Fig. 33 · Biologie Corint · p. 29
Diencefalul (secțiune sagitală)Figura arată encefalul secționat în plan sagital, pe linia mediană, împreună cu oasele craniului, tăiate și ele. Partea anterioară este în stânga, iar cea posterioară, cu cerebelul, în dreapta. În secțiune se văd toate cele patru părți ale encefalului: fața medială a emisferei cerebrale, cu girii ei, diencefalul, trunchiul cerebral și cerebelul. Diencefalul ocupă miezul desenului, sub corpul calos și deasupra trunchiului cerebral. Pe lângă componentele lui, figura numerotează și structurile vecine, care vă ajută să-l localizați. Ce cuprinde diencefalul Talamusul este formațiunea ovală din centrul figurii, sub corpul calos. Este releu, adică întrerupere sinaptică, pentru toate sensibilitățile, cu excepția celor olfactive, vizuale și auditive. Metatalamusul este releu al sensibilităților vizuală și auditivă. Nu este numerotat în figură. Hipotalamusul se află sub talamus și înaintea lui, chiar deasupra hipofizei. Este centru superior de integrare, reglare și coordonare ale principalelor funcții ale organismului, printre care metabolismul intermediar, secreția endocrină, termoreglarea, digestia prin centrii foamei, setei și sațietății, unele acte comportamentale și ritmul somn-veghe. Epitalamusul include epifiza (glanda pineală), mica formațiune din spatele talamusului, aflată sub capătul posterior al corpului calos. Epifiza este situată între tuberculii cvadrigemeni superiori și secretă melatonina, care frânează funcția gonadelor. Lumina reduce secreția de melatonină, iar la întuneric aceasta crește. Talamusul, hipotalamusul și epitalamusul au conexiuni întinse cu paleocortexul, inclus în sistemul limbic (Figura 37). Hipofiza, legată de hipotalamus Sub hipotalamus se află hipofiza (glanda pituitară), localizată la baza encefalului, înapoia chiasmei optice, pe șaua turcească a osului sfenoid. Anatomic, hipofiza este legată de hipotalamus prin tija pituitară. Între regiunea mediană a hipotalamusului și adenohipofiză există o legătură vasculară, sistemul port-hipotalamo-hipofizar, iar între hipotalamusul anterior și neurohipofiză se află tractul nervos hipotalamo-hipofizar. Prin aceste legături și prin produșii de neurosecreție, hipotalamusul controlează secreția hipofizei, iar prin ea coordonează activitatea întregului sistem endocrin (Figura 58). Structurile vecine Corpul calos este banda arcuită de deasupra diencefalului. Este format din fibre comisurale, care unesc cele două emisfere cerebrale. Tot fibrele comisurale formează fornixul (trigonul cerebral) și comisura albă anterioară. Trunchiul cerebral coboară de sub diencefal și are trei etaje: bulbul, puntea lui Varolio și mezencefalul. În figură sunt numerotate mezencefalul, etajul superior, lipit de diencefal, și puntea, porțiunea bombată de sub el. Bulbul continuă puntea în jos, dar nu este numerotat. În trunchiul cerebral își au originea zece din cele 12 perechi de nervi cranieni. Cerebelul ocupă fosa posterioară a craniului și este separat de emisferele cerebrale prin cortul cerebelului. Este situat înapoia bulbului și a punții, cu care delimitează cavitatea ventriculului IV. În secțiune, scoarța cenușie înconjoară substanța albă, ale cărei prelungiri dau aspectul numit arborele vieții. Talamusul pe căile sensibilității Rolul de releu al talamusului apare clar pe căile ascendente (Figura 20). Pentru sensibilitatea termică și dureroasă, tactilă (grosieră și fină), kinestezică și interoceptivă, al III-lea neuron al căii se află în talamus. Axonul lui se proiectează pe scoarța cerebrală, în aria somestezică I din lobul parietal, cu excepția căii interoceptive, a cărei zonă de proiecție corticală este difuză. Nu orice cale a sensibilității trece însă prin talamus: fasciculele spinocerebeloase, care conduc sensibilitatea proprioceptivă de control al mișcării, ajung la cerebel.
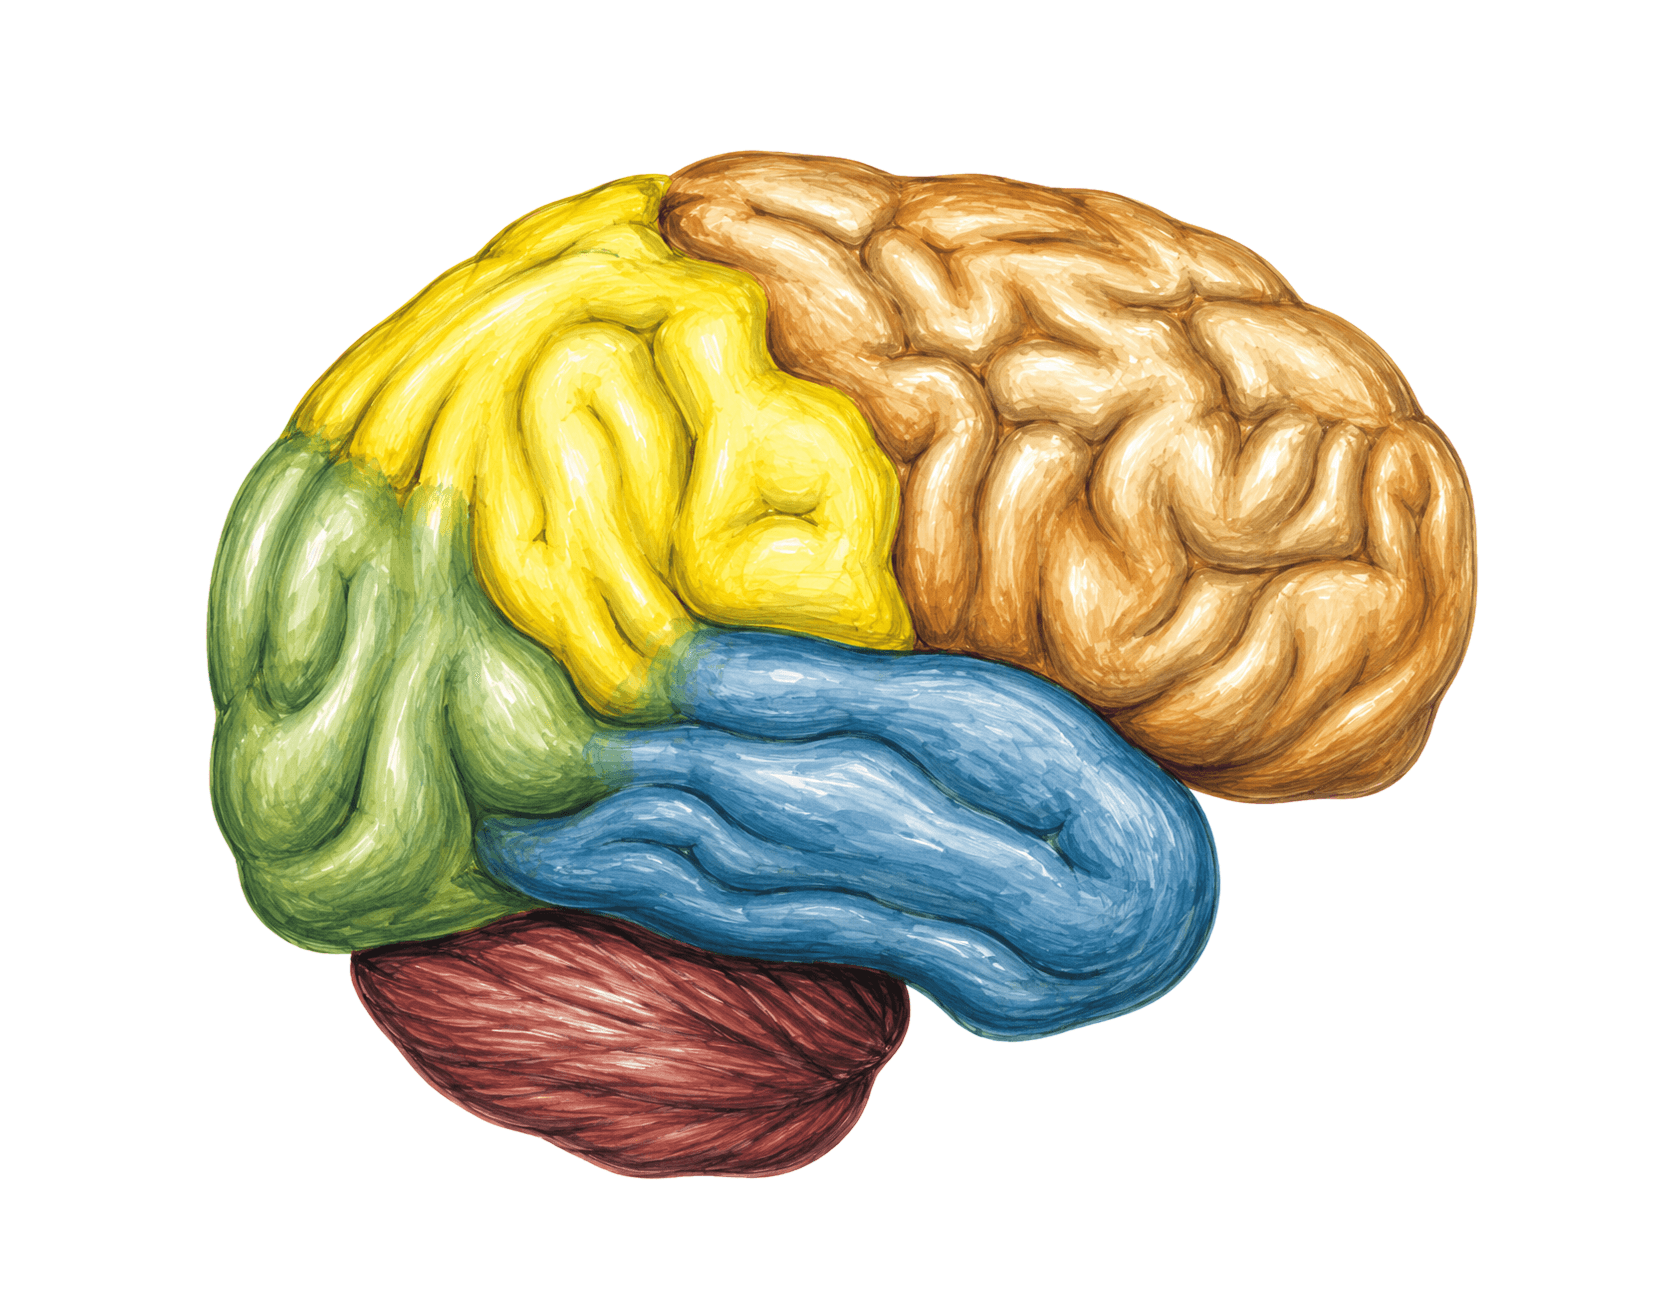
Fig. 34 · Biologie Corint · p. 30
Fața laterală a emisferei cerebraleFigura arată fața laterală a unei emisfere cerebrale, adică fața pe care o vezi când privești creierul dintr-o parte. Emisferele mai au o față medială (Figura 35) și una inferioară (bazală). Partea dinainte a emisferei este spre dreapta, iar cea dinapoi spre stânga. Sub capătul dinapoi apare, nemarcat, cerebelul, care ocupă fosa posterioară a craniului și este separat de emisferele cerebrale prin cortul cerebelului. Suprafața brăzdată de șanțuri pe care o vezi este scoarța cerebrală: ca și la cerebel, substanța cenușie a emisferelor este dispusă la suprafață. Fiecare lob are altă culoare (frontal portocaliu, parietal galben, temporal albastru, occipital verde), așa că figura se citește cel mai ușor dacă găsești întâi cele două șanțuri adânci, aflate la granițele dintre culori, și abia apoi lobii și cei doi giri marcați. Cele două șanțuri adânci Pe fața laterală se observă două șanțuri mai adânci decât celelalte: Fisura laterală a lui Sylvius, numită în manual și scizura laterală, începe pe fața bazală a emisferei. În desen pornește de jos, din partea dinainte, și urcă oblic înapoi, despărțind lobul temporal, aflat dedesubt, de lobii frontal și parietal, aflați deasupra. Șanțul central Rolando coboară de pe marginea de sus a emisferei, oblic spre înainte, către fisura laterală. În desen el este granița dintre partea portocalie și cea galbenă, adică dintre lobul frontal și lobul parietal. Cei patru lobi Cele două șanțuri delimitează patru lobi: Lobul frontal este situat înaintea șanțului central și ocupă toată partea dinainte a emisferei. Lobul parietal se află deasupra scizurii laterale și înapoia șanțului central, între lobul frontal și cel occipital. Lobul temporal se află sub fisura laterală și formează partea alungită din josul emisferei. Lobul occipital este situat în partea posterioară, deasupra cerebelului. Pentru lobul occipital, manualul nu numește pe această față niciun șanț care să-l despartă de lobii vecini, așa că în desen îl recunoști după poziție și culoare. Pe fața medială apare, în schimb, șanțul parieto-occipital. Girii din jurul șanțului central Șanțurile mai puțin adânci împart lobii în giri, cutele care acoperă toată suprafața din desen. Figura marchează doar doi dintre ei, cei care mărginesc șanțul central. Niciunul nu are culoare proprie, ci o poartă pe cea a lobului din care face parte: Girul precentral, aflat imediat înaintea șanțului central, aparține lobului frontal. Girul postcentral, aflat imediat înapoia șanțului central, aparține lobului parietal. La girul postcentral ajung mai multe căi ale sensibilității. Pentru sensibilitatea termică și dureroasă, tactilă și kinestezică, neuronul III se află în talamus, iar axonul lui se proiectează în aria somestezică I din lobul parietal. În Figura 20, axonii neuronilor III (talamici) urcă tocmai până la girul postcentral. În partea inferioară a aceluiași gir, adică spre fisura laterală, se află aria gustativă, la care impulsurile gustative ajung tot de la talamus. Lobii și analizatorii Funcțiile senzitive ale neocortexului se realizează prin segmentele corticale ale analizatorilor. Pe lângă ariile din girul postcentral, manualul localizează în lobii din figură și ariile analizatorilor auditiv și vizual: Lobul temporal conține cortexul auditiv. Al IV-lea neuron al căii acustice se află în corpul geniculat medial, iar axonul lui se proiectează în girul temporal superior. Lobul occipital primește calea optică, ce se termină în jurul scizurii calcarine, unde se află ariile vizuale primară și secundare. Aria vizuală primară se întinde mai ales pe fața medială a lobilor occipitali, deci în mare parte nu se vede în această figură. Emisferele cerebrale, pe scurt Emisferele cerebrale sunt partea cea mai voluminoasă a sistemului nervos central. Sunt legate între ele prin comisurile creierului, iar în interiorul lor se află ventriculii laterali, I și II. Cele două emisfere nu au același volum: la dreptaci, emisfera stângă este mai dezvoltată, pentru că membrul superior drept are o activitate mai complexă și pentru că centrul vorbirii se află în emisfera stângă.
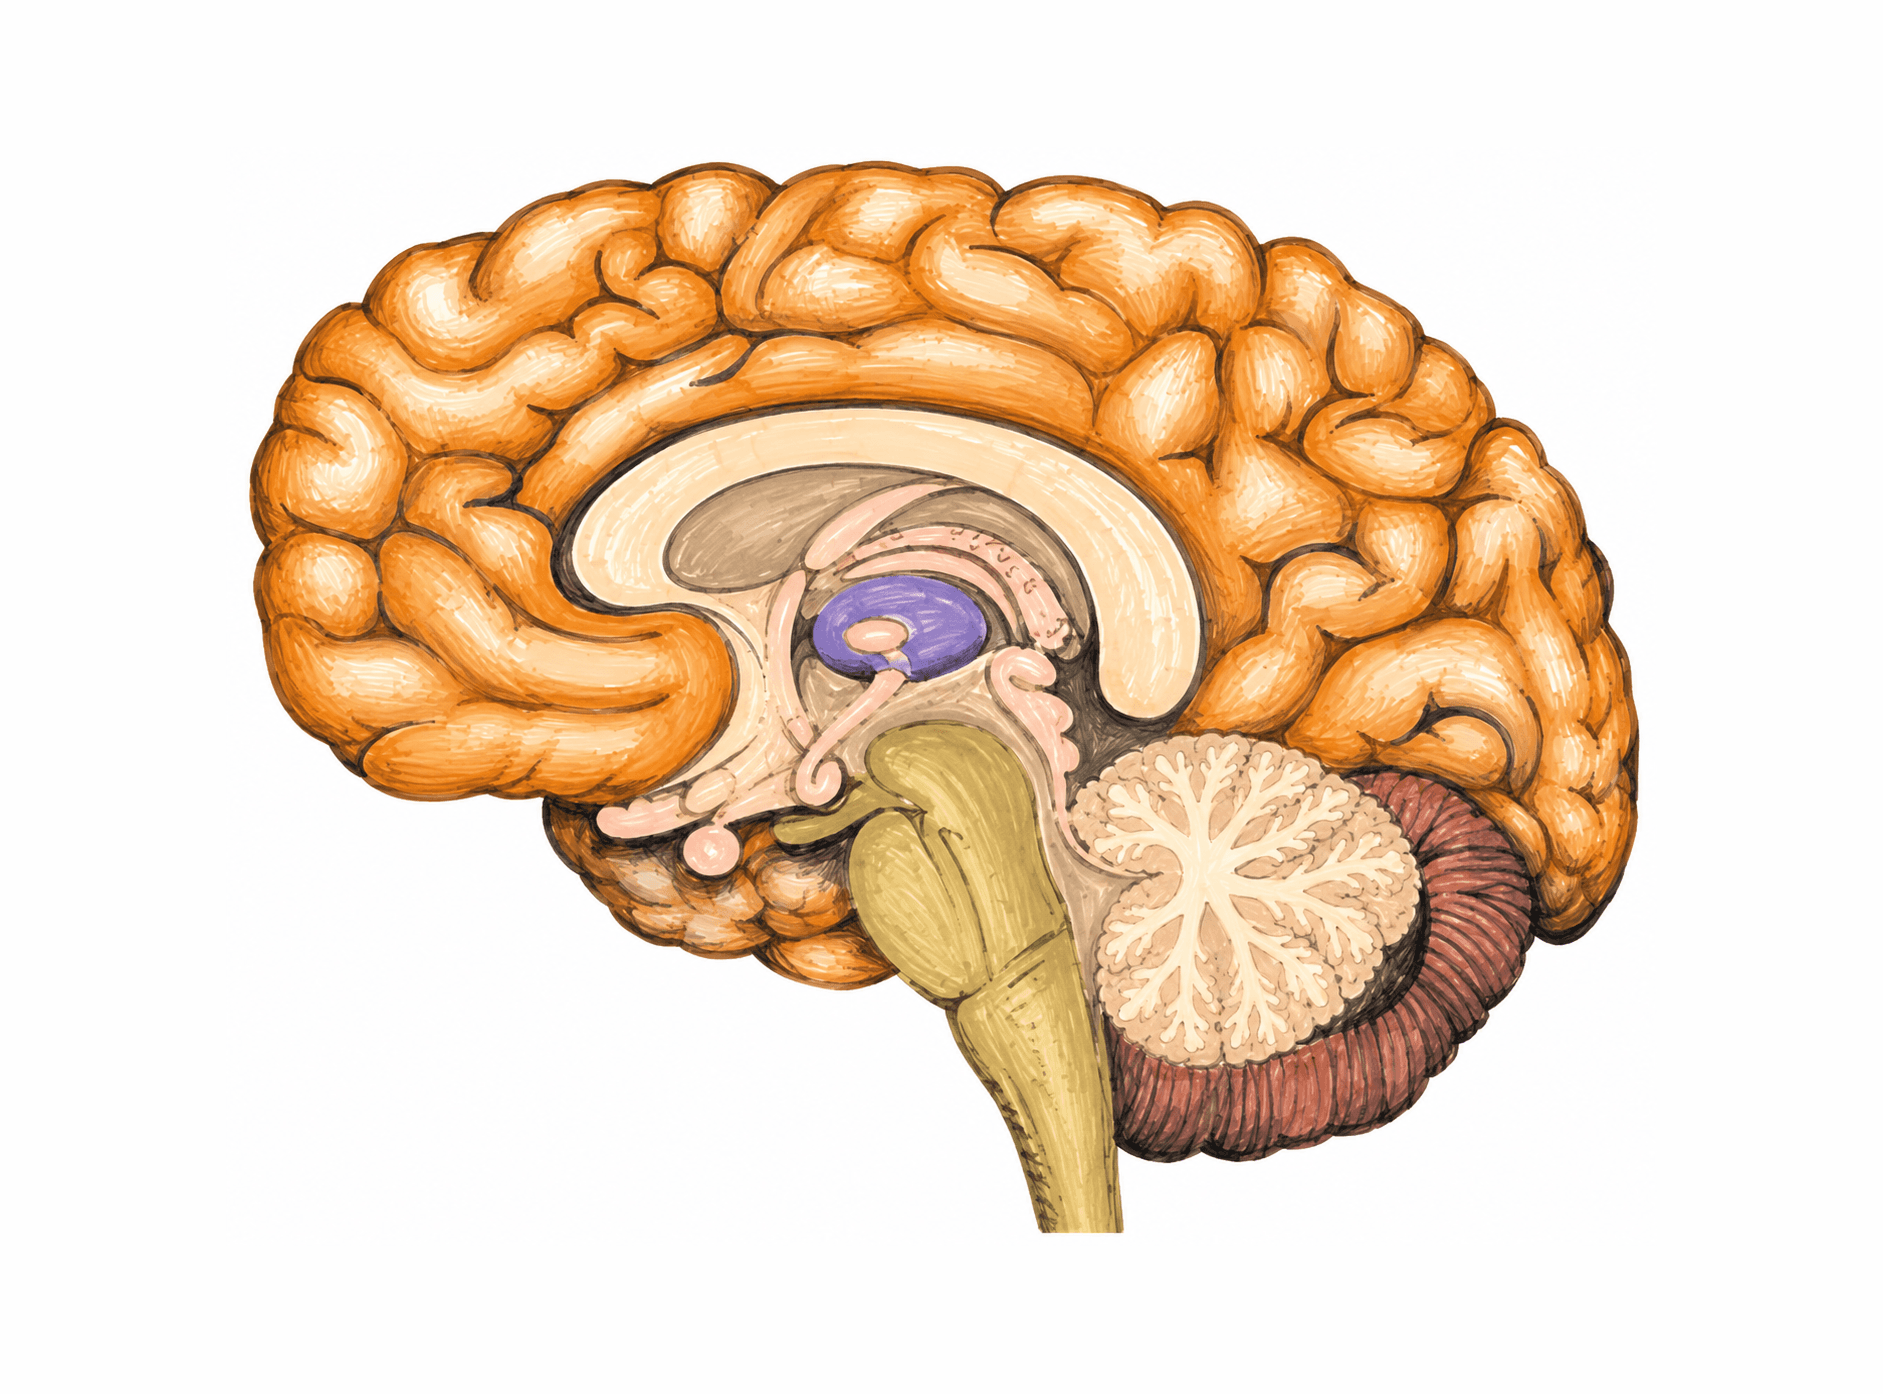
Fig. 35 · Biologie Corint · p. 30
Fața medială a emisferei cerebraleFigura arată fața medială a unei emisfere cerebrale, fața pe care emisfera o întoarce spre cealaltă emisferă. Ca să ajungă la vedere, creierul a fost secționat în planul medio-sagital, planul care îl împarte în două jumătăți simetrice. De aceea în desen apar tăiate corpul calos, care leagă cele două emisfere, și structurile de sub el: diencefalul, trunchiul cerebral și cerebelul. Partea anterioară a emisferei este în stânga, iar partea posterioară în dreapta, deasupra cerebelului. Ce se observă pe fața medială Emisferele cerebrale prezintă trei fețe: laterală, medială și inferioară (bazală). Pentru fața medială, manualul dă două repere: șanțul corpului calos și, în partea posterioară, scizura calcarină, un șanț orizontal. Pe lângă ele, figura mai arată șanțul parieto-occipital și capătul superior al șanțului central Rolando. În rest, fața este acoperită de giri, despărțiți de șanțuri mai puțin adânci. Ei formează suprafața scoarței cerebrale: ca și la cerebel, substanța cenușie a emisferelor este dispusă la suprafață, formând scoarța, și în profunzime, formând nucleii bazali (corpii striați). De aceea corpii striați nu se văd pe această față. Nici șanțul olfactiv și girii orbitali nu apar aici, pentru că țin de fața bazală. Corpul calos și șanțul lui Banda arcuită din mijlocul figurii, cu capătul anterior curbat în jos, este corpul calos. El este format din fibre comisurale, care unesc cele două emisfere. Aceleași fibre formează și fornixul (trigonul cerebral) și comisura albă anterioară. Fibrele comisurale sunt unul dintre cele trei tipuri de fibre ale substanței albe a emisferelor, alături de fibrele de proiecție și de cele de asociație. Deasupra corpului calos, pe toată lungimea arcului, se află șanțul corpului calos, care îl desparte de girii scoarței. Scizura calcarină și șanțul parieto-occipital În partea posterioară a feței, chiar deasupra cerebelului, se află scizura calcarină. Ea este legată de analizatorul vizual: în jurul ei, în lobul occipital, se termină axonii celui de-al III-lea neuron al căii optice. Aria vizuală primară se întinde mai ales pe fața medială a lobilor occipitali, de o parte și de alta a scizurii calcarine, iar în jurul acesteia se află ariile vizuale secundare sau asociative. În ariile vizuale se realizează senzația și percepția vizuală, adică transformarea stimulilor electrici porniți de la celulele fotoreceptoare în senzație de lumină, culoare și formă. Deasupra scizurii calcarine, tot în partea posterioară și în spatele corpului calos, se vede șanțul parieto-occipital. Șanțul central Rolando, reperul comun cu fața laterală Pe fața laterală (Figura 34) se observă două șanțuri mai adânci, fisura laterală a lui Sylvius și șanțul central Rolando, care delimitează cei patru lobi. Lobul frontal este situat înaintea șanțului central. Pe fața medială se vede doar capătul superior al acestui șanț, o scurtă crestătură pe marginea de sus a emisferei. Este singurul șanț din figură care apare și pe fața laterală. Ce mai găsești pe fața medială Structurile de sub corpul calos nu sunt numerotate aici. Le găsești numite în Figura 33, desenată din același unghi: talamusul, epifiza, hipotalamusul și hipofiza, alături de mezencefal, punte și cerebel. Tot pe fața medială a emisferelor, într-o zonă restrânsă, se află paleocortexul (Figura 37), inclus în sistemul limbic. Este alcătuit numai din două straturi celulare și este sediul proceselor psihice afectiv-emoționale și al actelor de comportament instinctiv.
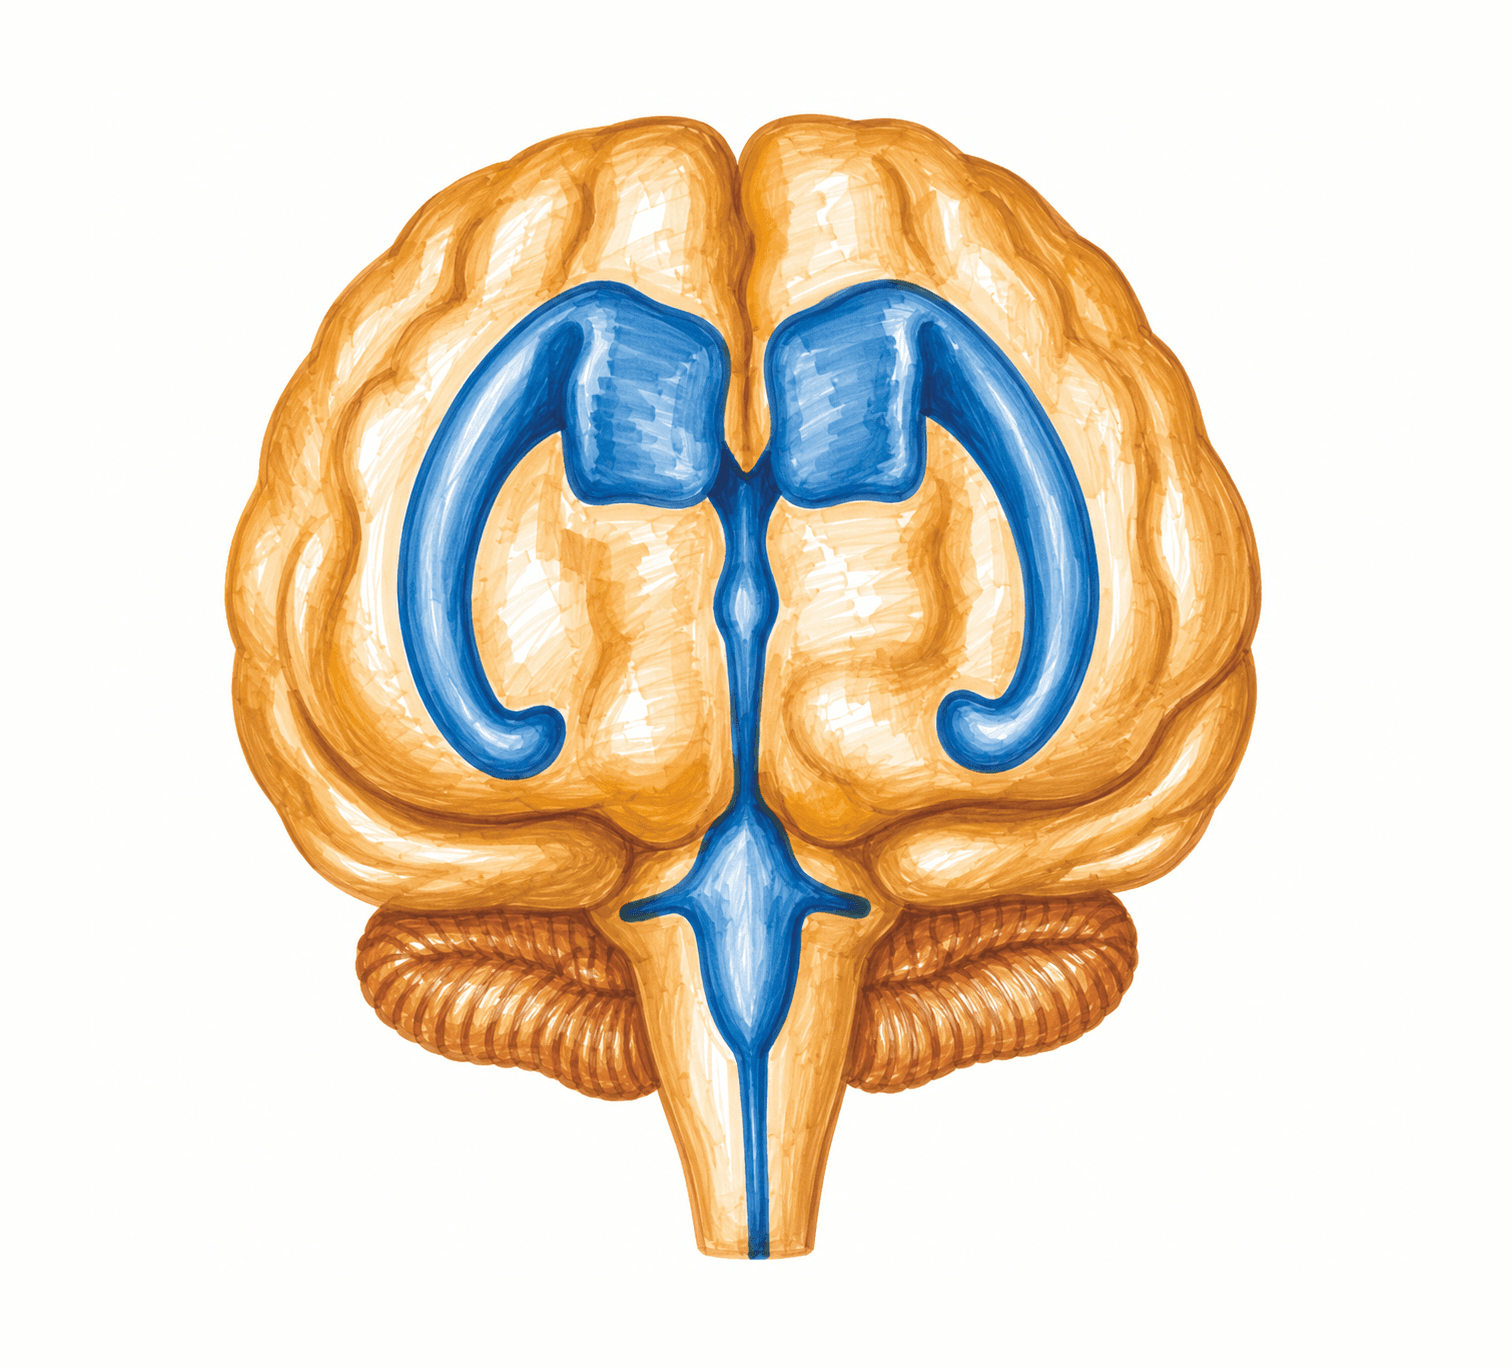
Fig. 36 · Biologie Corint · p. 30
Ventriculii creieruluiFigura arată ventriculii creierului, cavitățile din interiorul encefalului. Creierul este desenat privit din față, ca și cum ar fi transparent, iar cavitățile se văd prin el, colorate în albastru. Așa se observă că ventriculii nu sunt goluri izolate, ci formează un singur sistem de cavități care comunică între ele, de la emisferele cerebrale până în măduva spinării. Cel mai ușor este să citești desenul de sus în jos: pornești de la cele două cavități mari din emisfere, apoi cobori pe linia mediană, prin trunchiul cerebral, până în canalul din mijlocul măduvei. Cei patru ventriculi Numerotarea pornește de sus. Ventriculii laterali sunt ventriculii I și II, așa că cele două cavități de pe linia mediană, așezate mai jos, poartă numerele III și IV. Ventriculii laterali sunt cele mai mari cavități și stau cel mai sus, câte unul în fiecare emisferă cerebrală. Fiecare are, lângă linia mediană, o parte de sus mai lată, din care pleacă un arc lung ce coboară pe lateral. În emisfere, substanța cenușie se află la suprafață, unde formează scoarța cerebrală, și în profunzime, unde formează nucleii bazali (corpii striați), iar substanța albă înconjoară ventriculii laterali. Ventriculul III este o cavitate îngustă și alungită, pe linia mediană, între cei doi ventriculi laterali. În sus comunică cu ventriculii laterali, iar în jos cu ventriculul IV. Ventriculul IV este cavitatea de jos, în formă de romb. Cerebelul se află înapoia bulbului și a punții, iar împreună cu ele delimitează cavitatea ventriculului IV: bulbul și puntea o mărginesc în față, iar cerebelul în spate. Pe desen, cele două emisfere cerebeloase se văd jos, de o parte și de alta a trunchiului cerebral. Căile de legătură Cavitățile sunt legate între ele, și cu măduva spinării, prin orificii și canale înguste, ușor de recunoscut după grosimea lor mult mai mică. De sus în jos, acestea sunt: Orificiul interventricular, pe linia mediană, între părțile de sus ale ventriculilor laterali. Prin el, ventriculii laterali comunică cu ventriculul III. Apeductul mezencefalic (Sylvius), canalul subțire care coboară de la ventriculul III la ventriculul IV. Numele arată că străbate mezencefalul, unul dintre cele trei etaje ale trunchiului cerebral, alături de punte și de bulb. Nu îl confunda cu fisura laterală a lui Sylvius, un șanț adânc de pe fața laterală a emisferei cerebrale. Canalul medular central (ependimar), care pleacă din partea de jos a ventriculului IV și coboară prin mijlocul măduvei spinării. Canalul ependimar și lichidul cefalorahidian Capătul de jos al sistemului se regăsește în secțiunea transversală prin măduvă din Figura 19. Acolo, canalul ependimar se află în centrul comisurii cenușii, bara transversală a „H”-ului format de substanța cenușie. Canalul conține lichid cefalorahidian (LCR), lichid care se află și în spațiul dintre arahnoidă și pia mater, două dintre cele trei membrane ale meningelor spinale (Figura 18). În jurul canalului, pe toată lungimea lui, se găsesc și neuroni ai substanței reticulate.
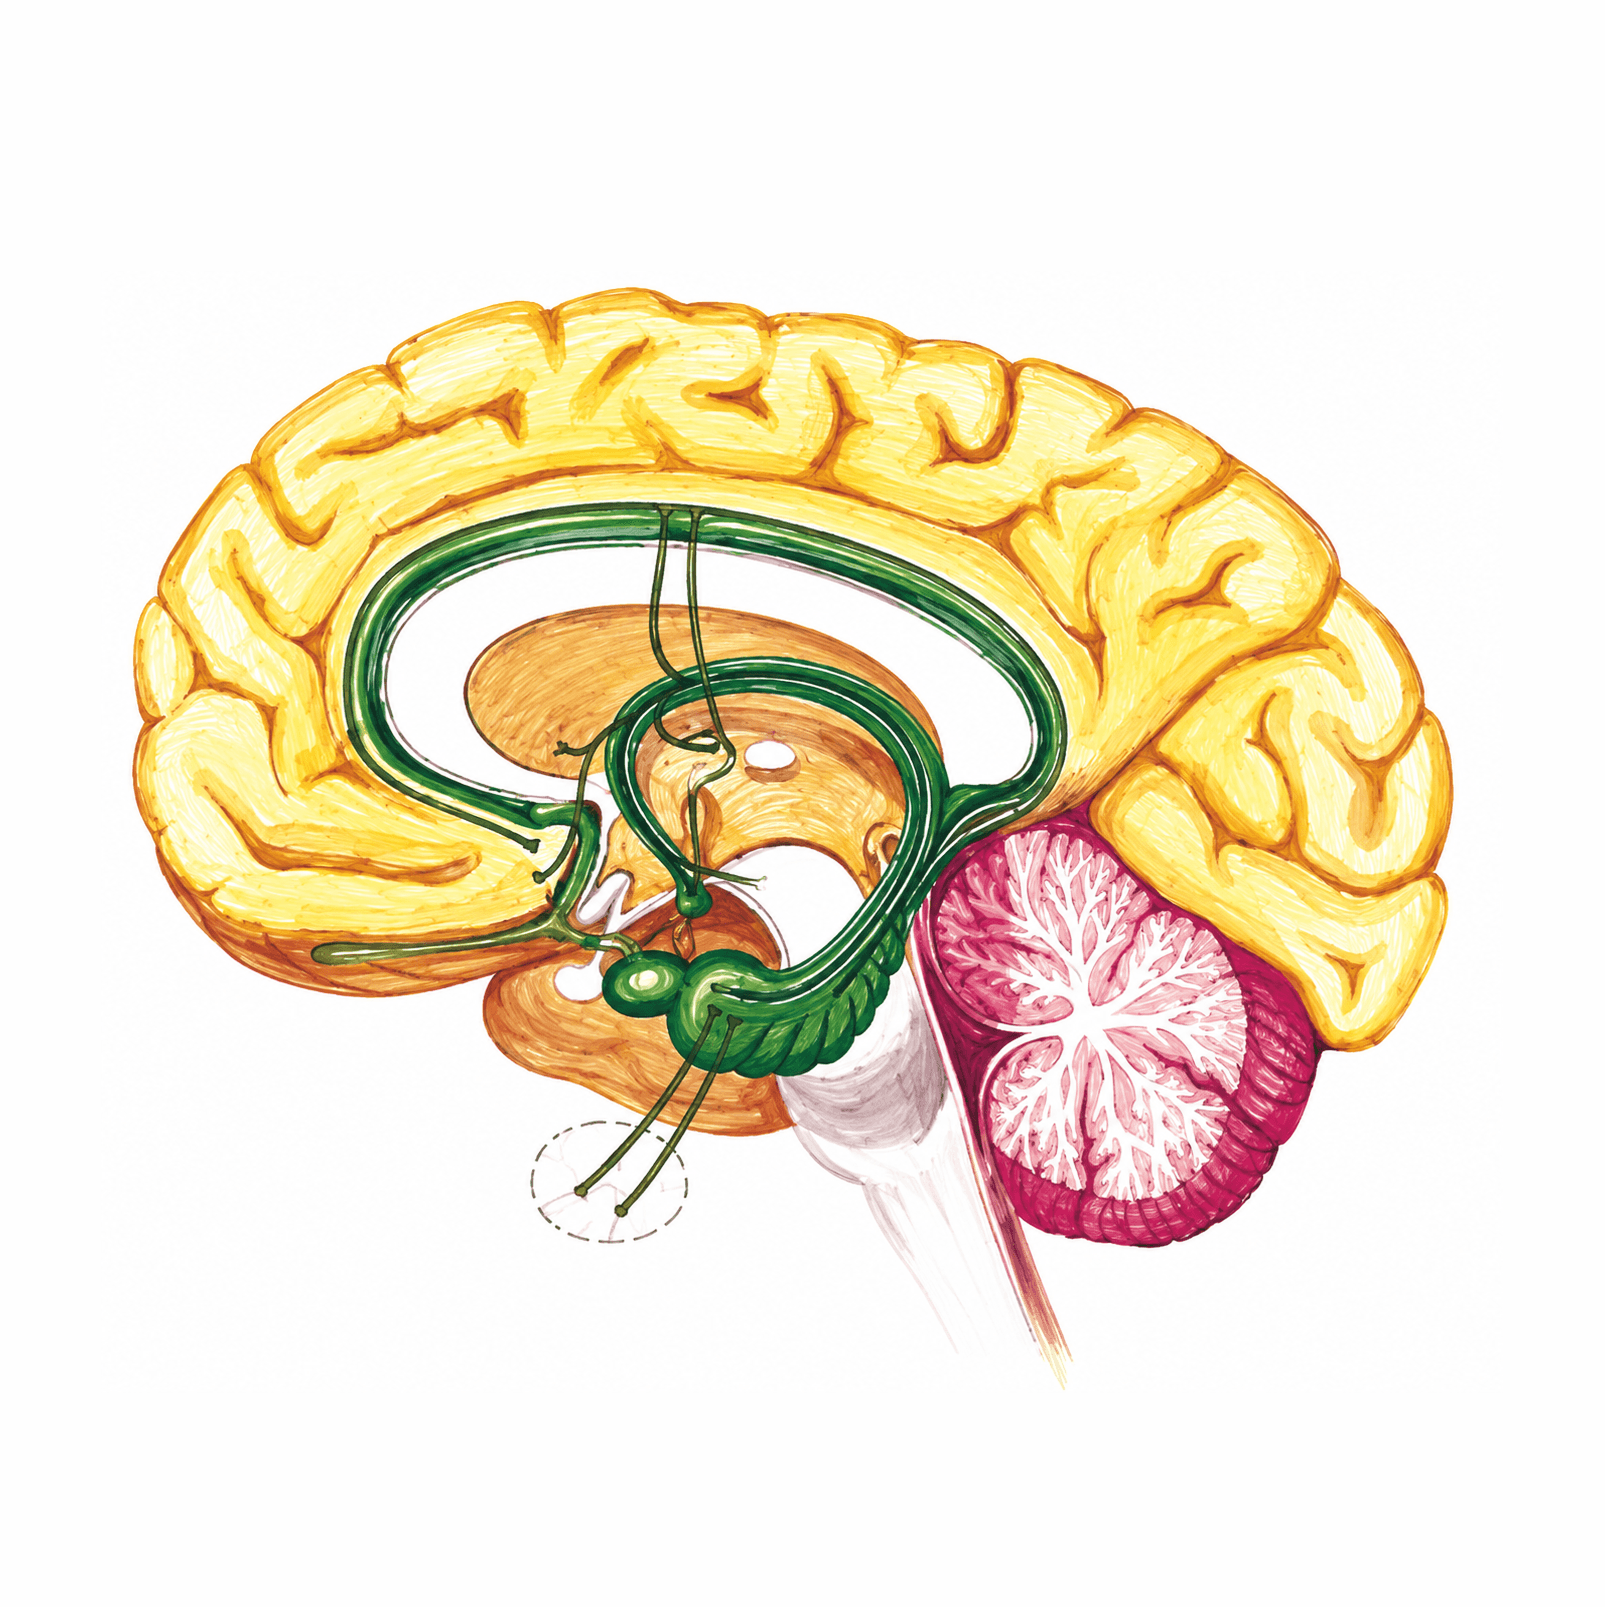
Fig. 37 · Biologie Corint · p. 31
Sistemul limbicFigura arată sistemul limbic pe fața medială a emisferei cerebrale, aceeași față ca în Figura 35. Partea din față a creierului este la stânga, unde se vede bulbul olfactiv, iar cerebelul este în dreapta jos. Peste această față sunt scoase în evidență structurile limbice. Câteva benzi arcuite trec pe deasupra diencefalului și coboară spre baza creierului, calea olfactivă se vede în partea din față, iar hipocampul, în partea de jos a arcului. Paleocortexul și sistemul limbic Scoarța cerebrală, adică substanța cenușie dispusă la suprafața emisferelor, cuprinde paleocortexul și neocortexul. Paleocortexul este inclus în sistemul limbic și ocupă o zonă restrânsă pe fața medială a emisferelor, tocmai pe fața din desen. Este alcătuit numai din două straturi celulare și este sediul proceselor psihice afectiv-emoționale și al actelor de comportament instinctiv. Are conexiuni întinse cu analizatorul olfactiv, hipotalamusul, talamusul și epitalamusul, dar mai puțin cu neocortexul. Desenul arată și ce înseamnă că paleocortexul se află între diencefal și neocortex și formează un arc de cerc în jurul diencefalului: benzile arcuite ocolesc pe sus diencefalul, iar în afara lor se întinde restul scoarței, cu girii ei. Calea olfactivă și hipocampul Cele mai importante componente ale sistemului limbic sunt calea olfactivă, formată din nervii olfactivi, și hipocampul. Calea olfactivă apare la baza creierului, în partea din față, ca o bandă subțire orientată dinainte înapoi: Bulbul olfactiv este capătul ei dinainte, adăpostit de șanțul olfactiv de pe fața bazală a emisferei. Aici se termină nervii olfactivi (perechea I de nervi cranieni), formați din axonii celulelor bipolare din mucoasa olfactivă, după ce străbat lama ciuruită a etmoidului (Figura 45). În bulb, ei fac sinapsă cu neuronii multipolari (celulele mitrale), al doilea neuron al căii olfactive. Tractul olfactiv pleacă înapoi din bulb și este format din axonii celulelor mitrale. În final, se proiectează pe fața medială a lobului temporal, în aria olfactivă (girul hipocampic și nucleul amigdalian). Calea olfactivă nu are legături directe cu talamusul, iar paleocortexul este centrul cortical al analizatorului olfactiv. Hipocampul ocupă partea de jos a arcului, spre baza creierului: o formațiune alungită în care se termină, pe la spate, benzile arcuite de deasupra. Fibrele comisurale: corpul calos și fornixul Substanța albă a emisferelor este formată din fibre de proiecție, comisurale și de asociație. Fibrele comisurale unesc cele două emisfere și formează corpul calos, fornixul (trigonul cerebral) și comisura albă anterioară. Primele două se văd în desen, a treia nu este marcată: Corpul calos este banda cea mai lată, arcuită deasupra diencefalului. Fornixul (trigonul cerebral) este banda mai subțire de sub corpul calos. Pornește în față din dreptul hipotalamusului, trece pe deasupra talamusului și coboară pe la spate până la hipocamp. Diencefalul din mijlocul arcului Sub fornix se află diencefalul (Figura 33), cu două dintre structurile cu care paleocortexul are conexiuni întinse: Nucleul talamic, chiar sub curbura fornixului, aparține talamusului, releul (întreruperea sinaptică) pentru toate sensibilitățile, cu excepția celor olfactive, vizuale și auditive. Hipotalamusul, așezat sub talamus, este centrul superior de integrare, reglare și coordonare a principalelor funcții ale organismului: metabolismul intermediar, secreția endocrină, termoreglarea, digestia prin centrii foamei, setei și sațietății, unele acte comportamentale și ritmul somn-veghe. Cortexul celor două emisfere Legenda mai numește cortexul emisferei cerebrale stângi și cortexul emisferei cerebrale drepte. În desen, cortexul emisferei drepte este indicat pe o formațiune rotunjită de la baza creierului, sub calea olfactivă și în fața hipocampului, iar cel al emisferei stângi pe un contur punctat de sub ea. Amândouă țin de scoarța cerebrală, etajul superior de integrare a activității sistemului nervos, iar emisferele sunt legate între ele prin comisurile creierului. De reținut Paleocortexul, cu două straturi celulare, este sediul proceselor afectiv-emoționale și al comportamentului instinctiv. Neocortexul, cu șase straturi celulare, este sediul proceselor psihice superioare (activitatea nervoasă superioară), care stau la baza memoriei, învățării, gândirii și creației. Câteva arii corticale ale sistemului limbic, alături de amigdală, sunt și centri cu rol în alimentare, strâns corelați cu hipotalamusul, unde se găsesc centrii foamei și ai sațietății.
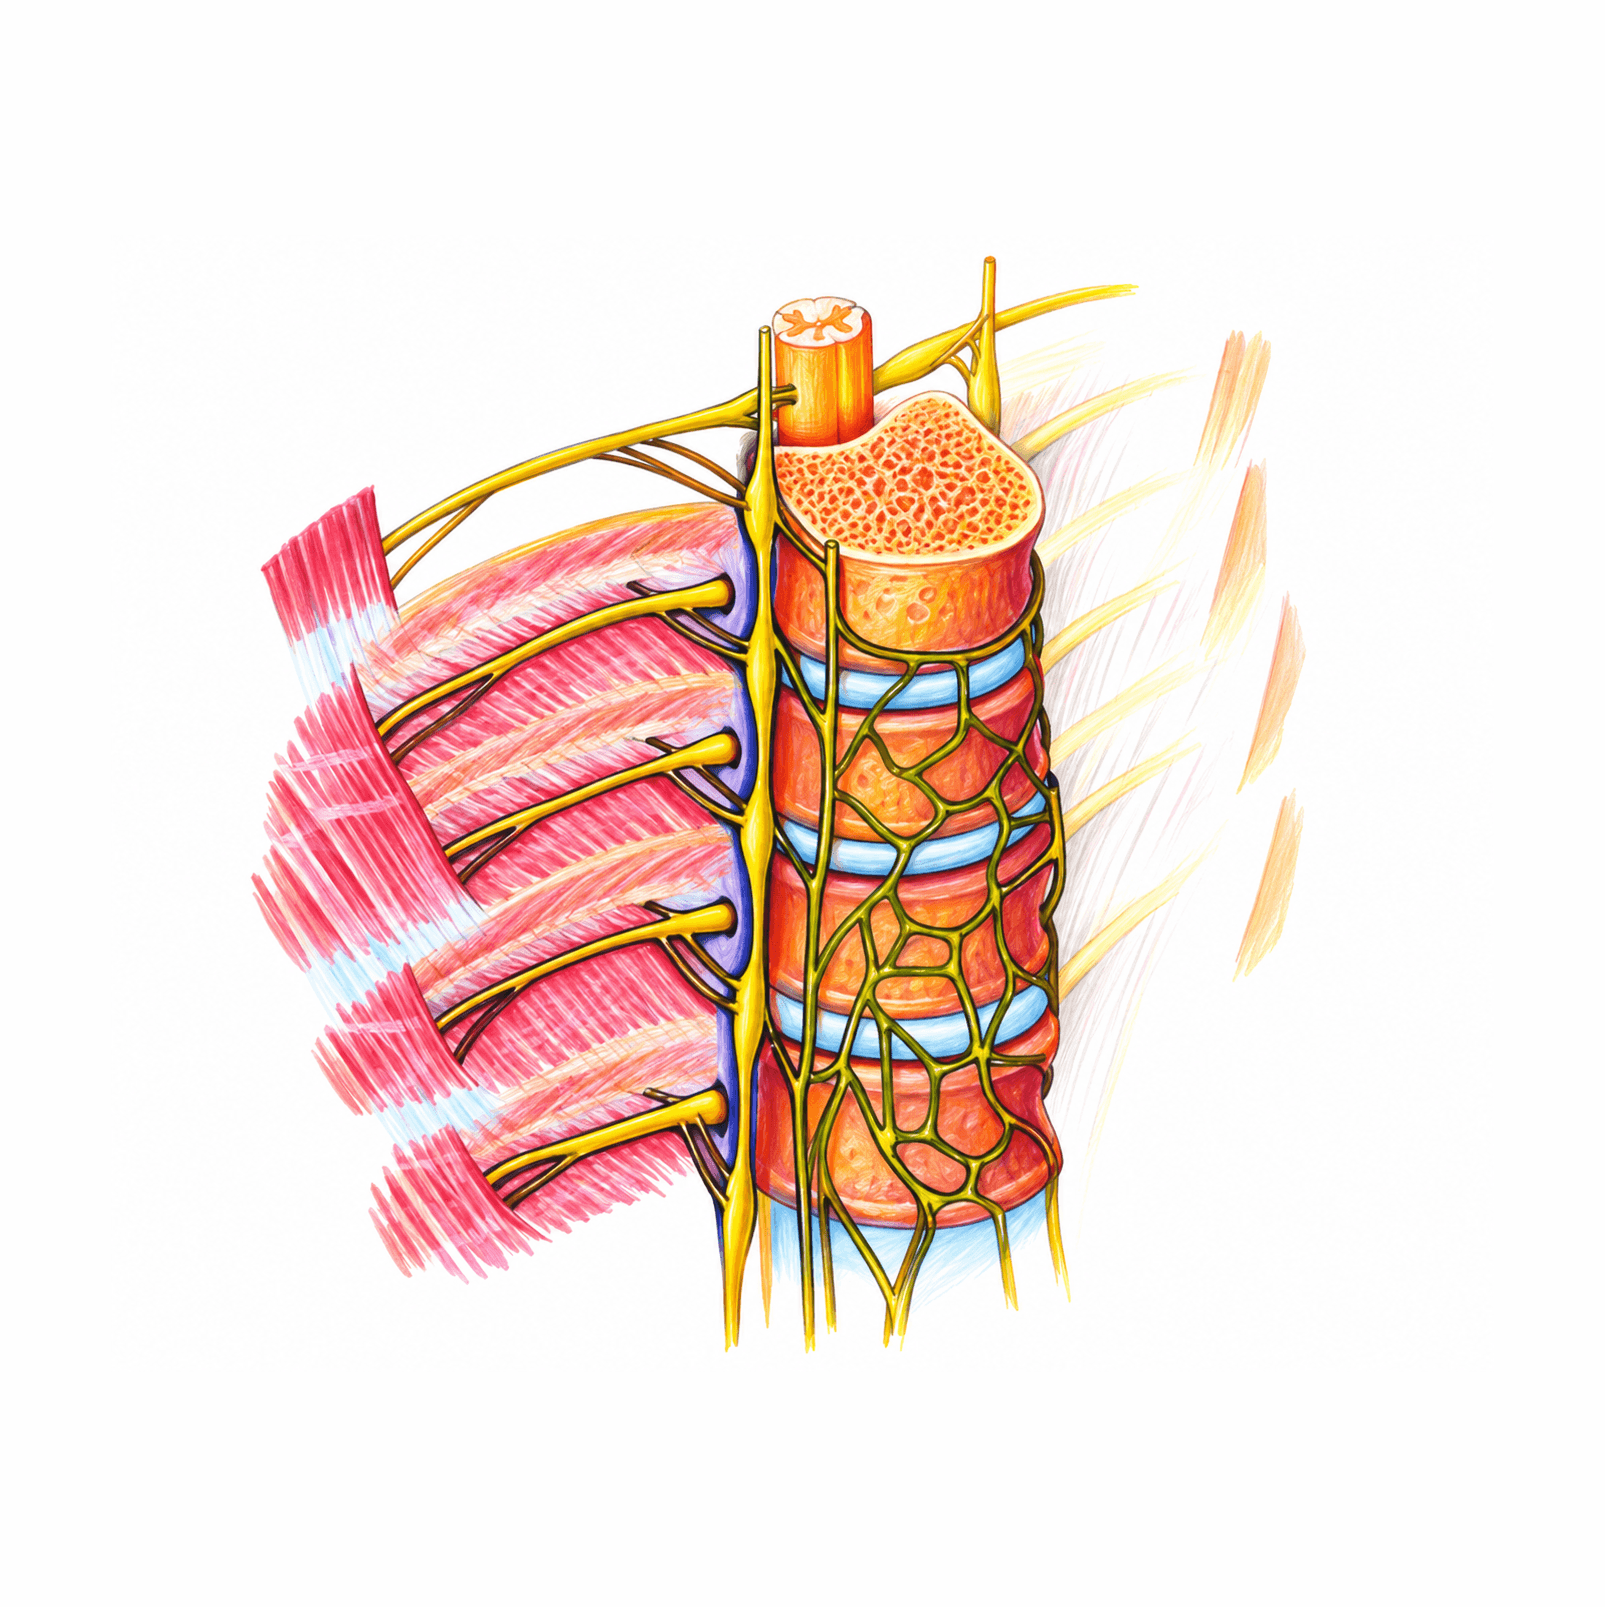
Fig. 38 · Biologie Corint · p. 33
Componentele nervului spinalFigura arată cum este alcătuit un nerv spinal, de la măduvă până la ramurile lui, și cum se leagă el de simpatic. În centrul desenului sunt câteva corpuri vertebrale suprapuse, iar spre stânga pleacă, printre coaste, câte un nerv spinal la fiecare nivel. Corpul vertebral de sus este tăiat, iar lângă el se vede măduva spinării, secționată și ea. Citește desenul de la măduvă spre exterior: cele două rădăcini ies din măduvă și se unesc în trunchiul nervului spinal, care continuă lateral ca nerv. În stânga corpurilor vertebrale coboară un lanț de umflături legate între ele, lanțul ganglionar paravertebral, unit cu fiecare nerv prin ramuri comunicante scurte. Măduva și cele două rădăcini Măduva spinării se află în canalul vertebral. Nervii spinali o conectează cu receptorii și efectorii, somatici și vegetativi, iar fiecare pornește din măduvă prin două rădăcini: Rădăcina anterioară (ventrală) este motorie. Prin ea ies din măduvă axonii neuronilor somatomotori din cornul anterior și axonii neuronilor visceromotori din jumătatea ventrală a cornului lateral. Rădăcina posterioară (dorsală) este senzitivă și are pe traiectul ei ganglionul spinal, desenat imediat la dreapta măduvei. Rădăcinile și ganglionul spinal apar, în secțiune transversală, și în Figura 19. Ce se află în ganglionul spinal Ganglionul spinal este, ca orice ganglion, un grup de corpi neuronali aflat în afara sistemului nervos central. Aici sunt localizați atât neuronii somatosenzitivi, cât și cei viscerosenzitivi. Fiecare are o dendrită lungă, care ajunge la receptori, și un axon care intră în măduvă pe calea rădăcinii posterioare: Neuronii somatosenzitivi au dendrita la receptorii din piele (exteroceptori) sau la receptorii somatici profunzi din aparatul locomotor (proprioceptori). Neuronii viscerosenzitivi au dendrita la receptorii din viscere (visceroreceptori), iar axonii lor ajung în jumătatea dorsală a cornului lateral, zona viscerosenzitivă. În căile sensibilității, protoneuronul (primul neuron) se află chiar în ganglionul spinal. Trunchiul și ramurile nervului Cele două rădăcini se unesc și formează trunchiul nervului spinal. Pentru că reunește o rădăcină motorie și una senzitivă, trunchiul este mixt, cu fibre somatomotorii, visceromotorii, somatosenzitive și viscerosenzitive. El iese din canalul vertebral prin gaura intervertebrală, iar după un scurt traiect nervul spinal se desface în ramurile sale: Ramurile ventrale se anastomozează între ele și formează plexurile cervical, brahial, lombar și sacral. În regiunea toracală, ele se dispun sub forma nervilor intercostali. Ramura dorsală conține, ca și cea ventrală, fibre motorii și senzitive și se distribuie la pielea spatelui și la mușchii jgheaburilor vertebrale. Ramura meningială conține fibre senzitive și vasomotorii pentru meninge. Ramura comunicantă albă și a cincea ramură, comunicanta cenușie, leagă nervul de lanțul ganglionar paravertebral. Dintre ramuri, doar cele comunicante sunt marcate pe figură. Coastele desenate arată însă că segmentul de coloană este toracal, așa că nervii care merg de-a lungul lor corespund nervilor intercostali. Legătura cu simpaticul Simpaticul are căi proprii, reprezentate de lanțurile simpatice paravertebrale (latero-vertebrale), două lanțuri de ganglioni situați de-o parte și de alta a coloanei vertebrale. Desenul îl pune în evidență pe cel din stânga, cu câte un ganglion în dreptul fiecărui nerv spinal, legat de nerv prin ramurile comunicante. Pe această legătură se poate urmări drumul unei fibre simpatice: Neuronul simpatic preganglionar se află în cornul lateral al măduvei toracale sau lombare superioare, unde sunt centrii simpaticului. Axonul lui părăsește măduva pe calea rădăcinii anterioare. Fibra trece prin trunchiul nervului spinal și, prin ramura comunicantă albă, ajunge în ganglionul lanțului. Este fibra preganglionară, mielinică. În ganglionul latero-vertebral are loc sinapsa cu neuronul postganglionar. Ganglionul fiind foarte aproape de măduvă, fibra preganglionară este scurtă. Axonul neuronului din ganglion, fibra postganglionară amielinică, intră prin ramura comunicantă cenușie în nervul spinal. Această fibră este lungă și ajunge la organul efector vegetativ, un mușchi neted sau o glandă. Neuronul preganglionar și ganglionul vegetativ apar, ca verigi ale arcului reflex vegetativ, în Figura 40, iar lanțul ganglionar simpatic, în întregul sistem nervos vegetativ, în Figura 41. Cele 31 de perechi Nervii spinali sunt în număr de 31 de perechi: 8 cervicali (primul iese între osul occipital și prima vertebră cervicală), 12 toracali, 5 lombari, 5 sacrali și unul coccigian.

Fig. 39 · Biologie Corint · p. 34
Neurotransmițătorii sistemului nervos vegetativFigura urmărește calea eferentă a sistemului nervos vegetativ (SNV) și arată ce mediator chimic (neurotransmițător) se eliberează la fiecare sinapsă. Cele cinci trasee orizontale pornesc, în stânga, din encefal sau din măduva spinării, fac sinapsă într-un ganglion vegetativ, desenat de regulă ca un cerc verde, și se termină, în dreapta, la efectorii viscerali (mușchi netezi sau glande). Cercul verde de pe al treilea traseu nu este însă un ganglion obișnuit, ci glanda suprarenală. Efectorii sunt verzi acolo unde ajunge acetilcolina (ACh) și albaștri acolo unde ajunge noradrenalina (NA). Desenul nu scrie care trasee sunt simpatice și care parasimpatice, dar le poți recunoaște după regulile de mai jos. Cei doi neuroni ai căii eferente Arcul reflex vegetativ (Figura 40) se deosebește de cel somatic prin calea eferentă, care cuprinde doi neuroni: Neuronul preganglionar are corpul în substanța cenușie a măduvei sau a creierului. În desen, corpul lui este micul cerc cu un punct în centru de la capătul stâng al fiecărui traseu. Axonul lui, prevăzut cu teacă de mielină, formează fibra preganglionară. Neuronul postganglionar are corpul în ganglion (un grup de corpi neuronali din afara sistemului nervos central), unde primește sinapsa primului neuron. Axonul lui, fără teacă de mielină, formează fibra postganglionară, care ajunge la efector. Notațiile ACh și NA stau lângă terminațiile presinaptice din ganglioni și de la efectori și arată mediatorul pe care acestea îl eliberează în fanta sinaptică. Ce mediator se eliberează și unde În ganglion, la ambele sisteme, fibra preganglionară eliberează același mediator, acetilcolina. De aceea toate cercurile verzi poartă notația ACh. La efector, fibra postganglionară simpatică eliberează noradrenalina, iar cea parasimpatică tot acetilcolină. Sinapsele care folosesc noradrenalină (norepinefrină) și/sau adrenalină (epinefrină) se numesc adrenergice, iar cele care folosesc acetilcolină se numesc colinergice. În desen, adrenergice sunt doar terminațiile de la cei doi efectori albaștri. Toate celelalte sinapse sunt colinergice. Textul de lângă figură mai amintește două cazuri, care nu sunt desenate. Un număr foarte mic de fibre postganglionare simpatice eliberează acetilcolină. Alte fibre postganglionare nu eliberează nici acetilcolină, nici noradrenalină, ci alte substanțe, precum monoxidul de azot, și formează sinapse non-colinergice, nonadrenergice. Cele cinci trasee, de sus în jos Ca să recunoști sistemul căruia îi aparține fiecare traseu, urmărește cele trei criterii din tabelul de comparație al manualului: de unde pornește fibra preganglionară, unde stă ganglionul și ce mediator ajunge la efector. Centrii simpatici se află în coarnele laterale ale măduvei toracale și lombare superioare, adică în partea de mijloc a măduvei din desen, iar centrii parasimpatici în trunchiul cerebral și în măduva sacrală. Traseul din encefal aparține parasimpaticului cranian, care folosește calea unor nervi cranieni (III, VII, IX, X). Sinapsa se face într-un ganglion terminal, așezat lângă efector (juxtavisceral), așa că fibra preganglionară este lungă, iar cea postganglionară scurtă. La efector ajunge ACh. Traseul cu ganglion paravertebral este simpatic. Ganglionul aparține lanțurilor paravertebrale (latero-vertebrale), două lanțuri de ganglioni situați de o parte și de alta a coloanei vertebrale, foarte aproape de măduvă. De aceea fibra preganglionară este scurtă, iar cea postganglionară lungă. La efector ajunge NA. Traseul spre glanda suprarenală este tot simpatic, dar fibra preganglionară ajunge direct la glandă, fără un al doilea neuron. Traseul cu „ganglion” este simpatic, pentru că la efector ajunge NA. Ganglionul lui nu mai stă lângă măduvă, ci la jumătatea drumului, așa că se potrivește cu lanțurile prevertebrale, pe care manualul le amintește doar în tabelul de comparație. Traseul din partea de jos a măduvei aparține parasimpaticului sacral, care folosește calea nervilor pelvici. Ganglionul este desenat chiar în dreptunghiul efectorului, pentru că este intramural, adică aflat în peretele organului, cum sunt plexurile din pereții tubului digestiv. Fibra preganglionară este cea mai lungă din desen, cea postganglionară este foarte scurtă, iar ambele sinapse folosesc ACh. Cazul aparte al glandei suprarenale Pe al treilea traseu, fibra preganglionară simpatică se termină direct în glanda suprarenală, unde eliberează acetilcolină. Al doilea neuron lipsește pentru că, anatomic și funcțional, medulara glandei suprarenale (Figura 59) este un ganglion simpatic ai cărui neuroni nu au prelungiri. În locul unei fibre postganglionare, medulara eliberează hormonii ei, adrenalina, în proporție de 80%, și noradrenalina, în proporție de 20%, a căror acțiune este identică cu stimularea sistemului nervos simpatic. Componenta simpatică activează organismul pentru luptă și apărare mai ales pe aceste două căi: prin noradrenalina eliberată de fibrele postganglionare și prin adrenalina din medulosuprarenală. Inervația dublă Majoritatea viscerelor au inervație dublă, simpatică și parasimpatică, iar cele două sisteme pot acționa antagonist, complementar sau cooperant (Figura 41). Medulosuprarenalele, glandele sudoripare, mușchii erectori ai firelor de păr și majoritatea vaselor sangvine nu au inervație parasimpatică. Activitatea lor se reglează prin creșterea sau scăderea ratei de stimulare simpatică.

Fig. 40 · Biologie Corint · p. 34
Comparație între arcul reflex somatic și cel vegetativFigura pune alături cele două tipuri de arc reflex, ca să poată fi comparate. În stânga este arcul reflex somatic, care pornește din piele și se încheie la un mușchi scheletic. În dreapta este arcul reflex vegetativ, care pornește din peretele unui viscer și se întoarce la același viscer. În ambele desene, măduva spinării apare ca un segment secționat transversal: fibrele care vin de la receptori intră în ea prin rădăcina posterioară, iar cele care duc comanda ies prin rădăcina anterioară. Fiecare neuron este desenat ca o fibră colorată: verde pentru neuronii senzitivi, albastru pentru neuronul motor somatic, negru pentru neuronul preganglionar și roșu pentru cel postganglionar. Tot cu roșu, dar în interiorul substanței cenușii, este desenat neuronul de asociație al fiecărui arc. Săgețile arată sensul impulsului nervos, spre măduvă pe fibrele senzitive și dinspre măduvă spre periferie pe cele motorii. Ce au în comun Arcul reflex vegetativ are aceleași componente cu cel somatic: receptorul, calea aferentă, centrii nervoși, calea eferentă și efectorul, numite pe rând în Figura 16. Și calea aferentă este asemănătoare. În ambele arcuri, neuronul senzitiv își are corpul în ganglionul spinal, de pe traiectul rădăcinii posterioare, unde sunt localizați atât neuronii somatosenzitivi, cât și cei viscerosenzitivi. Dendrita lui, lungă, ajunge la receptori, iar axonul pătrunde în măduvă pe calea rădăcinii posterioare. Diferă locul receptorilor: În arcul somatic, dendrita se ramifică într-un fragment de piele, recunoscut după firele de păr. Neuronii somatosenzitivi ajung la receptorii din piele (exteroceptori) sau din aparatul locomotor (proprioceptori). În arcul vegetativ, dendrita neuronului viscero-aferent se ramifică în peretele viscerului, la receptorii din organe sau vase (baroreceptori, presoreceptori, chemoreceptori). Acest neuron își are originea în ganglionii spinali, ca în desen, sau în ganglionii extranevraxiali atașați nervilor cranieni. Centrul reflex și neuronii de asociație În substanța cenușie, fiecare arc are câte un neuron de asociație, un neuron multipolar localizat în întregime în sistemul nervos central, care face legătura între neuronul senzitiv și cel motor. În arcul vegetativ, el se află în cornul lateral. Axonul neuronului viscerosenzitiv ajunge în jumătatea posterioară (dorsală) a acestui corn, numită zona viscerosenzitivă, iar neuronul de asociație îl leagă de dendritele neuronului visceromotor din jumătatea anterioară (ventrală) a aceluiași corn. Coarnele anterioare, laterale și posterioare pot fi urmărite pe secțiunea transversală a măduvei din Figura 19. Ce le deosebește: calea eferentă Diferența dintre cele două arcuri constă în modul în care este alcătuită calea eferentă, care la reflexul vegetativ se deosebește fundamental prin existența unor ganglioni vegetativi. În arcul somatic, comanda pleacă pe axonul unui singur neuron motor. Neuronii somatomotori au corpul în cornul anterior al măduvei, iar axonii lor formează rădăcina anterioară a nervilor spinali. În desen, fibra albastră merge fără întrerupere până la mușchiul scheletic. În arcul vegetativ, calea eferentă cuprinde doi neuroni. Primul, neuronul preganglionar, are corpul în substanța cenușie medulară sau cerebrală. În măduvă, el este neuronul visceromotor din jumătatea anterioară a cornului lateral, ca în desen. Axonul lui, prevăzut cu teacă de mielină, iese prin rădăcina anterioară și face sinapsă cu al doilea neuron într-un ganglion vegetativ. Axonul neuronului postganglionar nu are teacă de mielină și formează fibra postganglionară, care ajunge la organul efector vegetativ, mușchi neted sau glandă. În desen, fibra roșie se ramifică în peretele aceluiași viscer din care a pornit reflexul. Pe o porțiune, fibrele fiecărui arc merg împreună prin trunchiul nervului spinal. Acesta este mixt: are fibre somatosenzitive și somatomotorii, ca în arcul din stânga, dar și viscerosenzitive și visceromotorii, ca în cel din dreapta. Ganglionii vegetativi sunt latero-vertebrali în cazul sistemului simpatic și juxtaviscerali sau intramurali în cazul celui parasimpatic. Ganglionul desenat nu stă lângă viscer și nici în peretele lui, ci alături de măduvă, pe o formațiune verticală paralelă cu ea. După această regulă, este un ganglion latero-vertebral, deci arcul vegetativ din figură este unul simpatic. Mediatori și plexuri vegetative La sinapsa din ganglion se eliberează același mediator chimic la ambele sisteme, acetilcolina. La capătul periferic al fibrei postganglionare, acolo unde aceasta ia contact cu organul efector, se eliberează noradrenalina în cazul simpaticului și acetilcolina în cazul parasimpaticului (Figura 39). La nivelul diferitelor viscere, sistemul nervos vegetativ formează plexuri vegetative mixte, simpatico-parasimpatice.

Fig. 41 · Biologie Corint · p. 36
Sistemul nervos vegetativ: originile și organele-țintăFigura strânge într-un singur desen întregul sistem nervos vegetativ. În stânga este nevraxul: trunchiul cerebral sus, apoi măduva spinării, cu segmentele notate T1-T12, L1, L2 și S2-S4. În dreapta sunt înșirate organele, de la ochi până la organele de reproducere. Între ele merg fibrele vegetative, pe care le citești după două convenții ale desenului: culoarea arată componenta: albastru pentru parasimpatic, roșu pentru simpatic. La fel sunt colorate și etajele nevraxului din care pleacă fibrele. linia continuă este fibra preganglionară, care se oprește într-un ganglion, iar linia întreruptă este fibra postganglionară, care pleacă din ganglion spre organ. Ganglionii apar ca mici cercuri galbene. Componenta parasimpatică Centrii ei sunt situați în nucleii parasimpatici din trunchiul cerebral și în măduva sacrală S2-S4, unde se descrie nucleul parasimpatic pelvian. Parasimpaticul cranian folosește calea nervilor cranieni III, VII, IX și X: nervul III pleacă din mezencefal, cu fibre din nucleul accesor, spre ochi (mușchiul sfincter al irisului și fibrele circulare ale mușchiului ciliar), nervul VII pleacă din punte, cu fibre din nucleul lacrimal și nucleul salivator superior, spre glanda lacrimală și glandele submandibulare, nervul IX duce fibre din nucleul salivator inferior din bulb spre glanda parotidă, nervul X (vag), cu fibre din nucleul dorsal al nervului vag, se distribuie organelor din torace și abdomen, de la plămâni și inimă până la intestine. Parasimpaticul sacral folosește calea nervilor pelvieni, care pleacă din segmentele S2-S4 spre porțiunea finală a intestinului gros, vezica urinară și organele de reproducere. Observă că liniile albastre continue sunt lungi și se opresc abia lângă organ: fibra preganglionară este lungă, iar cea postganglionară este scurtă. Sinapsa se face în ganglioni juxtaviscerali, aproape de viscer (cercurile galbene de lângă organele capului), sau intramurali, chiar în peretele organului (neuronii albaștri desenați pe plămâni, pe stomac sau pe intestine). Componenta simpatică Centrii ei se află în coarnele laterale ale măduvei toracale și lombare superioare, colorate cu roșu de la T1 la L2. Simpaticul are căile lui proprii, lanțurile simpatice paravertebrale (latero-vertebrale): două lanțuri de ganglioni, de-o parte și de alta a coloanei vertebrale, dintre care desenul arată unul, ca un șirag de ganglioni roșii. Aici situația se inversează. Ganglionii sunt foarte aproape de măduvă, așa că fibrele preganglionare (liniile roșii continue dintre măduvă și lanț) sunt scurte, iar cele postganglionare (liniile întrerupte care pleacă din lanț spre organele capului, plămâni și inimă) sunt lungi. Nu toate fibrele se opresc în lanț. Marele nerv splanhnic și micul nerv splanhnic trec mai departe tot cu linie continuă și ajung la ganglionii încercuiți cu galben din mijlocul desenului. Aceștia nu aparțin lanțului paravertebral, deci corespund ganglionilor prevertebrali din tabelul manualului. Din ei pleacă fibre postganglionare spre organele abdominale și pelviene, iar o ramură a marelui nerv splanhnic ajunge direct, cu linie continuă, la glanda suprarenală. Pe scurt | Caracteristica | SNV simpatic | SNV parasimpatic | | --- | --- | --- | | Originea fibrelor preganglionare | Zonele toracică și lombară ale măduvei spinării | Trunchi cerebral și zona sacrală a măduvei spinării | | Localizarea ganglionilor | Lanțurile para- și prevertebrale | Ganglioni terminali în interiorul (intramurali) sau în apropierea efectorilor (juxtaviscerali) | | Distribuția fibrelor postganglionare | În întregul organism | Limitată, în principal, la cap și viscere | Cum lucrează împreună asupra organelor Majoritatea viscerelor au inervație dublă, simpatică și parasimpatică, iar cele două sisteme pot acționa: antagonist, ca la ochi: simpaticul dilată pupila (midriază), parasimpaticul produce constricția ei (mioză). La fel se opun la inimă, plămâni, stomac, intestinul subțire și intestinul gros, la pancreas și la glanda lacrimală, complementar, ca la glandele salivare (glandele submandibulare și glanda parotidă): simpaticul determină secreție salivară vâscoasă, parasimpaticul secreție salivară apoasă, cooperant, la nivelul organelor de reproducere și în micțiune, la vezica urinară. La unele organe acționează practic doar simpaticul. Stimularea parasimpatică nu are efect asupra ficatului și a splinei, iar medulosuprarenala, din glanda suprarenală, nu are deloc inervație parasimpatică, la fel ca glandele sudoripare, mușchii erectori ai firelor de păr și majoritatea vaselor sangvine. Acolo reglarea se face prin creșterea sau scăderea ratei de stimulare simpatică. Tot simpaticul reduce, la nivelul rinichiului, debitul urinar și secreția de renină. De reținut Componenta simpatică activează organismul pentru luptă și apărare, mai ales prin noradrenalina eliberată din fibrele postganglionare și prin adrenalina din medulosuprarenală. Componenta parasimpatică produce, cel mai adesea, efecte antagoniste, prin acetilcolina eliberată din fibrele postganglionare. Acțiunile celor două trebuie echilibrate pentru menținerea homeostaziei. Mediatorul de la fiecare sinapsă se vede în Figura 39, iar legătura lanțului simpatic cu nervii spinali în Figura 38.
- 2AnalizatoriiPaginile 38 - 53
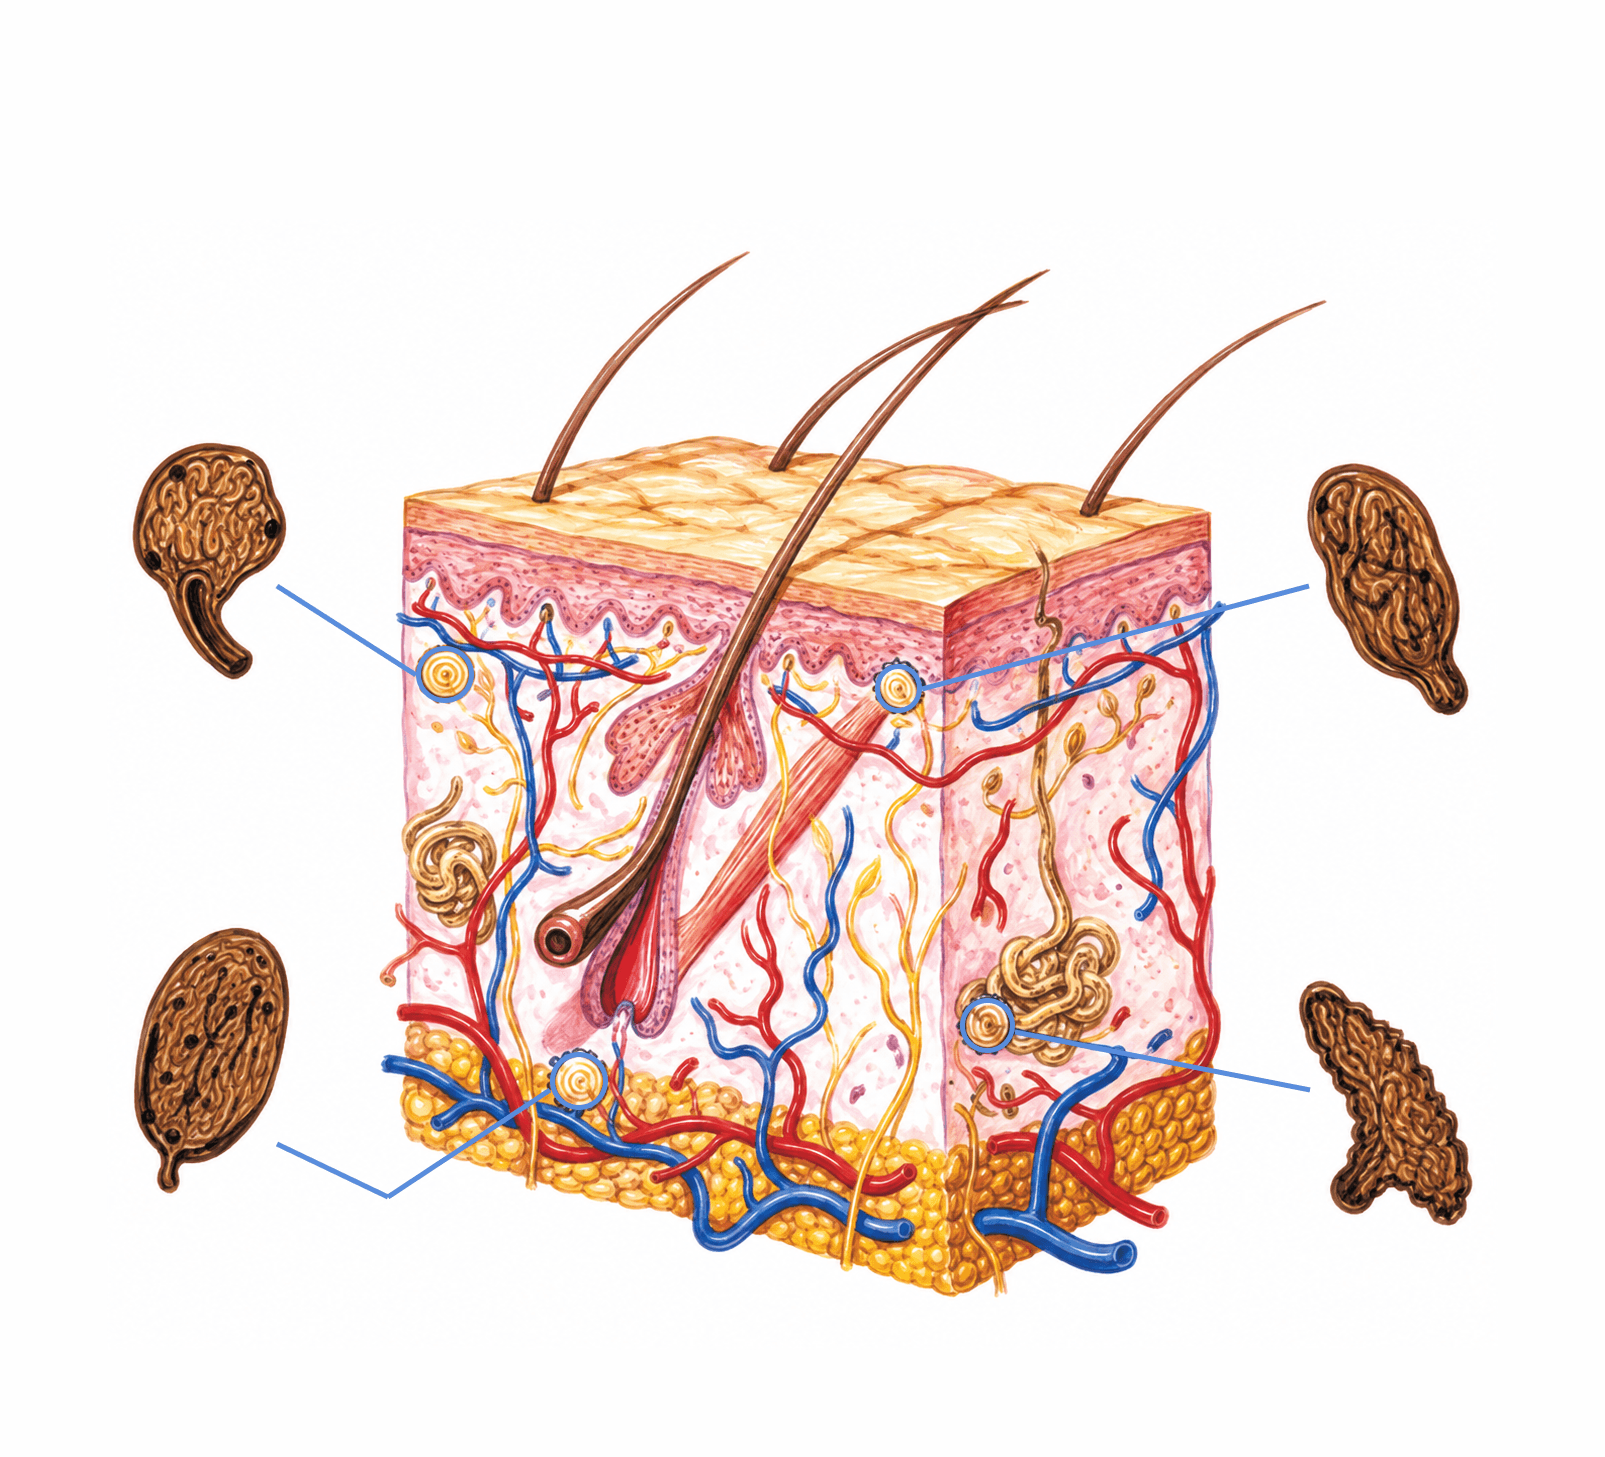
Fig. 42 · Biologie Corint · p. 38
Pielea și receptorii cutanațiFigura prezintă un bloc de piele tăiat în secțiune, cu cele trei straturi suprapuse, cu anexele cutanate și cu locurile în care stau receptorii. În jurul blocului sunt desenați, mult măriți, patru corpusculi. Fiecare este legat printr-o linie de un mic cerc din interiorul pielii, care arată unde se află de fapt. Ca să reții poziția unui corpuscul, urmărește linia până la cerc, nu locul desenului mărit. Pielea, învelișul protector și sensibil al organismului, este un imens câmp receptor. Numeroasele și variatele terminații ale analizatorului cutanat informează centrii nervoși superiori asupra proprietăților și fenomenelor cu care organismul vine în contact. Cele trei straturi Epidermul, stratul subțire de la suprafață, aflat în contact direct cu mediul extern, este un epiteliu pluristratificat pavimentos keratinizat. În profunzime are stratul germinativ, iar la suprafață stratul cornos. Vasele nu pătrund în el (în desen se opresc chiar dedesubt), așa că se hrănește prin osmoză din lichidul intercelular. Conține în schimb terminații nervoase libere. Dermul, stratul gros din mijloc, este o pătură conjunctivă densă, cu vase de sânge și limfatice, terminații nervoase și anexe cutanate. Spre epiderm se află dermul papilar, cu papilele dermice, niște ridicături tronconice care fac ondulată granița dintre cele două straturi. Pe degete, papilele formează crestele papilare, a căror întipărire dă amprentele. Spre hipoderm se află dermul reticular, cu fibre de colagen și fibre elastice grupate în fascicule groase. Hipodermul, numit și țesut subcutanat, este stratul cel mai profund. Este alcătuit din țesut conjunctiv lax, cu un număr variabil de celule adipoase, care formează țesutul adipos de la baza blocului. Aici se află bulbii firului de păr, glomerulii glandelor sudoripare și corpusculii Vater-Pacini. Anexele cutanate Printre elementele dermului, manualul enumeră anexele cutanate: firele de păr și canalele glandelor exocrine. Firele de păr ies la suprafața epidermului, iar unul dintre ele este desenat pe toată lungimea, coborând oblic prin epiderm și derm până la bulb. Lipite de el se văd glandele sebacee, pe care manualul le numește în legendă, fără să le descrie rolul. Mai în profunzime se află ghemul unei glande sudoripare, din care urcă spre suprafață un canal subțire. Receptorii cutanați În piele se găsesc receptori tactili, termici, dureroși, de presiune și pentru vibrații. După alcătuire, ei sunt de două feluri: Terminațiile nervoase libere sunt arborizații dendritice ale neuronilor senzitivi din ganglionii spinali, răspândite printre celulele epidermului. În figură, una dintre ele apare sub epiderm, lângă firul de păr. Terminațiile încapsulate sunt corpusculii. Corpusculii Meissner, Krause și Ruffini stau în derm, iar corpusculii Vater-Pacini, cei mai mari, în hipoderm. Varietatea lor mai mică, corpusculii Golgi-Mazzoni din hipodermul pulpei degetelor, nu este desenată. Ce recepționează fiecare Atingerea, presiunea și vibrațiile. Receptorii tactili sunt mecanoreceptori, stimulați de deformări mecanice, și sunt mai numeroși în tegumentele fără păr. Atingerea o recepționează cei din partea superioară a dermului: corpusculii Meissner și discurile tactile Merkel (fibre nervoase terminate ca un coșuleț în jurul unor celule epiteliale, nedesenate aici). Presiunea o recepționează cei situați mai profund, corpusculii Ruffini. Corpusculii Pacini se adaptează foarte rapid și recepționează vibrațiile. Și terminațiile nervoase libere pot detecta atingerea și presiunea. Temperatura. Receptorii termici sunt terminații nervoase libere, cu diametrul mic și nemielinizate. Receptorii pentru rece trimit impulsuri când temperatura tegumentului scade, iar cei pentru cald, când ea crește. Primii sunt mai numeroși. Sunt considerați receptori pentru cald și corpusculii Ruffini, sensibili la temperaturi de peste 25°C, iar pentru rece, corpusculii Krause, mai sensibili sub 20°C. Durerea. Receptorii pentru durere (algoreceptorii) sunt, în principal, terminațiile nervoase libere. Îi stimulează factori mecanici, termici și chimici, se adaptează puțin sau deloc, iar un stimul care persistă poate face senzația tot mai intensă. Orice receptor cutanat stimulat excesiv poate transmite impulsuri interpretate ca durere. Îi stimulează și temperaturile extreme: peste 50°C căldura este percepută ca arsură, iar sub 10°C frigul devine dureros. Mai departe: căile sensibilității Receptorii pielii sunt segmentul periferic pentru cel puțin trei analizatori: tactil, termic și dureros. Calea sensibilității termice și dureroase pornește de la terminațiile nervoase libere, iar cea a sensibilității tactile grosiere (protopatice), de la corpusculii Meissner și discurile tactile Merkel. Sensibilitatea tactilă fină (epicritică) folosește aceiași receptori, dar cu un câmp receptor mai mic. Traseul acestor căi până la scoarța cerebrală este desenat în Figura 20 și în Figura 44.
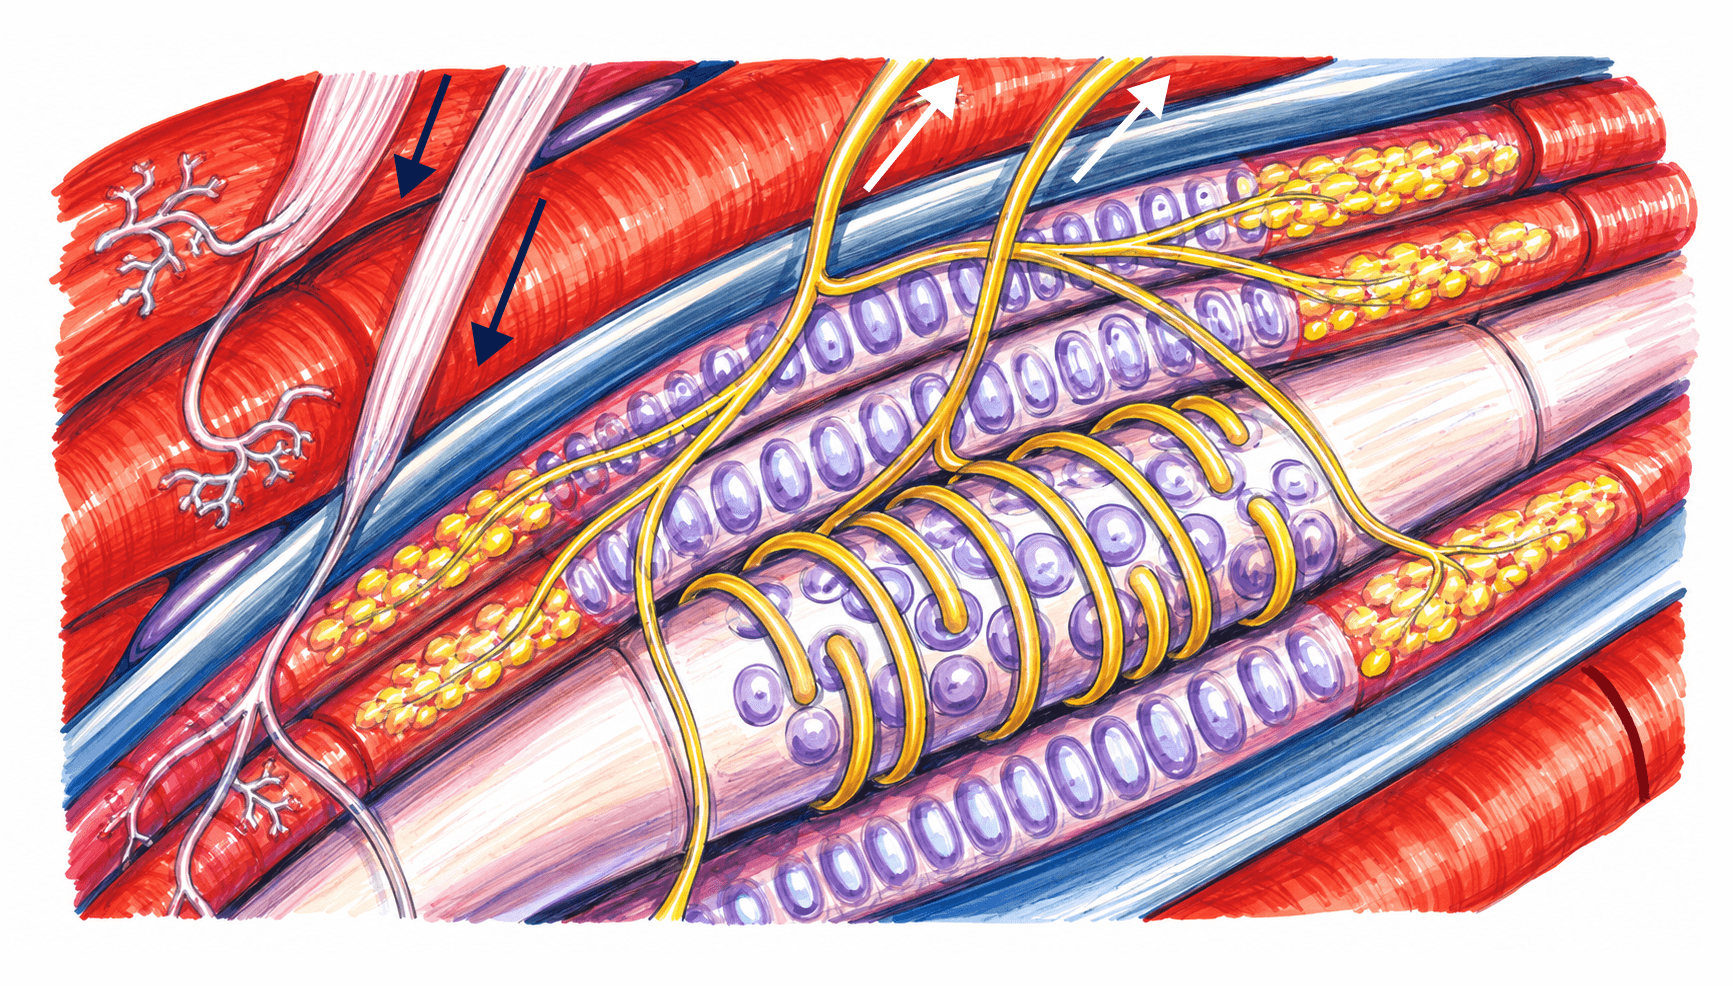
Fig. 43 · Biologie Corint · p. 41
Fusul neuromuscular: fibre intrafusale și extrafusaleFigura mărește o porțiune dintr-un mușchi striat, ca să vezi cum arată un fus neuromuscular printre fibrele musculare obișnuite. Fusurile neuromusculare sunt proprioceptori, receptori ai analizatorului kinestezic aflați chiar în mușchi. Sunt diseminate printre fibrele musculare striate și sunt stimulate de tensiunea dezvoltată în timpul contracției musculare. Fibrele roșii, groase și striate, care umplu fundalul, sunt fibrele extrafusale, adică fibrele musculare propriu-zise. Prin mijlocul desenului trece, pe diagonală, fusul: un mănunchi de fibre mai subțiri, fibrele intrafusale, strânse într-o capsulă conjunctivă, ale cărei margini albăstrui se văd deasupra și dedesubtul lor. Fibrele nervoase le deosebești după săgețile care arată sensul impulsului nervos. Pe cele două fibre palide din stânga sus, motoneuronii, săgețile închise la culoare arată în jos, spre fibrele musculare. Pe fibrele galbene din mijlocul marginii de sus, fibrele senzitive, săgețile albe arată în sus, dinspre fus. Fibrele intrafusale Un fus neuromuscular este format din 5-10 fibre musculare modificate, fibrele intrafusale, conținute în capsula conjunctivă și dispuse paralel cu fibrele extrafusale. Porțiunile lor periferice sunt contractile, iar porțiunea centrală, necontractilă, conține nuclei. În desen, nucleii apar ca ovale violet în mijlocul fibrelor, iar capetele fibrelor mai subțiri sunt roșii și striate, ca fibrele extrafusale. După felul în care sunt așezați nucleii, recunoști cele două tipuri de fibre intrafusale pe care le numește manualul: Fibrele cu sac nuclear: în figură, fibra cea mai groasă, din mijlocul fusului, cu mulți nuclei adunați în porțiunea centrală. Fibrele cu lanț nuclear: fibrele mai subțiri de deasupra și de dedesubtul ei, cu nucleii înșirați unul după altul. Cei doi motoneuroni În măduva spinării există două tipuri de motoneuroni care inervează mușchii scheletici, iar figura îi arată pe amândoi: Motoneuronul α inervează fibrele extrafusale. În desen, se desface în ramificații care se termină pe fibrele roșii mari din stânga. Impulsul nervos transmis lui duce la contracția fibrelor extrafusale, adică la contracția mușchiului. Motoneuronul γ inervează fibrele intrafusale, asigurând inervația motorie a fusului. Axonii motoneuronilor γ pleacă din cornul anterior al măduvei și ajung la partea periferică a fibrelor cu sac nuclear și cu lanț nuclear, pe care le contractă. Fibrele senzitive Fusul are și inervație senzitivă, asigurată de dendrite ale neuronilor senzitivi din ganglionul spinal (Figura 44). În desen, ele sunt fibrele galbene care pleacă din fus. Una dintre ele se înfășoară în spirală în jurul porțiunii centrale a fibrei cu sac nuclear, iar ramificațiile lor se termină ca niște buchete pe fibrele cu lanț nuclear, de o parte și de alta a spiralei. După formă, spiralele corespund fibrelor senzitive anulospirale, iar buchetele, fibrelor „în floare”. Ambele sunt stimulate atunci când porțiunea centrală a fibrelor intrafusale este întinsă. Cum lucrează fusul Manualul leagă aceste structuri într-un lanț de evenimente: Axonii motoneuronilor γ contractă porțiunile periferice ale fibrelor intrafusale. Porțiunea centrală, necontractilă, este întinsă. Întinderea ei stimulează fibrele senzitive anulospirale și pe cele „în floare”. Impulsul nervos ajunge în măduvă și se transmite motoneuronului α. Fibrele extrafusale se contractă, deci se contractă mușchiul. Fusul se întinde și atunci când se întinde mușchiul, pentru că dispunerea în paralel a fibrelor intrafusale face ca întinderea fibrelor extrafusale să determine și întinderea celor intrafusale. Lanțul continuă atunci de la pasul 3. Așa este prevenită relaxarea musculară: întinderea și activarea fusurilor declanșează o contracție reflexă. Acest mecanism produce o întindere și o tensiune musculară de relaxare, adică tonusul muscular. Unde ajung impulsurile de la fus Fusurile neuromusculare sunt receptorii reflexelor miotatice, cum este reflexul rotulian (Figura 23). Aceste reflexe au rol în menținerea tonusului muscular și a poziției corpului. Tot fusurile sunt receptorii căii sensibilității proprioceptive de control al mișcării: fasciculele spinocerebeloase dorsal și ventral duc impulsurile lor până la cerebel (Figura 20).
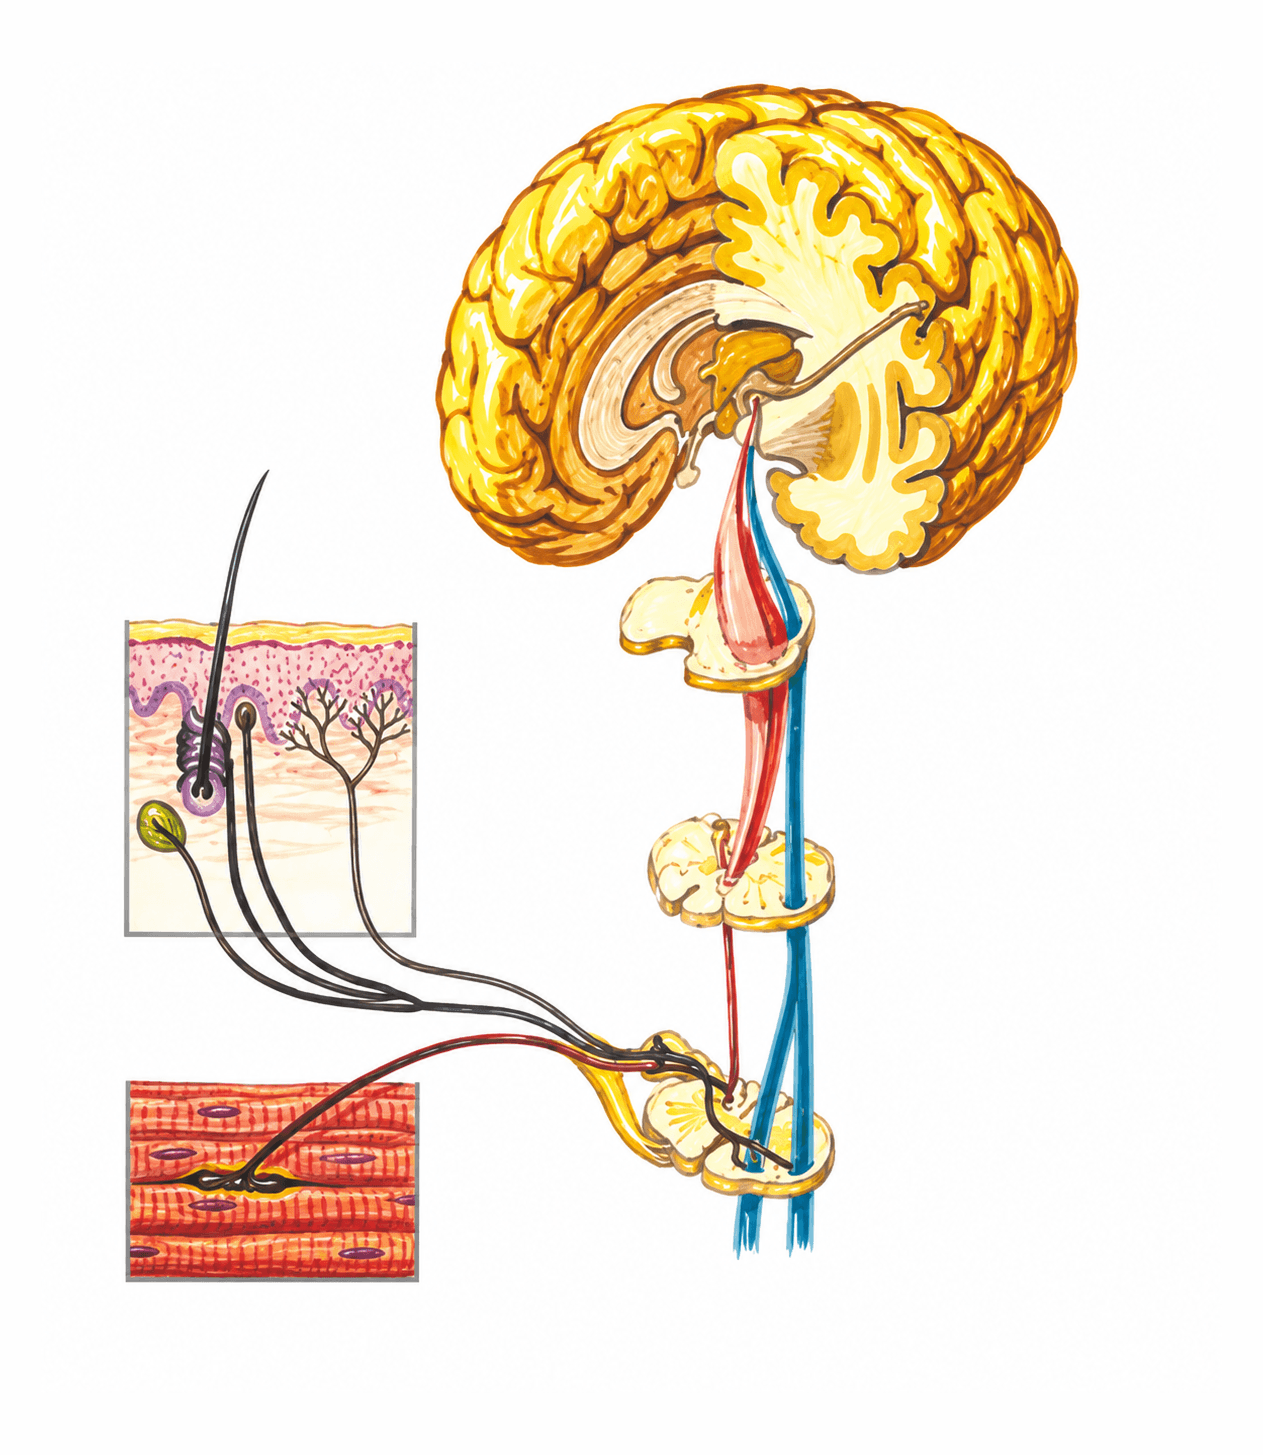
Fig. 44 · Biologie Corint · p. 41
Căile sensibilității cutanate și kinesteziceFigura urmărește drumul impulsurilor nervoase de la receptorii din piele și din mușchi până la scoarța cerebrală, adică cele trei segmente ale analizatorilor cutanat și kinestezic. Citește-o pornind din stânga jos, unde sunt două detalii mărite, o porțiune de piele și una de mușchi, cu receptorii lor. Fibrele care pleacă de la receptori se strâng într-un mănunchi și intră în măduva spinării. De aici, căile urcă prin trunchiul cerebral până în talamus, iar din talamus o ultimă fibră ajunge la scoarța emisferei cerebrale, desenată în secțiune în partea de sus. Cele două tracturi spinotalamice sunt desenate cu albastru, iar calea kinestezică, cu roșu. Segmentul periferic: receptorii din piele și din mușchi În piele se găsesc receptori tactili, termici, dureroși, de presiune și pentru vibrații, prezentați pe larg în Figura 42. Figura grupează fibrele pornite de la ei în două mănunchiuri: Tact și presiune: fibrele care vin de la corpusculii ovali din derm și de la fibra înfășurată în jurul rădăcinii firului de păr. Receptorii tactili din partea superioară a dermului (corpusculii Meissner, discurile Merkel) recepționează atingerea, iar cei situați mai profund (corpusculii Ruffini), presiunea. Durere, cald și rece: fibra care se ramifică spre epiderm. Ramificațiile ei sunt terminațiile nervoase libere, receptorii sensibilității dureroase și termice. În mușchi este desenat un proprioceptor, receptor al analizatorului kinestezic. Proprioceptorii, situați în mușchi, tendoane, articulații, periost și ligamente, informează sistemul nervos central asupra poziției corpului și a gradului de contracție a mușchilor. Cel din figură, alungit și așezat printre fibrele musculare, are forma unui fus neuromuscular (Figura 43). Toate aceste fibre sunt dendrite ale protoneuronilor, aflați în ganglionul spinal, umflătura de pe rădăcina posterioară prin care impulsurile intră în măduvă. Manualul trimite chiar la această figură când explică inervația senzitivă a fusurilor neuromusculare. Segmentul intermediar: trei căi până la talamus Segmentul intermediar este format din căile nervoase prin care impulsul nervos este transmis la scoarța cerebrală. Fiecare cale desenată are trei neuroni: protoneuronul în ganglionul spinal, deutoneuronul în măduvă sau în bulb și al III-lea neuron în talamus. Căile sunt descrise pe larg la sistemul nervos (Figura 20). Tractul spinotalamic lateral conduce sensibilitatea termică și dureroasă. Deutoneuronul se află în cornul posterior al măduvei, iar axonul lui trece în cordonul lateral de partea opusă și urcă prin măduvă și trunchiul cerebral până la talamus. Tractul spinotalamic ventral, numit la sistemul nervos fasciculul spinotalamic anterior, conduce sensibilitatea tactilă grosieră (protopatică). Deutoneuronul se află tot în cornul posterior, iar axonul lui trece în cordonul anterior de partea opusă și urcă pe același drum. Calea cordoanelor posterioare, cea roșie, fără etichetă, este calea sensibilității kinestezice (simțul poziției și al mișcării în spațiu), folosită și de sensibilitatea tactilă fină (epicritică). Axonii protoneuronilor urcă fără sinapsă în măduvă, prin cordonul posterior, unde formează fasciculele gracilis (Goll) și cuneat (Burdach), numite și fascicule spinobulbare. Deutoneuronul se află în nucleii gracilis și cuneat din bulb, iar axonul lui se încrucișează aici (decusația senzitivă) și urcă spre talamus ca lemnisc medial. De aceea fibra roșie subțire se oprește în bulb, iar de acolo pornește un fascicul mai gros. În desen, pe această cale urcă fibra proprioceptorului, tot roșie. Impulsurile de la proprioceptori mai au o cale, a sensibilității proprioceptive de reglare a mișcării (simțul tonusului muscular), prin fasciculele spinocerebeloase ventral și dorsal, spre cerebel, care nu este desenat. La sistemul nervos, manualul dă ca receptori kinestezici corpusculii neurotendinoși Golgi și corpusculii Ruffini, iar pentru calea spinocerebeloasă, fusurile neuromusculare. Din cele trei etaje ale trunchiului cerebral, desenul arată doar două secțiuni: jos bulbul, sus mezencefalul, aflat imediat sub emisferă. Puntea dintre ele lipsește, deși tracturile spinotalamice străbat tot trunchiul cerebral. Toate cele trei căi se termină în talamus, releu (întrerupere sinaptică) pentru toate sensibilitățile, cu excepția celor olfactive, vizuale și auditive. Aici se află al III-lea neuron, al cărui axon este fibra desenată de la talamus spre scoarță. Segmentul central: girusul postcentral Segmentul central este reprezentat de aria din scoarța cerebrală la care ajunge calea de conducere și la nivelul căreia impulsurile sunt transformate în senzații specifice. Pentru toate căile desenate, axonul neuronului din talamus se proiectează în aria somestezică I din lobul parietal. În figură, fibra pornită din talamus se termină în girusul postcentral, girul din lobul parietal aflat imediat înapoia șanțului central Rolando (Figura 34).
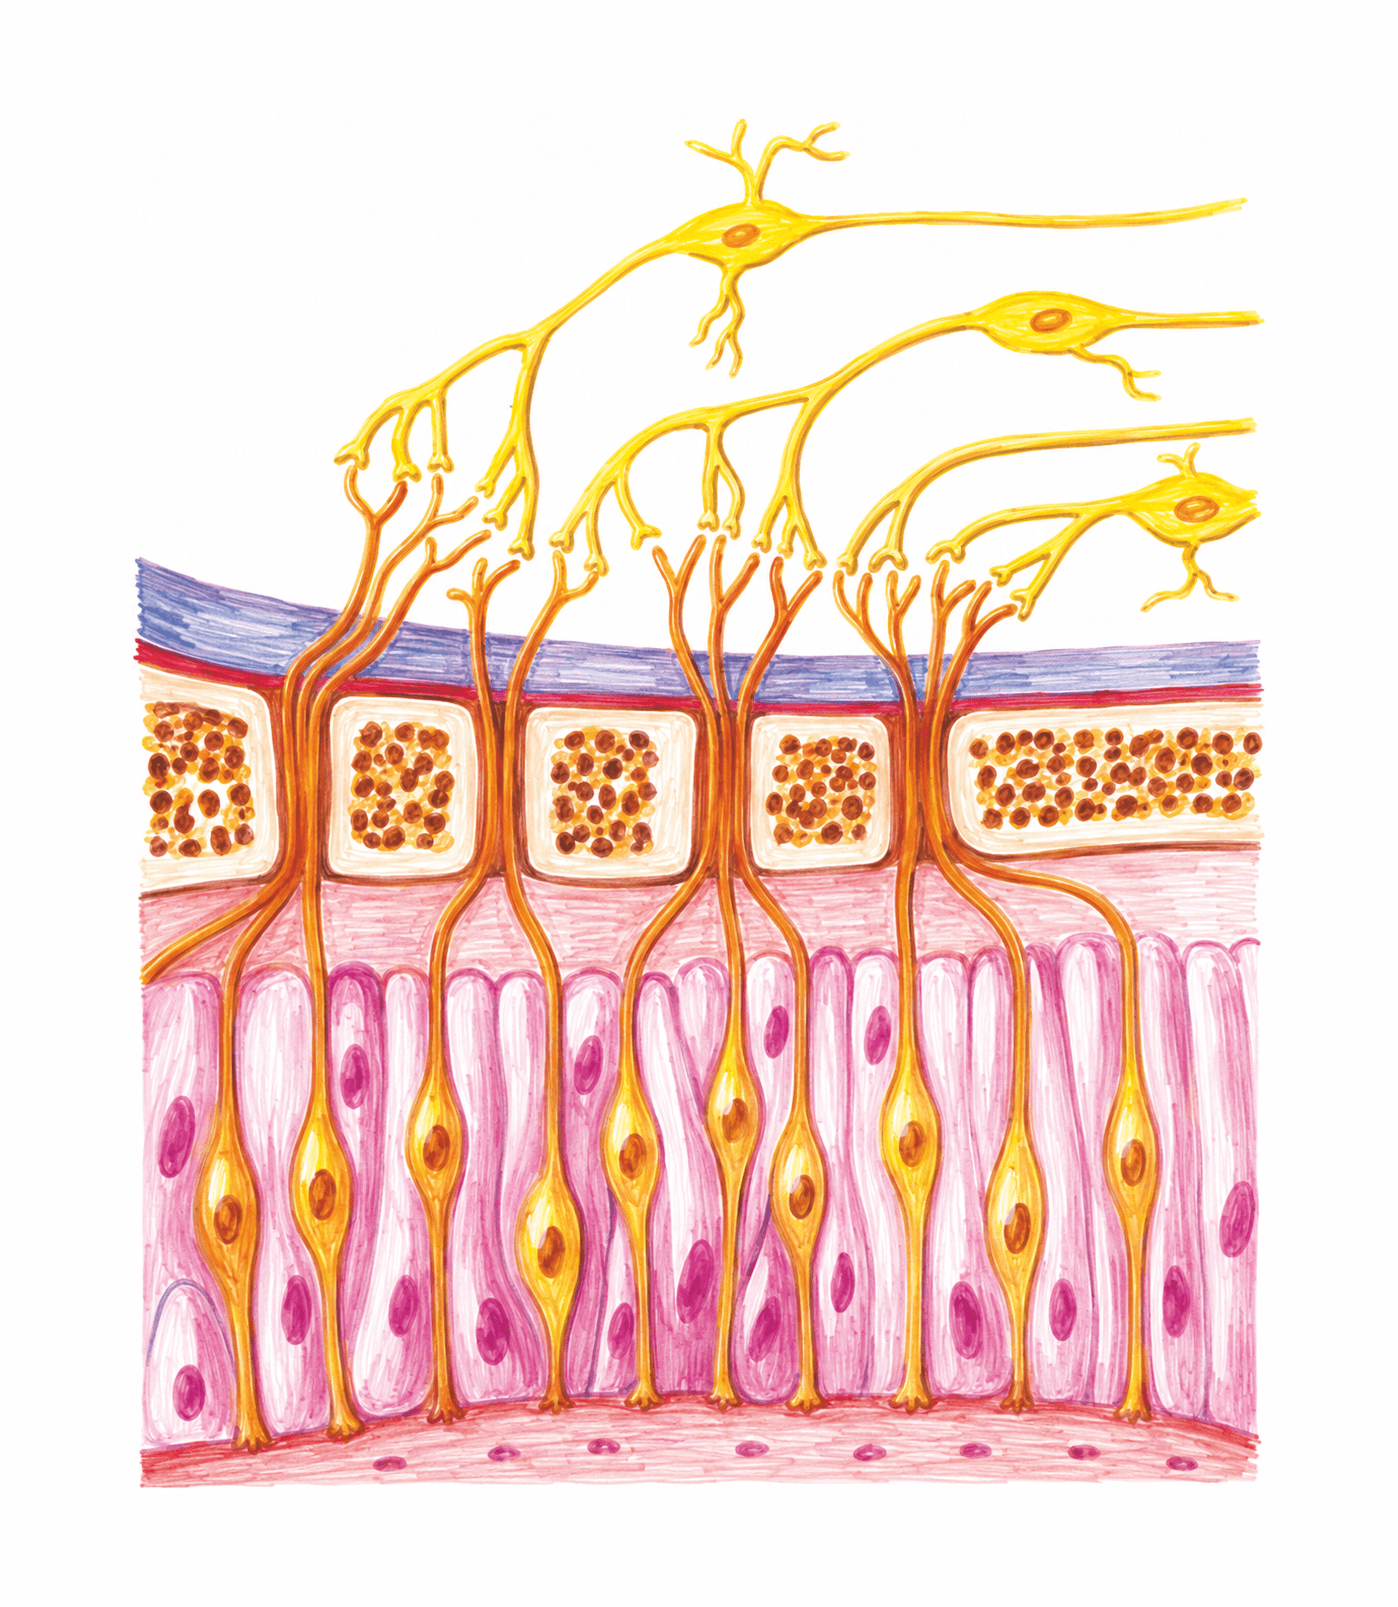
Fig. 45 · Biologie Corint · p. 42
Receptorul olfactivFigura arată receptorul olfactiv într-o secțiune prin mucoasa olfactivă și prin osul de deasupra ei. Receptorii analizatorului olfactiv ocupă partea postero-superioară a foselor nazale. Cel mai ușor citești desenul de jos în sus, în sensul în care circulă informația: jos este suprafața mucoasei, dinspre cavitatea nazală, unde ajung substanțele mirositoare, la mijloc stau celulele receptoare printre celulele de susținere, deasupra lor se întinde lama ciuruită a osului etmoid, iar sus, dincolo de os, se află neuronii la care ajung fibrele nervoase. Figura cuprinde, așadar, segmentul periferic al analizatorului, receptorul, și începutul segmentului intermediar, calea de conducere. Celula receptoare olfactivă Receptorii olfactivi sunt chemoreceptori, adică sunt stimulați chimic. Ei sunt reprezentați de celulele bipolare din mucoasa olfactivă, care au și rol de prim neuron al căii. La analizatorul olfactiv, aceeași celulă primește stimulul și conduce impulsul nervos mai departe. În desen, celulele receptoare au corpul fusiform, cu nucleu, și sunt strecurate printre celulele înalte ale epiteliului columnar, care sunt celule de susținere. Ca la toți neuronii bipolari, printre care manualul îi numără și pe cei din mucoasa olfactivă, cele două prelungiri pornesc de la polii opuși ai celulei: dendrita, scurtă și groasă, coboară spre suprafața mucoasei și se termină cu o veziculă, butonul olfactiv, prevăzută cu cili. La receptorul olfactiv, chiar aceste terminații butonate ale dendritelor îndeplinesc rolul de receptor. axonul, prelungirea unică a neuronului, pleacă de la polul bazal și urcă spre os. Receptorul olfactiv este un receptor fazic: la aplicarea stimulului răspunde cu o creștere a activității, dar, dacă stimulul se menține, activitatea lui scade. De la receptor la bulbul olfactiv Axonii celulelor bipolare (10-20) pleacă de la polul bazal și se înmănunchează, formând nervii olfactivi. În figură se vede cum fibrele venite de la mai multe celule se strâng în mănunchiuri groase, care trec prin spațiile dintre blocurile de os ale lamei ciuruite a etmoidului. Nervii olfactivi sunt perechea I de nervi cranieni. Sunt nervi senzoriali, care conduc informațiile legate de miros, și își au originea reală chiar în celulele bipolare din mucoasa olfactivă. Deasupra osului, mănunchiurile se desfac în ramificații care se întâlnesc cu prelungirile unor neuroni mari, cu multe prelungiri. Nervii olfactivi se termină în bulbul olfactiv, unde fac sinapsă cu neuronii multipolari (celulele mitrale), al II-lea neuron al căii olfactive. Neuronii din partea de sus a desenului corespund acestor celule, iar fibrele lungi care pornesc de la ei spre dreapta sunt fibrele nervoase senzoriale din legendă. Bulbul olfactiv este adăpostit de șanțul olfactiv, de pe fața bazală a emisferei cerebrale, la nivelul lobului orbital. Mai departe, spre scoarță Axonii celulelor mitrale formează tractul olfactiv, care se proiectează în final pe fața medială a lobului temporal, în aria olfactivă (girul hipocampic și nucleul amigdalian). Calea olfactivă nu are legături directe cu talamusul. Ea este una dintre cele mai importante componente ale sistemului limbic, iar bulbul și tractul olfactiv apar în desenul acestuia (Figura 37). Cum ajunge mirosul la receptor Pentru a putea fi mirosită, o substanță trebuie să fie volatilă și să ajungă în nări, apoi să fie solubilă, ca să poată traversa stratul de mucus și să atingă celulele olfactive. Ea provoacă senzația olfactivă dacă ajunge în cornetul nazal superior, la nivelul mucoasei olfactive, iar pentru asta este nevoie fie de o inspirație mai profundă, fie de inspirații scurte și repetate (adulmecare). În desen, stratul de la bază, dinspre cavitatea nazală, poartă în legendă numele de mucoasă nazală, însă din mucoasa olfactivă fac parte chiar celulele bipolare receptoare. Deși omul poate distinge până la 10 000 de mirosuri diferite, există aproximativ 50 de mirosuri primare, din a căror combinare, în proporții diferite, rezultă întreaga diversitate de senzații olfactive. Rolul simțului mirosului Simțul mirosului este slab dezvoltat la om, comparativ cu unele animale. Rolul lui principal este să depisteze prezența în aer a unor substanțe mirositoare, eventual nocive, și, împreună cu simțul gustului, să participe la aprecierea calității alimentelor și la declanșarea secrețiilor digestive.
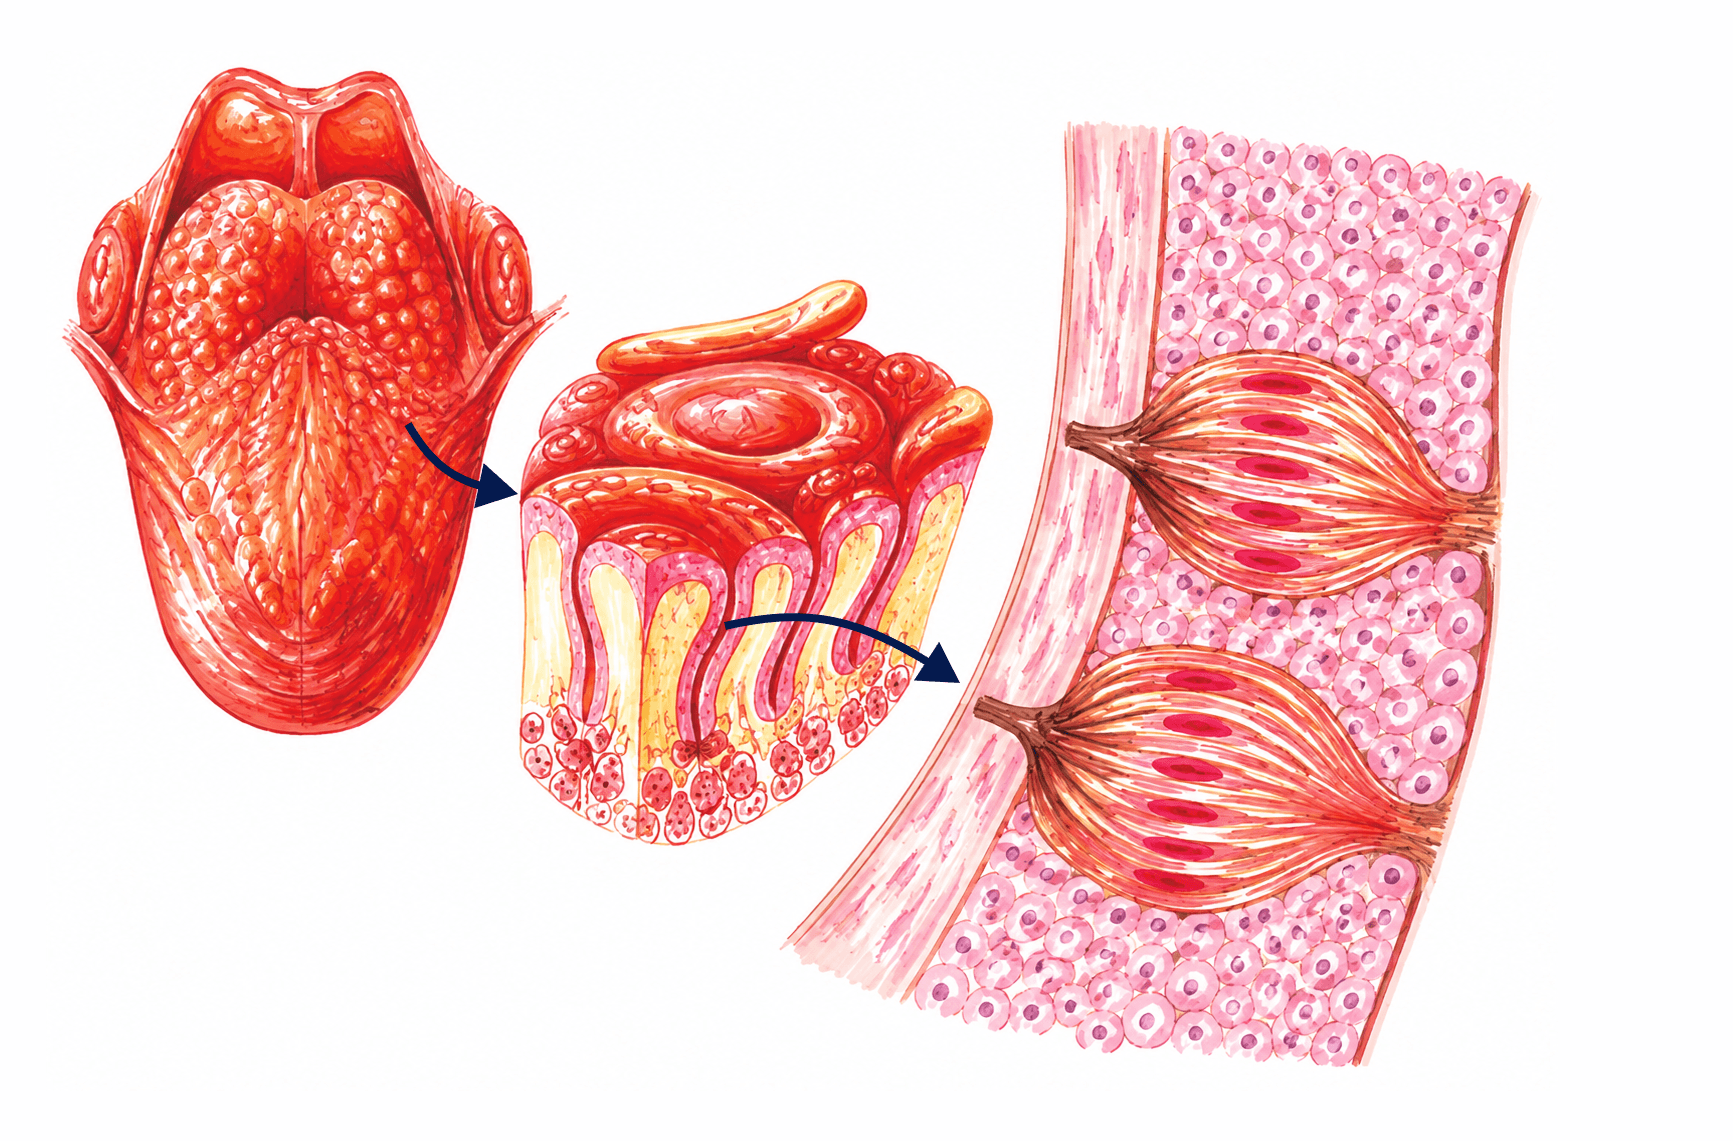
Fig. 46 · Biologie Corint · p. 43
Receptorul gustativ: mugurele gustativFigura urmărește receptorul gustativ de la întreg la detaliu, în trei imagini legate prin două săgeți curbe. În stânga este limba, cu suprafața acoperită de papile. Prima săgeată duce la o singură papilă, mărită și secționată, iar a doua, la o porțiune din peretele acesteia, mărită și mai mult, în care se văd doi muguri gustativi. Mugurii sunt segmentul periferic al analizatorului gustativ, adică formațiunea specializată care percepe stimulii. Simțul gustului ne informează asupra calității alimentelor introduse în gură și intervine în declanșarea reflexă necondiționată a secreției glandelor digestive. Limba și papilele Receptorii analizatorului gustativ sunt chemoreceptori, reprezentați de muguri gustativi. Aceștia se află la nivelul papilelor gustative caliciforme (circumvalate), fungiforme și foliate din mucoasa linguală. Papilele filiforme nu au muguri gustativi. Papila din mijlocul figurii are o porțiune centrală bombată, înconjurată de un șanț circular, și este tăiată ca să i se vadă peretele. În grosimea acestui perete stau mugurii gustativi, iar de acolo pornește a doua săgeată. Porțiunea mărită: mugurii în epiteliu În dreapta se vede, în secțiune, epiteliul lingual, desenat ca un mozaic de celule. Pe marginea lui din stânga se află o fâșie îngustă de țesut conjunctiv, iar marginea din dreapta este suprafața epiteliului, la care se deschid mugurii. Cei doi muguri gustativi au formă ovoidală și se întind prin grosimea epiteliului, de la țesutul conjunctiv până la suprafață. Fiecare este alcătuit din celule alungite și curbate, care se strâng spre vârful mugurelui. Printre ele, figura deosebește celule receptoare gustative, adică celulele senzoriale ale mugurelui, și celule de susținere. Celulele senzoriale au doi poli, orientați în sensuri opuse: Polul apical, spre suprafață, prezintă un microvil, pe care figura îl numește cil gustativ. Cilii ies la suprafața epiteliului prin porul gustativ, deschiderea din vârful mugurelui. Polul bazal, spre țesutul conjunctiv, primește terminații nervoase ale nervilor faciali, glosofaringieni și vagi. În figură, ele sunt fibrele nervoase senzoriale care străbat țesutul conjunctiv și se ramifică la baza fiecărui mugure. Cum se naște senzația de gust Substanța trebuie să fie solubilă în apă sau în salivă, pentru că substanțele insolubile nu stimulează mugurii gustativi. Masticația asigură contactul cu receptorii gustativi, iar saliva dizolvă substanțele cu gust specific pe suprafața receptivă a analizatorului. La nivelul porului, substanțele sapide întâlnesc microvilii celulelor receptoare și se leagă de molecule proteice receptoare, care pătrund în membrana microvililor. Moleculele receptoare deschid canale ionice, prin care pătrund în celulă ionii de sodiu ($\ce{Na+}$). Ionii de sodiu depolarizează celula receptoare și apare potențialul de receptor. Substanțele chimice care stimulează receptorii pentru gust nu sunt încă pe deplin cunoscute. În celulele gustative au fost identificați cel puțin 13 posibili sau probabili receptori chimici. Calea gustativă Excitațiile pleacă de la muguri pe fibrele celor trei nervi, fiecare culegându-le dintr-o altă regiune a limbii: Nervul facial (perechea VII) culege excitațiile gustative de la corpul limbii. Nervul glosofaringian (perechea IX) le culege din treimea posterioară a limbii. Nervul vag (perechea X) culege sensibilitatea gustativă de la baza rădăcinii limbii. Etapele căii sunt: Protoneuronul se află în ganglionii anexați acestor nervi. Pentru nervul facial, acesta este ganglionul geniculat, de pe traiectul nervului. Deutoneuronul se află în nucleul solitar din bulb. Axonii lui se încrucișează, apoi se îndreaptă spre talamus. De la nivelul talamusului, impulsurile ajung în aria gustativă, situată în partea inferioară a girului postcentral. Calea gustativă formează segmentul intermediar (de conducere) al analizatorului, iar aria gustativă este segmentul lui central, unde impulsurile sunt transformate în senzații specifice. Gusturile primare Pentru analiza gustului, calitățile de percepție au fost împărțite în patru senzații gustative primare: acru, sărat, dulce și amar. Cei mai mulți muguri pot fi stimulați de doi sau mai mulți stimuli gustativi, chiar și de unii care nu intră printre cei primari, dar de obicei predomină una sau două dintre aceste categorii. Mugurii sunt distribuiți pe suprafața limbii astfel încât se pot delimita zone caracteristice pentru percepția fiecărui gust fundamental, prezentate în Figura 47.
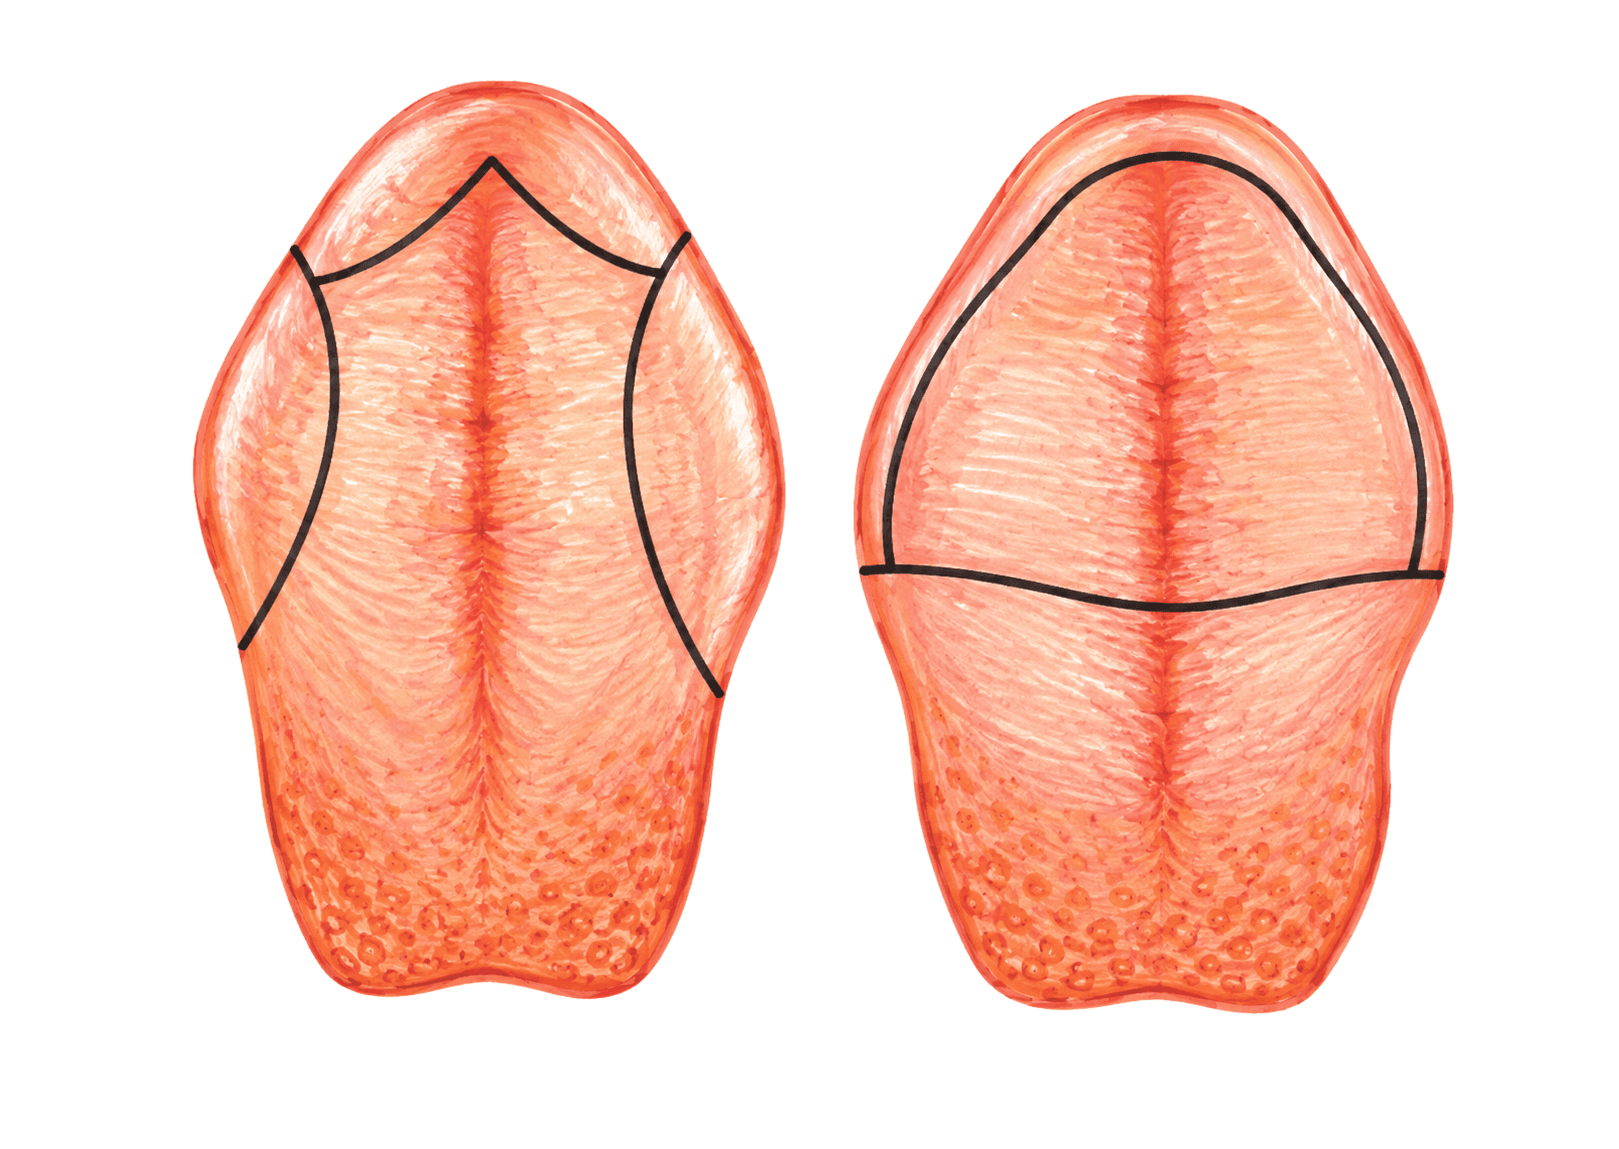
Fig. 47 · Biologie Corint · p. 43
Zone de percepție a gustuluiFigura prezintă harta gustului, adică zonele de pe suprafața limbii caracteristice pentru percepția câte unui gust fundamental. Aceeași limbă este desenată de două ori, văzută de sus, cu vârful rotunjit în partea de sus a desenului și partea posterioară, spre rădăcina limbii, în partea de jos. Liniile trasate peste fiecare limbă delimitează câte două zone: pe desenul din stânga dulcele și acrul, pe cel din dreapta săratul și amarul. Cele două desene se citesc împreună, ca o singură hartă. Receptorii analizatorului gustativ sunt chemoreceptori, reprezentați de mugurii gustativi (Figura 46), situați la nivelul papilelor gustative caliciforme (circumvalate), fungiforme și foliate din mucoasa linguală. Papilele filiforme nu au muguri gustativi. Mugurii sunt distribuiți pe suprafața limbii astfel încât se pot delimita zone caracteristice pentru percepția unui anumit tip de gust fundamental. Din punct de vedere practic, pentru analiza gustului, calitățile de percepție au fost împărțite în patru categorii generale, numite senzații gustative primare: acru, sărat, dulce și amar. Cum sunt așezate zonele pe limbă Dulce: zona de la vârful limbii, pe desenul din stânga. O delimitează o linie care pornește de pe mijlocul limbii, chiar sub vârf, și coboară arcuită spre cele două margini laterale. Acru: cele două fâșii din lungul marginilor laterale, tot pe desenul din stânga. Încep unde se termină zona dulcelui și sunt mărginite de două linii curbe, simetrice, care coboară până dincolo de jumătatea lungimii limbii. Sărat: banda îngustă de pe desenul din dreapta, dintre conturul limbii și o curbă trasată paralel cu el. Înconjoară vârful și coboară pe ambele margini până la linia transversală. Amar: partea posterioară a limbii, spre rădăcină, aflată pe desenul din dreapta dincolo de linia transversală care taie limba puțin sub jumătatea ei. Dacă pui cele două desene unul peste altul, observi că zonele se suprapun parțial: banda săratului trece prin zona dulcelui de la vârf și pe marginea externă a fâșiilor acrului. Porțiunea din mijlocul limbii, înconjurată de toate aceste zone, nu este atribuită pe desen niciunui gust. O zonă caracteristică, nu un singur gust Cei mai mulți dintre mugurii gustativi pot fi stimulați de doi sau mai mulți stimuli gustativi și chiar de unii stimuli care nu intră în categoria celor primari, însă de obicei predomină una sau două dintre categoriile descrise. Așadar, o zonă este caracteristică pentru percepția unui gust fără ca mugurii din ea să răspundă numai la acel gust. Harta gustului în lucrarea practică Un stimul poate provoca senzația gustativă numai dacă este solubil în apă sau în salivă, iar cei insolubili nu stimulează mugurii gustativi. Pentru demonstrarea localizării perceperii celor patru gusturi fundamentale se pot folosi alimente precum zahărul, sarea de bucătărie, oțetul și sucul de grepfrut. Pragul sensibilității gustative este concentrația cea mai slabă la care stimulul produce o senzație. Variază foarte mult de la o substanță la alta: este mai ridicat la substanțele dulci și mai scăzut la cele amare. Pentru zahăr se consideră că pragul este de 1 g/L, iar pentru chinină de 0,005 g/L, la o temperatură a soluțiilor de 24°C. Băuturile prea calde sau prea reci nu au gust. Drumul excitațiilor gustative Excitațiile gustative de pe limbă sunt culese de fibrele senzoriale a trei nervi cranieni: facialul de la corpul limbii, glosofaringianul din treimea posterioară a limbii și vagul de la baza rădăcinii limbii. Protoneuronul căii gustative se află în ganglionii anexați acestor nervi, iar al doilea neuron în nucleul solitar din bulb. Axonii deutoneuronilor se încrucișează și se îndreaptă spre talamus, de unde impulsurile ajung în aria gustativă, situată în partea inferioară a girului postcentral.
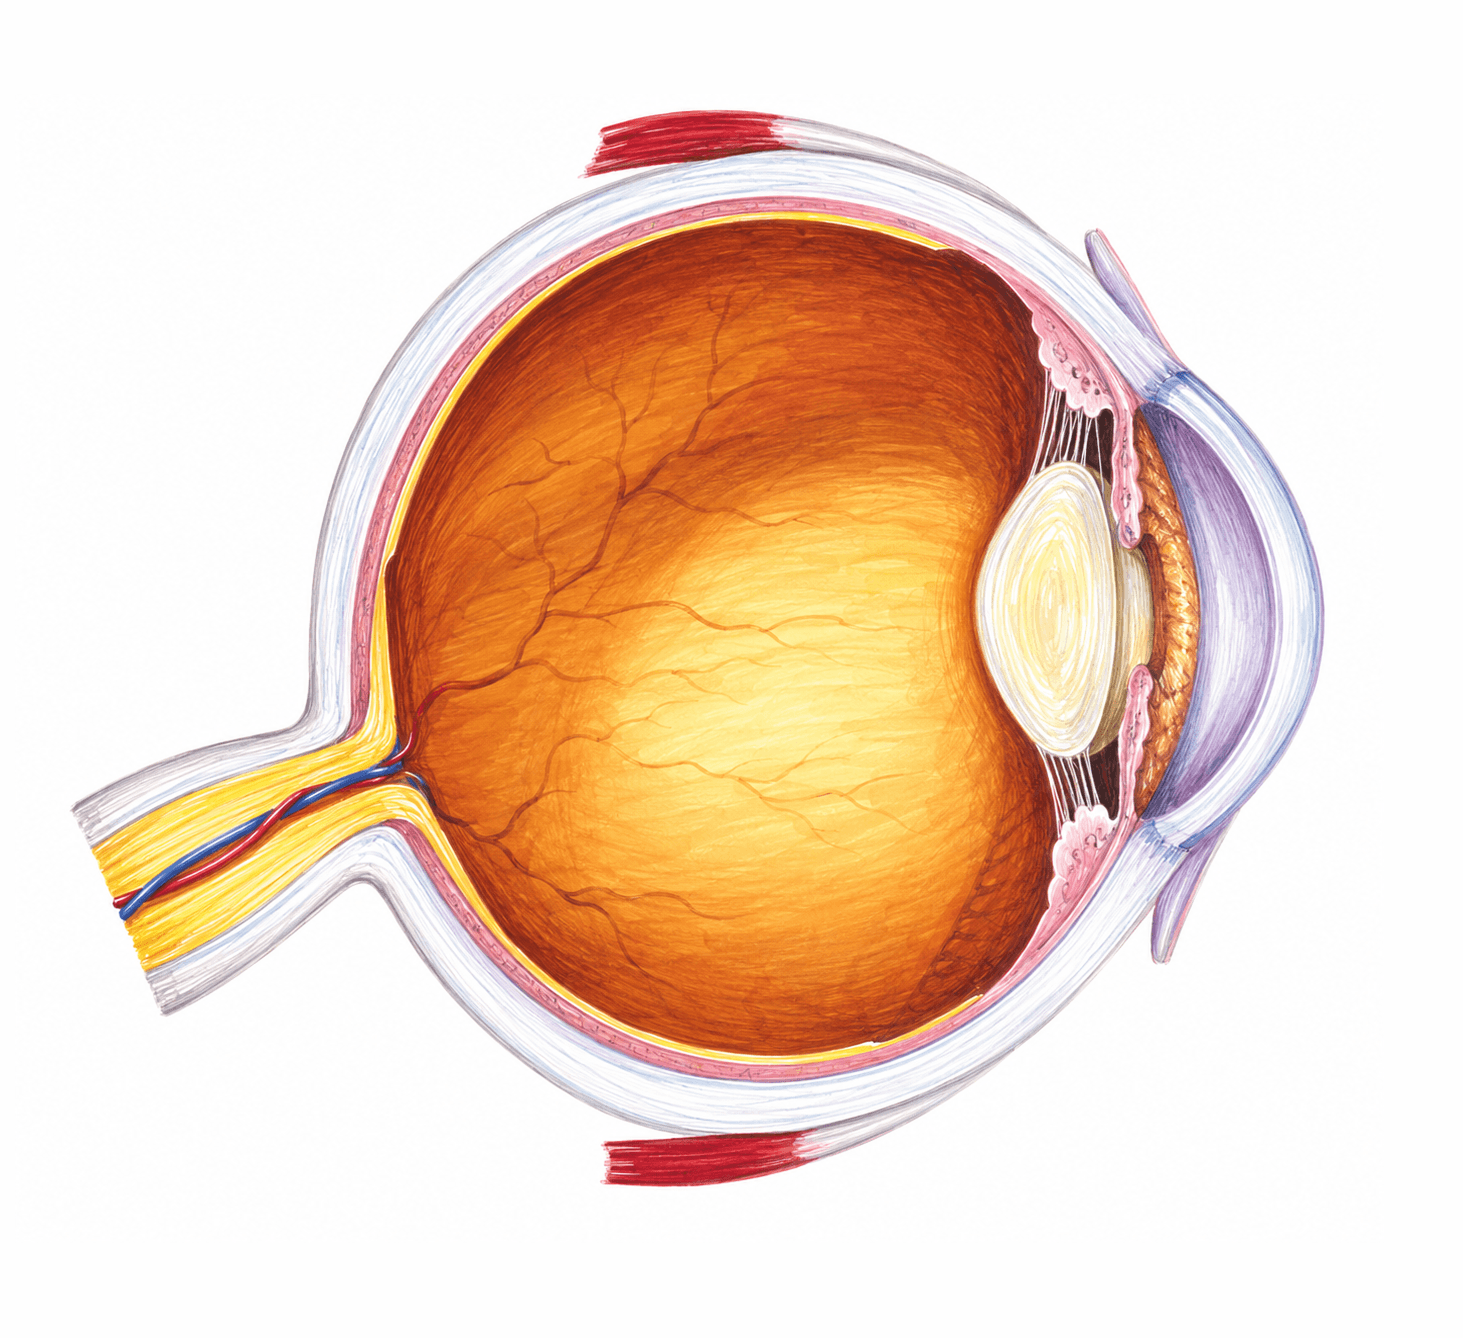
Fig. 48 · Biologie Corint · p. 44
Globul ocular: tunicile și mediile refringenteFigura este o secțiune prin globul ocular, văzut din lateral. Partea din față, cu corneea, este la dreapta, iar partea din spate, de unde pleacă nervul optic, este la stânga. Globul ocular are formă aproximativ sferică și este situat în orbită. Peretele lui este format din trei tunici concentrice, externă, medie și internă, pe care le deosebești cel mai ușor în spatele globului, ca trei straturi așezate unul în interiorul celuilalt. Interiorul este ocupat de mediile refringente, pe care lumina le străbate de la dreapta la stânga până ajunge la retină. Sus și jos, pe suprafața globului, sunt prinși doi dintre mușchii extrinseci. Tunica externă (fibroasă) Este învelișul cel mai din afară și are două porțiuni inegale: Sclerotica este opacă și învelește cea mai mare parte a globului, reprezentând 5/6 din tunica fibroasă. Pe ea se inseră mușchii extrinseci, iar în spate este perforată de fibrele nervului optic, care părăsește globul ocular, și de artera care intră în globul ocular. Corneea este porțiunea din față, bombată și transparentă. Nu are vase de sânge, dar are în structura sa numeroase fibre nervoase. Pe partea din față a scleroticii, lângă cornee, este desenată și conjunctiva, o foiță subțire. Tunica medie (vasculară) Are trei segmente, pe care le iei pe rând dinspre spate spre față: Coroida este stratul subțire dintre sclerotică și retină. Se întinde posterior de ora serrata, limita dintre coroidă și corpul ciliar, pe care o găsești în partea din față a peretelui, puțin înapoia marginii cristalinului. În partea sa posterioară, coroida are un orificiu prin care iese nervul optic. Corpul ciliar nu are număr în figură. Se află imediat înaintea orei serrata, în dreptul marginii cristalinului, și conține procesele ciliare, aglomerări capilare care secretă umoarea apoasă, și mușchiul ciliar, format din fibre musculare netede. Fibrele circulare ale mușchiului ciliar sunt inervate de parasimpatic, iar cele radiare, de simpatic. Irisul este o diafragmă așezată în fața cristalinului, cu un orificiu în mijloc, pupila. El reglează cantitatea de lumină care ajunge la retină: la lumină puternică pupila se micșorează (mioză), iar la întuneric se mărește (midriază). Tunica internă (retina) Retina este stratul cel mai din interior, care căptușește globul pe dinăuntru, posterior de ora serrata. Este membrana fotosensibilă a ochiului, care realizează recepția stimulilor luminoși și transformarea lor în influx nervos cu ajutorul celulelor fotoreceptoare cu conuri și cu bastonașe. Cele 10 straturi ale ei sunt desfășurate în Figura 49. Pe peretele din spate se află două regiuni importante: Pata galbenă (macula lutea) este situată în dreptul axului vizual și are mai multe conuri decât bastonașe. Ea nu are număr în figură, dar în centrul ei se află o concavitate, fovea centralis, numai cu conuri. În desen, fovea este pe peretele din spate, cam în dreptul pupilei și al cristalinului. Pata oarbă, situată medial și inferior de pata galbenă, este locul de ieșire a nervului optic din globul ocular și de intrare a arterelor globului ocular. În ea nu există elemente fotosensibile. În desen o găsești puțin sub fovee, acolo unde nervul optic se prinde de glob, iar vasele de sânge desenate pe retină pornesc din ea. Nervul optic pleacă din pata oarbă spre stânga, trecând prin orificiul coroidei și prin sclerotică. Este format din axonii celulelor multipolare din retină și conține fibre de la un singur glob ocular. Mediile refringente Sunt corneea transparentă, umoarea apoasă, cristalinul și corpul vitros, în ordinea în care le străbate lumina. Corneea a fost descrisă la tunica externă, iar celelalte trei ocupă interiorul globului: Umoarea apoasă este un lichid incolor, secretat de procesele ciliare. În fața cristalinului, desenul arată două spații: camera anterioară, între cornee și iris, și camera posterioară, mai îngustă, între iris și cristalin. La disecția ochiului, după îndepărtarea corneei se deschide camera anterioară, din care se scurge umoarea apoasă. Cristalinul este o lentilă biconvexă și transparentă, așezată între iris și corpul vitros și învelită de o capsulă elastică, cristaloida. Este menținut la locul său de un sistem de fibre, ligamentul suspensor. Nu conține vase sangvine și se hrănește prin difuziune de la vasele proceselor ciliare. Corpul vitros umple cea mai mare parte a globului. Este transparent, are formă sferoidală și consistență gelatinoasă și ocupă camera vitroasă, situată înapoia cristalinului. Corneea, cu aproximativ 40 de dioptrii, și cristalinul, cu aproximativ 20 de dioptrii, formează aparatul dioptric ocular. Cea mai mare parte a puterii de refracție aparține feței anterioare a corneei. Cristalinul este totuși important, deoarece raza lui de curbură poate fi mult crescută, ceea ce face posibilă acomodarea, prezentată în Figura 50. Mușchii extrinseci Deasupra globului este desenat mușchiul drept superior, iar dedesubt, mușchiul drept inferior, amândoi inserați pe sclerotică. Ambii primesc fibre motorii de la nervul oculomotor (perechea III de nervi cranieni). Mușchii extrinseci participă, alături de mușchii irisului, la răspunsul efector din reflexul de acomodare vizuală. Mai mulți mușchi ai globului ocular, împreună cu nervii cranieni III, IV și VI, apar în Figura 26.

Fig. 49 · Biologie Corint · p. 45
Straturile retineiFigura arată o porțiune de retină în secțiune, cu straturile ei așezate unul lângă altul, de la stânga la dreapta. Săgețile din stânga, însoțite de cuvântul „lumină”, arată dinspre ce parte vine lumina: dinspre interiorul globului ocular, după ce a trecut prin mediile refringente. În dreapta se văd coroida și sclerotica, învelișurile care acoperă retina pe dinafară. Un amănunt surprinde la prima vedere: celulele fotoreceptoare, cele care transformă lumina în influx nervos, stau cel mai departe de ea, lângă stratul pigmentar, așa că lumina trece mai întâi printre celelalte celule ale retinei. Cele trei feluri de celule funcționale În structura retinei se descriu 10 straturi, în care se întâlnesc trei feluri de celule funcționale, aflate în relații sinaptice. În desen le găsești de la dreapta spre stânga: Celulele fotoreceptoare, cu prelungiri în formă de con și de bastonaș, sunt așezate în dreapta, lângă stratul pigmentar. Celulele bipolare, mici și alungite, ocupă partea din mijloc a desenului. Fiecare are o prelungire spre fotoreceptoare și una spre celulele multipolare. Celulele multipolare (ganglionare) sunt celulele mari, galbene, din stânga, aproape de membrana limitantă internă. Celelalte celule din desen În afară de celulele funcționale, în retină se mai găsesc celule de susținere și amacrine și de asociație. Desenul arată încă două feluri de celule, care nu fac parte dintre cele trei funcționale: Celulele amacrine sunt cele rotunde, așezate între celulele multipolare și cele bipolare, printre prelungirile acestora. Celula orizontală stă între celulele bipolare și fotoreceptoare, iar prelungirile ei se răsfiră spre mai multe fotoreceptoare. Manualul o numește doar în legenda figurii, fără să o descrie. Conuri și bastonașe Cele două feluri de fotoreceptoare se recunosc ușor după formă: bastonașele sunt lungi și subțiri și ajung până la membrana limitantă externă, iar conurile sunt mai scurte și mai groase. În desen, ca și în ansamblul retinei, bastonașele sunt mai numeroase: Celulele cu bastonașe sunt celule nervoase modificate, în număr de circa 125 de milioane. Sunt adaptate pentru vederea nocturnă, la lumină slabă, și conțin un singur fel de pigment vizual, numit rodopsină. Sunt mult mai sensibile decât conurile: pentru a stimula o celulă cu bastonaș este suficientă energia unei singure cuante de lumină. Celulele cu conuri sunt tot celule nervoase modificate, în număr de 6-7 milioane, mai numeroase în pata galbenă, iar în fovea centralis există numai celule cu conuri. Sunt adaptate pentru vederea diurnă, colorată, la lumină intensă, și conțin trei feluri de pigmenți vizuali, iodopsinele. După pigmentul pe care îl conțin, există „conuri roșii”, „conuri verzi” și „conuri albastre”. Pigmentul vizual face parte din structura membranei conurilor și bastonașelor. Lumina îl descompune în retinen și opsină, iar descompunerea lui duce la apariția potențialului receptor. Să nu-l confunzi cu stratul pigmentar, desenat separat, după fotoreceptoare. Drumul influxului nervos prin retină Influxul nervos parcurge desenul în sens opus luminii, de la dreapta spre stânga. Receptorii căii optice sunt celulele fotosensibile cu conuri și bastonașe. Neuronul I se află la nivelul celulelor bipolare din retină, iar al II-lea neuron este reprezentat de celulele multipolare, tot din retină. Axonii celulelor multipolare se curbează spre membrana limitantă internă și se adună în fibrele nervului optic, banda care coboară de-a lungul ei și se îngroașă pe măsură ce i se alătură noi axoni. Fibrele părăsesc globul ocular prin pata oarbă, locul de ieșire a nervului optic, în care nu există elemente fotosensibile. Drumul lor mai departe, până la scoarța cerebrală, este arătat în Figura 51. Membranele limitante și stratul pigmentar Membrana limitantă internă este linia punctată din stânga, de pe partea dinspre lumină. Ea închide retina spre interiorul globului ocular. Membrana limitantă externă este a doua linie punctată, trasă acolo unde se termină bastonașele. Stratul pigmentar este șirul de celule de după membrana limitantă externă, lipit de coroidă. Până la el ajung capetele bastonașelor. Dincolo de retină: coroida și sclerotica După stratul pigmentar urmează coroida, segmentul posterior al tunicii medii, vasculare, și apoi sclerotica, porțiunea posterioară, opacă, a tunicii externe, fibroase. Nervul optic le străbate pe amândouă: coroida are în partea sa posterioară un orificiu prin care iese nervul optic, iar sclerotica este perforată posterior de fibrele lui. Cele trei tunici ale globului ocular se văd împreună în Figura 48.
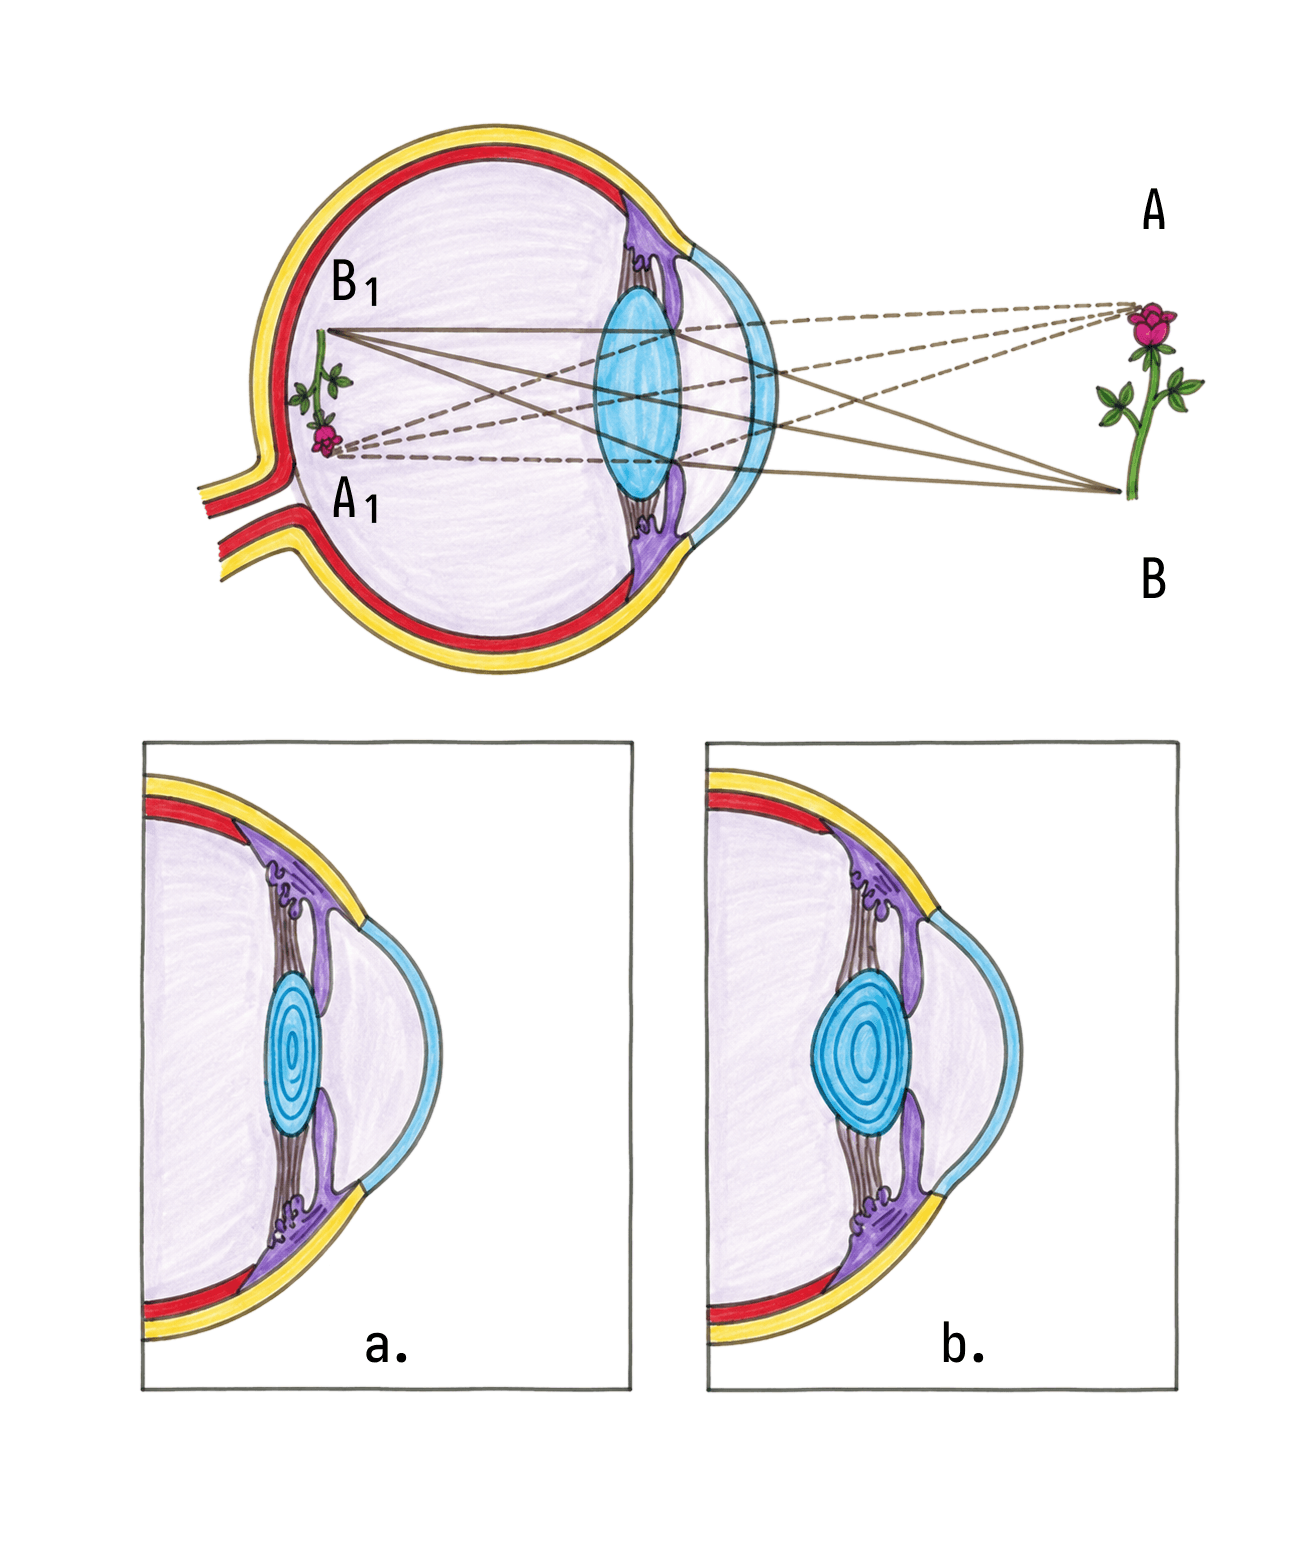
Fig. 50 · Biologie Corint · p. 45
Acomodarea: vederea la distanță și la apropiereFigura are trei desene și arată cum reușește ochiul să vadă clar atât obiectele îndepărtate, cât și pe cele apropiate. Desenul de sus prezintă globul ocular în secțiune și drumul razelor de lumină de la o floare până la retină. Cele două desene de jos, notate cu a și b, sunt detalii ale părții din față a ochiului (corneea, irisul, cristalinul și corpul ciliar) în cele două situații ale acomodării. Compară-le după grosimea cristalinului. Globul ocular întreg, cu tunicile și mediile lui refringente, apare în Figura 48. Cum se formează imaginea pe retină Vârful florii este notat cu $A$, iar baza tijei, cu $B$. Razele care pleacă din fiecare punct străbat mediile refringente ale ochiului (corneea, umoarea apoasă, cristalinul și corpul vitros) și se adună din nou într-un singur punct pe retină: cele din $A$ în $A1$, cele din $B$ în $B1$. Pe drum se încrucișează, așa că vârful florii ajunge jos pe retină, iar baza ei, sus. Imaginea $A1B1$ este reală, mai mică și răsturnată. Corneea și cristalinul alcătuiesc aparatul dioptric al ochiului: Corneea are o putere de refracție de aproximativ 40 de dioptrii. Cea mai mare parte a puterii de refracție a aparatului dioptric aparține feței ei anterioare. Cristalinul are o putere de refracție de aproximativ 20 de dioptrii. Contează totuși, pentru că raza lui de curbură se poate modifica mult, iar pe asta se sprijină acomodarea. Simplificând, aparatul dioptric poate fi privit ca o singură lentilă convergentă, de aproximativ 60 de dioptrii, cu centrul optic la 17 mm în fața retinei. Razele paralele venite de la mai mult de 6 m se focalizează la 17 mm în spatele centrului optic, adică exact pe retină. Ce este acomodarea Acomodarea reprezintă variația puterii de refracție a cristalinului în raport cu distanța la care privim un obiect. Ea se datorează elasticității cristalinului, aparatului suspensor al acestuia și mușchiului ciliar. Iată cum le recunoști în desenele de jos: Cristalinul este lentila biconvexă și transparentă dintre iris și corpul vitros. Este învelit de o capsulă elastică, cristaloida. Ligamentul suspensor este sistemul de fibre care ține cristalinul la locul lui. În desene, fibrele lui leagă marginea cristalinului de corpul ciliar. Mușchiul ciliar, organul activ al acomodării, este format din fibre musculare netede și se află în corpul ciliar, segmentul tunicii medii situat imediat înaintea orei serrata. În secțiune, corpul ciliar apare deasupra și dedesubtul cristalinului. Fibrele circulare ale mușchiului sunt inervate de parasimpatic, iar cele radiare, de simpatic. (a) La distanță Când privim un obiect aflat la mai mult de 6 m, mușchiul ciliar este relaxat. Ligamentul suspensor este atunci întins, pune în tensiune cristaloida și, astfel, comprimă cristalinul. Raza de curbură a cristalinului crește, iar puterea de convergență coboară la valoarea minimă, de 20 de dioptrii. Asta vezi în desenul a: un cristalin subțire, turtit. În tabelul cu efectele sistemului nervos vegetativ, relaxarea mușchiului ciliar „pentru vederea la distanță” apare ca efect al stimulării simpatice. (b) La apropiere Pentru obiectele aflate la mai puțin de 6 m, mușchiul ciliar se contractă. Contracția lui relaxează fibrele ligamentului suspensor, iar tensiunea din cristaloidă scade. Datorită elasticității, cristalinul se bombează, iar puterea de convergență urcă la valoarea maximă. În desenul b, cristalinul este vizibil mai gros și mai rotunjit decât în desenul a. În același tabel, contracția mușchiului ciliar „pentru vederea de aproape” apare ca efect al stimulării parasimpatice. Punctul proxim și punctul remotum Punctul proxim este punctul cel mai apropiat de ochi la care vedem clar un obiect, cu efort acomodativ maximal. La tineri, se află la 25 cm. Punctul remotum este punctul cel mai apropiat de ochi la care vedem clar fără efort de acomodare. La tineri, se află la 6 m. Cu trecerea anilor, cristalinul devine mai gros și mai puțin elastic, se bombează tot mai greu, iar puterea de convergență scade. Situația se numește prezbiopie (prezbiție). Acomodarea, un act reflex Reflexul de acomodare este reglat de centrii corticali și de coliculii cvadrigemeni superiori. Aceștia comandă contracția mușchiului ciliar prin intermediul nucleului vegetativ parasimpatic anexat nervului oculomotor din mezencefal, adică al nucleului accesor al nervului III. Fibrele parasimpatice care pornesc de aici ajung la mușchiul sfincter al irisului și la fibrele circulare ale mușchiului ciliar (Figura 26). La reflex participă și centrii corticali din ariile vizuale primare și secundare sau asociative, iar la răspunsul efector iau parte și mușchii irisului și mușchii extrinseci ai globului ocular.

Fig. 51 · Biologie Corint · p. 47
Căile de conducere nervoasă ale analizatorului vizualFigura urmărește drumul informației vizuale de sus în jos, de la spațiul privit până la scoarța cerebrală: câmpul vizual, cei doi globi oculari, nervii optici, chiasma optică, tracturile optice, corpii geniculați externi și, la baza desenului, lobii occipitali. Partea centrală a acestui drum este calea optică, segmentul intermediar al analizatorului vizual, care leagă receptorii din retină de segmentul cortical. Culorile ajută la citire: liniile și fibrele ochiului din stânga desenului sunt roșii, iar ale ochiului din dreapta sunt albastre, așa că se poate urmări unde ajunge informația de la fiecare ochi. Câmpul vizual Spațiul cuprins cu privirea se numește câmp vizual. Fiecărui ochi îi corespunde un câmp vizual monocular, desenat ca o zonă ovală deschisă la culoare. Cele două câmpuri monoculare se suprapun în mare parte, iar partea lor comună, colorată mai intens, este câmpul vizual binocular. Un obiect aflat în câmpul binocular formează câte o imagine pe retina fiecărui ochi, iar cele două imagini fuzionează pe scoarță într-o imagine unică. Vederea binoculară conferă abilitatea vederii în profunzime (stereoscopică). În centru, cercul închis la culoare este câmpul macular, al cărui nume trimite la pata galbenă (macula lutea), regiunea retinei situată în dreptul axului vizual. În mijlocul lui se află punctul de fixare, din care pornește câte o linie spre fiecare ochi, semn că amândoi ochii sunt îndreptați spre el. Globii oculari Liniile pornite din câmpul vizual trec prin cristalin, lentila biconvexă și transparentă situată între iris și corpul vitros. Împreună cu corneea, cristalinul formează aparatul dioptric ocular, care dă pe retină o imagine reală, mai mică și răsturnată. De aceea liniile se încrucișează, în desen, în dreptul cristalinului. Ele se opresc pe retină, tunica internă a globului ocular, membrana fotosensibilă care transformă stimulii luminoși în influx nervos. Aici se află receptorii căii optice, celulele cu conuri și cu bastonașe, și primii doi neuroni ai căii: neuronul I, reprezentat de celulele bipolare, și neuronul al II-lea, situat mai profund, reprezentat de celulele multipolare (Figura 49). Nervul optic, chiasma și tractul optic Axonii celulelor multipolare formează nervul optic (perechea II de nervi cranieni, nerv senzorial), care iese din globul ocular prin pata oarbă. Fiecare nerv optic conține fibre de la un singur glob ocular, de aceea în desen un nerv are doar fibre roșii, iar celălalt doar fibre albastre. Cei doi nervi se întâlnesc în chiasma optică, desenată ca un X. Aici fibrele fiecărui ochi se despart: Axonii din câmpul intern al retinei (câmpul nazal) se încrucișează, formând chiasma optică, și ajung în tractul optic opus. Axonii din câmpul extern al retinei (câmpul temporal) nu se încrucișează și trec în tractul optic de aceeași parte. Astfel, fiecare tract optic conține fibre de la ambii ochi și apare în desen cu fibre de ambele culori. Hemiretina nazală și cea temporală sunt arătate în Figura 52. Corpul geniculat extern și coliculul superior Tractul optic ajunge la metatalamus, releu al sensibilităților vizuală și auditivă, și anume la corpul geniculat extern (lateral), desenat ca o mică umflătură la capătul fiecărui tract. Aici majoritatea fibrelor tractului optic fac sinapsă cu cel de al III-lea neuron. Tot la nivelul corpilor geniculați laterali începe fuziunea imaginilor venite de la cei doi ochi. Înainte de corpul geniculat, din fiecare tract se desprind în desen câteva fibre spre o formațiune mică și rotundă, coliculul superior. Coliculii cvadrigemeni superiori reglează, alături de centrii corticali, actul reflex al acomodării: prin nucleul vegetativ parasimpatic anexat nervului oculomotor din mezencefal, ei comandă contracția mușchiului ciliar, în urma căreia cristalinul se bombează. Radiațiile optice și lobul occipital Axonul celui de al III-lea neuron se îndreaptă spre scoarța cerebrală. În desen, aceste fibre pornesc în evantai din corpul geniculat extern, formând radiațiile optice, și se termină în lobul occipital, situat în partea posterioară a emisferei, în jurul scizurii calcarine. Aici se află ariile vizuale, segmentul cortical al analizatorului: Aria vizuală primară se întinde mai ales pe fața medială a lobilor occipitali, de o parte și de alta a scizurii calcarine (Figura 35). Extirparea ei determină orbirea. Ariile vizuale secundare sau asociative se află în jurul ariei primare. Distrugerea lor produce afazia vizuală: bolnavul vede literele scrise, dar nu înțelege semnificația cuvintelor citite. Fiecărui punct de pe retină îi corespunde un punct specific de proiecție corticală, iar cea mai întinsă reprezentare în aria vizuală primară o are macula, în regiunea posterioară a lobului occipital. În ariile vizuale se realizează senzația și percepția vizuală: stimulii electrici porniți de la celulele fotoreceptoare devin senzație de lumină, culoare și formă.

Fig. 52 · Biologie Corint · p. 48
Câmpul vizual monocular și cele două hemiretineFigura arată câmpul vizual monocular, adică spațiul cuprins cu privirea de un singur ochi, și felul în care imaginea lui se împarte pe cele două jumătăți ale retinei. Se citește de sus în jos. Sus sunt două benzi, câte una pentru fiecare ochi, fiecare împărțită în două jumătăți colorate diferit. Din cele două capete ale fiecărei benzi și din punctul în care se întâlnesc jumătățile ei coboară câte o linie, iar cele trei linii se strâng în fața globului ocular de dedesubt. Ele arată drumul luminii din fiecare parte a câmpului spre ochi. Jos este o secțiune orizontală prin cap, cu cei doi globi oculari, partea din față a creierului și fibrele care pleacă din retine. Cele două hemiretine Retina fiecărui ochi are două jumătăți, numite hemiretine, iar desenul le arată pe amândouă la fiecare ochi: Hemiretina nazală este jumătatea dinspre nas, pe partea globului ocular orientată spre mijlocul desenului. În text, manualul o numește câmpul intern al retinei (câmpul nazal). Hemiretina temporală este jumătatea dinspre tâmplă, pe partea orientată spre marginea desenului. Manualul o numește câmpul extern al retinei (câmpul temporal). Din fiecare hemiretină pleacă o bandă de fibre. Fibrele sunt axonii celulelor multipolare, care reprezintă al doilea neuron al căii optice și se află tot în retină (Figura 49). La fiecare ochi, cele două benzi se alătură și formează nervul optic, care iese prin partea posterioară a globului ocular. De aceea un nerv optic conține fibre de la un singur glob ocular. Cei doi nervi optici se îndreaptă apoi spre mijlocul desenului, spre chiasma optică. Unde cade fiecare jumătate a câmpului Aparatul dioptric al ochiului formează pe retină o imagine reală, mai mică și răsturnată. În secțiunea orizontală din desen, asta înseamnă că partea stângă a câmpului unui ochi ajunge pe partea dreaptă a retinei lui, iar partea dreaptă pe partea stângă. Desenul arată potrivirea prin culori: fiecare jumătate de bandă are culoarea hemiretinei pe care cade. La ochiul din stânga, jumătatea stângă a câmpului, cea dinspre tâmplă, cade pe hemiretina nazală, iar jumătatea dreaptă, cea dinspre nas, cade pe hemiretina temporală. La ochiul din dreapta, jumătatea stângă a câmpului este cea dinspre nas și cade pe hemiretina temporală, iar jumătatea dreaptă, dinspre tâmplă, cade pe hemiretina nazală. Regula este aceeași la ambii ochi: hemiretina nazală primește jumătatea dinspre tâmplă a câmpului, iar hemiretina temporală, jumătatea dinspre nas. Culorile urmăresc jumătățile câmpului, nu tipul de hemiretină. De aceea, aceeași hemiretină și fibrele ei au culori diferite la cei doi ochi. De ce contează împărțirea Fibrele celor două hemiretine nu merg pe același drum: axonii neuronilor multipolari din hemiretina nazală se încrucișează, formând chiasma optică, apoi trec în tractul optic de partea opusă, axonii din hemiretina temporală nu se încrucișează și rămân în tractul optic de aceeași parte. Astfel, fiecare tract optic primește fibre de la ambii ochi. Dacă aplici regula pe culorile din desen, rezultă că fibrele colorate la fel, care poartă imaginea aceleiași jumătăți a câmpului, ajung împreună în același tract optic. Tractul optic ajunge la corpul geniculat extern (lateral) din metatalamus, unde majoritatea fibrelor fac sinapsă cu al treilea neuron, al cărui axon se termină în lobul occipital, în jurul scizurii calcarine. Tot drumul este desenat în Figura 51. Câmpul monocular și câmpul binocular Câmpul vizual al fiecărui ochi cuprinde un unghi de cca 160° în plan orizontal și cca 145° în plan vertical. În figură, câmpurile celor doi ochi sunt desenate ca două benzi separate, dar câmpul unui ochi se suprapune în mare parte cu al celuilalt. Partea lor comună este câmpul vizual binocular, care apare tot în Figura 51. Un obiect aflat în câmpul binocular formează câte o imagine pe retina fiecărui ochi. Cele două imagini fuzionează pe scoarță într-o imagine unică, dar numai dacă s-au format în puncte corespondente ale retinelor. Fuziunea începe la nivelul corpilor geniculați laterali. Datorită vederii binoculare avem vedere în profunzime, adică vedere stereoscopică.
Fig. 53 · Biologie Corint · p. 50
Urechea: externă, medie și internăFigura este o secțiune prin ureche în care cele trei părți ale ei se succed de la stânga la dreapta, chiar în ordinea în care le parcurge sunetul: urechea externă, deschisă spre exterior, urechea medie, cu lanțul de oscioare, și urechea internă, cu labirintul și cei doi nervi care pleacă din el spre dreapta. Stânga desenului corespunde deci părții laterale, iar dreapta, celei mediale, lucru util când manualul vorbește despre pereții urechii medii. Analizatorul acustic și cel vestibular se află în urechea internă. Urechea externă și cea medie sunt anexe a căror dezvoltare a fost determinată de perfecționarea aparatului acustic și care nu au nicio legătură cu aparatul vestibular. Urechea externă Cuprinde pavilionul urechii, care captează sunetele și le dirijează spre conductul auditiv extern, canalul la capătul căruia se află timpanul. Urechea medie Este o cavitate pneumatică săpată în stânca temporalului, casa timpanului, care în desen ocupă spațiul dintre timpan și labirint. Pereții ei se recunosc ușor: Peretele lateral este reprezentat de timpan, membrana de la capătul conductului auditiv extern. Peretele medial prezintă fereastra ovală și fereastra rotundă. În figură este numerotată doar fereastra ovală. La nivelul peretelui anterior se deschide trompa lui Eustachio, tubul care coboară din casa timpanului. Prin ea, casa timpanului comunică cu nazofaringele, ceea ce egalizează presiunea pe ambele fețe ale timpanului. În casa timpanului se află un lanț articulat de trei oscioare: ciocanul (lângă timpan), nicovala (la mijloc) și scărița (în dreptul ferestrei ovale). Ciocanul și scărița au câte un mușchi. Mușchiul ciocanului diminuează vibrațiile sonore puternice, iar mușchiul scăriței le amplifică pe cele slabe, reglând astfel intensitatea undei sonore. Urechea internă Este formată dintr-un sistem de încăperi săpate tot în stânca temporalului, numit labirint osos, în interiorul căruia se află labirintul membranos. Între cele două se găsește perilimfa. Ambele labirinturi au aceleași trei părți, pe care le poți recunoaște în desen: Canalele semicirculare sunt buclele din partea de sus. Cele trei canale se află în planuri perpendiculare unul pe celălalt, iar fiecare are la un capăt o dilatație mai largă, numită ampulă. Canalele osoase se deschid în vestibul, iar cele membranoase, în utriculă. Vestibulul este porțiunea centrală, în care se deschid canalele. Vestibulul membranos are două cavități: utricula, în partea superioară, și sacula, sub utriculă. Melcul este porțiunea rotunjită din dreapta, situată anterior de vestibul. Melcul osos are formă conică și face 2½ ture în jurul unui ax osos central, columela. Membrana bazilară și membrana vestibulară Reissner îi împart interiorul în rampa vestibulară și rampa timpanică, cu perilimfă, și canalul cohlear, cu endolimfă. Canalul cohlear pornește din partea inferioară a saculei și conține organul Corti (Figura 54). Fiecare parte are receptorii ei. Receptorii acustici se află în organul Corti, din melc. Maculele din utriculă și saculă (Figura 56) informează asupra poziției capului și detectează accelerația, orizontală în cazul utriculei și verticală în cazul saculei. Crestele ampulare, din ampulele canalelor semicirculare membranoase, sunt responsabile de menținerea echilibrului în accelerările circulare ale capului și corpului. Orientarea canalelor în cele trei planuri ale spațiului (frontal, orizontal și sagital) face posibilă recepționarea mișcărilor circulare ale capului. Cei doi nervi Din urechea internă pleacă spre dreapta câte un nerv pentru fiecare analizator: Nervul cohlear (acustic) are pe traiect ganglionul spiral Corti, cu primul neuron al căii acustice. Dendritele acestuia ajung la celulele auditive cu cili din organul Corti, iar axonii formează nervul, care se îndreaptă spre nucleii cohleari din punte (Figura 55). Nervul vestibular are pe traiect ganglionul vestibular Scarpa, cu primul neuron al căii vestibulare. Dendritele acestuia ajung la celulele senzoriale cu cili din macule și din crestele ampulare, iar axonii formează nervul, care se îndreaptă spre nucleii vestibulari din bulb. Cei doi nervi se unesc și formează perechea VIII de nervi cranieni, nervii vestibulocohleari, care sunt nervi senzoriali. Drumul sunetului Pavilionul urechii captează sunetele și le dirijează spre conductul auditiv extern. La capătul conductului, unda sonoră pune în vibrație timpanul. Timpanul antrenează lanțul celor trei oscioare. Unda este transmisă mai departe, succesiv, ferestrei ovale, perilimfei și endolimfei. Variațiile de presiune ale endolimfei fac să vibreze membrana bazilară, pe care se află organul Corti. Celulele senzoriale ale acestuia transformă energia mecanică a sunetelor în impuls nervos, preluat de nervul cohlear. Perforațiile timpanului nu duc la surditate, ci doar la o scădere a acuității auditive a urechii respective.

Fig. 54 · Biologie Corint · p. 50
Organul Corti și compartimentele melculuiFigura arată organul Corti, care conține receptorii acustici, la două niveluri de mărire. Desenul de sus (a) este o secțiune printr-o tură a melcului, cu cele trei compartimente ale acestuia. Dreptunghiul încadrează organul Corti, iar în desenul de jos (b) același organ apare mărit: se văd celulele auditive, membranele între care stau acestea și fibrele nervoase care ajung la ele. (a) Cele trei compartimente ale melcului Melcul osos face 2½ ture în jurul unui ax osos central, columela, pe care se prinde lama spirală osoasă. Lama este întregită de membrana bazilară și de membrana vestibulară Reissner, iar aceste două membrane împart lumenul osos al melcului în trei compartimente, pe care desenul le arată de sus în jos: Rampa vestibulară, cavitatea mare de sus, situată deasupra membranei vestibulare. Canalul cohlear (melcul membranos, numit în legenda figurii și „ductul cohlear”), cavitatea mai mică din dreapta, cuprinsă între membrana bazilară, membrana vestibulară și peretele extern al melcului osos. Rampa timpanică, cavitatea de jos, situată sub membrana bazilară. Așadar, membrana vestibulară desparte rampa vestibulară de canalul cohlear, iar membrana bazilară desparte canalul cohlear de rampa timpanică. Rampele vestibulară și timpanică conțin perilimfă. Canalul cohlear, care pornește din partea inferioară a saculei, conține endolimfă. Spre vârful melcului, lama spirală lasă un spațiu liber, helicotrema. Întregul melc, la locul lui în urechea internă, se vede în Figura 53. Din stânga pătrunde nervul vestibulo-cohlear, care se îndreaptă printre cele două rampe spre organul Corti. Perechea a VIII-a de nervi cranieni este un nerv senzorial, format dintr-o componentă vestibulară și una cohleară. Impulsurile pornite din organul Corti circulă pe ramura cohleară, care are pe traiect ganglionul spiral Corti. (b) Organul Corti mărit Organul Corti este așezat pe membrana bazilară, care formează stratul de la baza desenului. În centrul lui se găsește un spațiu triunghiular, tunelul Corti. Pe laturile tunelului se află celule de susținere, iar deasupra acestora stau celulele auditive, pe care legenda le numește celule ciliate: Celulele ciliate interne se află în stânga tunelului, de partea pe unde intră fibrele nervoase. Celulele ciliate externe se află în dreapta tunelului și formează un grup mai mare. Fiecare celulă auditivă are doi poli, legați de structuri diferite: Polul apical poartă cilii auditivi, care pătrund în membrana reticulată, secretată de celulele de susținere. Deasupra cililor se află membrana tectoria, care se întinde peste celulele ciliate. Polul bazal primește terminații dendritice ale neuronilor din ganglionul spiral Corti. Acestea sunt fibrele nervoase din desen, care vin din stânga jos, iar unele dintre ele traversează tunelul Corti. Cum se naște impulsul auditiv Unda sonoră ajunge, pe rând, la fereastra ovală, la perilimfă și apoi la endolimfă. Când presiunea endolimfei variază, membrana bazilară vibrează și antrenează celulele auditive așezate pe ea. Cilii acestora intră în contact cu membrana tectoria și suferă deformații mecanice: Depolarizarea: înclinarea cililor într-o parte depolarizează celulele, iar depolarizările cresc frecvența potențialelor de acțiune. Hiperpolarizarea: înclinarea cililor în direcția opusă hiperpolarizează celulele, iar hiperpolarizările reduc frecvența potențialelor de acțiune. Astfel, celulele senzoriale ale organului Corti transformă energia mecanică a sunetelor în impuls nervos. Membrana bazilară și frecvența sunetelor Membrana bazilară are o structură comparabilă cu un rezonator cu coarde, cu particularități proprii de elasticitate și de rezonanță: Baza melcului intră în rezonanță cu sunetele de frecvență înaltă (15 000 Hz). Mijlocul membranei bazilare rezonează cu frecvențele medii (5 000 Hz). Vârful melcului rezonează cu frecvențele joase (20-500 Hz). Fiecare neuron din ganglionul spiral Corti transmite impulsuri de la o anumită zonă a membranei bazilare, iar această specializare se păstrează și în celelalte stații de releu ale căii acustice. Așa ajung excitațiile sonore, separate în frecvențele lor componente, prin „fire izolate” până la neuronii corticali. Mai departe, pe calea acustică Neuronii din ganglionul spiral Corti sunt primii neuroni ai căii acustice. Dendritele lor sunt fibrele nervoase din desenul (b), iar axonii lor formează nervul cohlear, care se îndreaptă spre nucleii cohleari din punte. Drumul complet al impulsurilor, până la cortexul auditiv din girul temporal superior, este desenat în Figura 55.

Fig. 55 · Biologie Corint · p. 51
Căile de conducere ale analizatorului auditivFigura prezintă segmentul intermediar (de conducere) al analizatorului auditiv, adică drumul impulsului nervos de la organul Corti până la scoarța cerebrală. Este alcătuită din trei secțiuni așezate una sub alta și se citește de jos în sus: jos, o secțiune prin punte, în care intră nervul venit „de la organul Corti”, deasupra ei una prin mezencefal, iar sus una prin emisferele cerebrale, cu talamusul la mijloc și cu cortexul auditiv în lobul temporal, de fiecare parte. Puntea și mezencefalul sunt două dintre cele trei etaje ale trunchiului cerebral, alături de bulb. În realitate, aceste regiuni nu sunt despărțite, ci se continuă una cu alta, așa cum arată secțiunea sagitală din Figura 33. Liniile care urcă de la o secțiune la alta reprezintă fibrele căii. Cei patru neuroni ai căii acustice Primul neuron se află în ganglionul spiral Corti, de pe traiectul nervului cohlear. Dendritele lui ajung la polul bazal al celulelor auditive cu cili din organul Corti (Figura 54), iar axonii formează nervul cohlear. Acesta se unește cu nervul vestibular și formează perechea VIII de nervi cranieni, nervul vestibulo-cohlear, un nerv senzorial care conduce excitații statoacustice. Ganglionul nu este desenat: figura pornește de la nerv, în dreapta jos. Al II-lea neuron se găsește în cei doi nuclei cohleari, ventral și dorsal, din punte. În desen, fibrele nervului se termină în două formațiuni rotunde alăturate, pe partea pe care intră nervul, iar figura o marchează pe una dintre ele ca nucleul cohlear. Axonul neuronului al II-lea se încrucișează, după care urmează un traiect ascendent spre coliculul inferior. Al III-lea neuron se află în coliculul inferior, desenat în partea de sus a secțiunii prin mezencefal. Fibrele ascendente străbat mezencefalul până la el. Al IV-lea neuron se găsește în corpul geniculat medial din metatalamus, desenat ca o formațiune rotundă la baza talamusului, de fiecare parte. El primește fibrele urcate de la coliculul inferior, iar axonul lui se proiectează în girul temporal superior. Talamusul și metatalamusul Talamusul apare în desen, dar calea acustică nu face releu în el. Manualul arată că talamusul este releu (întrerupere sinaptică) pentru toate sensibilitățile, cu excepția celor olfactive, vizuale și auditive, în timp ce metatalamusul este releu al sensibilităților vizuală și auditivă. De aceea, al IV-lea neuron al căii se află în corpul geniculat medial din metatalamus, și nu în talamus. Încrucișarea fibrelor Nervul intră în punte pe o singură parte, în dreapta desenului. Cele mai multe fibre pornite din nucleii cohleari traversează puntea spre partea opusă și abia apoi urcă, dar o fibră urcă pe aceeași parte. Drumul continuă de ambele părți prin coliculul inferior și corpul geniculat medial, așa că, în figură, impulsurile venite de la un singur organ Corti ajung la cortexul auditiv din ambele emisfere, cele mai multe în emisfera opusă. Segmentul central Calea se termină în segmentul central al analizatorului, aria din scoarța cerebrală la care ajunge calea de conducere și în care impulsurile sunt transformate în senzații specifice. Pentru analizatorul auditiv, acesta este cortexul auditiv din lobul temporal, lobul aflat sub fisura laterală (Figura 34). Axonii neuronilor din corpul geniculat medial se proiectează în girul temporal superior, iar în jurul ariei primare se află aria secundară sau de asociație, care primește aferențe de la aria primară. Fire izolate pentru fiecare frecvență Membrana bazilară, pe care se află organul Corti, are o structură comparabilă cu un rezonator cu coarde: baza melcului intră în rezonanță cu sunetele de frecvență înaltă (15 000 Hz), mijlocul membranei bazilare cu frecvențele medii (5 000 Hz), iar vârful melcului cu frecvențele joase (între 20 și 500 Hz). Fiecare neuron senzitiv din ganglionul spiral Corti transmite impulsuri nervoase de la o anumită zonă a membranei bazilare, iar această specializare zonală se păstrează și la celelalte stații de releu ale căii: sunetele de o anumită frecvență activează anumiți neuroni cohleari, coliculari și metatalamici. Astfel, excitațiile sonore, separate în frecvențele componente la nivelul membranei bazilare, ajung prin „fire izolate” la neuronii corticali. Localizarea sursei sonore În continuarea textului despre transmiterea stimulului auditiv, manualul precizează că direcția din care vine un sunet se identifică prin două mecanisme principale: detectarea decalajului în timp dintre semnalele acustice care intră în cele două urechi și diferența de intensitate a sunetului care ajunge la cele două urechi.

Fig. 56 · Biologie Corint · p. 52
Membrana otolitică și otolitele: receptorul macularFigura arată receptorul macular, tipul de receptor vestibular din utriculă și saculă, prin care creierul este informat despre poziția capului și despre accelerările liniare la care acesta este supus. Același receptor este desenat de două ori. În panoul (a), capul este în poziție verticală: celulele formează un rând orizontal, cu masa gelatinoasă și otolitele deasupra. În panoul (b), capul este aplecat înainte, iar receptorul apare rotit cu un sfert de cerc: celulele sunt în stânga, masa gelatinoasă în dreapta, iar săgeata de alături arată direcția forței gravitaționale, de sus în jos. Compară panourile și urmărește cum se schimbă, odată cu poziția capului, direcția în care otolitele apasă asupra cililor. Cum este alcătuit receptorul macular Receptorii vestibulari sunt situați în labirintul membranos. Vestibulul membranos are două cavități, utricula, în partea lui superioară, și sacula, sub utriculă, iar în fiecare se găsește câte o maculă, utriculară, respectiv saculară. Urechea internă, cu vestibulul și canalele semicirculare, este desenată în Figura 53. În panoul (a) se văd toate componentele maculei: Celulele de susținere sunt așezate pe o membrană bazală. În desen sunt celulele fără cili din partea de jos a rândului și de la capătul lui din dreapta. Celulele ciliate, numite în text celule senzoriale cu cili, sunt dispuse peste celulele de susținere. Sunt celulele alungite din partea de sus a rândului, fiecare cu un smoc de cili la vârf. Fibrele senzoriale sunt dendrite ale neuronilor din ganglionul vestibular Scarpa, care sosesc la polul bazal al celulelor senzoriale. Intră ca un mănunchi în stânga jos și se ramifică spre baza celulelor ciliate. În ganglionul Scarpa se află primul neuron al căii vestibulare, ai cărui axoni formează ramura vestibulară a perechii a VIII-a de nervi cranieni (nervul vestibulo-cohlear). Membrana otolitică este masa gelatinoasă de deasupra celulelor, în care sunt înglobați cilii. Legenda figurii o numește „cupolă gelatinoasă”. Otolitele sunt granule de carbonat de calciu și magneziu aflate în membrana otolitică. În panoul (a) sunt înșirate pe fața ei de sus, iar în (b), pe marginea din dreapta. Poziția capului: situația din cele două panouri Receptorii maculari sunt stimulați mecanic de către otolite, atât în condiții statice, cât și dinamice. Panourile arată situația statică. Când capul stă nemișcat, otolitele apasă prin greutatea lor asupra cililor celulelor senzoriale, iar acestea trimit impulsuri spre centri, informându-i asupra poziției capului în raport cu direcția vectorului gravitațional. (a) Capul în poziție verticală: greutatea otolitelor apasă membrana otolitică de sus în jos, spre cili, iar cilii stau drepți. (b) Capul aplecat înainte: receptorul s-a rotit, așa că forța gravitațională acționează acum de-a lungul rândului de celule, iar cilii apar înclinați în sensul săgeții. Otolitele apasă asupra cililor în altă direcție, deci centrii primesc altă informație despre poziția capului. Accelerările liniare Când capul și corpul suferă accelerări liniare (înainte, înapoi sau lateral), forțele de inerție împing otolitele, care sunt mai dense decât endolimfa, în sens opus deplasării. Astfel se declanșează, la nivelul centrilor nervoși, reacții motorii care corectează poziția corpului și a capului, pentru ca echilibrul să se mențină pe toată durata mișcării. Reține că receptorii maculari nu detectează viteza de deplasare a corpului, respectiv a capului, ci accelerația: cei din utriculă accelerația orizontală, iar cei din saculă pe cea verticală. Legătura cu crestele ampulare Receptorii otolitici nu participă la menținerea echilibrului în condițiile accelerărilor circulare ale capului și corpului. De acestea răspund crestele ampulare cu cupolele gelatinoase, de la baza canalelor semicirculare, al doilea organ receptor al analizatorului vestibular. Manualul trimite la această figură și când le explică: la rotația capului sau a corpului, endolimfa din canalele semicirculare aflate în planul rotației suferă, din cauza inerției, o deplasare relativă în sens opus și înclină cupola în sensul acestei deplasări, excitând mecanic cilii celulelor senzoriale.
- 3Glandele endocrinePaginile 54 - 61
Fig. 57 · Biologie Corint · p. 54
Glandele endocrine și localizarea lor în corpFigura arată unde se află, în corp, glandele endocrine (glandele cu secreție internă). Trunchiul este văzut din față, iar capul este întors din profil, cu fața spre stânga, și deschis printr-o secțiune care lasă să se vadă formațiunile de la baza encefalului. Desenul folosește un corp de bărbat, de aceea ovarul este arătat separat, în chenarul din stânga jos, alături de uter și de trompele uterine. Glandele cu secreție internă sunt formate din epitelii secretorii, ale căror celule produc substanțe active, numite hormoni, pe care îi eliberează direct în sânge. Hormonii sunt substanțe chimice specifice, care acționează la distanță de locul sintezei și produc efecte caracteristice. Sângele îi transportă spre toate celulele corpului, iar principalul rol al glandelor endocrine constă în reglarea metabolismului celular. Întregul sistem endocrin, controlat de sistemul nervos, reglează și coordonează pe cale umorală activitatea diferitelor organe. Capul Tot ce apare mai la dreapta în secțiune se află mai în spate. Se văd trei formațiuni apropiate, aceleași pe care le arată, mai mari, secțiunea sagitală a diencefalului din Figura 33: Hipotalamusul face parte din diencefal și este centrul superior de integrare, reglare și coordonare ale principalelor funcții ale organismului, printre care și secreția endocrină. Unii dintre neuronii lui au și activitate secretorie, proces numit neurosecreție, care reprezintă tot o funcție endocrină. Prin legături vasculare și nervoase și prin produșii de neurosecreție, hipotalamusul controlează secreția hipofizei și, prin intermediul ei, coordonează activitatea întregului sistem endocrin (Figura 58). Hipofiza (glanda pituitară) stă dedesubt, la baza encefalului, înapoia chiasmei optice, pe șaua turcească a osului sfenoid, legată de hipotalamus prin tija pituitară. Hormonii glandulotropi ai adenohipofizei (ACTH, TSH, FSH, LH) au ca organe-țintă alte glande din figură: corticosuprarenala, tiroida și gonadele. Glanda pineală (epifiza) se află mai în spate, între tuberculii cvadrigemeni superiori, și intră în componența epitalamusului. Secretă melatonina, cu acțiune frenatoare asupra funcției gonadelor. Gâtul și toracele În zona anterioară a gâtului, sub laringe, se află tiroida, cu doi lobi laterali uniți prin istmul tiroidian. Ea secretă hormonii tiroidieni, tiroxina și triiodotironina. Cele patru paratiroide, glande mici care secretă parathormonul, stau câte două pe fața posterioară a lobilor tiroidieni. Cum sunt ascunse în spatele tiroidei, figura le indică împreună cu ea. Mai jos, în partea de sus a toracelui, pe linia mediană, este desenat timusul, care are localizare retrosternală. Este o glandă cu structură mixtă, de epiteliu secretor și organ limfatic, cu rol de glandă endocrină în prima parte a ontogenezei, până la pubertate. Abdomenul Cei doi rinichi, desenați fără număr, ajută la găsirea glandelor suprarenale: la polul superior al fiecăruia stă, ca o căciulă, câte o suprarenală (Figura 59). Fiecare are o porțiune corticală, care secretă mineralocorticoizi, glucocorticoizi și hormoni sexosteroizi, și una medulară, care secretă adrenalină și noradrenalină. Transversal, între cei doi rinichi și parțial peste unul dintre ei, se întinde pancreasul. Manualul trece printre glandele endocrine pancreasul insular, adică insulele Langerhans (Figura 61), ale căror celule α secretă glucagon, iar celulele β, insulină. Gonadele Testiculul și ovarul sunt organe pereche cu două funcții: formează celulele sexuale și secretă hormoni. Testiculul, situat în bursa scrotală, este desenat la baza trunchiului. Celulele lui interstițiale secretă hormonii androgeni (testosteronul). Ovarul, situat în cavitatea pelviană, apare în chenar lângă uter, sub trompa uterină. Secretă estrogeni și progesteron. Amândouă sunt organe-țintă ale hormonilor gonadotropi (FSH și LH) secretați de adenohipofiză. Lista glandelor endocrine Manualul consideră glande endocrine: hipofiza, suprarenalele, tiroida, paratiroidele, testiculul, ovarul, pancreasul insular, timusul, epifiza și, temporar, placenta. Figura le indică pe toate, în afară de placentă, și adaugă hipotalamusul, care nu face parte din listă. Și alte organe au, pe lângă funcția lor principală, celule cu rol endocrin: antrul piloric secretă gastrina, duodenul secretă 6-8 hormoni cu rol în reglarea activității secretorii și motorii a aparatului digestiv, iar rinichiul secretă renina și eritropoietina. Dintre ele, în desen apar doar rinichii, și aceștia doar ca reper pentru suprarenale.
Fig. 58 · Biologie Corint · p. 55
Legăturile nervoase și vasculare hipotalamo-hipofizareFigura arată cum este legată hipofiza de hipotalamus. Între cele două organe există relații anatomice și funcționale, iar desenul pune alături cele două căi care le unesc: o legătură nervoasă și una vasculară. Cel mai ușor se citește de sus în jos. Sus se află baza hipotalamusului, cu corpurile neuronilor secretori, desenate ca niște stele. Sub ea coboară tija pituitară, de care atârnă hipofiza. În stânga glandei se află adenohipofiza, străbătută de o rețea deasă de vase, iar în dreapta, neurohipofiza, în care intră fibrele nervoase. Hipofiza este localizată la baza encefalului, înapoia chiasmei optice, pe șaua turcească a osului sfenoid, iar hipotalamusul face parte din diencefal. Locul lor în encefal se vede în secțiunea sagitală din Figura 33. Figura de față mărește tocmai zona în care cele două se întâlnesc. Legătura nervoasă Unii neuroni hipotalamici au activitate secretorie, proces numit neurosecreție, care reprezintă tot o funcție endocrină. În desen, corpurile acestor neuroni stau în masa hipotalamusului, iar axonii lor coboară, strânși în mănunchi, spre baza lui. De acolo, fibrele intră în tija pituitară și ajung în lobul posterior. Așa arată tractul nervos hipotalamo-hipofizar, care leagă hipotalamusul anterior de neurohipofiză. Neurohipofiza eliberează în circulație doi hormoni, vasopresina (hormonul antidiuretic, ADH) și oxitocina. Ei sunt secretați însă în hipotalamusul anterior, iar punerea lor în circulație se face sub influența hipotalamusului, prin tija pituitară. Legătura vasculară Între regiunea mediană a hipotalamusului și adenohipofiză există o legătură vasculară, reprezentată de sistemul port-hipotalamo-hipofizar, descris de anatomistul român Grigore T. Popa împreună cu Unna Fielding. Drumul vaselor se urmărește în desen tot de sus în jos: Artera hipofizară superioară pătrunde din stânga și urcă spre partea de sus a tijei pituitare, pe care o înconjoară cu ramurile ei. În regiunea mediană se formează o primă rețea de capilare, chiar acolo unde se strâng axonii neuronilor secretori. Din această rețea, vasele coboară de-a lungul tijei spre adenohipofiză. În adenohipofiză, ele se desfac într-o a doua rețea de capilare, mult mai deasă, care umple aproape tot lobul. Cele două rețele de capilare, unite prin vasele tijei, sunt așadar capetele legăturii vasculare dintre hipotalamus și adenohipofiză. Lobii hipofizei Hipofiza (glanda pituitară) este alcătuită din trei lobi: anterior, mijlociu (intermediar) și posterior. Lobul anterior și cel intermediar constituie adenohipofiza, iar lobul posterior, neurohipofiza. Adenohipofiza este situată în partea anterioară, dar se întinde și posterior, înconjurând aproape complet neurohipofiza. Lobul anterior este partea cea mai dezvoltată a glandei, constituind 75 % din masa hipofizei. Hormonii adenohipofizei sunt glandulotropi, având ca organe-țintă alte glande endocrine (ACTH, TSH, FSH, LH), și non-glandulotropi (STH, prolactina). Lobul intermediar reprezintă numai 2 % din masa hipofizei, fiind redus la o simplă lamă epitelială, aderentă de lobul posterior. În desen apare ca o fâșie subțire între cei doi lobi mari. Anatomic face parte din adenohipofiză și secretă hormonul melanocitostimulant (MSH), a cărui secreție este inhibată de un hormon secretat de hipotalamus. Neurohipofiza este lobul posterior, cel în care ajung fibrele tractului hipotalamo-hipofizar. Ea eliberează în circulație vasopresina și oxitocina, secretate în hipotalamusul anterior. Controlul întregului sistem endocrin Prin aceste legături vasculare și nervoase și prin produșii de neurosecreție, hipotalamusul controlează și reglează secreția hipofizei, iar prin intermediul acesteia coordonează activitatea întregului sistem endocrin, ale cărui glande sunt arătate în Figura 57. De altfel, la diencefal, manualul descrie hipotalamusul drept centru superior de integrare, reglare și coordonare ale principalelor funcții ale organismului, printre care și secreția endocrină.
Fig. 59 · Biologie Corint · p. 56
Structura glandei suprarenale: corticala și medularaFigura arată glanda suprarenală în trei trepte, de la organul întreg la o porțiune din el mărită mult. Sus, în stânga, este rinichiul, cu glanda suprarenală așezată ca o căciulă pe polul lui superior. Prima săgeată duce spre aceeași glandă, desenată mai mare și tăiată astfel încât să i se vadă interiorul: pe fața secționată se deosebesc un înveliș deschis la culoare, la periferie, și un miez mai închis, în centru. A doua săgeată duce spre panoul din dreapta, o fâșie din grosimea glandei văzută de aproape, în care straturile se succed de sus în jos, de la suprafață spre centru. Glandele suprarenale sunt glande pereche, situate la polul superior al rinichiului (Figura 57). Fiecare este formată dintr-o porțiune corticală (periferică) și una medulară, diferite din punct de vedere embriologic, anatomic și funcțional. De aceea figura le marchează separat, atât pe secțiunea prin glandă, cât și pe panoul mărit. Corticala (corticosuprarenala) Este porțiunea periferică, cea care învelește medulara. Pe panoul mărit ocupă cea mai mare parte a înălțimii, de sub fâșia subțire de la suprafață până la banda închisă la culoare de la bază. Hormonii secretați de corticosuprarenală sunt de natură lipidică, se sintetizează din colesterol, iar rolul lor este vital. După acțiunea principală pe care o exercită, ei sunt împărțiți în trei grupe: Mineralocorticoizii, cu reprezentantul principal aldosteronul, joacă rol în metabolismul sărurilor minerale. Ei determină reabsorbția $\ce{Na+}$ în schimbul $\ce{K+}$ sau $\ce{H+}$, pe care îi excretă, la nivelul tubilor uriniferi contorți distali și colectori. Glucocorticoizii, reprezentați în special de cortizon și hidrocortizon (cortizol), intervin în metabolismul intermediar: produc hiperglicemie și cresc lipoliza și catabolismul protidic în mușchii scheletici. Hormonii sexosteroizi, unii androgeni (asemănători celor secretați de testicul) și alții estrogeni (asemănători celor secretați de ovare), completează acțiunea hormonilor sexuali respectivi. Activitatea secretorie a corticalei este stimulată de hormonul adrenocorticotrop (ACTH, corticotropina) al adenohipofizei, care crește concentrația sangvină a glucocorticoizilor și a hormonilor sexosteroizi. Asupra secreției de mineralocorticoizi, efectele ACTH sunt mai reduse. Cele trei zone ale corticalei Panoul mărit arată că porțiunea corticală nu are același aspect în toată grosimea ei. Legenda figurii o împarte în trei benzi suprapuse, de la suprafață spre medulară: Zona glomerulară este banda îngustă aflată imediat sub fâșia cu fibre orizontale de la suprafață. Celulele ei apar grupate în mici grămezi rotunjite. Zona fasciculată este cea mai lată dintre cele trei și ocupă mijlocul corticalei. Celulele sunt înșirate în cordoane lungi, verticale, paralele între ele, despărțite de linii subțiri. Zona reticulată este banda cea mai profundă, la granița cu medulara. Aici cordoanele verticale se opresc, iar celulele se dispun mai neregulat. Medulara (medulosuprarenala) Este porțiunea centrală a glandei, desenată mai închis la culoare atât în miezul glandei secționate, cât și în banda de la baza panoului mărit. Anatomic și funcțional, medulara glandei suprarenale este un ganglion simpatic, ai cărui neuroni nu au prelungiri. Hormonii ei se numesc catecolamine: adrenalina (epinefrina), în proporție de 80 %, și noradrenalina (norepinefrina), în proporție de 20 %. Acțiunea lor este identică cu stimularea sistemului nervos simpatic. Legătura cu sistemul nervos se vede și în Figura 39: pe una dintre căile simpatice, glanda suprarenală stă în locul în care, pe celelalte căi, se află un ganglion. Ea primește fibra venită din măduva spinării și eliberează adrenalină și noradrenalină. Medulosuprarenala nu are inervație parasimpatică, așa că activitatea ei se reglează prin creșterea sau scăderea ratei de stimulare simpatică. Ce au în comun cele două porțiuni Deși cele două porțiuni sunt atât de diferite, secreția amândurora este stimulată în condiții de stress (stări de încordare neuropsihică, emoții, traumatisme, frig sau căldură excesivă). Acești hormoni au un rol important în reacția de adaptare a organismului în fața diferitelor agresiuni interne și externe.
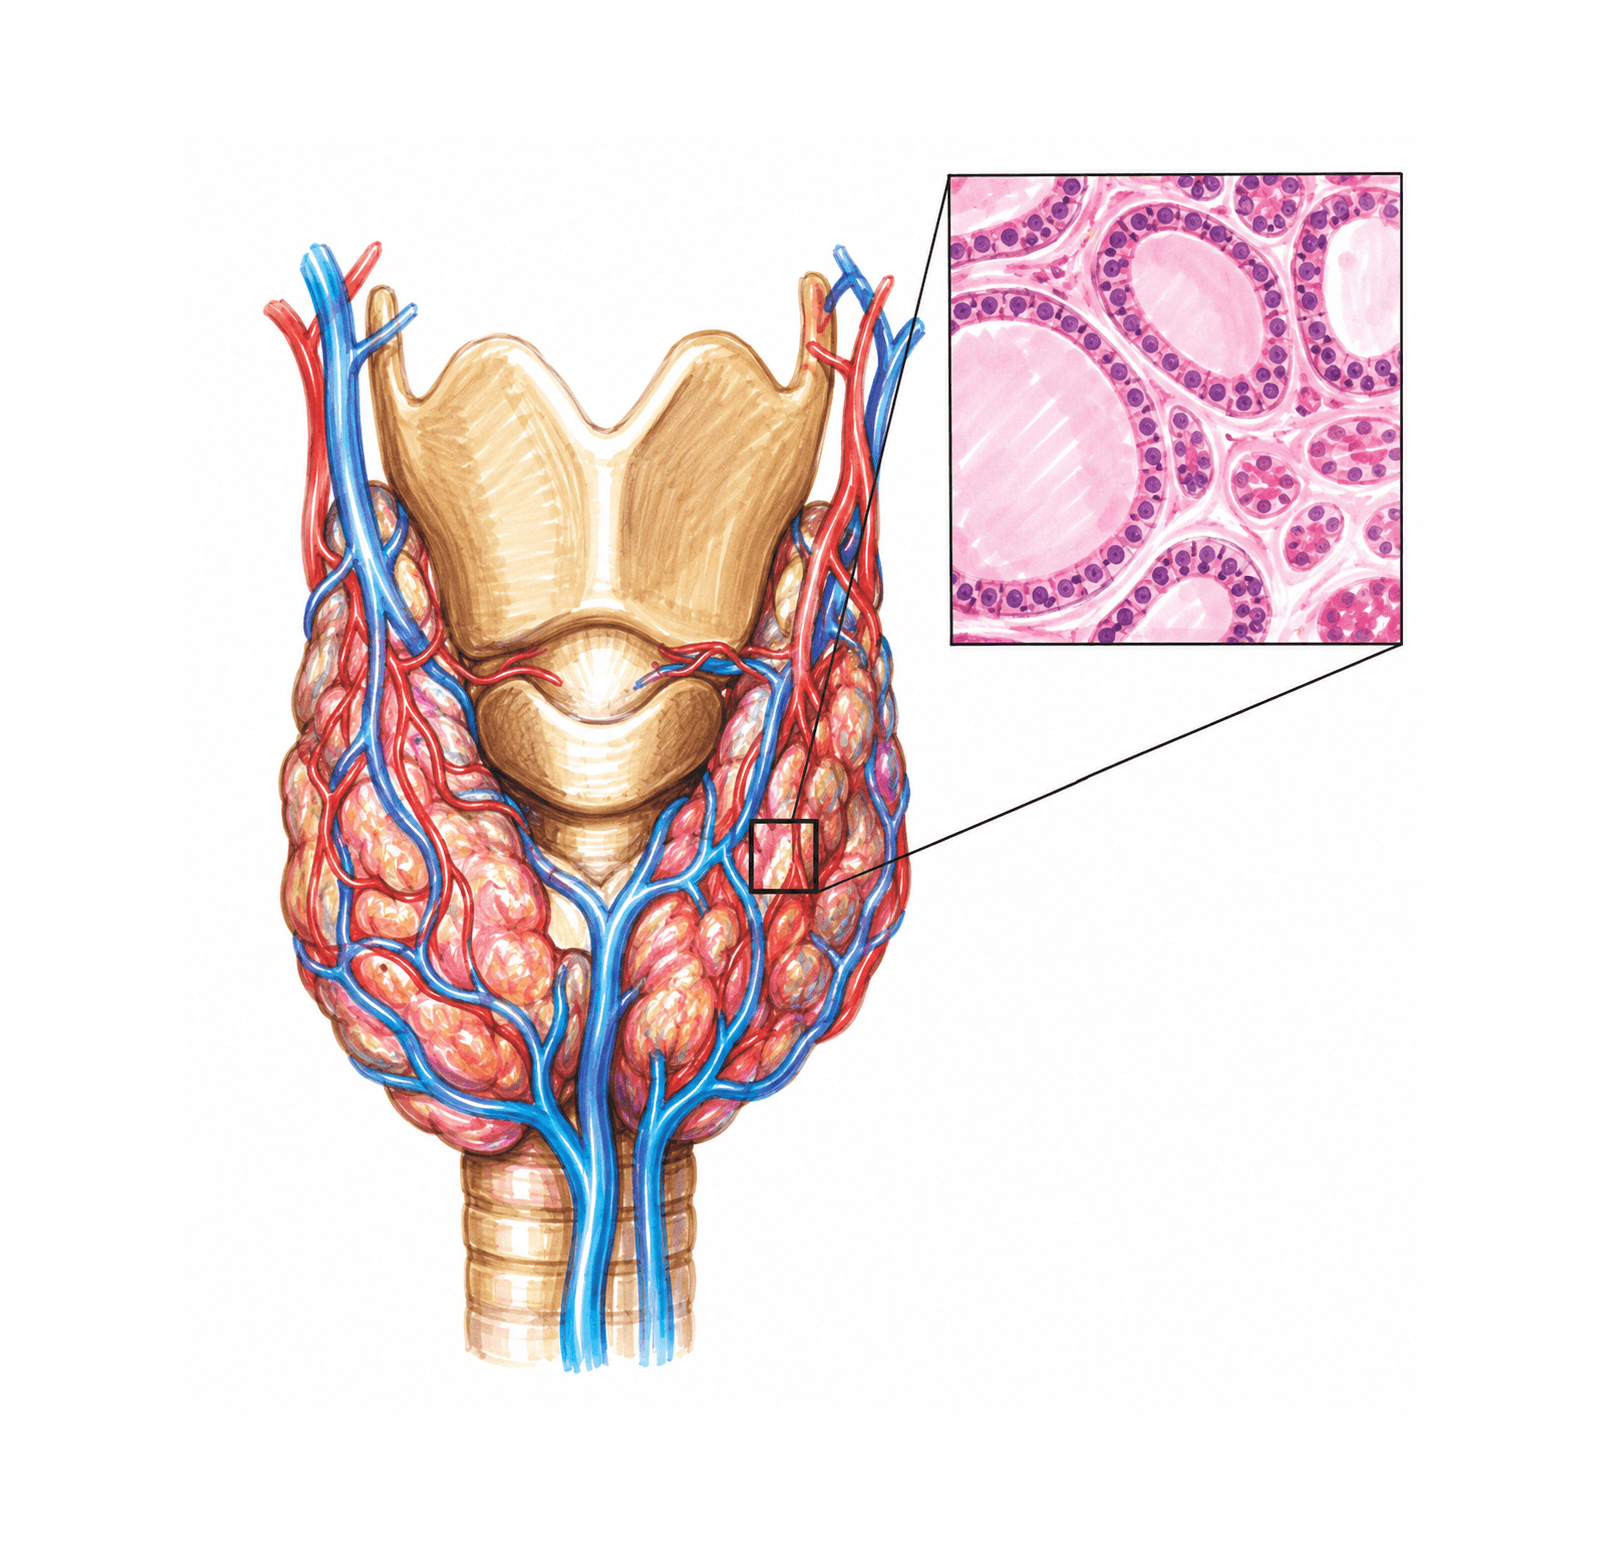
Fig. 60 · Biologie Corint · p. 58
Glanda tiroidă: vedere de ansamblu și structura foliculilorFigura arată glanda tiroidă la două scări diferite. Desenul mare este o vedere din față a laringelui, a glandei tiroide și a traheei, iar structurile lui sunt notate cu litere. Pe unul dintre lobii glandei este încadrat un pătrat mic, iar liniile care pornesc din el îl duc, mărit, în chenarul din dreapta sus: acolo se vede țesutul glandei la microscop, iar structurile din el sunt notate cu cifre. Literele arată deci unde se află glanda, iar cifrele arată din ce este ea făcută. Vederea de ansamblu Gâtul este segmentul care leagă capul de trunchi. Printre viscerele lui se află laringele, traheea și tiroida, adică tocmai cele trei organe din desen. Laringele ocupă partea de sus a desenului. Face parte din căile respiratorii și este un organ cu dublă funcție: respiratorie, dar și fonatorie, prin corzile vocale. Glanda tiroidă este localizată în zona anterioară a gâtului, într-o capsulă fibroasă (loja tiroidei). Are doi lobi laterali, uniți între ei prin istmul tiroidian. În desen, lobii se așază de o parte și de alta a laringelui și a traheei, iar istmul trece prin fața traheei. Pe suprafața glandei se ramifică o rețea bogată de vase de sânge, pe care manualul nu le numește. Traheea este un organ sub formă de tub care continuă laringele. În desen se vede sub glandă, cu aspect inelat. Cele patru paratiroide sunt situate câte două pe fața posterioară a lobilor tiroidei. Desenul arată glanda din față, așa că ele nu se văd. Locul tiroidei și al paratiroidelor printre celelalte glande endocrine ale corpului apare în Figura 57, iar laringele, tiroida și traheea se regăsesc, deasupra timusului, în Figura 62. Detaliul microscopic: foliculul tiroidian Țesutul secretor (parenchimul glandular) este format din celule epiteliale organizate în foliculi. În chenar, foliculii apar secționați, ca niște inele de mărimi diferite, și fiecare are două componente: Celulele foliculare formează inelul care mărginește foliculul. Ele sintetizează tireoglobulina, o proteină. Coloidul este materialul omogen, vâscos, închis în interiorul inelului. Conține tireoglobulina, forma de depozit a hormonilor tiroidieni. Prin iodarea moleculelor de tirozină din structura tireoglobulinei rezultă hormonii tiroidieni, tiroxina și triiodotironina. Sub acțiunea TSH hipofizar (hormonul tireotrop, secretat de adenohipofiză), acești hormoni sunt sintetizați și eliberați din coloid în sânge. Secreția tiroidei este reglată printr-un mecanism de feedback hipotalamo-hipofizo-tiroidian. Între foliculii tiroidieni se găsesc celule speciale, diferite de restul epiteliului glandular, numite celule parafoliculare sau celule „C”. Desenul nu le marchează. Ele secretă calcitonina, un hormon hipocalcemiant, care ajută la fixarea $\ce{Ca^2+}$ în oase. Secreția de calcitonină este declanșată de hipercalcemie. Ce fac hormonii produși aici Hormonii tiroidieni cresc metabolismul bazal și consumul de energie și au un rol în procesele morfogenetice, de creștere și diferențiere celulară și tisulară, acțiune care se manifestă foarte pregnant la nivelul sistemului nervos. Pe sisteme și organe, ei cresc forța și frecvența contracțiilor cardiace și produc vasodilatație, cresc tonusul și forța de contracție a mușchilor scheletici, cresc amplitudinea și frecvența mișcărilor respiratorii și stimulează diferențierea neuronală, dezvoltarea normală a sinapselor și mielinizarea.
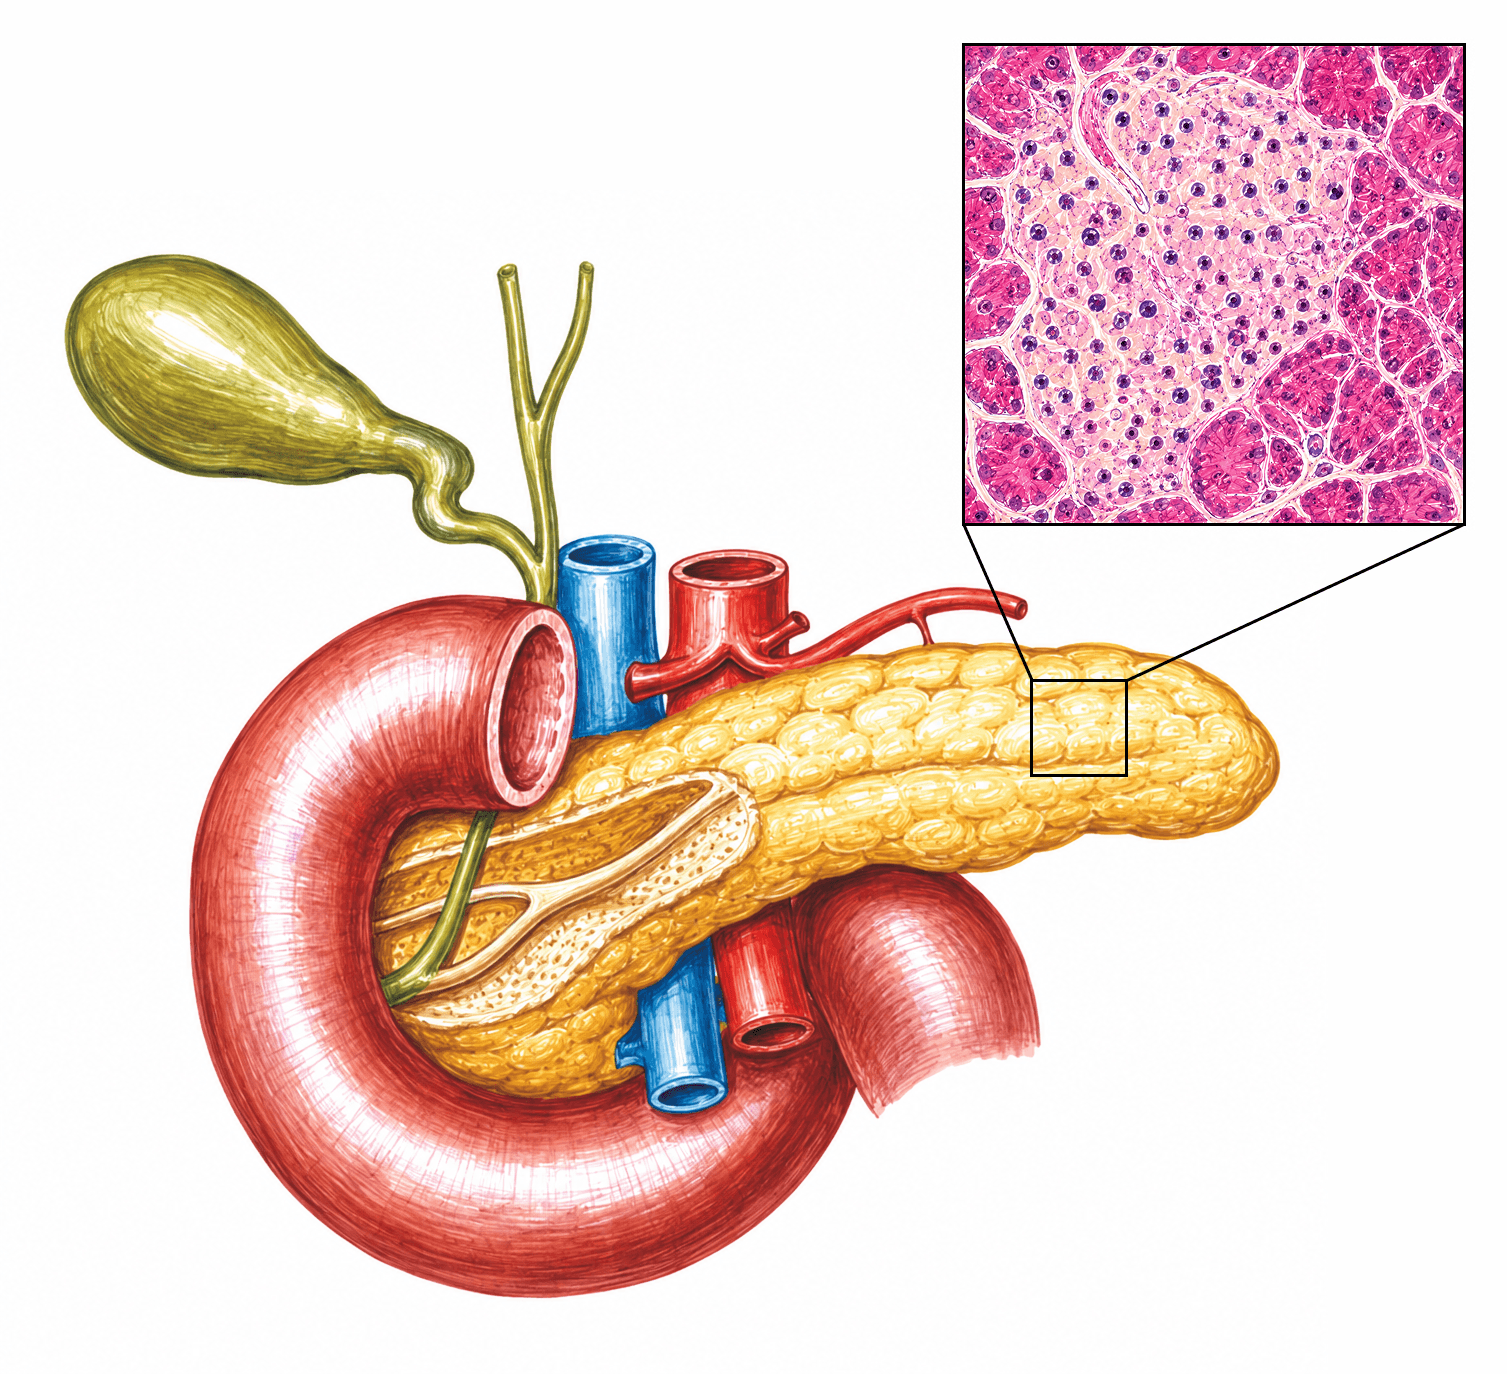
Fig. 61 · Biologie Corint · p. 59
Pancreasul și insulele LangerhansFigura arată pancreasul văzut din față, în poziția pe care o are în abdomen, împreună cu organele și vasele din jurul lui. Glanda galbenă, alungită, este așezată transversal: capătul ei cel mai lat, din stânga desenului, stă în potcoava duodenului, iar restul se întinde spre dreapta. În acest capăt a fost tăiată o fereastră prin care se văd canalele din interior. Un mic pătrat desenat pe glandă, între corp și coadă, este mărit în panoul din dreapta sus, unde apare structura microscopică a țesutului. Manualul folosește figura pentru pancreasul endocrin, dar desenul arată ambele fețe ale organului. Pancreasul este una dintre glandele anexe ale tubului digestiv, cu canale care se deschid în duoden, și, totodată, o glandă endocrină, trecută în lista glandelor endocrine ca pancreas insular (Figura 57). Părțile pancreasului Porțiunea lată cuprinsă de duoden este capul pancreasului. Nu are număr în această figură, dar este numită în Figura 79, unde pancreasul apare alături de ficat. Celelalte două porțiuni sunt numerotate: Corpul pancreasului este porțiunea mijlocie, mai îngustă decât capul, care continuă glanda spre dreapta. Coada pancreasului este capătul liber și rotunjit din dreapta desenului, cel mai îndepărtat de duoden. Canalele pancreatice Prin fereastra din capul glandei se văd două canale, pe care Figura 79 le numește canalul principal Wirsung și canalul accesor Santorini: Canalul pancreatic principal este tubul lat, deschis la culoare, care vine dinspre corpul glandei, străbate capul și se termină în peretele duodenului, în același loc cu canalul verde coborât de la vezica biliară. Canalul accesor este mai subțire și mai scurt. Se desprinde din canalul principal și ajunge la duoden separat, puțin mai sus. Pe aceste canale, secreția pancreatică ajunge în duoden. Pancreasul conține celule endocrine, exocrine și ductale: celulele exocrine produc enzimele digestive, iar celulele ductale secretă zilnic între 1200 și 1500 mL de suc pancreatic, bogat în $\ce{HCO3-}$, care neutralizează aciditatea gastrică și reglează pH-ul în intestinul superior. Organele și vasele din jur Duodenul este ansa în formă de potcoavă care cuprinde capul pancreasului, prima porțiune a intestinului subțire (urmată de jejun și ileon). Vezica biliară este punga verde din stânga sus. Canalul ei se unește cu un canal venit de sus, iar canalul comun coboară prin capul pancreasului până în duoden. Pe acest drum ajunge în duoden bila, depozitată în vezica biliară în perioadele interdigestive. Aorta este vasul roșu gros, tăiat deasupra glandei, care coboară prin spatele pancreasului și reapare sub el. Porțiunea desenată este aorta descendentă abdominală. Trunchiul celiac pleacă din fața aortei, chiar deasupra glandei, și se ramifică imediat. Manualul arată că se împarte în trei ramuri (splenică, gastrică stângă și hepatică) și că vascularizează stomacul, duodenul, pancreasul, ficatul și splina. Alături de aortă, tot prin spatele glandei, trece un vas albastru, pe care figura nu îl numește. Panoul microscopic: acini și insule Acinii sunt grupurile rotunjite de celule intens colorate de pe marginile câmpului. Sunt formați din celule exocrine, care produc patru tipuri de enzime digestive (peptidaze, lipaze, amilaze și nucleaze), răspunzătoare de digestia proteinelor, lipidelor, glucidelor și acizilor nucleici. Insula Langerhans este zona mai palidă din mijloc, cu nucleii răsfirați, înconjurată de acini. Insulele de celule endocrine alcătuiesc pancreasul endocrin și conțin mai multe tipuri de celule secretorii, dintre care celulele $\alpha$ (20 %), care secretă glucagon, și celulele $\beta$ (60-70 %), care secretă insulină. Cele două țesuturi își trimit produsele pe drumuri diferite: enzimele acinilor ajung în duoden prin canalele pancreatice, iar hormonii insulelor, ca ai oricărei glande endocrine, sunt eliberați direct în sânge. Hormonii insulelor Prin acești hormoni, pancreasul endocrin este implicat în controlul metabolismului intermediar al glucidelor, lipidelor și proteinelor. Insulina este singurul hormon cu efect anabolizant pentru toate metabolismele intermediare și singurul hormon hipoglicemiant. Deficitul ei, diabetul zaharat, este o boală metabolică complexă, cu valori crescute ale glicemiei la determinări repetate. A fost descoperită pentru prima oară de cercetătorul român Nicolae C. Paulescu, în 1921, iar pentru redescoperirea ei canadienii F.G. Banting și J.J.R. Macleod au primit Premiul Nobel, în 1923. Glucagonul crește glicogenoliza și gluconeogeneza, lipoliza și proteoliza.
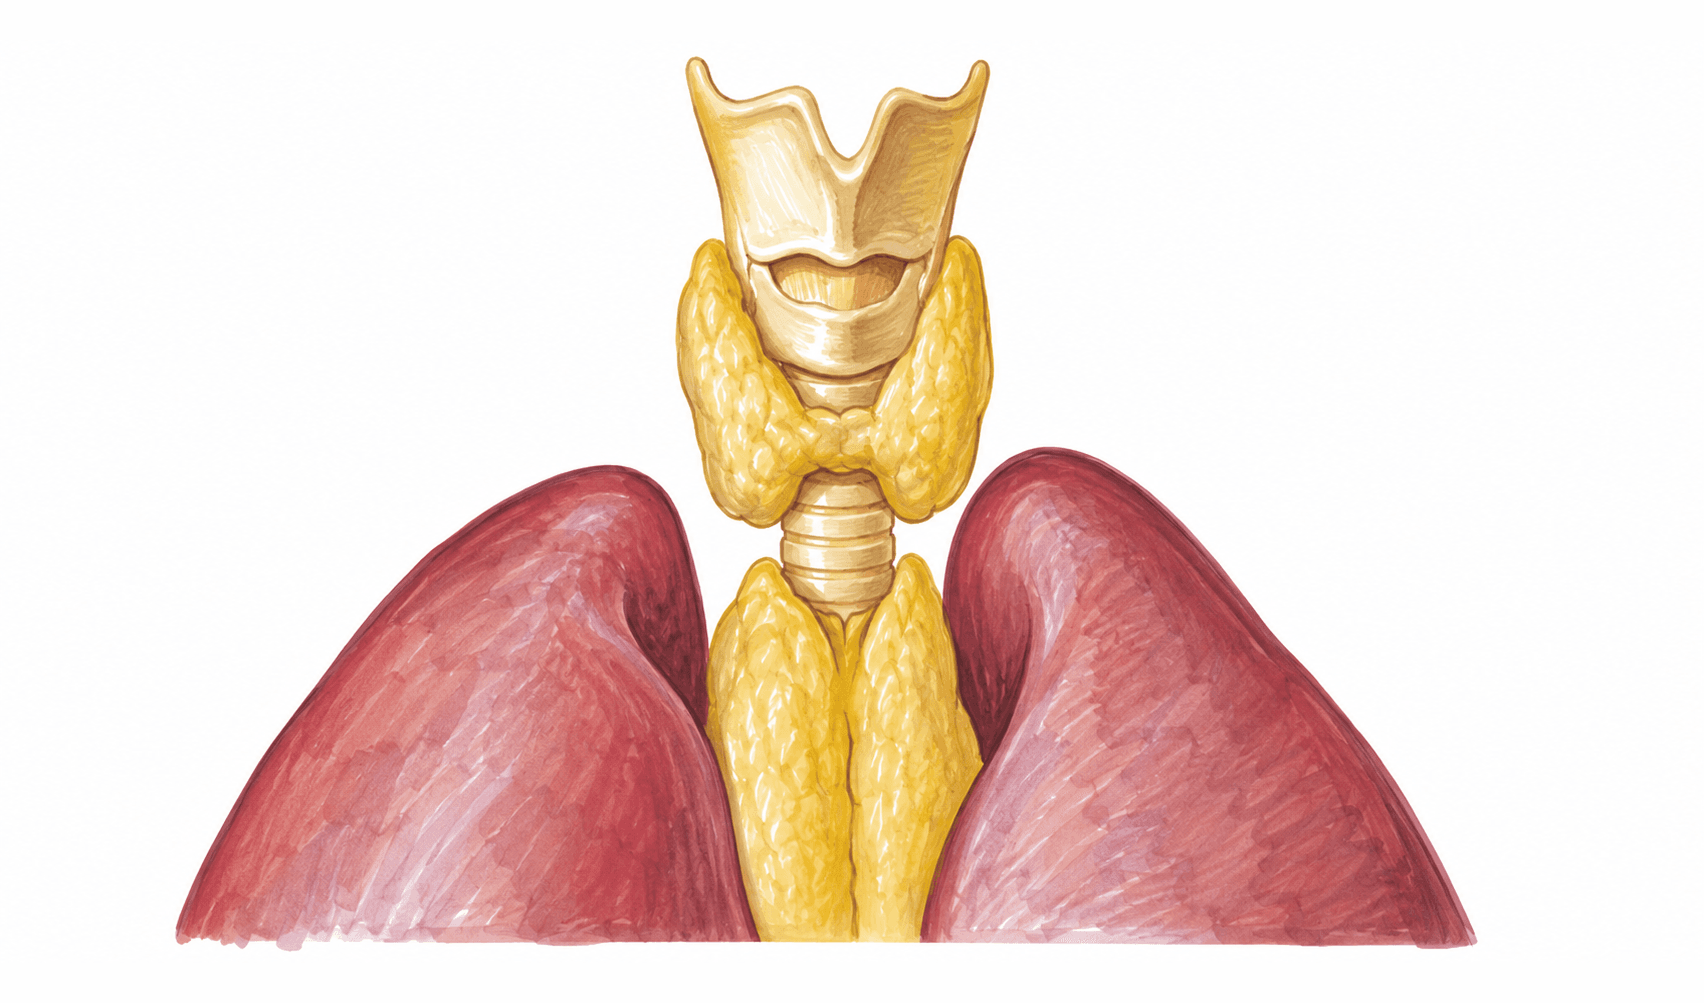
Fig. 62 · Biologie Corint · p. 60
Timusul: localizarea retrosternalăFigura îl arată pe timus la locul lui din corp, împreună cu organele vecine, care servesc drept repere. Este o vedere din față a gâtului și a părții de sus a toracelui, în care sunt desenate doar organele, fără pielea, mușchii și oasele din jurul lor. Citiți desenul de sus în jos, pe linia mediană: laringele, glanda tiroidă, traheea și, la capăt, timusul. De o parte și de alta, cei doi plămâni încadrează această coloană de organe. Organele din figură, de sus în jos Laringele deschide coloana, sus, în regiunea gâtului. Face parte din căile respiratorii și are o dublă funcție, respiratorie și fonatorie, prin corzile vocale. Glanda tiroidă urmează imediat sub laringe, în zona anterioară a gâtului. Are doi lobi laterali, uniți prin istmul tiroidian, așezați de o parte și de alta a căilor respiratorii. Traheea este tubul inelat care continuă laringele. Are o lungime de 10-12 cm, dar aici se vede doar o porțiune scurtă, sub tiroidă, pentru că mai jos este acoperită din față de timus. Timusul este masa alungită care începe puțin mai jos de tiroidă și coboară pe linia mediană, între cei doi plămâni. Plămânii, principalele organe ale respirației, sunt situați în cavitatea toracică. Partea lor de sus urcă până aproape de tiroidă, iar marginile dinspre mijloc ajung până la timus. Laringele, tiroida și traheea apar de aproape în Figura 60, iar întregul sistem respirator, cu căile respiratorii și plămânii, în Figura 94. Ce înseamnă localizarea retrosternală Manualul spune că timusul are localizare retrosternală, adică se află înapoia sternului. Sternul nu este desenat, dar îl puteți așeza în minte: este un os lat, situat anterior, pe linia mediană a toracelui. Timusul din figură stă exact pe această linie, în partea de sus a toracelui, între plămâni, așa că sternul îl acoperă din față. Nu confundați cele două glande endocrine de pe linia mediană: tiroida se află în zona anterioară a gâtului, iar timusul, mai jos, în torace, înapoia sternului. Manualul le numără pe amândouă printre glandele endocrine. În Figura 57, care arată toate aceste glande la locul lor în corp, timusul apare în partea de sus a toracelui, sub tiroidă. O glandă cu structură mixtă Timusul este o glandă cu structură mixtă, de epiteliu secretor și organ limfatic, iar în organism are două roluri: de organ limfatic central și de glandă endocrină. Rolul endocrin îl îndeplinește în prima parte a ontogenezei, până la pubertate. La pubertate, timusul involuează, fără să dispară complet. Ce se știe despre secreția lui Deși nu au fost individualizați hormoni ca atare, se cunosc câteva efecte ale extractelor de timus: acțiune de frânare a dezvoltării gonadelor, acțiune de stimulare a mineralizării osoase, efecte de oprire a mitozelor. Funcțiile timusului sunt puternic blocate de hormonii steroizi, care determină involuția acestui organ. Lobulul timic și timocitele Unitatea histologică a timusului este lobulul timic, format dintr-o rețea de celule reticulare, printre care se află timocitele. Acestea sunt celule hematoformatoare primordiale (stem), migrate din măduva hematogenă. Sub influența factorilor locali, ele se transformă în celule limfoformatoare de tip T. Timocitele „însămânțează” organele limfoide periferice: ganglionii limfatici, splina, amigdalele și altele. Limfocitele T sunt prezentate și la funcția de apărare a sângelui: împreună cu limfocitele B, ele mediază răspunsurile imune specifice, iar imunitatea mediată celular le implică în primul rând pe ele.
- 4MișcareaPaginile 63 - 72

Fig. 63 · Biologie Corint · p. 63
Osteogeneza: etapele formării unui os lungFigura urmărește osteogeneza unui os lung în șase desene așezate de la stânga la dreapta. Citește-o ca pe un film: fiecare desen arată același os ceva mai târziu decât cel dinaintea lui, de la modelul din cartilaj al embrionului până la osul adultului. De la un desen la altul, osul crește, iar tot mai mult cartilaj este înlocuit cu țesut osos. Fiecare structură este marcată pe unul sau două dintre desene, iar regiunile osului, epifizele și diafiza, pe ultimul. Două feluri de osificare Osteogeneza constă în transformarea țesutului cartilaginos sau conjunctivo-fibros al embrionului în scheletul osos al adultului. După originea lor, oasele sunt de două feluri: Oasele de membrană se dezvoltă prin osificare desmală (endoconjunctivă). Așa se formează oasele bolții cutiei craniene și, parțial, claviculele și mandibula. Oasele de cartilaj se dezvoltă prin osificare encondrală, care dă naștere oaselor membrelor, oaselor scurte și oaselor bazei craniului. Osul lung din figură pornește de la un model de cartilaj, așa că este un os de cartilaj, format prin osificare encondrală. Etapele, desen cu desen Modelul cartilaginos. Tot viitorul os este din cartilaj hialin. Modelul crescut. Capetele sunt încă din cartilaj hialin, în timp ce mijlocul, acolo unde va fi diafiza, își schimbă aspectul. Centrul primar de osificare. Centrele de osificare apar mai întâi în diafiză, iar aici mijlocul osului a devenit deja țesut osos. Capetele sunt tot din cartilaj, iar în ele se văd capilarele epifizare. Centrii secundari de osificare. Apar mai târziu, în epifize, câte doi în fiecare capăt. Osificarea epifizelor începe abia după ce acestea au ajuns aproape de dimensiunile definitive. Osul în creștere. Epifizele s-au osificat și conțin os spongios, diafiza are în interior cavitatea medulară, iar la suprafața ei se vede periostul. Între fiecare epifiză și diafiză a rămas câte o bandă de cartilaj: acestea sunt cartilajele de creștere. Osul adult. Cartilajele de creștere au dispărut, iar epifizele s-au sudat la diafiză. Peretele diafizei este os compact, în jurul unei cavități medulare lungi. Regiunile și țesuturile osului format Diafiza este porțiunea din mijloc, alungită, a osului. Peretele ei este din os compact, numit și haversian, iar în interior se află cavitatea medulară. Cavitatea medulară este canalul central al diafizei, în care se află măduva. La copii, toate oasele conțin măduvă roșie, hematogenă. La adult, măduva din canalul central al diafizei oaselor lungi este galbenă (țesut adipos cu rol de rezervă), iar la vârstnici devine cenușie, nefuncțională. Epifizele sunt cele două capete ale osului. Sunt umplute cu os spongios, numit și trabecular, țesut care se află și în interiorul oaselor scurte și late. Periostul este învelișul de la suprafața osului, cu o zonă internă, osteogenă. Oasele lungi, cum sunt humerusul, radiusul, ulna, femurul, tibia și fibula, au toate o diafiză și două epifize (le poți vedea în scheletul din Figura 65). Coastele, deși sunt alungite, nu au diafiză și epifize. Cum crește osul În lungime, prin osificare encondrală, la nivelul cartilajului de creștere, numit și cartilaj diafizo-epifizar sau de conjugare. Celulele lui proliferează numai spre diafiză. În grosime, prin osificare desmală, pe seama zonei interne, osteogene, a periostului. În timp ce restul modelului se osifică, cartilajele de creștere rămân cartilaginoase până în jurul vârstei de 20 de ani. În jurul vârstei de 20-25 de ani sunt înlocuite și ele de țesut osos, iar epifizele se sudează la diafize, ca pe ultimul desen. După ce creșterea a încetat, epifizele rămân acoperite cu un strat subțire de cartilaj hialin, numit cartilaj articular.

Fig. 64 · Biologie Corint · p. 63
Craniul: oasele neurocraniului și ale viscerocraniuluiFigura prezintă craniul văzut din lateral, cu fața orientată spre dreapta. Scheletul capului este alcătuit din neurocraniu, care adăpostește encefalul, și din viscerocraniu, unde se află atât segmentele periferice ale organelor de simț, cât și primele segmente ale aparatelor respirator și digestiv. Ca să citești desenul, pornește de la bolta rotunjită din partea de sus și din spate, în care stă encefalul, apoi coboară spre partea din față și de jos, unde oasele feței înconjoară orbita și nasul și poartă dinții. Neurocraniul (cutia craniană) Neurocraniul este alcătuit din patru oase nepereche (frontalul, etmoidul, sfenoidul și occipitalul) și din două oase perechi (temporalele și parietalele). Figura le marchează pe toate, iar din fiecare pereche se vede, din lateral, un singur os: Frontalul formează partea din față a bolții și marginea de sus a orbitei. Parietalul acoperă partea de sus și laterală a bolții, înapoia frontalului. Occipitalul formează partea din spate și de jos a craniului, la ceafă. Temporalul se află pe partea laterală, sub parietal. În el se deschide canalul auditiv extern, iar în stânca temporalului sunt săpate urechea medie și labirintul osos al urechii interne. Sfenoidul apare ca o suprafață mică înapoia orbitei, între frontal, parietal și temporal. Pe șaua turcească a acestui os se află hipofiza. Etmoidul se vede doar ca o porțiune mică în peretele orbitei. Lama lui ciuruită este străbătută de nervii olfactivi. Frontalul, parietalul și occipitalul sunt, după forma lor, oase late, la care predomină lățimea și înălțimea. Viscerocraniul (oasele feței) Viscerocraniul este format din șase oase perechi (maxilarele, palatinele, nazalele, lacrimalele, zigomaticele și cornetele nazale inferioare) și din două oase nepereche (vomerul și mandibula). Figura marchează cinci dintre ele: Nazalul, un os mic la rădăcina nasului, între frontal și maxilar. Lacrimalul, în peretele orbitei, lângă etmoid. Zigomaticul, sub orbită, la nivelul pomeților, prelungit spre înapoi către temporal. Maxilarul, în partea de mijloc a feței, care poartă dinții superiori. Mandibula, în partea de jos a feței, care poartă dinții inferiori. Este singurul os nepereche al feței marcat în figură. Dinții pe care îi poartă maxilarul și mandibula se află în cavitatea bucală, primul segment al tubului digestiv. La orbită, cavitatea în care este situat globul ocular, se întâlnesc oase din ambele grupe. În desen, deasupra ei se află frontalul, lateral și dedesubt zigomaticul, iar în peretele ei se văd etmoidul și lacrimalul. De aceea etmoidul, deși aparține neurocraniului, pare așezat printre oasele feței. Canalul auditiv extern În afara oaselor, figura mai marchează canalul auditiv extern, deschiderea rotundă din temporal, așezată chiar înapoia capătului de sus al mandibulei. La analizatorul acustic, manualul îl numește conductul auditiv extern. Împreună cu pavilionul, el formează urechea externă. Cum se formează și cum se unesc oasele craniului Oasele bolții cutiei craniene și, parțial, mandibula se dezvoltă prin osificare desmală (de membrană), iar oasele bazei craniului prin osificare encondrală, pornind de la un model cartilaginos (Figura 63). Liniile pe care se întâlnesc oasele bolții corespund suturilor craniene. Suturile craniene sunt sindesmoze, un tip de sinartroze: articulații fixe, fără cavitate articulară, în care între oase se interpune țesut fibros. Rolurile craniului Cutia craniană protejează encefalul, iar articulația craniului cu coloana vertebrală formează o pârghie de ordinul I (Figura 68). Locul craniului în întregul schelet se vede în Figura 65.

Fig. 65 · Biologie Corint · p. 64
Scheletul: oasele corpului în poziție anatomicăFigura prezintă scheletul, adică totalitatea oaselor așezate în poziție anatomică, văzut din față: corpul stă în picioare, cu membrele superioare pe lângă trunchi. Cel mai ușor o parcurgi de sus în jos, în ordinea din manual: scheletul capului, scheletul trunchiului și scheletul membrelor, fiecare membru fiind legat de trunchi printr-o centură. Oasele perechi apar de ambele părți ale corpului, dar cele mai multe sunt marcate numai pe o parte. Oasele nepereche, cum sunt osul frontal, mandibula sau sternul, stau pe linia mediană. Scheletul capului Capul are o parte craniană, neurocraniul (cutia craniană), care adăpostește encefalul, și o parte facială, viscerocraniul (fața). Figura marchează câte două oase din fiecare parte: Osul frontal, os nepereche și lat al neurocraniului, ocupă partea de sus și din față a craniului. Osul temporal, os pereche al neurocraniului, se vede pe partea laterală a craniului. În stânca temporalului sunt săpate urechea medie și labirintul osos al urechii interne. Maxilarul, os pereche al viscerocraniului, se află între deschiderea nazală și dinții de sus. Mandibula, os nepereche al viscerocraniului, este osul de jos al feței, pe care se văd dinții de jos. Toate oasele neurocraniului și ale viscerocraniului apar în Figura 64. Scheletul trunchiului Trunchiul are ca schelet coloana vertebrală, sternul, coastele și bazinul. Coloana vertebrală reprezintă scheletul axial. Este situată în partea mediană și posterioară a corpului, de aceea în desen se vede mai ales la gât și între cutia toracică și bazin. Cele 5 regiuni ale ei, cervicală, toracală (dorsală), lombară, sacrală și coccigiană, apar în Figura 67. Bazinul, format din osul sacru și cele două oase coxale, apare mai jos, la membrul inferior. Scheletul toracelui Marcat în figură ca cutia toracică, toracele osos este format anterior de stern, posterior de coloana vertebrală, prin cele 12 vertebre toracale, iar lateral de coaste. El protejează inima și plămânii. Sternul este un os lat, situat anterior, pe linia mediană a toracelui. Cele trei părți ale lui sunt marcate separat, de sus în jos: Manubriul, cu care se articulează medial clavicula. Corpul sternal, partea mijlocie și cea mai lungă. Apendicele xifoid, vârful de jos, care rămâne cartilaginos până în jurul vârstei de 40 de ani. Coastele sunt 12 perechi de arcuri osteocartilaginoase, formate posterior dintr-un arc osos, articulat cu vertebrele toracale, iar anterior din cartilajul costal. Primele 7 perechi sunt coaste adevărate, al căror cartilaj se articulează cu sternul. Perechile VIII, IX și X sunt coaste false, legate de stern prin cartilajul coastei VII. Ultimele două perechi sunt coaste flotante (libere): nu au cartilaj și nu ajung la stern. Centura scapulară și membrul superior Centura scapulară leagă membrul superior de torace și are două oase. Clavicula, în forma literei „S” culcată, se articulează lateral cu scapula și medial cu manubriul sternal. Scapula (omoplatul) este un os lat, triunghiular, cu baza în sus, care se articulează lateral cu humerusul. Pentru că scheletul este privit din față, omoplatul se vede doar în parte, în spatele coastelor de sus. Membrul superior liber are trei segmente: Brațul, cu un singur os, humerusul. Antebrațul, cu două oase lungi, radiusul și ulna. În desen, radiusul este osul dinspre police, iar ulna, cel dinspre trunchi. Mâna, cu 8 oase carpiene, 5 metacarpiene și 14 falange. Falangele sunt numai 14, pentru că degetul I, policele, are doar două. Centura pelvină și membrul inferior Centura pelvină leagă membrul inferior de scheletul trunchiului. Este formată din cele două oase coxale, care se articulează anterior între ele, formând simfiza pubiană, iar posterior cu osul sacru, formând bazinul (pelvisul osos). În desen, sacrul se vede între cele două coxale, ca un os median, triunghiular, cu baza în sus. Fiecare coxal provine din sudarea a trei oase: ilionul, partea lată de sus, ischionul, partea de jos, și pubisul, nemarcat în figură. Sudarea se datorează adaptării la stațiunea bipedă. Oasele coxale apar așadar de două ori în manual: în bazin, la scheletul trunchiului, și în centura pelvină, la scheletul membrelor inferioare. Urmează membrul inferior propriu-zis, cu trei segmente, și rotula, la genunchi: Coapsa, cu femurul, cel mai lung os din corp. Rotula, un os triunghiular, cu baza în sus, situat în tendonul mușchiului cvadriceps. Fața ei posterioară se articulează cu epifiza distală a femurului. Gamba, cu două oase: tibia, așezată medial și mai voluminoasă, și fibula, lateral. Piciorul, cu 7 oase tarsiene, 5 metatarsiene și 14 falange, numai două pentru degetul I, halucele. Cum se clasifică oasele după formă Multe dintre exemplele din manual sunt oase marcate în figură: Oase lungi, la care predomină lungimea: humerus, radius, ulnă, femur, tibie, fibulă. La adult, măduva din canalul central al diafizei lor este galbenă. Oase late, la care predomină lățimea și înălțimea: parietal, frontal, occipital, stern, scapulă, coxal. La adult, ele conțin măduva roșie, hematogenă. Oase scurte, la care cele trei dimensiuni sunt aproximativ egale: carpiene, tarsiene. Oase sesamoide, care se găsesc în grosimea unui tendon, cum este rotula. Oase alungite, cum sunt coastele și clavicula, la care predomină lungimea, dar care nu prezintă diafiză și epifize, așa cum au oasele lungi.
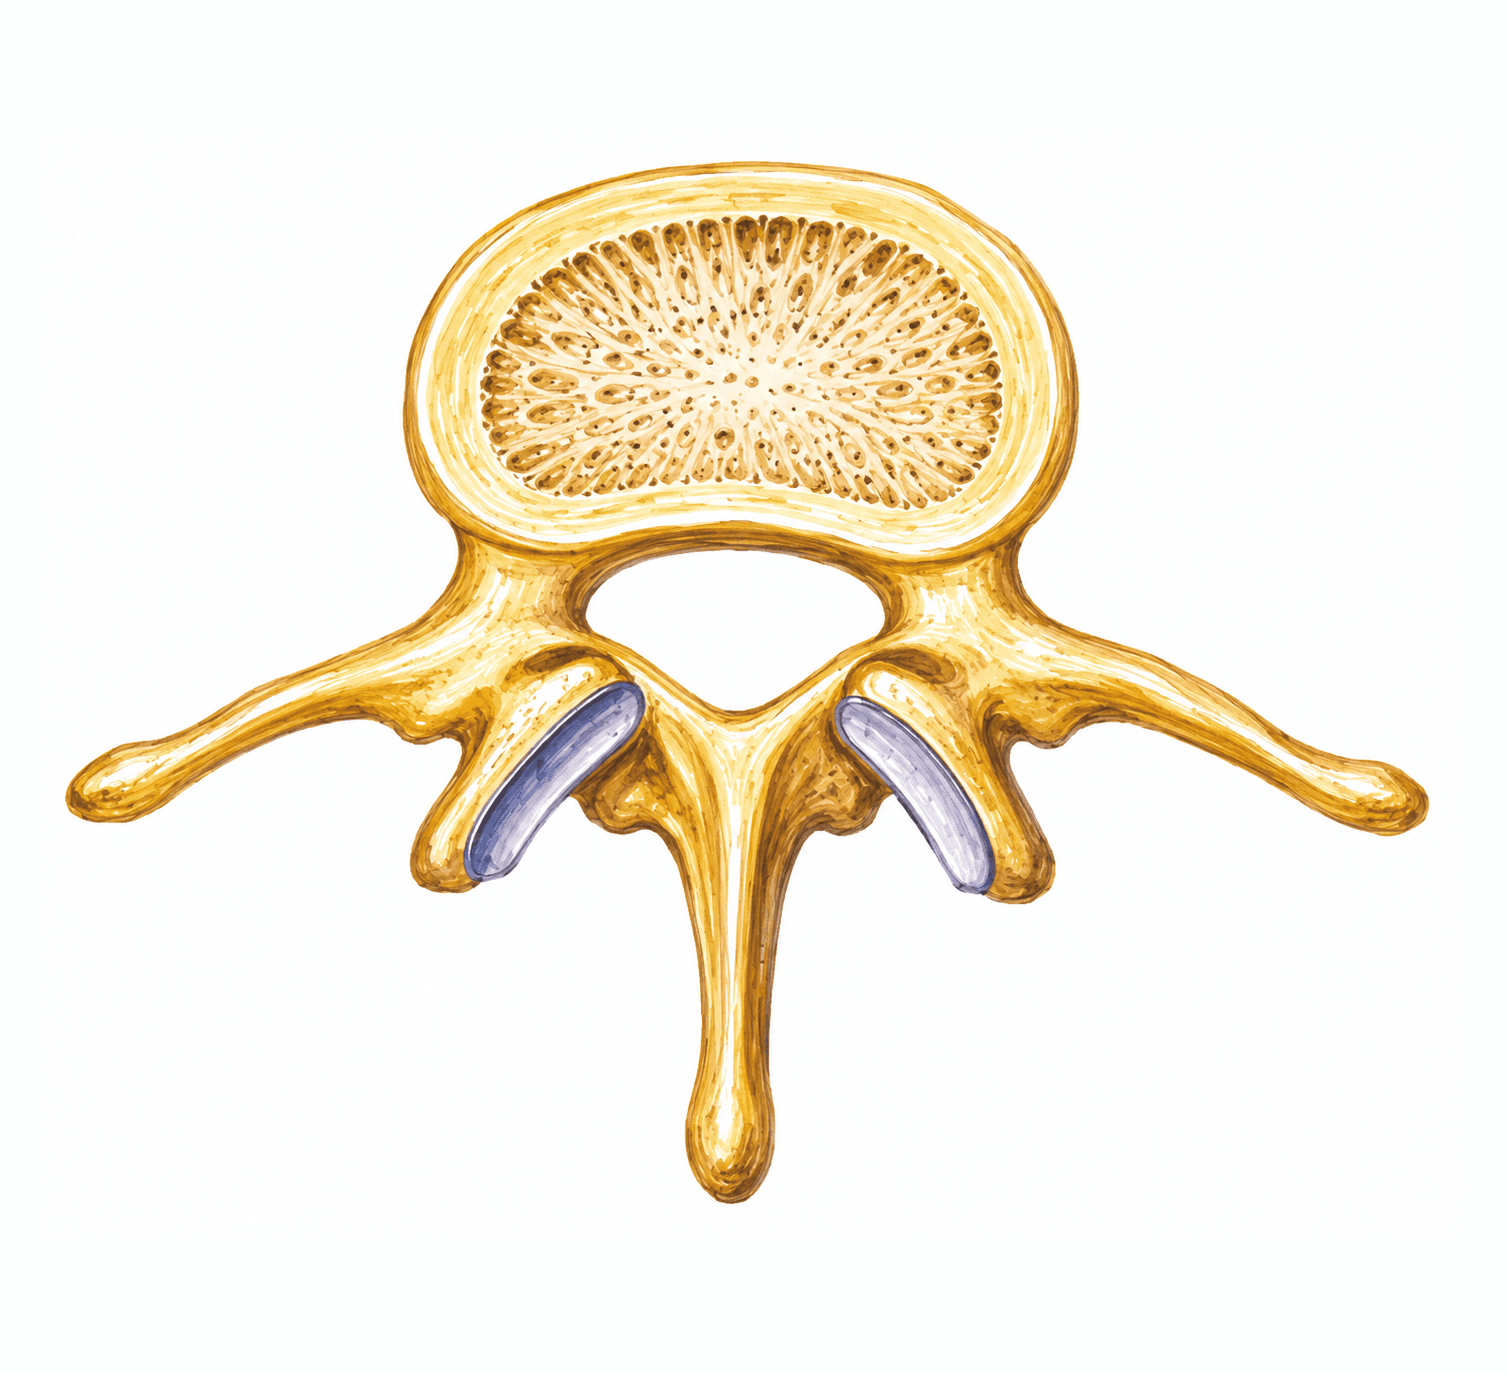
Fig. 66 · Biologie Corint · p. 64
Vertebră lombară: părțile vertebrei tipFigura arată o vertebră lombară privită de sus, pe care manualul o folosește pentru a prezenta alcătuirea vertebrei tip. Ca s-o citești, ține minte că partea anterioară a vertebrei este în susul desenului, iar cea posterioară în jos. Sus se află corpul vertebral, masiv și rotunjit. Sub el se deschide un orificiu larg, iar mai jos se află arcul vertebral, din care pornesc mai multe prelungiri, numite apofize. Corpul, pediculii și arcul Vertebra tip prezintă, în partea sa anterioară, corpul vertebral, iar posterior, arcul vertebral. Arcul este legat de corp prin doi pediculi vertebrali, câte unul de fiecare parte: în desen, cele două punți scurte care pornesc din corp spre înapoi. Între corpul vertebral, pediculii vertebrali și arcul vertebral se află orificiul vertebral, gaura din mijlocul figurii. Ce se formează prin suprapunerea vertebrelor Figura arată o singură vertebră, dar două dintre structurile ei își dezvăluie rostul abia când vertebrele sunt așezate una peste alta, în coloană: Orificiile vertebrale suprapuse formează canalul vertebral, care adăpostește măduva spinării. Când vorbește despre rolul de protecție al oaselor, manualul îl numește canal rahidian. Pediculii vertebrali suprapuși delimitează orificiile intervertebrale (de conjugare), prin care ies nervii spinali. Ele nu se văd în figură, pentru că se formează abia între două vertebre vecine. Măduva spinării nu ocupă canalul vertebral în întregime, iar limita ei inferioară se află în dreptul vertebrei L2. Între peretele osos al vertebrelor și măduvă se află cele trei membrane ale meningelor, care asigură protecția și nutriția măduvei (Figura 18). Apofizele și suprafața de articulare Apofiza spinoasă pornește din mijlocul arcului, pe linia mediană, și se îndreaptă înapoi (în jos, în desen). Este una singură, lungă, cu capătul îngroșat. Apofizele transverse se întind lateral, câte una de fiecare parte, ca două aripi lungi și subțiri. Apofizele articulare superioare sunt prelungiri scurte și groase, așezate în spatele orificiului vertebral, câte una de fiecare parte a apofizei spinoase. Așa cum le spune numele, prin ele vertebra se articulează cu vertebra de deasupra. Suprafața de articulare este fața netedă a apofizei articulare, orientată spre linia mediană, prin care vertebra vine în legătură cu vertebra vecină. Manualul folosește același termen la sacru, ale cărui fețe laterale au o suprafață de articulare pentru osul coxal. Vertebra în coloana vertebrală Coloana vertebrală reprezintă scheletul axial și este situată în partea mediană și posterioară a corpului. Cuprinde 5 regiuni: cervicală, toracală (dorsală), lombară, sacrală și coccigiană, iar regiunea lombară are 5 vertebre (Figura 67). Coloana îndeplinește un triplu rol: ax de susținere a corpului, protejarea măduvei spinării și executarea diferitelor mișcări ale trunchiului și capului. Două dintre ele se văd chiar în alcătuirea vertebrei: măduva stă protejată în canalul format de orificiile vertebrale, iar mișcările au loc la nivelul articulațiilor dintre vertebre, căci articulațiile sunt sediul mișcărilor. Corpurile vertebrelor vecine se articulează prin interpunerea discurilor intervertebrale, în amfiartroze, adică articulații semimobile.

Fig. 67 · Biologie Corint · p. 65
Coloana vertebrală: regiunile și curburile eiFigura arată coloana vertebrală întreagă, văzută din profil, de la prima vertebră cervicală, sus, până la coccige, jos. Coloana reprezintă scheletul axial: este situată în partea mediană și posterioară a corpului și, împreună cu sternul, coastele și bazinul, formează scheletul trunchiului. Îndeplinește un triplu rol: este ax de susținere a corpului, protejează măduva spinării și permite executarea diferitelor mișcări ale trunchiului și capului. Ca să te orientezi pe desen, amintește-ți cum este construită vertebra tip (Figura 66): în partea anterioară are corpul vertebral, iar posterior, arcul vertebral. Marginea mai netedă a coloanei, formată din corpurile vertebrale suprapuse, este deci fața anterioară, iar marginea zimțată, formată de arcurile vertebrale cu apofizele lor, este fața posterioară. Orificiile vertebrale suprapuse formează canalul vertebral, care adăpostește măduva. Cele cinci regiuni De sus în jos, coloana cuprinde 5 regiuni: Regiunea cervicală, cu 7 vertebre cervicale. Prima este numită atlas, iar a doua, axis. Regiunea toracală (dorsală), cu 12 vertebre toracale. Ele formează posterior scheletul toracelui, iar cu ele se articulează cele 12 perechi de coaste. Regiunea lombară, cu 5 vertebre lombare, așezate între vertebrele toracale și osul sacru. Regiunea sacrală, reprezentată de osul sacru, care provine din sudarea celor cinci vertebre sacrale. Regiunea coccigiană, reprezentată de coccige, care rezultă din fuzionarea celor 4-5 vertebre coccigiene. În primele trei regiuni vertebrele rămân separate. Între corpurile lor se văd discurile intervertebrale, formate din țesut cartilaginos fibros. Prin interpunerea acestor discuri se fac articulațiile dintre corpurile vertebrale, care sunt amfiartroze, adică articulații semimobile. În ultimele două regiuni, în schimb, vertebrele sunt sudate între ele, iar fiecare regiune este alcătuită dintr-un singur os. Curburile Coloana vertebrală prezintă curburi atât în plan sagital, cât și în plan frontal (Figura 3). Planul sagital trece prin axul longitudinal și prin cel sagital (anteroposterior), așa că o curbură din acest plan arcuiește coloana înainte sau înapoi și se vede din profil. Acestea sunt curburile din desen: Lordozele au concavitatea posterior, deci regiunea se bombează spre înainte. Se află în regiunile cervicală și lombară. Cifozele au concavitatea orientată anterior, deci regiunea se bombează spre înapoi. Se află în regiunile toracală și sacrală. Urmărite de sus în jos, curburile alternează: lordoză cervicală, cifoză toracală, lordoză lombară, cifoză sacrală. Regiunea coccigiană nu apare printre regiunile cu curburi enumerate de manual. Curburile din plan frontal, planul care merge paralel cu fruntea, se numesc scolioze și pot fi cu convexitatea la stânga sau la dreapta. Fiindcă îndoaie coloana lateral, ele nu se pot vedea în această imagine din profil. Sacrul și coccigele Osul sacru este un os median, nepereche, de formă triunghiulară, cu baza în sus. Fețele lui laterale prezintă câte o suprafață de articulare pentru osul coxal, iar vârful, îndreptat în jos, se unește cu baza coccisului. Oasele coxale se articulează posterior cu sacrul și anterior între ele, formând simfiza pubiană, așa că sacrul și cele două oase coxale alcătuiesc împreună bazinul (pelvisul osos). Deformările coloanei La noțiunile de patologie a sistemului osos, manualul arată că deformările cele mai întâlnite sunt cele de la nivelul coloanei vertebrale. Ele poartă aceleași nume ca și curburile: Cifoza reprezintă o exagerare a curburii coloanei toracale. Lordoza reprezintă o exagerare a convexității coloanei lombare. Scolioza este o curbare laterală, anormală, a coloanei vertebrale, care poate apărea la orice nivel al acesteia. Așadar, aceleași cuvinte denumesc în manual atât curburile fiziologice ale coloanei, cât și deformările ei, iar deosebirea o face contextul.

Fig. 68 · Biologie Corint · p. 66
Pârghii osteo-musculare: cele trei ordineFigura ilustrează rolul oaselor de pârghii ale aparatului locomotor. Mișcarea se realizează prin sistemul osteoarticular, cu rol pasiv, și prin sistemul muscular, componenta activă. Mușchii acționează asupra oaselor și asigură astfel susținerea corpului și locomoția. Manualul numește pârghiile din figură pârghii osteo-musculare: în fiecare desen apar atât oase, cât și mușchiul care acționează asupra lor. Sunt trei exemple, câte unul pentru fiecare ordin de pârghie. Fiecare are un desen anatomic și o schemă în care pârghia este redusă la o bară orizontală. La craniu și la gambă, schema stă sub desen, iar la membrul superior, în dreapta lui. Compară de fiecare dată desenul cu schema lui: literele se succed, de la stânga la dreapta, în aceeași ordine în amândouă. Forța, rezistența și sprijinul Legenda explică cele trei litere, folosite la fel în toate desenele și schemele: F este forța. În desenele anatomice este marcată pe corpul unui mușchi, care se prinde de oase prin tendoane. R este rezistența, marcată pe partea corpului asupra căreia acționează mușchiul. S este sprijinul, reprezentat în scheme printr-un mic triunghi sub bară. În scheme, forța și rezistența sunt săgeți. Săgeata rezistenței este mereu îndreptată în jos, dar săgeata forței nu stă mereu în același loc și nici nu are mereu același sens. Mușchii desenați sunt mușchi scheletici, organele active ale mișcării, iar grupele lor sunt prezentate în Figura 71. Pârghia de ordinul I: articulația craniului cu coloana vertebrală Primul desen arată, din profil, craniul așezat pe vertebrele cervicale. Sprijinul este chiar articulația dintre craniu și coloana vertebrală, la baza craniului. Forța este marcată pe mușchiul de la ceafă, care coboară de la partea din spate a craniului de-a lungul gâtului, iar rezistența pe bolta cutiei craniene. În schemă, sprijinul se află între forță și rezistență, care stau la cele două capete ale barei, iar ambele săgeți sunt îndreptate în jos. Printre rolurile coloanei vertebrale, manualul enumeră și executarea diferitelor mișcări ale trunchiului și capului. Pârghia de ordinul II: articulația dintre oasele gambei și picior Al doilea desen arată, tot din profil, cele două oase ale gambei, tibia și fibula, așezate pe scheletul piciorului (le regăsești în scheletul întreg din Figura 65). Forța este marcată pe mușchiul de pe fața posterioară a gambei, al cărui tendon lung coboară până la călcâi. Rezistența este marcată pe picior, iar sprijinul sub partea din față a piciorului. Spre deosebire de celelalte două exemple, sprijinul nu se află aici la articulația care dă numele pârghiei, cea dintre oasele gambei și picior. În schemă, forța stă la un capăt al barei, cu săgeata în sus, sprijinul la celălalt capăt, iar rezistența între ele, cu săgeata în jos. Pârghia de ordinul III: articulația dintre osul brațului și cele ale antebrațului Al treilea desen arată membrul superior îndoit din cot. Brațul, cu humerusul, stă vertical, iar deasupra lui se vede scapula, cu care humerusul se articulează. Antebrațul, cu cele două oase ale sale, radiusul și ulna, se întinde orizontal până la mână. Sprijinul este cotul, adică articulația dintre humerus și oasele antebrațului. Forța este marcată pe mușchiul de pe fața anterioară a brațului, al cărui tendon inferior se prinde de antebraț aproape de cot, iar rezistența pe antebraț, cam la jumătatea lui. În schemă, sprijinul stă spre un capăt al barei, rezistența la capătul opus, cu săgeata în jos, iar forța între ele, cu săgeata în sus. Ce deosebește cele trei ordine Pune cele trei scheme una lângă alta și vei observa că, de fiecare dată, alt element se află între celelalte două: Ordinul I: sprijinul, între forță și rezistență. Ordinul II: rezistența, între forță și sprijin. Ordinul III: forța, între sprijin și rezistență. Într-o temă de lângă figură, manualul îți cere să compari locul de aplicare a forței la cele trei pârghii, folosind și cunoștințele de la fizică. În scheme, forța se află la un capăt al barei la ordinele I și II și între sprijin și rezistență la ordinul III. Primul dintre rolurile oaselor Rolul de pârghii este primul dintre rolurile funcționale ale oaselor enumerate de manual. Celelalte sunt rolul de protecție a unor organe vitale, rolul antitoxic, rolul de sediu principal al organelor hematopoietice și rolul în metabolismul calciului, fosforului și electroliților.
Fig. 69 · Biologie Corint · p. 67
Articulația genunchiului: structura unei artrodiiFigura arată articulația genunchiului secționată în plan sagital, adică tăiată în lung, ca să se vadă ce se află între oase. Genunchiul apare din profil: sus este femurul, cu epifiza distală rotunjită, iar dedesubt capătul superior al tibiei. Fața anterioară a genunchiului este în dreapta desenului, unde se află rotula. Mușchii coapsei și ai gambei se văd mai ales în stânga, pe fața posterioară. Manualul folosește figura ca exemplu de artrodie. Ce fel de articulație este Articulațiile sunt organe de legătură între oase, fiind sediul mișcărilor. După gradul de mobilitate, ele se împart în: Sinartroze, articulații fixe, imobile, care nu posedă cavitate articulară. La nivelul lor se execută mișcări foarte reduse. Diartroze, cu un grad variabil de mobilitate, care cuprind: amfiartrozele (semimobile), cu suprafețe articulare plane sau ușor concave, cum sunt articulațiile dintre corpurile vertebrale, realizate prin interpunerea discurilor intervertebrale. artrodiile (mobile), articulații sinoviale, cu o mare mobilitate. Genunchiul din figură este o artrodie. La nivelul unei articulații mobile, mișcările depind de forma suprafețelor articulare și se pot realiza în jurul unui ax, a două axe sau a trei axe. Elementele structurale ale unei artrodii Manualul enumeră cinci elemente structurale: suprafețele articulare, capsula articulară, membrana sinovială, cavitatea articulară și ligamentele articulare. Desenul marchează trei dintre ele: Membrana sinovială este foița subțire care mărginește cavitatea articulară. Se vede cel mai bine în fața femurului, deasupra rotulei, unde urcă mult de-a lungul osului. Cavitatea articulară este spațiul dintre oasele care se articulează. În desen se întinde între femur și tibie, între femur și rotulă și, deasupra rotulei, în fața femurului. Tocmai ea lipsește la sinartroze. Ligamentul articular marcat aici este banda care pornește de sub rotulă și coboară în fața tibiei. Ligamentele sunt alcătuite din țesut conjunctiv fibros. În Figura 23, care arată reflexul rotulian, aceeași bandă de sub rotulă poartă numele de ligament rotulian. Celelalte două elemente, suprafețele articulare și capsula articulară, nu sunt marcate. Suprafețele articulare sunt fețele prin care femurul se articulează cu tibia și cu rotula. Femurul și tibia sunt oase lungi, iar manualul arată că, după ce procesul de creștere a încetat, epifizele rămân acoperite cu un strat subțire de cartilaj hialin, numit cartilaj articular. Rotula și meniscul Desenul mai marchează două structuri care nu fac parte din lista celor cinci elemente: Rotula, în fața articulației, este un os triunghiular, cu baza în sus, situat în tendonul mușchiului cvadriceps femural. Pentru că se află în grosimea unui tendon, este un os sesamoid. În desen o vezi cuprinsă în banda de pe fața anterioară a genunchiului, iar fața ei posterioară se articulează cu epifiza distală a femurului. Rotula apare și pe scheletul întreg, în Figura 65. Meniscul este piesa așezată între femur și tibie, spre partea posterioară a articulației. Manualul nu îl descrie la articulații, dar la clasificarea țesuturilor dă meniscurile articulare, alături de discurile intervertebrale, ca exemple de țesut cartilaginos fibros. Entorsele și luxațiile Pe aceeași pagină, la noțiunile de patologie, manualul descrie două afecțiuni ale articulațiilor: Entorsele se produc prin alungirea ligamentelor componente ale unei articulații, precum și a ligamentelor de vecinătate. Au diverse grade de gravitate, se tratează diferențiat și se asociază frecvent cu sinovite. Luxațiile înseamnă dislocarea elementelor componente ale unei articulații, în special a suprafețelor articulare. Cele mai vulnerabile articulații sunt cele ale genunchiului și umărului.
Fig. 70 · Biologie Corint · p. 68
Structura mușchiului scheletic: de la mușchi la fibra muscularăFigura desface un mușchi scheletic în părțile lui, de la organul întreg până la o singură fibră musculară. În dreapta se află osul, pe care mușchiul se prinde prin tendon. La mijloc este corpul mușchiului, tăiat transversal la capătul din stânga jos, ca să i se vadă interiorul. Din tăietură iese spre stânga jos un fascicul, tras afară ca tubul unei lunete, iar din capătul fasciculului iese, la fel, o singură fibră musculară. Fiecare dintre aceste niveluri are propriul înveliș de țesut conjunctiv, iar învelișurile stau unele în altele, ca niște teci. Tocmai asta trebuie să reții din figură. De la os la mușchi Un mușchi scheletic are o porțiune centrală, mai voluminoasă, numită corpul mușchiului, și două extremități de culoare alb-sidefie, numite tendoane, care au în structura lor țesut fibros. Tendonul care se inseră pe osul fix se numește originea mușchiului, iar cel care se prinde de osul mobil se numește inserția mușchiului. De regulă originea este unică, dar sunt și mușchi cu mai multe origini: bicepsul, tricepsul, cvadricepsul. În desen mușchiul este tăiat, așa că se vede un singur tendon, cel prin care se prinde de os. Osul este acoperit la suprafață de periost, a cărui zonă internă, osteogenă, realizează creșterea în grosime a osului. Învelișurile conjunctive, de la exterior spre interior Fascia mușchiului este membrana conjunctivă aflată la exteriorul corpului muscular. În desen, ea îmbracă mușchiul ca o teacă. Epimisium este lama de țesut conjunctiv de sub fascie. Pe tăietură se vede ca marginea subțire care înconjoară toate fasciculele. Perimisium este format din septurile conjunctive care pornesc din epimisium spre interior. Pe tăietură, ele formează pereții dintre fascicule și le separă unele de altele. Endomisium este format din tecile fine de țesut conjunctiv care învelesc fiecare fibră musculară în parte. Se vede pe capătul fasciculului scos, printre fibre. Ce se află înăuntru Corpul mușchiului este format din fibre musculare striate, adică din țesut muscular striat. Pe tăietura mușchiului se vede că fibrele sunt grupate în fascicule: fiecare fascicul apare ca un buchet de puncte, iar fiecare punct este o fibră musculară. Fasciculul scos arată același buchet de fibre pe capătul lui, iar fibra trasă afară din el este cel mai mic nivel din figură. Structura fibrei musculare, cu miofibrilele și sarcomerele ei, este arătată în Figura 72. Alte lucruri de reținut despre mușchi Mușchiul are o bogată vascularizație. Inervația lui este dublă, somatică și vegetativă, iar cea vegetativă determină reacții vasomotorii. Pe lângă fibrele musculare, mușchiul conține fibre conjunctive și elastice, care stau la baza a două dintre proprietățile lui: Extensibilitatea este proprietatea mușchiului de a se alungi pasiv sub acțiunea unei forțe exterioare. Substratul ei anatomic îl reprezintă fibrele conjunctive și elastice din mușchi. Elasticitatea este proprietatea mușchiului de a se deforma sub acțiunea unei forțe și de a reveni pasiv la forma de repaus atunci când forța a încetat să acționeze. Baza ei anatomică o reprezintă fibrele elastice din structura perimisiumului. Mușchii scheletici ai corpului, grupați în mușchii capului, gâtului, trunchiului și membrelor, sunt prezentați în Figura 71.
Fig. 71 · Biologie Corint · p. 69
Mușchii scheletici: vedere anterioară și posterioarăFigura arată principalele grupe de mușchi scheletici în două desene ale aceluiași corp: în stânga văzut din față, în dreapta văzut din spate. Trei mușchi sunt marcați în ambele desene, pentru că se văd și din față, și din spate: trapezul, sternocleidomastoidianul și oblicul extern. Mușchii scheletici sunt grupați în mușchii capului, ai gâtului, ai trunchiului și ai membrelor. Împreună reprezintă aproximativ 40% din masa organismului și asigură tonusul, postura, echilibrul, mimica și mișcările voluntare. Mușchii capului și ai gâtului La cap se descriu două categorii de mușchi: mușchii mimicii, care, prin contracția lor, determină diferite expresii ale feței, și mușchii maseteri, care intervin în realizarea actului masticației. În desenul din față sunt marcați maseterul, pe obraz, deasupra unghiului mandibulei, orbicularul pleoapelor, în jurul ochiului, pe care manualul îl dă ca exemplu de mușchi circular, și mușchiul frontal, pe frunte. În desenul din spate apar mușchiul temporal, pe partea laterală a capului, și mușchiul occipital, în partea posterioară a capului. Frontalul, temporalul și occipitalul apar însă doar în desen: textul manualului nu îi descrie. În regiunea anterolaterală a gâtului, mușchii sunt așezați pe mai multe planuri. Dinspre suprafață spre profunzime se află întâi mușchiul pielos al gâtului, care încrețește pielea gâtului, apoi mușchiul sternocleidomastoidian, singurul dintre ei marcat în figură. Îl recunoști, în ambele desene, ca pe o bandă oblică pe partea laterală a gâtului. Mușchii trunchiului Ei se grupează în mușchii spatelui și ai cefei, mușchii anterolaterali ai toracelui și mușchii anterolaterali ai abdomenului. Spatele și ceafa: în plan superficial, superior se află mușchii trapezi, iar inferior de ei marii dorsali. Desenul din spate mai marchează romboidul, în partea de sus a spatelui, deasupra marelui dorsal, și aponevroza lombară, zona albă din partea de jos a spatelui, dintre cei doi mari dorsali. Pe acestea două manualul nu le descrie, dar din clasificarea țesuturilor știi că aponevrozele, ca și tendoanele și ligamentele, au în structura lor țesut conjunctiv fibros. Toracele: în partea anterioară se găsesc cei doi mușchi pectorali, marele pectoral și micul pectoral. Mai profund se află mușchiul subclavicular și dințatul mare, situat lateral, pe care desenul îl arată pe partea laterală a toracelui, sub brațul ridicat. Abdomenul: mușchii lui sunt lați. De o parte și de alta a liniei mediane se află mușchii drepți abdominali, iar lateral de ei mușchii oblic extern, oblic intern și transvers al abdomenului. Mușchii membrului superior Sunt grupați în mușchi ai umărului, ai brațului, ai antebrațului și ai mâinii. Principalul mușchi al umărului este deltoidul, situat imediat sub piele, care ridică membrul superior până la orizontală, realizând abducția brațului. La braț, anterior se află bicepsul brahial, mușchiul brahial și coracobrahialul, iar posterior tricepsul. Bicepsul este marcat pe brațul ridicat din desenul din față, iar tricepsul pe cel din desenul din spate. La antebraț, mușchii anteriori sunt flexori ai antebrațului și ai mâinii și pronatori ai mâinii, unii fiind și flexori ai degetelor, iar cei posteriori și laterali sunt extensori ai antebrațului, mâinii și degetelor. Mușchii membrului inferior La membrul inferior se descriu mușchii bazinului, ai coapsei, ai gambei și ai piciorului. Bazinul: în jurul articulației șoldului se găsesc mușchii fesieri, cele două mase rotunjite din desenul din spate. Coapsa: mușchii sunt grupați în loja anteromedială, loja posterioară și loja laterală. În loja anterioară se află mușchiul croitor, cel mai lung mușchi al corpului, iar sub el cvadricepsul. În partea medială se găsesc cei trei mușchi adductori, mare, scurt și lung (în figură este marcat adductorul lung), și mușchiul drept medial. Acești patru mușchi, prin contracție, apropie coapsele între ele, adică fac adducția. În loja posterioară se află bicepsul femural, semitendinosul și semimembranosul. Gamba: mușchii sunt grupați într-o lojă anterolaterală și o lojă posterioară. În loja anterioară se află mușchii tibial anterior și extensori ai degetelor, iar în cea laterală peronierii scurt și lung. Loja posterioară are, în plan superficial, mușchiul gastrocnemian, care împreună cu solearul formează tricepsul sural, iar în plan profund mușchii tibial posterior și flexori ai degetelor, care fac extensia labei piciorului și flexia degetelor. În desenul din față, grupul anterior se vede pe partea anterolaterală a gambei, iar grupul posterior doar pe partea ei medială. Forme și structură Mușchii au forme variate, iar figura îți arată câteva dintre ele: mușchi fusiformi, ca bicepsul și tricepsul, mușchi de formă patrulateră, ca marele drept abdominal și marele dorsal, mușchi în formă de trapez, ca mușchiul trapez, și mușchi circulari, ca orbicularul pleoapelor. Bicepsul, tricepsul și cvadricepsul sunt și exemplele date de manual pentru mușchii cu mai multe origini, deși, în general, originea unui mușchi este unică. Structura oricăruia dintre ei, cu corpul mușchiului și tendoanele de la capete, o poți urmări în Figura 70.

Fig. 72 · Biologie Corint · p. 70
Contracția musculară: sarcomerul și complexele actină-miozinăFigura ilustrează contractilitatea, proprietatea specifică a mușchiului de a dezvolta tensiune între capetele sale sau de a se scurta. Pornește de la o porțiune de fibră musculară striată și coboară, nivel cu nivel, până la filamentele din interiorul miofibrilelor. De sus în jos vezi fibra desenată în volum și tăiată la un capăt, imaginea de microscop a striațiilor unei miofibrile, aceleași striații redesenate ca schemă colorată, filamentele din dreptul lor și, la urmă, un sarcomer în contracție. Liniile punctate arată porțiunea de miofibrilă care a fost mărită. Imaginea de microscop, schema și filamentele sunt desenate exact una sub alta, străbătute de aceleași linii verticale, așa că fiecare bandă poate fi urmărită de sus până jos. Fibra musculară Manualul dă fibra musculară striată ca exemplu de celulă polinucleată, cu mai mulți nuclei. În desenul de sus se recunosc: Sarcolema, membrana care învelește fibra la exterior. Proprietăților membranei celulare (permeabilitate selectivă, conductanță ionică, polarizare electrică, pompe ionice) li se datorează excitabilitatea mușchiului. Nucleul, așezat la periferia fibrei, chiar sub sarcolemă. Mitocondriile, organite mici presărate printre miofibrile. Sunt sediul fosforilării oxidative (sinteza de $\ce{ATP}$), cu eliberare de energie, iar procesele chimice din mușchi asigură energia necesară proceselor mecanice. Miofibrilele, organitele specifice ale fibrei: elemente contractile din sarcoplasmă, care străbat fibra pe toată lungimea ei și apar ca niște cercuri pe secțiunea de la capăt. Una dintre ele este desenată fără rețeaua de saci din jur, cu striațiile la vedere, iar din ea pornesc liniile punctate. Sacii de stocare a calciului, o rețea care îmbracă fiecare miofibrilă ca un manșon și care se vede, pe secțiune, și printre miofibrile. Sarcomerul și striațiile Mărită, miofibrila arată o alternanță regulată de discuri întunecate și clare. Porțiunea care se repetă este sarcomerul, unitatea morfofuncțională a miofibrilei, cuprinsă între două membrane Z, liniile subțiri care despart sarcomerele vecine. Un sarcomer relaxat se întinde, pe imaginea de microscop, de la o membrană Z la următoarea și cuprinde: Discul clar (banda I), porțiunea deschisă la culoare. Membrana Z îl străbate la mijloc, așa că fiecare sarcomer are câte o jumătate de disc clar la fiecare capăt. Discul întunecat (banda A), porțiunea închisă la culoare din mijlocul sarcomerului. Banda H luminoasă, zona mai deschisă din centrul discului întunecat, la jumătatea distanței dintre cele două membrane Z. Schema colorată reia aceeași succesiune, cu membranele Z și mijlocul sarcomerului trasate ca linii verticale. Filamentele din dreptul benzilor Sub schemă sunt desenate filamentele, pe aceleași linii verticale: Filamentele de miozină, mai groase, stau în mijlocul sarcomerului, în dreptul discului întunecat, fără să ajungă la membranele Z. Filamentele de actină, mai subțiri, sunt prinse de membranele Z, de o parte și de alta a fiecăreia, și se îndreaptă spre mijlocul sarcomerului, printre filamentele de miozină, fără să ajungă până la centru. Comparând schema cu filamentele de sub ea, îi înțelegi culorile: fiecare bandă are nuanța filamentelor aflate dedesubt. Discul clar este zona cu doar filamente de actină, banda H este partea din mijloc a filamentelor de miozină, la care actina nu ajunge, iar pe marginile discului întunecat, unde filamentele se întrepătrund, cele două nuanțe se amestecă. Actina și miozina sunt proteinele contractile, baza moleculară a contractilității, iar legenda figurii precizează că la contracție se formează complexe actină-miozină. Ce se schimbă la contracție Desenul cel mai mic, de la baza figurii, arată un sarcomer în contracție. Membranele Z sunt vizibil mai apropiate decât în sarcomerul relaxat, deci sarcomerul s-a scurtat. Filamentele au cam aceeași lungime ca înainte, dar se întrepătrund aproape complet: filamentele de actină din cele două părți ajung până la mijloc, iar capetele filamentelor de miozină aproape ating membranele Z. Așa arată contractilitatea la nivelul bazei ei anatomice, sarcomerul. De la stimul la contracție Mușchii răspund la un stimul printr-un potențial de acțiune propagat, urmat de contracția caracteristică. Stimularea pe cale naturală vine de la placa motorie (Figura 74), iar potențialul de acțiune se propagă în lungul fibrei cu o viteză de 30 m/s. Între această manifestare electrică, de la nivelul membranei fibrei, și fenomenele mecanice din sarcomer se produce un lanț de reacții fizico-chimice, numit cuplaj excitație-contracție. Rezultatul mecanic se înregistrează cu miograful, sub formă de secusă sau de tetanos (Figura 73), iar locul fibrei în mușchiul întreg se vede în Figura 70.

Fig. 73 · Biologie Corint · p. 71
Contracția musculară: secusa și tetanosulManualul descrie patru manifestări ale contracției musculare (electrice, chimice, mecanice și termice), iar figura le ilustrează pe cele mecanice, care se studiază cu ajutorul miografului. Cele două grafice, așezate unul sub altul, se citesc de la stânga la dreapta, ca o înregistrare în timp: graficul a arată răspunsul mușchiului la un singur stimul, iar graficul b răspunsul la stimuli repetați. Înălțimea curbei negre arată amplitudinea contracției, benzile colorate din fundal despart fazele, iar pătrățelele roșii de la baza graficelor marchează momentele în care se aplică stimulii. Graficele nu au valori pe axe, așa că duratele și frecvențele de mai jos sunt cele din textul manualului. (a) Secusa musculară Aplicarea unui stimul unic, cu valoare prag, determină o contracție musculară unică, numită secusă musculară. În grafic apare un singur pătrățel roșu, la capătul primei benzi, urmat de o singură undă, cu trei faze: Faza de latență corespunde benzii înguste de după pătrățelul roșu și durează din momentul aplicării excitantului până la apariția contracției. În acest timp are loc manifestarea electrică a contracției (potențialul de acțiune al fibrei musculare), legată de fenomenele mecanice din sarcomer (Figura 72) prin lanțul de reacții fizico-chimice numit cuplaj excitație-contracție. Durata fazei depinde de tipul de mușchi și este de cca 0,01 s la mușchiul striat. Faza de contracție este urcarea curbei până la vârf și durează în medie 0,04 s. Faza de relaxare este coborârea curbei, de la vârf înapoi la linia de plecare, și durează 0,05 s. Adunate, duratele celor trei faze dau durata totală a secusei, de 0,1 s. Secusa poate fi izometrică (lungimea mușchiului rămâne neschimbată, iar tensiunea crește) sau izotonică (lungimea variază, iar tensiunea rămâne constantă). Amplitudinea ei variază proporțional cu intensitatea stimulului aplicat, până la o valoare maximă, pentru că un stimul tot mai intens antrenează în contracție tot mai multe fibre musculare. (b) Tetanosul Dacă în locul stimulului unic se folosesc stimuli repetitivi, la intervale mici și regulate, curba nu mai este o secusă, ci o sumație de secuse, numită tetanos (contracție tetanică). În grafic, pătrățelele roșii sunt la început rare, apoi se îndesesc și rămân dese până la capăt. După primul stimul, curba trece prin trei benzi: Tetanosul incomplet ocupă banda largă de după primul pătrățel roșu, marcată sus „tetanos incomplet” și jos „sumație”. Fiecare secusă nouă pornește înainte ca curba să fi coborât la linia de plecare, deci de la un nivel mai ridicat decât cea dinaintea ei: secusele se sumează. Rezultă un platou dințat, care exprimă sumarea incompletă a secuselor la stimularea repetitivă cu frecvență joasă, de 10-20 stimuli pe secundă. Pe măsură ce pătrățelele se îndesesc, dinții devin tot mai mici. Tetanosul complet ocupă banda următoare, unde curba devine un platou regulat. Acesta exprimă sumația totală a secuselor, obținută prin aplicarea stimulilor cu o frecvență mult mai mare, de 50-100 stimuli pe secundă. Oboseala ocupă ultima bandă: deși pătrățelele roșii continuă, curba coboară. Oboseala musculară este determinată de o stare de contracție prelungită și susținută a mușchiului, cum este tetanosul din grafic. Ea se datorează epuizării glicogenului muscular și este proporțională cu rata acesteia. La ea contribuie și scăderea pH-ului intracelular, prin acumularea de acid lactic. Se consideră că cea mai mare parte a oboselii vine din incapacitatea proceselor contractile și metabolice ale fibrei musculare de a realiza în continuare același lucru mecanic. Secusă sau tetanos în organism Toate contracțiile voluntare ale mușchilor din organism sunt tetanosuri, nu secuse, pentru că comanda voluntară se transmite la mușchi prin impulsuri cu frecvență mare. Există însă și situații în care contracția este o secusă: frisonul, sistola cardiacă și contracția obținută în urma reflexului miotatic.

Fig. 74 · Biologie Corint · p. 71
Joncțiunea neuro-musculară: placa motorieFigura prezintă placa motorie, numită și joncțiune neuro-musculară, locul în care o fibră nervoasă motorie transmite comanda către o fibră musculară striată. Sunt două desene într-unul. Cel mare arată de ansamblu cum se termină nervul pe suprafața mușchiului, iar chenarul din dreapta mărește zona încadrată într-un mic dreptunghi pe desenul mare. Urmărește întâi fibra nervoasă de sus până la mușchi, apoi treci la chenar. Ce este placa motorie Sinapsa este conexiunea funcțională dintre un neuron și o altă celulă. În sistemul nervos central, a doua celulă este tot un neuron, dar în sistemul nervos periferic ea poate fi și o celulă efectoare, musculară sau secretorie. Sinapsa neuromusculară seamănă cu cea dintre doi neuroni, dar poartă un nume aparte: placă motorie sau joncțiune neuromusculară. Este o sinapsă chimică, în care transmiterea se face într-un singur sens, dinspre terminația nervoasă spre fibra musculară. Desenul de ansamblu Fibra neuronală motorie este prelungirea unui neuron motor, pe care impulsul nervos ajunge la mușchi. Prin astfel de fibre, mușchiul scheletic primește inervația somatică. Cealaltă inervație a lui, vegetativă, determină reacții vasomotorii. Ramificațiile nervoase apar acolo unde porțiunea terminală a fibrei se desface în mai multe ramuri, întinse pe suprafața mușchiului. Ultimele ramificații, butonii terminali, arată ca niște mici umflături. Placa motorie este locul în care unul dintre butonii terminali se sprijină pe fibra musculară. Pe desenul mare este încadrată într-un dreptunghi. Nucleul fibrei musculare stă la marginea fibrei, între suprafața pe care se sprijină terminațiile nervoase și miofibrile. Fibra musculară striată este polinucleată, iar desenul marchează unul dintre nucleii ei. Miofibrilele se văd acolo unde fibra musculară este tăiată: pe secțiune apar ca niște discuri strânse unele lângă altele. Ele sunt elementele contractile din sarcoplasma fibrelor musculare. Chenarul mărit Chenarul arată un singur buton terminal, care coboară de sus și este cuprins de membrana fibrei musculare, desenată cu numeroase cute adânci. Veziculele sinaptice sunt punctele mici din interiorul butonului. Sunt pline cu mediatori chimici, care înlesnesc transmiterea influxului nervos la nivelul sinapselor. Mitocondriile sunt organitele ovale din buton, printre vezicule, marcate și în fibra musculară, sub joncțiune. Ele sunt sediul fosforilării oxidative, cu eliberare de energie. Fanta joncțiunii este spațiul îngust dintre butonul terminal și membrana fibrei musculare, care pătrunde în toate cutele acesteia. Ea corespunde fantei sinaptice a unei sinapse chimice. Placa motorie (joncțiunea neuro-musculară) este aici zona de contact dintre butonul terminal și fibra musculară, aceeași structură ca pe desenul mare, văzută de aproape. Cum trece comanda de la nerv la mușchi Impulsul nervos ajunge, prin fibra neuronală motorie și ramificațiile ei, până la butonul terminal. Sub acțiunea impulsului, mediatorul chimic din vezicule se eliberează în cuante în fanta joncțiunii. Mediatorul interacționează cu receptorii specifici de pe membrana fibrei musculare și modifică potențialul acesteia. Depolarizarea care apare se numește potențial terminal de placă. Ea nu trebuie confundată cu potențialul de acțiune și are două proprietăți speciale, sumația temporală și sumația spațială. Mecanismul este cel al sinapsei chimice din Figura 15. Aceasta este stimularea fibrei musculare pe cale naturală, de la placa motorie (pe cale artificială, fibra se stimulează cu curent electric). Ea provoacă apariția unui potențial de acțiune, propagat în lungul fibrei cu o viteză de 30 m/s. Între această manifestare electrică de la nivelul membranei și fenomenele mecanice din sarcomerele miofibrilelor se produce un lanț de reacții fizico-chimice, numit cuplaj excitație-contracție, care duce la contracție (Figura 72). Legături cu restul capitolului Printre manifestările electrice ale contracției, manualul notează că potențialele de acțiune ale unei unități motorii se sumează, dând potențialele de placă motorie. Activitatea electrică a întregului mușchi sau a unităților motorii componente poate fi înregistrată, obținându-se electromiograma. Nu confunda cei doi termeni: „potențialul terminal de placă” este depolarizarea produsă de mediator, iar „potențialele de placă motorie” sunt, în formularea manualului, rezultatul sumării potențialelor de acțiune ale unei unități motorii. Tot la acest nivel se explică o parte din oboseala musculară: după o activitate musculară prelungită, transmiterea semnalelor nervoase la nivelul joncțiunii neuromusculare poate scădea, iar contracția musculară se diminuează.
- BFuncțiile de nutrițiePaginile 74 - 115
- 1Digestia și absorbțiaPaginile 74 - 83
Fig. 75 · Biologie Corint · p. 74
Cavitatea bucalăFigura arată cavitatea bucală privită din față, cu gura larg deschisă și cu limba ridicată, astfel încât se văd toate structurile care o delimitează. Citește desenul de la exterior spre interior: buzele încadrează deschiderea, urmează cele două arcade dentare cu gingia, deasupra se află palatul, dedesubt limba, iar în adâncime, dincolo de luetă, se deschide cavitatea faringiană. Cavitatea bucală este primul segment al tubului digestiv, locul în care alimentele sunt mestecate, amestecate cu salivă și transformate în bol alimentar. Buzele Buza superioară și buza inferioară mărginesc deschiderea gurii și închid cavitatea bucală în față. Pe linia mediană, frenul buzei superioare leagă fața internă a buzei de gingia de deasupra incisivilor. Manualul dă orbicularul buzelor ca exemplu de mușchi circular și arată că termoreceptorii, răspândiți peste tot în derm, sunt mai numeroși pe buze și în mucoasa bucală. Dinții și gingia Dinții sunt așezați pe două arcade, una superioară și una inferioară. Pe jumătatea de arcadă superioară pe care îi vezi marcați se succed, de la linia mediană spre înapoi, doi incisivi, un canin, doi premolari și trei molari, cei mai din spate. Baza dinților este înconjurată de gingie. Prin masticație, dinții fragmentează alimentele. La noțiunile de igienă, manualul explică cariile dentare, eroziuni ale dinților produse de bacterii. Totul începe cu placa bacteriană, o peliculă de alimente și salivă întinsă pe suprafața dinților și colonizată de bacterii. Acestea se hrănesc cu carbohidrați și produc acizi care dizolvă smalțul dentar, de aceea mai important decât cantitatea totală de carbohidrați este cât de des sunt consumați. Apa cu mici cantități de fluor face smalțul mai rezistent. Palatul și lueta Palatul formează partea de sus a cavității bucale și are două porțiuni. Palatul dur este partea din față, imediat înapoia arcadei dentare superioare, brăzdată în desen de cute transversale. Palatul moale îl continuă spre înapoi, iar din mijlocul marginii lui atârnă lueta, care marchează limita dintre gură și faringe. Manualul așază cavitatea nazală deasupra cavității bucale, iar în Figura 94 se vede, din profil, că între ele se află tocmai palatul dur și palatul moale. Trecerea spre faringe În fundul gurii, înapoia palatului moale și a luetei, se deschide cavitatea faringiană. Faringele, cu cele trei porțiuni ale lui (nazofaringe, orofaringe și laringofaringe), este segment comun sistemelor digestiv și respirator, o răspântie între calea respiratorie și cea digestivă. Pe peretele lateral al trecerii dintre gură și faringe se vede amigdala palatină. Manualul nu o descrie la digestie, dar numără amigdalele printre organele limfoide periferice, alături de ganglionii limfatici și de splină. Limba Limba ocupă planșeul gurii. În desen este ridicată, așa că i se vede și fața de dedesubt, legată de planșeu prin frenul lingual, cu vase de sânge de o parte și de alta. Limba poartă receptorii gustului: mugurii gustativi se află în papilele caliciforme (circumvalate), fungiforme și foliate ale mucoasei linguale (papilele filiforme nu au muguri gustativi) și sunt distribuiți astfel încât pe suprafața limbii se pot delimita zone caracteristice pentru câte un gust fundamental (Figura 47). Excitațiile gustative sunt culese de nervul facial de pe corpul limbii, de nervul glosofaringian din treimea posterioară și de nervul vag de la baza rădăcinii limbii, iar musculatura limbii este inervată de nervul hipoglos. Ce se petrece în cavitatea bucală Activitatea motorie a cavității bucale constă din masticație și din timpul bucal al deglutiției, iar cea secretorie se datorează glandelor salivare (submandibulare, sublinguale și parotide). Masticația este un act reflex involuntar, care se poate desfășura și sub control voluntar. Reflexul masticator este coordonat de centri nervoși din trunchiul cerebral. Masticația fragmentează alimentele, formează, lubrifiază și înmoaie bolul alimentar și asigură contactul cu receptorii gustativi, precum și eliberarea substanțelor odorante, care stimulează receptorii olfactivi și inițiază secreția gastrică. Saliva protejează mucoasa bucală, începe digestia amidonului preparat (α-amilaza îl hidrolizează în trepte până la maltoză), lubrifiază alimentele și dizolvă substanțele cu gust, pentru că numai substanțele solubile pot stimula mugurii gustativi. Timpul bucal al deglutiției încheie etapa bucală: alimentele omogenizate și îmbibate cu mucus formează bolul alimentar, care este împins voluntar în faringe. De aici încolo, deglutiția devine în întregime, sau aproape, un act automat (Figura 80).
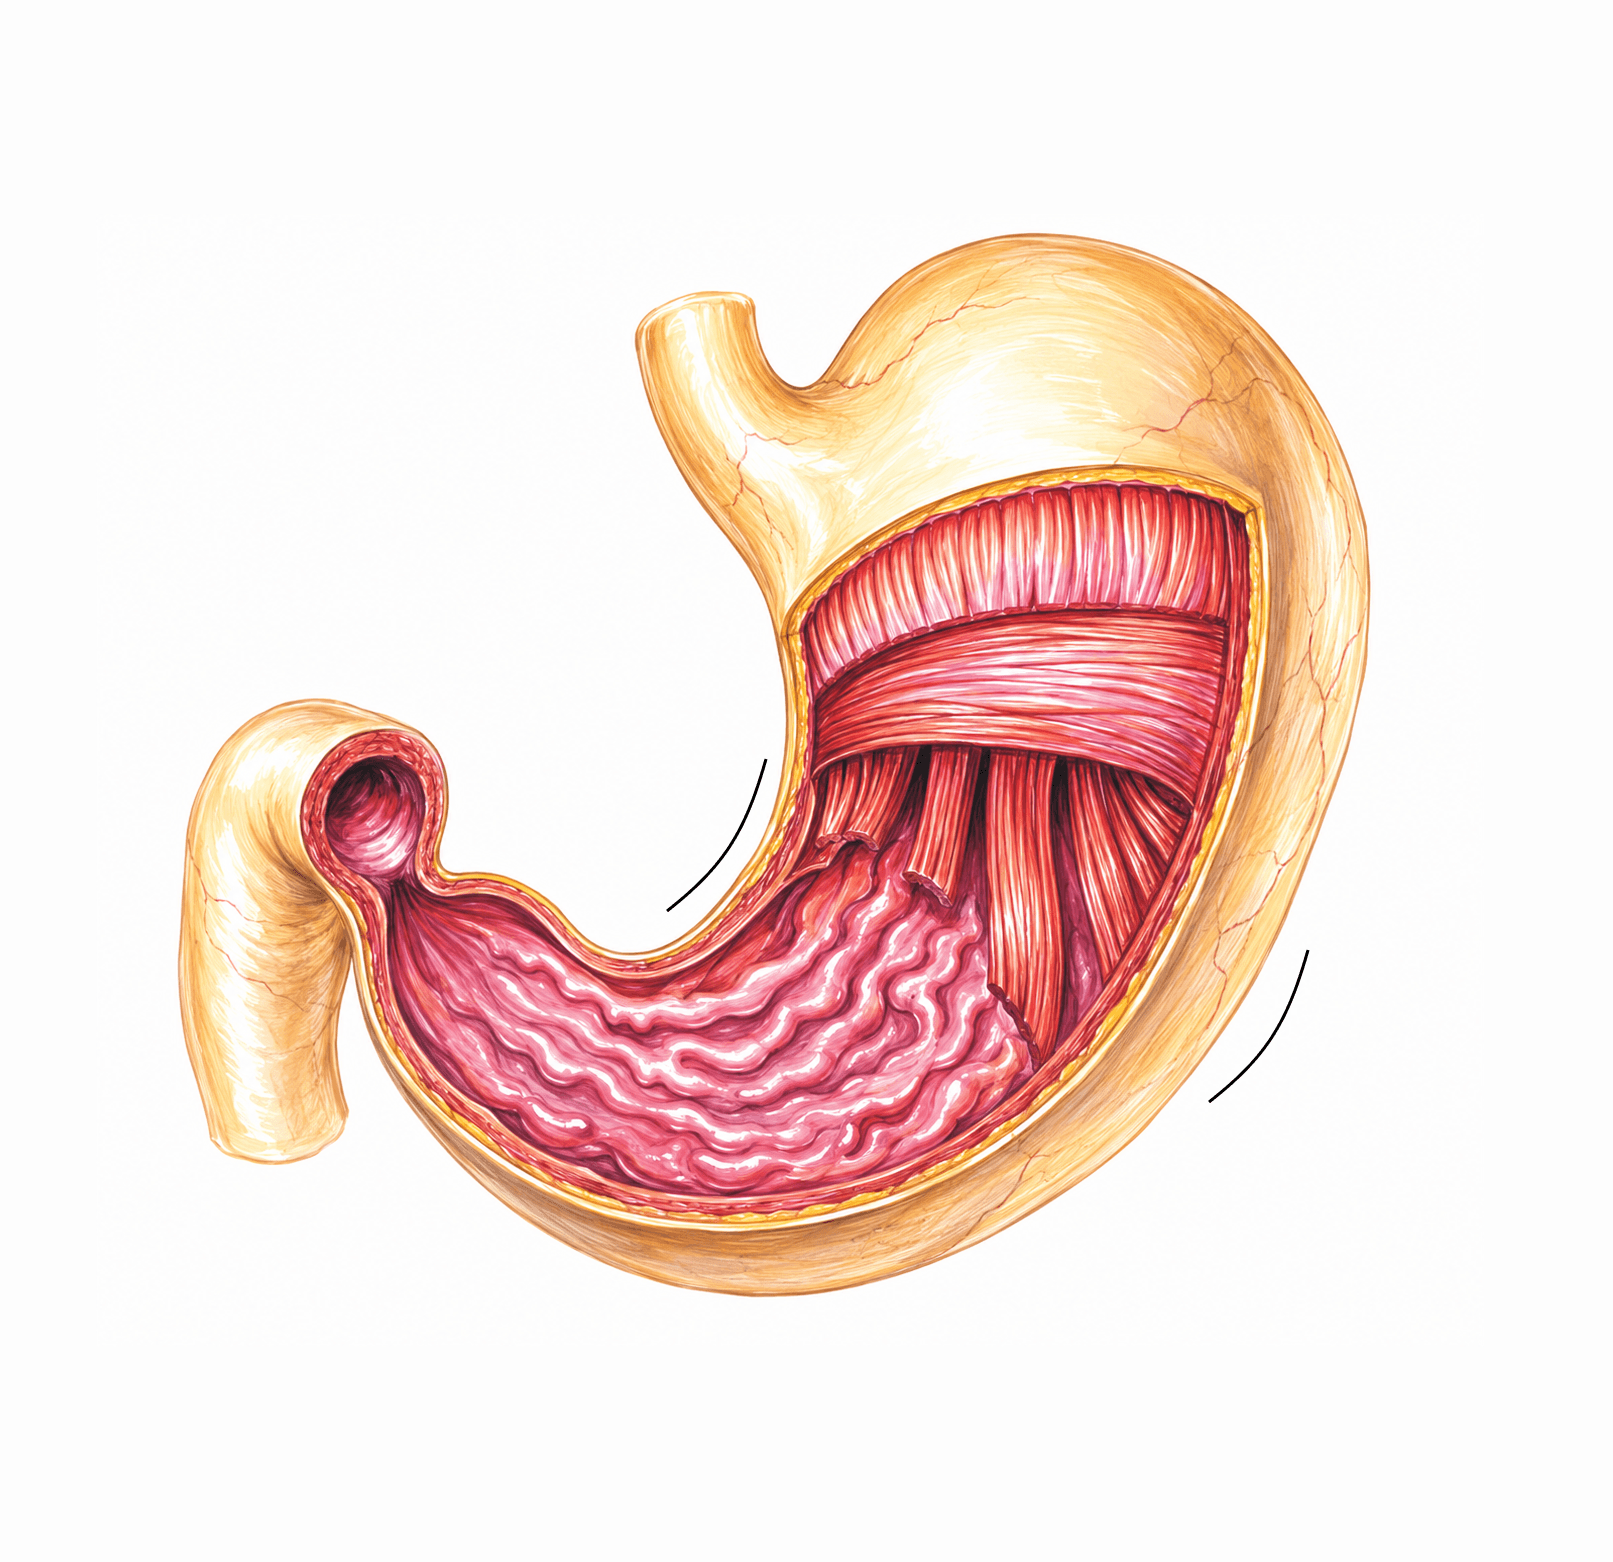
Fig. 76 · Biologie Corint · p. 74
Stomacul: regiunile și tunicile pereteluiFigura arată stomacul văzut din față, cu o fereastră decupată în perete. Prin această fereastră se văd, în partea de sus, straturile musculare desfăcute în trepte, iar mai jos interiorul organului, cu mucoasa cutată. Stomacul este segmentul tubului digestiv situat între esofag și intestinul subțire. Aici, activitatea motorie și cea secretorie a organului transformă bolul alimentar într-o pastă omogenă numită chim gastric. Ambele capete sunt desenate: sus, esofagul, prin care sosește bolul alimentar, iar în stânga, duodenul, prima porțiune a intestinului subțire, în care este evacuat chimul. Regiunile și curburile De la esofag spre duoden, stomacul are următoarele regiuni: Cardia, locul în care esofagul se unește cu stomacul. Fundul stomacului, porțiunea bombată care se ridică deasupra nivelului cardiei. Corpul gastric, care continuă fundul și coboară pe partea dreaptă a desenului până la regiunea antrală. Antrul piloric, porțiunea așezată aproape orizontal, care se îndreaptă spre duoden. Canalul piloric, porțiunea îngustă, terminală, prin care stomacul se continuă cu duodenul. Sfincterul piloric, inelul de la ieșirea din stomac, la granița cu duodenul. Organul are două margini. Marea curbură este marginea lungă și convexă, care îl conturează în dreapta și jos. Curbura mică este marginea scurtă și concavă, de pe partea opusă, care coboară pe stânga corpului gastric și se curbează spre pilor. Amândouă se întind de la cardia până la pilor. Tunicile peretelui De la suprafață spre interior, peretele stomacului are următoarele straturi: Adventicea, învelișul extern, care acoperă din afară tot organul. Musculatura, cu trei straturi desfăcute în trepte în partea de sus a ferestrei: mușchiul longitudinal, cel mai superficial, cu fibrele în lungul organului, mușchiul circular, cu fibrele dispuse inelar, și mușchiul oblic, cel mai profund, cu fibrele orientate oblic. Submucoasa, stratul subțire aflat imediat sub mucoasă, vizibil pe marginea de jos a ferestrei. Mucoasa, tunica internă, care vine în contact cu alimentele. Ca în tot tubul digestiv, are un epiteliu de acoperire simplu (unistratificat), cilindric. Ea formează plicile mucoasei, cutele care dau feței interne a stomacului aspectul încrețit. Fibrele celor trei straturi musculare sunt fibre musculare netede. Potențialul de acțiune al unei astfel de fibre, de la nivelul antrului piloric, este reprezentat în Figura 9. Ce se întâmplă în stomac Activitatea motorie a stomacului, adică motilitatea gastrică (Figura 81), realizează trei lucruri: stocarea alimentelor, ca urmare a relaxării receptive, amestecul alimentelor cu secrețiile gastrice și evacuarea conținutului gastric în duoden. Stomacul se pregătește pentru primirea alimentelor încă din timpul deglutiției: când unda de relaxare care precedă contracția esofagului ajunge la nivelul esofagului inferior, întreg stomacul se relaxează. Contracțiile peristaltice pornesc de la granița dintre fundul și corpul gastric și se deplasează caudal, împingând alimentele spre pilor. Forța lor este controlată de acetilcolină și de gastrină. Când conținutul gastric este împins puternic spre sfincterul piloric închis, chimul face mișcări de du-te-vino, numite retropulsie, importante pentru amestecul alimentelor cu secrețiile gastrice. Secrețiile gastrice continuă procesele digestive începute în cavitatea bucală. Zilnic se secretă aproximativ 2 L de suc gastric, un lichid incolor cu pH-ul cuprins între 1 și 2,5 la adulți. Celulele secretorii se află în glandele gastrice din mucoasă. Există două tipuri de glande gastrice, fiecare în alte regiuni ale stomacului: glandele oxintice, din fundul și corpul gastric, care secretă $\ce{HCl}$, factor intrinsec, pepsinogen și mucus, glandele pilorice, din regiunile antrală și pilorică, care conțin celule G, ce eliberează gastrină, și celule mucoase, ce secretă mucus.
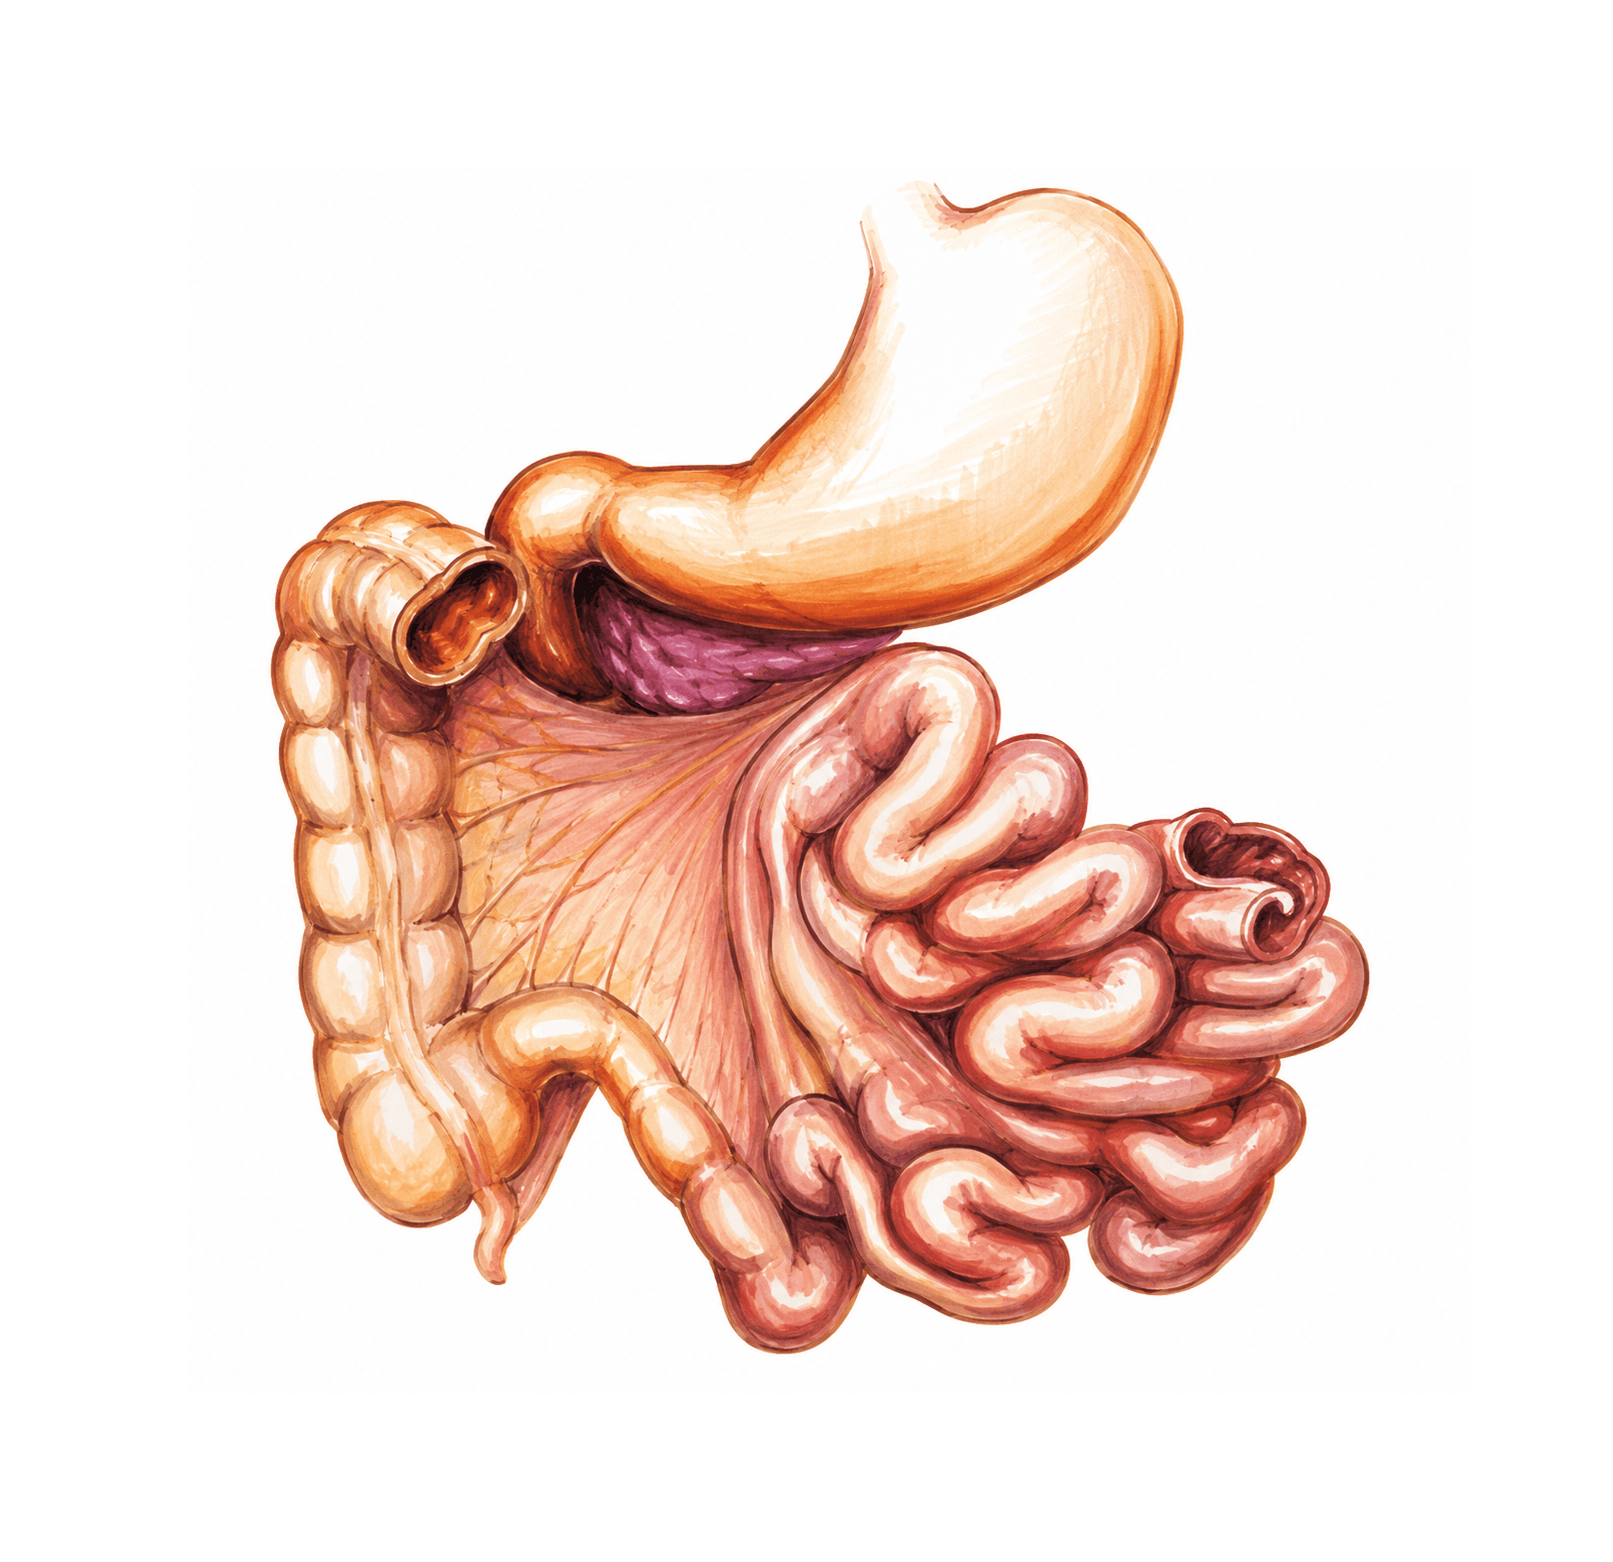
Fig. 77 · Biologie Corint · p. 74
Intestinul subțire: duoden, jejun și ileonFigura arată intestinul subțire împreună cu organele de la cele două capete ale lui: stomacul, în partea de sus, și începutul intestinului gros, în stânga. Desenul se citește cel mai ușor urmărind drumul chimului. Acesta pleacă din stomac, trece prin duoden, parcurge ansele strânse ale jejunului și ileonului, care umplu partea dreaptă și partea de jos a imaginii, și ajunge în stânga jos, în cec. În centru, între anse și colonul ascendent, se întinde mezenterul. Intestinul subțire este segmentul tubului digestiv cuprins între stomac și intestinul gros. Aici digestia continuă sub acțiunea sucului pancreatic, a bilei și a sucului intestinal, iar produșii ei trec în sânge și limfă prin absorbție. Cele trei porțiuni Duodenul este prima porțiune, în care stomacul își evacuează conținutul. În desen apare ca un segment scurt, sus, imediat după capătul îngust al stomacului. În duoden se varsă bila și sucul pancreatic, al cărui $\ce{HCO3-}$ neutralizează aciditatea gastrică (Figura 79). Glandele Brunner din duoden secretă mucus, care protejează mucoasa intestinală de agresiunea $\ce{HCl}$. Duodenul are și celule cu rol endocrin, care secretă 6-8 hormoni cu rol în reglarea activității secretorii și motorii a aparatului digestiv. Printre ei se află colecistokinina, care declanșează eliberarea bilei. Jejunul este porțiunea mijlocie. Începe la flexura duodeno-jejunală, cotul de sub stomac care marchează trecerea de la duoden la jejun, iar ansele lui ocupă partea dreaptă a desenului. În jejun și în ileon se absoarbe fierul, $\ce{Fe^2+}$ mai ușor decât $\ce{Fe^3+}$. Ileonul este porțiunea terminală, cu ansele în partea de jos a desenului, și se deschide în cec prin valva ileocecală. În ileon se reabsorb activ sărurile biliare, care nu sunt liposolubile și rămân în intestin până aici. Tot aici se absoarbe vitamina B12, cu ajutorul factorului intrinsec secretat de stomac. Structurile din jur Stomacul, în partea de sus, este organul în care bolul alimentar devine chim gastric, evacuat apoi în duoden. Mezenterul este formațiunea în evantai din centrul desenului, din care pornesc ansele jejunului și ileonului. Cecul, punga rotunjită din stânga jos, este prima porțiune a intestinului gros și primește conținutul ileonului. Apendicele vermiform este prelungirea subțire care atârnă din cec. Colonul ascendent urcă din cec de-a lungul marginii stângi a desenului. Celelalte porțiuni ale colonului și rectul sunt prezentate în Figura 78. Vascularizația Cele mai multe dintre organele din figură primesc sânge din două ramuri viscerale ale aortei abdominale. Trunchiul celiac vascularizează stomacul și duodenul, alături de pancreas, ficat și splină. Artera mezenterică superioară vascularizează jejuno-ileonul, cecul, colonul ascendent și partea dreaptă a colonului transvers. Cum înaintează chimul Mișcările intestinului subțire sunt de două feluri: Contracțiile de amestec (contracțiile segmentare) fragmentează chimul de 8-12 ori pe minut și amestecă treptat particulele alimentare solide cu secrețiile intestinului subțire. Mișcările de propulsie se datorează undelor peristaltice, care pot apărea în orice parte a intestinului subțire. Chimul este împins în direcție anală cu o viteză de 0,5-2 cm/secundă, mult mai rapid în intestinul proximal decât în cel terminal. Tot drumul din figură, de la pilor (ieșirea din stomac) până la valva ileocecală, este parcurs de chim în 3-5 ore. De ce se absoarbe atât de bine aici Absorbția este favorizată în intestinul subțire de patru particularități: Suprafața mare de contact, datorată structurii specifice a mucoasei. Distanța mică pe care o au de străbătut moleculele, pentru că peretele are aici grosimea minimă. Rețeaua vasculară foarte bogată a vilozităților (Figura 85). În perioadele de digestie, printr-un mecanism reflex, cantitatea de sânge de aici poate crește. Mișcările contractile ale vilozităților, care înlesnesc tranzitul substanțelor absorbite. După absorbție, aminoacizii și monozaharidele ajung la ficat prin vena portă, iar lipidele trec în circulația limfatică.
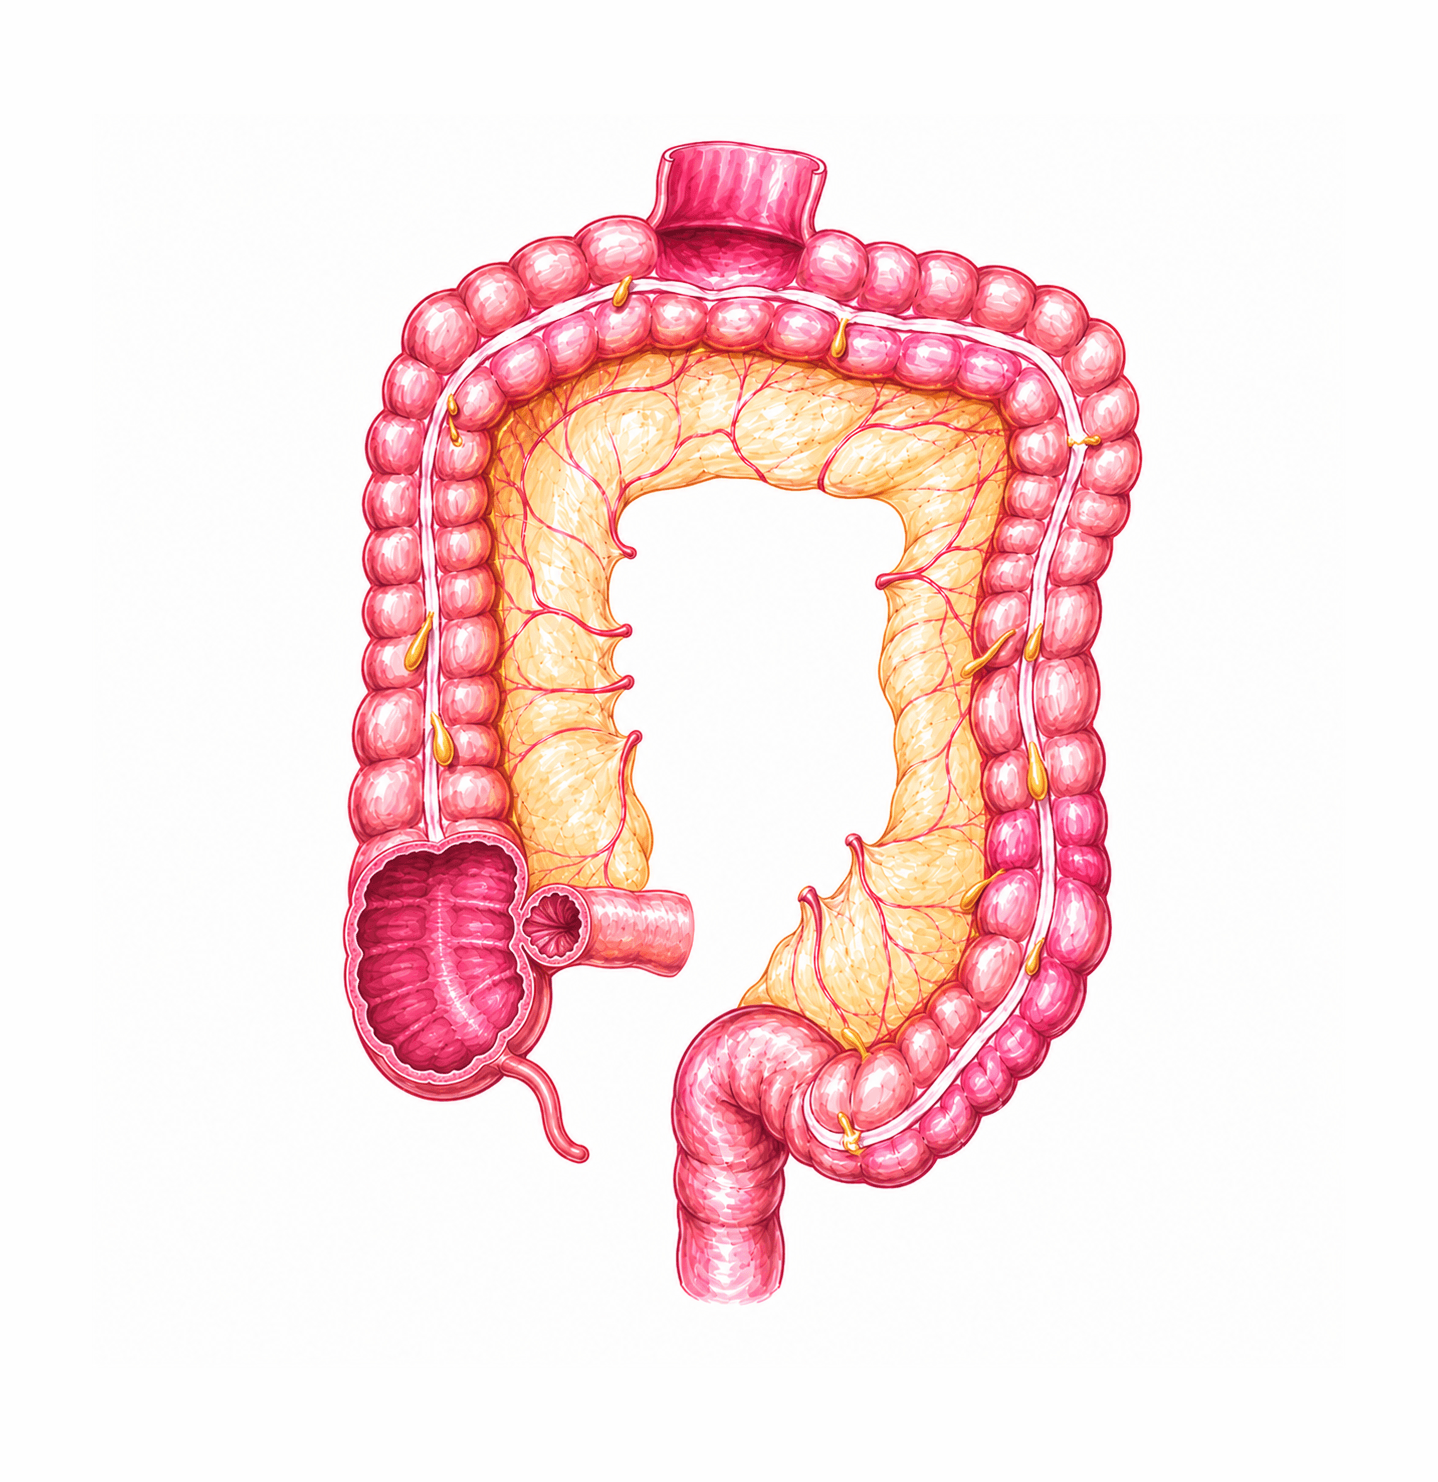
Fig. 78 · Biologie Corint · p. 74
Intestinul gros: cecul, colonul și rectulFigura prezintă intestinul gros, ultimul segment al tubului digestiv. Colonul formează în desen un fel de ramă: urcă pe o parte, trece pe deasupra și coboară pe partea cealaltă, apoi se continuă cu rectul. Ca să te orientezi, caută flexura colică stângă: numele ei spune că se află pe partea stângă a corpului, dar în desen apare în dreapta sus. Figura este deci văzută din față, așa că ce se află pe partea dreaptă a corpului apare în stânga imaginii, și invers. Manualul împarte intestinul gros în trei porțiuni: cecul, colonul, cu patru segmente (ascendent, transvers, descendent și sigmoid), și rectul. Porțiunile, în ordinea în care le străbate conținutul Pornește din stânga jos a desenului și urmărește colonul în sensul acelor de ceasornic: Ileonul, ultima porțiune a intestinului subțire (Figura 77), apare doar ca un capăt scurt de tub. El se deschide în intestinul gros prin valvula ileo-cecală. Chimului îi trebuie 3-5 ore ca să ajungă de la pilor până la această valvă. Cecul este prima porțiune a intestinului gros, partea largă și rotunjită de sub deschiderea ileonului. Din el atârnă apendicele vermiform, o prelungire subțire. Colonul ascendent urcă din cec pe partea dreaptă a abdomenului. Colonul transvers traversează abdomenul pe sus, până la flexura colică stângă, cotul în care colonul se întoarce în jos. Colonul descendent coboară pe partea stângă a abdomenului și se continuă cu colonul sigmoid, porțiunea încovoiată din partea de jos. Rectul este ultima porțiune a intestinului gros. Din el, fecalele sunt împinse în canalul anal. Ce se vede pe colon Pe suprafața colonului se disting trei detalii: Teniile (benzile musculare) sunt benzi înguste care urmăresc colonul pe lungimea lui. Haustrele sunt umflăturile în formă de saci, așezate una după alta de-a lungul colonului. Ele sunt zonele nestimulate ale peretelui colic, proiectate în afară în timpul mișcărilor de amestec. Apendicele epiploice (adipoase) sunt mici formațiuni grăsoase, atârnate din loc în loc pe suprafața colonului. Pe marginea interioară a colonului se prinde mezocolonul, o foiță pe care se văd vase ramificate ce ajung până la colon. Cum lucrează colonul Rolurile principale ale colonului sunt absorbția apei și a electroliților, în jumătatea proximală, și depozitarea materiilor fecale până la eliminarea lor, în jumătatea distală. Din cauza acestor roluri, mișcările colonului sunt lente. Manualul descrie două feluri de mișcări: Mișcările de amestec (haustrațiile) se produc prin contracțiile combinate ale musculaturii circulare și longitudinale colice. Zonele nestimulate ale peretelui se proiectează în afară sub forma haustrelor, care se deplasează lent, în direcție anală, în timpul contracției lor. Astfel, conținutul colic este împins progresiv spre colonul sigmoid. Mișcările propulsive rezultă în principal din contracțiile haustrale în direcție anală și din mișcările în masă, un tip de peristaltism modificat. Mișcările în masă apar de obicei de câteva ori pe zi. Cele mai numeroase au loc în prima oră de la micul dejun și durează aproximativ 15 minute. Colonul absoarbe cea mai mare parte a sodiului și a clorului care nu au fost absorbite în intestinul subțire, în timp ce potasiul este secretat de colon. Aceste procese sunt controlate de aldosteron. Cât despre apă, colonul nu poate absorbi mai mult de 2-3 L pe zi. Din cei 1500 mL de chim, doar 80-200 mL se pierd prin fecale. Defecația Defecația este procesul de eliminare a materiilor fecale din intestin. Unele mișcări în masă împing fecalele în rect și declanșează dorința de defecație. Urmează contracția musculaturii netede a colonului distal și a rectului, care împinge fecalele în canalul anal, apoi relaxarea sfincterelor anale intern și extern. Sfincterul extern conține fibre musculare striate, aflate sub control voluntar.
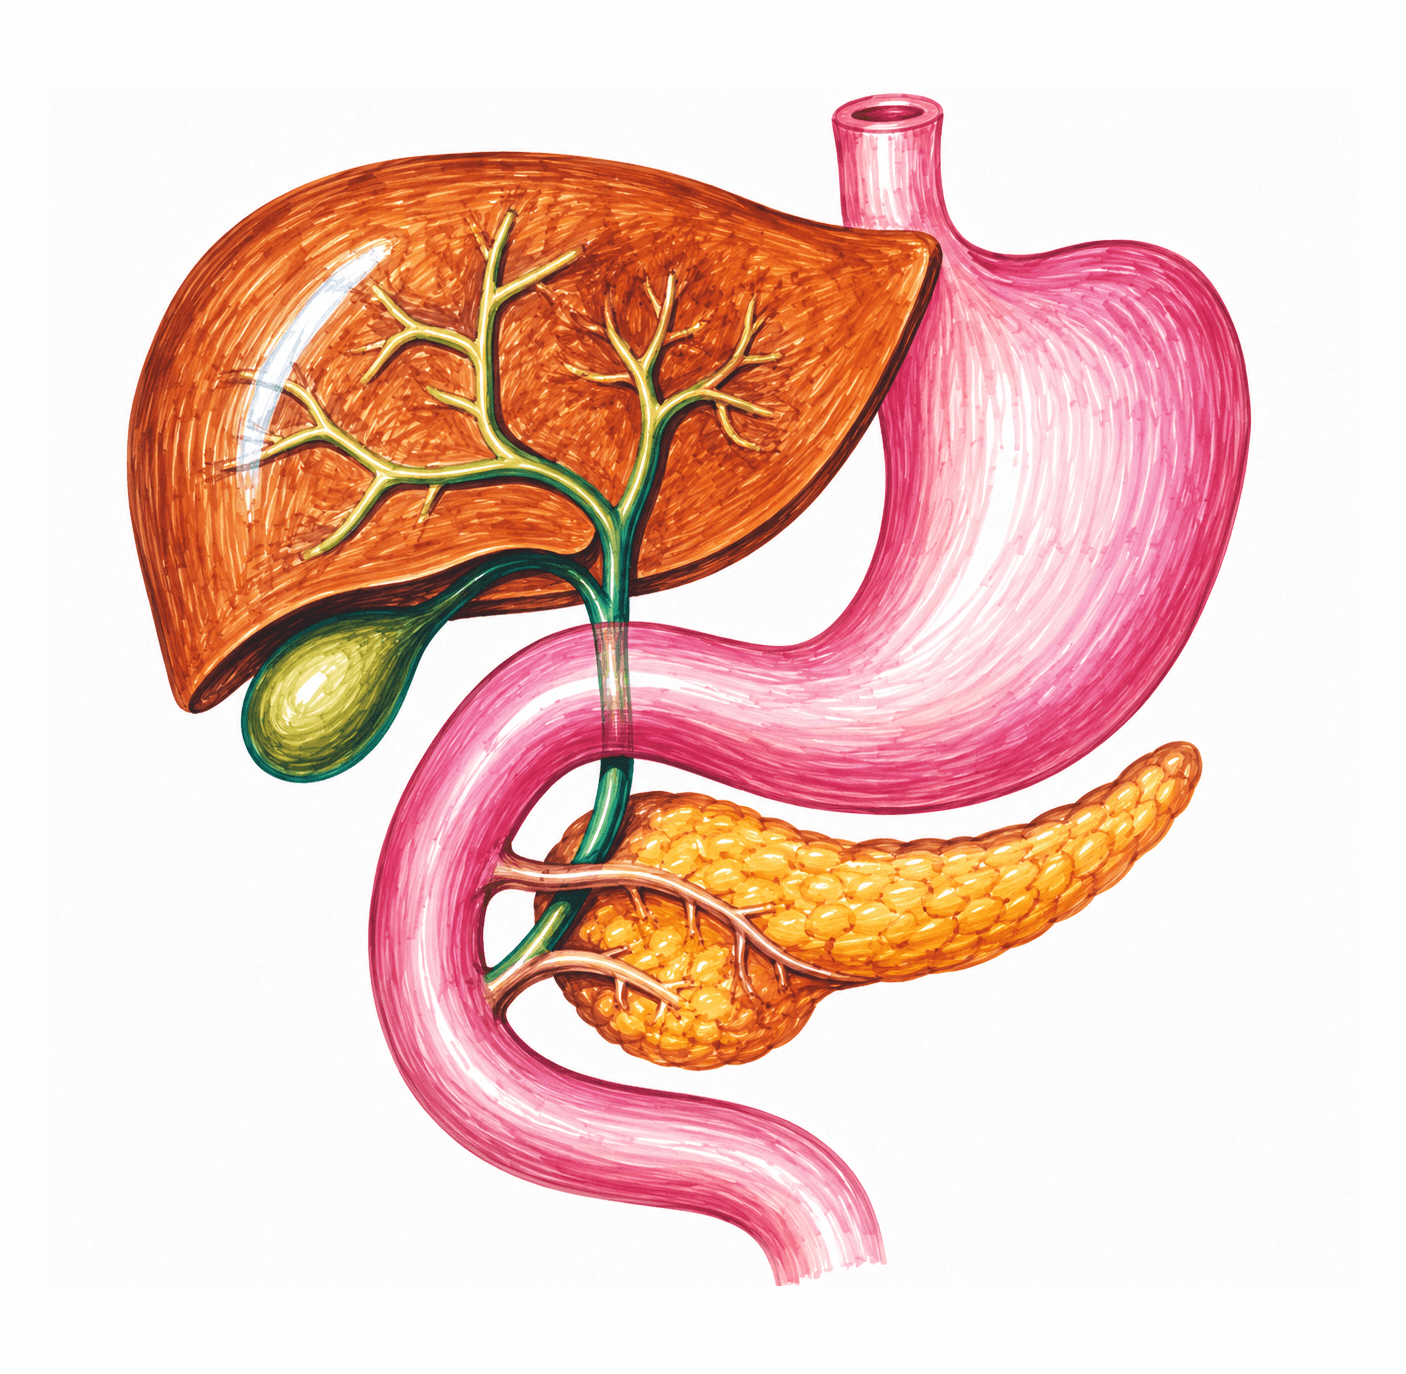
Fig. 79 · Biologie Corint · p. 75
Ficatul și pancreasul: glandele anexe și căile lorFigura arată ficatul și pancreasul, împreună cu canalele prin care produsele lor ajung în intestin. Alături de glandele salivare, cele două organe alcătuiesc glandele anexe ale tubului digestiv. Ficatul ocupă partea de sus a desenului, iar sub marginea lui inferioară se află vezica biliară. În dreapta se vede stomacul, cu esofagul deasupra. Pe sub ficat, stomacul se continuă cu duodenul, care coboară și se curbează ca o potcoavă. În această curbură stă capul pancreasului, iar restul glandei se întinde spre dreapta, sub stomac. Figura se citește cel mai ușor urmărind canalele: cele care pornesc din ficat duc bila, cele din pancreas duc sucul pancreatic, iar toate se termină în duoden. Ficatul și căile biliare Bila este formată de hepatocite și de celulele ductale care mărginesc ductele biliare, în cantitate de 250-1100 mL/zi. Este secretată continuu, iar drumul ei se poate urmări pe desen, de sus în jos: Canalele hepatice se ramifică în grosimea ficatului și se adună într-un singur trunchi la marginea lui inferioară. Acesta se unește cu canalul cistic, canalul scurt care vine de la vezica biliară. În perioadele interdigestive, bila este depozitată în vezică, unde ajunge pe acest canal. Din punctul de unire, un canal comun coboară spre duoden, de-a lungul capului pancreasului. Figura nu îl numerotează, dar în Figura 83 apare cu numele de canal coledoc. Canalul se deschide în duoden, acolo unde se află sfincterul Oddi. Bila este necesară pentru digestia și absorbția lipidelor și pentru excreția unor substanțe insolubile în apă, cum sunt colesterolul și bilirubina. Ea conține acizi biliari (din care rezultă sărurile biliare), pigmenți biliari (bilirubina și biliverdina, care îi dau culoarea galbenă), lecitină, colesterol și electroliți, dar nu conține enzime. Cum ajunge bila în duoden În perioadele digestive, bila se eliberează în duoden numai după ce chimul a declanșat secreția de colecistokinină. Evacuarea ei este urmarea contracției musculaturii vezicii biliare, în paralel cu relaxarea sfincterului Oddi, iar ambele sunt realizate prin două mecanisme: Mecanismul umoral: colecistokinina este un hormon eliberat din celulele mucoasei duodenale ca răspuns, în principal, la pătrunderea în duoden a produșilor digestiei lipidelor. Ea produce contracția vezicii biliare și relaxarea sfincterului Oddi. Mecanismul nervos: stimularea vagală determină contracția musculaturii veziculare și relaxarea sfincteriană, iar stimularea simpatică are efecte antagonice. Pancreasul Pancreasul are trei porțiuni, pe care desenul le arată de la dreapta spre stânga: coada, capătul subțire cel mai depărtat de duoden, corpul, porțiunea mijlocie, și capul, porțiunea groasă cuprinsă în potcoava duodenului. Glanda conține celule endocrine, exocrine și ductale, iar în clasificarea țesuturilor apare printre glandele de tip mixt. Celulele endocrine sunt grupate în insulele Langerhans, care secretă insulină și glucagon (Figura 61). La digestie participă celelalte două tipuri de celule: Celulele exocrine, organizate în acini, produc patru tipuri de enzime digestive: peptidaze, lipaze, amilaze și nucleaze, răspunzătoare de digestia proteinelor, respectiv a lipidelor, glucidelor și acizilor nucleici. Proteazele (tripsina și chimotripsina) se secretă în forma inactivă, ca tripsinogen și chimotripsinogen, iar aceleași celule secretă și inhibitorul tripsinei, care protejează pancreasul de autodigestie. Celulele ductale secretă zilnic 1200-1500 mL de suc pancreatic, care conține o cantitate mare de bicarbonat ($\ce{HCO3-}$). Acesta neutralizează aciditatea gastrică și reglează pH-ul în intestinul superior. Sucul pancreatic este strâns de canalele pancreatice, cel principal (Wirsung) și cel accesor (Santorini), care îl duc în duoden prin capul glandei. Unde se varsă totul Atât bila, cât și sucul pancreatic ajung în duoden, prima porțiune a intestinului subțire, în care stomacul își evacuează chimul. Aici cele două secreții lucrează împreună: sărurile biliare emulsionează lipidele din alimente și facilitează astfel acțiunea lipazei pancreatice. Structura intimă a ficatului, lobulul hepatic, este arătată în Figura 82, iar circuitul enterohepatic, prin care cea mai mare parte a sărurilor biliare se întoarce din intestin la ficat pe calea venei porte, apare în aceeași Figura 83.
Fig. 80 · Biologie Corint · p. 75
Deglutiția: bolul alimentar prin esofagFigura ilustrează deglutiția, adică totalitatea activităților motorii prin care bolul alimentar este transportat din cavitatea bucală în stomac. Cele trei desene arată esofagul în secțiune, în trei momente succesive, și se citesc de la stânga la dreapta. Primul surprinde doar o porțiune din esofag, iar următoarele două cuprind și capătul lui de jos, deschis în stomac. Urmărește bolul alimentar: coboară de la un desen la altul, iar în ultimul trece prin cardia și intră în stomac. În fiecare desen, o pereche de săgeți arată locul în care peretele esofagului se strânge, chiar deasupra bolului. Această contracție este unda peristaltică, cea care împinge bolul din urmă. Bolul alimentar Ceea ce coboară prin esofag este bolul alimentar, format în cavitatea bucală (Figura 75). Acolo, ca urmare a masticației și a acțiunii salivei, alimentele sunt omogenizate și îmbibate cu mucus. Aceleași transformări ușurează deglutiția: masticația fragmentează alimentele și înmoaie bolul, iar saliva le lubrifiază. Cei trei timpi ai deglutiției Deglutiția este un act reflex care se desfășoară în trei timpi. Figura îl arată pe ultimul, dar primii doi explică de unde vine bolul care intră în esofag. Timpul bucal (voluntar). Când alimentele sunt gata de înghițit, ele sunt împinse voluntar în faringe. Este singurul timp voluntar: de aici înainte, deglutiția devine un act automat, în întregime sau aproape, care în mod obișnuit nu mai poate fi oprit. Timpul faringian. Bolul stimulează ariile receptoare din jurul intrării în faringe. Impulsurile pornite de aici ajung la trunchiul cerebral, sediul reflexului de deglutiție, și declanșează o serie de contracții automate ale musculaturii faringiene. Datorită lor, alimentele nu pătrund în trahee și se deplasează liber spre esofag. Întregul proces durează 1-2 secunde. Etapele succesive ale deglutiției sunt controlate automat de centrul deglutiției. Cât durează deglutiția, acest centru inhibă specific centrul respirator bulbar, așa că respirația se oprește în orice punct al ciclului respirator s-ar afla. Timpul esofagian, cel desenat în figură. Esofagul are rolul principal de a transporta alimentele din faringe în stomac, iar mișcările lui sunt organizate special pentru această funcție. Cum înaintează bolul prin esofag În mod normal, esofagul prezintă două tipuri de mișcări peristaltice: Peristaltismul primar este declanșat de deglutiție și începe în momentul în care alimentele trec din faringe în esofag. Este coordonat vagal. Peristaltismul secundar se datorează prezenței alimentelor în esofag și continuă până când acestea sunt propulsate în stomac. Este coordonat de sistemul nervos enteric al esofagului. Unda peristaltică nu înaintează singură. Pe măsură ce se deplasează spre stomac, înaintea contracției merge o undă de relaxare, transmisă prin neuroni mienterici inhibitori. În desene, săgețile marchează contracția de deasupra bolului. Cum relaxarea o precedă, ea cuprinde porțiunea de esofag aflată sub bol, spre care acesta înaintează. Când unda de relaxare ajunge la esofagul inferior, se relaxează întregul stomac și, într-o măsură mai mică, chiar și duodenul, care se pregătesc astfel să primească alimentele. Cardia și stomacul În al doilea și al treilea desen, esofagul se deschide în stomac, recunoscut după plicile mucoasei. Locul de trecere dintre ele este cardia. La capătul terminal al esofagului, pe o porțiune de 2-5 cm deasupra joncțiunii cu stomacul, musculatura circulară esofagiană este îngroșată și funcționează ca un sfincter. Acesta prezintă o contracție tonică și este destins prin relaxarea receptivă. Contracția lui contribuie la prevenirea unui reflux gastro-esofagian, adică a întoarcerii conținutului gastric în esofag. Cardia și esofagul apar etichetate și pe desenul stomacului din Figura 76. Ce urmează În stomac, activitatea motorie și secretorie a acestuia transformă bolul alimentar într-o pastă omogenă numită chim gastric. Motilitatea gastrică realizează stocarea alimentelor, datorită relaxării receptive, amestecul lor cu secrețiile gastrice și evacuarea conținutului gastric în duoden (Figura 81).

Fig. 81 · Biologie Corint · p. 77
Motilitatea gastrică: peristaltismul și retropulsiaFigura arată motilitatea gastrică, adică activitatea motorie a stomacului, în trei desene ale aceluiași organ, văzut în secțiune, cu fragmente de alimente în interior. Stomacul este desenat în aceeași poziție ca în Figura 76: esofagul intră sus, fundul și corpul gastric formează partea largă din dreapta, iar jos stomacul cotește spre stânga, în regiunile antrală și pilorică. Acestea se termină cu sfincterul piloric. Dincolo de el începe duodenul, care coboară la marginea din stânga a desenului. Desenele se citesc de la stânga la dreapta, iar în fiecare, săgeata curbă arată încotro este împins conținutul în acel moment. Primele două desene urmăresc peristaltismul, al treilea retropulsia gastrică. Ce realizează motilitatea gastrică Activitatea motorie a stomacului are trei roluri: Stocarea alimentelor, ca urmare a relaxării receptive. Stomacul se pregătește din timp: în timpul deglutiției, înaintea undei peristaltice a esofagului merge o undă de relaxare, transmisă prin neuroni mienterici inhibitori. Când aceasta ajunge la esofagul inferior, întreg stomacul se relaxează, gata să primească alimentele (Figura 80). Amestecul alimentelor cu secrețiile gastrice, în care retropulsia are un rol important. Evacuarea conținutului gastric în duoden. Peristaltismul: primele două desene Contracțiile peristaltice pornesc de la granița dintre fundul și corpul gastric și se deplasează caudal, împingând alimentele către pilor (propulsie). Forța lor este controlată de acetilcolină și de gastrină, eliberată de celulele G ale glandelor pilorice, din regiunile antrală și pilorică. În primul desen, săgeata pornește din corpul gastric și coboară spre partea de jos a stomacului. În al doilea, săgeata este mai jos, acolo unde stomacul cotește spre stânga, și împinge conținutul în regiunea antrală, spre pilor. Puse una după alta, cele două săgeți urmăresc unda care înaintează caudal. Se vede și efectul asupra conținutului: în primul desen, fragmentele de alimente ocupă și partea de sus a corpului gastric. În al doilea, această parte s-a golit, iar fragmentele s-au strâns jos, până în fața pilorului. Retropulsia gastrică: al treilea desen Retropulsia cuprinde mișcările de du-te-vino ale chimului. Ele sunt determinate de propulsia puternică a conținutului gastric către sfincterul piloric închis: conținutul împins spre pilor nu poate trece și se întoarce. De aceea, în al treilea desen săgeata are sensul opus celor din primele două: pornește din dreptul pilorului și se îndreaptă înapoi, spre corpul stomacului. Retropulsia are un rol important în amestecul alimentelor cu secrețiile gastrice. Rezultatul Activitatea motorie și cea secretorie a stomacului transformă împreună bolul alimentar într-o pastă omogenă, numită chim gastric. Figura o sugerează prin fragmentele de alimente, care în al treilea desen sunt mai mici și mai numeroase decât în primele două. Conținutul gastric este apoi evacuat în duoden, iar în al treilea desen câteva fragmente se văd deja dincolo de pilor, în duoden.
Fig. 82 · Biologie Corint · p. 78
Lobulul hepatic: circulația sângelui și a bileiFigura arată, foarte mărită, o porțiune dintr-un lobul hepatic: celulele ficatului așezate în șiruri, vasele care aduc și care strâng sângele și primele căi prin care pleacă bila. Manualul trimite la ea atunci când arată că bila este formată de hepatocite. Desenul se citește de la stânga la dreapta, după săgeți. În colțul din stânga stau alături trei formațiuni: ramura venei porte (vasul cel mai mare), ramura arterei hepatice (jos) și un canal biliar mic (sus). De aici pornesc spre dreapta șiruri de celule hepatice, despărțite de spații prin care curge sângele. În dreapta, unde se strâng toate șirurile și unde ajung toate săgețile, se află vena centrolobulară, vena din centrul lobulului. Cele două vase care aduc sângele Sângele intră în lobul pe două căi deodată, iar săgețile care pornesc din cele două vase intră în aceleași spații dintre șiruri. Ramura venei porte aduce sânge încărcat cu substanțele nutritive rezultate în urma absorbției intestinale. Vena portă este o venă aparte a marii circulații, formată din unirea venelor mezenterică superioară, mezenterică inferioară și splenică. Pe calea ei ajung la ficat aminoacizii și monozaharidele, iar la nivelul ficatului glucoza poate fi stocată sub formă de glicogen. Lipidele absorbite nu urmează acest drum, ci trec în circulația limfatică. Ramura arterei hepatice aduce sânge venit din aortă. Artera hepatică este una dintre cele trei ramuri ale trunchiului celiac, alături de artera splenică și de artera gastrică stângă. Trunchiul celiac, ramură viscerală a aortei abdominale, vascularizează stomacul, duodenul, pancreasul, ficatul și splina. Capilarele sinusoide și vena centrolobulară Capilarele sinusoide sunt spațiile dintre două șiruri vecine de celule hepatice, cele prin care trec săgețile. Prin ele, sângele din ambele vase străbate lobulul dinspre margine spre centru și se adună în vena centrolobulară. Săgețile din partea de sus și din partea de jos a desenului arată că și sângele din celelalte șiruri ajunge tot acolo. Astfel, sângele adus de la intestin trece pe lângă celulele hepatice înainte să iasă din lobul. Sângele venos al ficatului ajunge apoi, prin venele hepatice, în vena cavă inferioară. Celula hepatică și formarea bilei Celulele hepatice, adică hepatocitele, alcătuiesc șirurile lobulului. În capitolul despre celulă, manualul le dă ca exemplu de celule binucleate, deși în desen fiecare apare cu un singur nucleu. Bila este necesară pentru digestia și absorbția lipidelor și pentru excreția unor substanțe insolubile în apă, cum sunt colesterolul și bilirubina. Este formată de hepatocite și de celulele ductale care mărginesc ductele biliare, în cantitate de 250 până la 1 100 mL/zi, și este secretată continuu. Manualul arată ce se petrece în hepatocite cu două dintre componentele ei: Sărurile biliare: acizii biliari sunt sintetizați în hepatocite din colesterol, prin combinarea cu anumiți aminoacizi și cu $\ce{Na+}$, iar sărurile biliare rezultate sunt secretate activ în canaliculele biliare. Pigmenții biliari: bilirubina și biliverdina, metaboliți ai hemoglobinei, ajung în hepatocite și sunt excretați biliar. Ei dau bilei culoarea galbenă. Bila mai conține lecitină, colesterol și electroliți, dar nu conține enzime. Canaliculele biliare și canalul biliar Canaliculele biliare sunt canale foarte fine, aflate chiar între celulele alăturate ale aceluiași șir, nu în spațiile prin care curge sângele. În desen apar ca mici segmente înșirate printre celule, pe un rând care pornește de lângă canalul biliar din colțul stâng, numit în legendă canal hepato-coledoc. Din desen se vede că bila secretată în canalicule se îndreaptă spre marginea lobulului, în sens opus sângelui, care curge spre centru. Ce se întâmplă apoi cu bila Bila este depozitată în vezica biliară în perioadele interdigestive. În perioadele digestive se eliberează în duoden, numai după ce chimul a declanșat secreția de colecistokinină, care relaxează sfincterul Oddi și contractă vezica biliară. Vezica biliară, sfincterul Oddi și canalele prin care bila ajunge în duoden apar în Figura 79. În intestin, sărurile biliare emulsionează lipidele și ajută la absorbția lor. Cea mai mare parte a lor se reabsoarbe apoi activ în ileon și se întoarce la ficat prin vena portă, în circuitul enterohepatic (Figura 83), deci revine în lobul printr-o ramură a venei porte ca aceea din desen.
Fig. 83 · Biologie Corint · p. 79
Circuitul enterohepatic al sărurilor biliareFigura arată circuitul enterohepatic, adică recircularea celei mai mari părți a sărurilor biliare din intestinul subțire, prin vena portă, înapoi la ficat. Desenul se citește ca o buclă închisă: sus se află ficatul, jos, ca un tub orizontal, intestinul subțire, iar între ele coboară, în stânga, căile biliare și urcă, în dreapta, vena portă. Săgețile mici desenate de-a lungul buclei arată sensul drumului, pe care îl poți urmări pornind de la ficat. Drumul dus: bila, de la ficat în intestin Bila este necesară pentru digestia și absorbția lipidelor și pentru excreția unor substanțe insolubile în apă, cum sunt colesterolul și bilirubina. Ea este formată de hepatocite și de celulele ductale care mărginesc ductele biliare, în cantitate de 250 până la 1100 mL pe zi. Conține acizi biliari, pigmenți biliari (bilirubina și biliverdina), lecitină, colesterol și electroliți, dar nu conține enzime. Acizii biliari sunt sintetizați în hepatocite din colesterol, prin combinarea cu anumiți aminoacizi și cu $\ce{Na+}$, iar sărurile biliare rezultate sunt secretate activ în canaliculele biliare. Structura lobulului hepatic, cu hepatocitele și canaliculele biliare, este arătată în Figura 82. De sub ficat coboară două canale, cărora li se alătură, printr-un canal scurt, vezica biliară, desenată în stânga ca un sac alungit. Ele se continuă cu canalul coledoc, pe care săgețile coboară până în intestinul subțire. În Figura 79, unde aceleași căi biliare apar lângă duoden și pancreas, canalele care ies din ficat sunt numite canale hepatice, canalul vezicii biliare este canalul cistic, iar la vărsarea în duoden se află sfincterul Oddi. Când ajunge bila în intestin Bila este secretată continuu, dar în perioadele interdigestive este depozitată în vezica biliară. Ea se eliberează în duoden în perioadele digestive, numai după ce chimul a declanșat secreția de colecistokinină. Evacuarea bilei este consecința contracției musculaturii veziculare, în paralel cu relaxarea sfincterului Oddi, și este realizată prin două mecanisme: mecanismul nervos: stimularea vagală determină contracția musculaturii veziculare și relaxarea sfincteriană, iar stimularea simpatică are efecte antagonice, mecanismul umoral: colecistokinina, hormon eliberat din celulele mucoasei duodenale ca răspuns, în principal, la pătrunderea în duoden a produșilor digestiei lipidelor, produce contracția vezicii biliare și relaxarea sfincterului Oddi. Drumul întors: sărurile biliare, de la intestin la ficat Săgețile din interiorul tubului, orientate spre dreapta, arată cum sărurile biliare înaintează odată cu conținutul intestinal. Pentru că nu sunt liposolubile, ele rămân în intestin până ajung la nivelul ileonului, ultima dintre cele trei porțiuni ale intestinului subțire (duoden, jejun și ileon), unde se reabsorb activ. În desen, reabsorbția apare mai la dreapta, acolo unde ramurile venei porte se prind de peretele intestinului: săgețile curbe trec din intestin în aceste ramuri. Pe vena portă, săgețile sunt îndreptate în sus. Această venă duce la ficat sângele încărcat cu substanțele nutritive rezultate în urma absorbției intestinale, iar în circuitul enterohepatic aduce înapoi și sărurile biliare. Săgeata curbă de sub ficat pleacă din capătul venei porte și intră în căile biliare: ajunse în ficat, sărurile biliare trec din nou în bilă, iar bucla se închide. La ce folosesc sărurile biliare Sărurile biliare au două roluri importante: emulsionarea lipidelor din alimente: le reduc tensiunea superficială, permițând fragmentarea lor și facilitând acțiunea lipazei pancreatice, absorbția lipidelor: ajută la absorbția din tractul intestinal a acizilor grași, monogliceridelor, colesterolului și a altor lipide, cu care formează micelii. În lipsa sărurilor biliare în intestin, se pierd prin materiile fecale 40% din lipidele ingerate. Ele mai stimulează motilitatea intestinală și au rol bacteriostatic. Etapele în care lipidele sunt emulsionate și preluate în micelii sunt arătate în Figura 86.

Fig. 84 · Biologie Corint · p. 79
Activitatea enzimelor: digestia proteinelor la marginea în perieFigura urmărește digestia proteinelor în intestinul subțire și arată cele trei locuri în care lucrează enzimele: în lumen, pe suprafața celulei epiteliale și în interiorul ei. Desenul se citește de sus în jos, pe trei etaje: sus, lumenul intestinal, la mijloc, celula epitelială cu microvilii ei, iar jos, capilarul sangvin. Aminoacizii sunt desenați ca bile colorate, fie înșirate în lanțuri de lungimi diferite, fie izolate. Bilele unui lanț sunt unite prin linii continue, iar acolo unde o bucată s-a desprins, în locul legăturii a rămas o linie întreruptă sau câte un capăt scurt de linie pe bilele despărțite. Enzimele le recunoști după locul în care stau: lipite de un lanț în lumen, prinse de membrana microvililor sau în citoplasmă. Săgețile arată drumul produșilor digestiei, din lumen în celulă și apoi în sânge. În lumen: lanțul se scurtează Proteinele ajung în intestinul subțire în mare parte nedigerate: pepsina din stomac acționează doar asupra unei fracțiuni din ele, între 20 și 30% din totalul celor ingerate. În lumen intervine sucul pancreatic. Celulele exocrine ale pancreasului produc peptidaze, răspunzătoare de digestia proteinelor, iar tripsina și chimotripsina scindează proteinele nedigerate în stomac și peptidele până la tripeptide, dipeptide și aminoacizi. În desen, lanțul polipeptidic șerpuiește prin lumen, iar de el este lipită o peptidază. Aproape de ea, o bucată de trei aminoacizi s-a desprins deja de capătul lanțului, iar mai jos, spre celule, plutesc fragmente tot mai scurte și aminoacizi izolați. Scurtarea lanțului este necesară, pentru că proteinele pot fi absorbite doar după ce au fost transformate în oligopeptide și aminoacizi. Pe microvili: enzimele marginii în perie La polul dinspre lumen, celula epitelială are microvili, prelungiri permanente ale citoplasmei acoperite de plasmalemă, printre care pătrunde conținutul lumenului. Pe membrana lor, pe vârfuri și pe laturi, stau enzimele marginii în perie, adică enzimele asociate cu microvilii celulelor epiteliale intestinale. Ele nu sunt secretate în lumenul intestinal și își exercită rolurile chiar în timpul procesului de absorbție. Din această categorie fac parte peptidazele, dizaharidazele (maltaza, izomaltaza, zaharaza și lactaza) și lipaza, dar figura urmărește doar peptidazele, care transformă tri- și dipeptidele în aminoacizi. În celula epitelială Celula din mijlocul desenului este mărginită de membranele celulelor vecine, are microvilii spre lumen și baza spre capilar. Săgețile curbe din partea de sus pornesc de la aminoacizi și de la bucăți foarte scurte de lanț aflate lângă microvili și intră în celule: ele arată absorbția. Pentru tripeptide, dipeptide și aminoacizi s-au identificat mai multe sisteme de transport activ Na-dependente. Figura arată că digestia continuă și după ce peptidele au ajuns în celulă. În citoplasmă este desenată tripeptidaza, o enzimă care lucrează înăuntru, nu în lumen. Așa cum îi spune și numele, ea acționează asupra tripeptidelor absorbite, din care rezultă aminoacizi, produșii finali ai digestiei proteinelor. Citoplasma este astfel presărată cu aminoacizi izolați, unii absorbiți ca atare, alții rezultați din scindarea peptidelor. Trecerea în sânge Săgețile drepte din partea de jos pornesc numai de la aminoacizi izolați și coboară din celulă în capilarul sangvin. În desen, între lumen și sânge nu se află decât celula epitelială, iar manualul arată că absorbția este favorizată în intestinul subțire tocmai pentru că distanța pe care o au de străbătut moleculele este mică, grosimea peretelui fiind minimă. În plus, rețeaua vasculară de la nivelul vilozităților (Figura 85) este foarte bogată, iar printr-un mecanism reflex cantitatea de sânge de aici poate crește în timpul digestiei. Din capilar, aminoacizii ajung, ca și monozaharidele, prin vena portă la ficat, în timp ce lipidele trec în circulația limfatică. Cât de completă este absorbția Aproape nimic nu se pierde: practic toate proteinele din intestin sunt absorbite, iar cele care apar totuși în scaun provin din detritusuri celulare sau din bacteriile din colon.
Fig. 85 · Biologie Corint · p. 81
Vilozitatea intestinală: căile de absorbțieFigura prezintă o vilozitate intestinală, una dintre proeminențele mucoasei intestinului subțire, desenată mult mărită și secționată pe lungime, astfel încât i se vede interiorul. Vilozitatea ocupă aproape toată înălțimea desenului, cu vârful ușor curbat spre dreapta. În dreapta jos, la baza ei, mucoasa se adâncește într-o criptă, iar în partea de jos a desenului trec orizontal vasele groase cu care se continuă cele din axul vilozității. Vasele de sânge sunt roșii dinspre arteriolă și albastre dinspre venulă, iar calea limfei, adică vasul chilifer central și vasul limfatic, este galbenă. Absorbția intestinală este procesul prin care produșii rezultați în urma digestiei trec către sânge și limfă. Vilozitatea conține ambele căi: în axul ei urcă, unul lângă altul, vase de sânge și un vas limfatic. De ce este favorizată absorbția aici Manualul dă patru motive pentru care absorbția este favorizată la nivelul intestinului subțire: Suprafața mare de contact, datorată structurii specifice a mucoasei intestinului subțire, din care fac parte vilozitățile. Distanța mică pe care moleculele o au de străbătut, grosimea peretelui fiind minimă la acest nivel. Vilozitatea este acoperită de un singur rând de celule, căci epiteliul mucoasei tubului digestiv este un epiteliu de acoperire unistratificat cilindric. Rețeaua vasculară foarte bogată de la nivelul vilozităților, pentru care manualul trimite chiar la această figură. Printr-un mecanism reflex, cantitatea de sânge de aici poate crește în timpul perioadelor de digestie. Mișcările contractile ale vilozităților, care înlesnesc tranzitul substanțelor absorbite. Învelișul vilozității și cripta Epiteliul este stratul de celule care acoperă vilozitatea și o desparte de lumenul intestinal. Monozaharidele și lipidele absorbite trec mai întâi în celulele lui, enterocitele, și abia apoi ajung la vasele din ax. Tot aceste celule secretă apă și electroliți. Cu microvilii lor, prelungiri permanente ale citoplasmei acoperite de plasmalemă, sunt asociate enzime care nu sunt secretate în lumenul intestinal: peptidaze, dizaharidaze (maltaza, izomaltaza, zaharaza și lactaza) și lipază. Ele își exercită rolurile în timpul absorbției intestinale (Figura 84). Printre celulele epiteliului se disting celule izolate, pe care legenda figurii le numește celule secretoare Brunner. Ele secretă mucus, cu rol de protecție a mucoasei intestinale împotriva agresiunii $\ce{HCl}$. Cripta intestinală Lieberkühn este adâncitura în formă de tub a mucoasei de la baza vilozității, căptușită de același epiteliu. După textul manualului, mucusul este secretat de glandele Brunner din duoden și de celule speciale, aflate în epiteliul intestinal și în criptele Lieberkühn. Calea sângelui Sângele sosește la vilozitate prin arteriolă, străbate rețeaua capilară din axul ei, de o parte și de alta a vasului chilifer central, și iese prin venulă. Pe această cale pleacă produșii digestiei glucidelor și ai proteinelor: Monozaharidele: glucoza și galactoza se absorb printr-un sistem de transport activ Na-dependent, iar fructoza prin difuziune facilitată. Din enterocite ies prin membrana bazo-laterală, tot prin difuziune facilitată, apoi difuzează din interstițiul intestinal în capilarele din vilozități. Aminoacizii, absorbiți, ca și dipeptidele și tripeptidele, prin mai multe sisteme de transport activ Na-dependente. Aminoacizii și monozaharidele ajung apoi prin vena portă la ficat. Calea limfei Spre deosebire de glucide și de proteine, lipidele se absorb prin difuziune pasivă. Pentru a putea fi absorbite, ele trebuie să devină hidrosolubile, lucru care se realizează în prezența sărurilor biliare. Trigliceridele, fosfolipidele și colesterolul se combină cu proteinele din epiteliul celulelor intestinale, constituind chilomicronii, formă în care trec în vasul chilifer central, vasul galben din mijlocul vilozității (Figura 86). La baza vilozității, chiliferul se continuă cu un vas limfatic. Prin vasele chilifere, chilomicronii ajung în limfă și trec apoi, odată cu aceasta, în sânge. Așa se explică de ce, în timp ce aminoacizii și monozaharidele ajung prin vena portă la ficat, lipidele trec în circulația limfatică.

Fig. 86 · Biologie Corint · p. 81
Etapele digestiei lipidelorFigura arată etapele digestiei lipidelor într-un segment de intestin subțire, desenat ca un tub orizontal care se citește de la stânga la dreapta. Prin capătul din stânga intră conținutul venit de la stomac, prin canalul vertical de sus coboară bila, iar spre capătul din dreapta săgețile duc la produșii digestiei. Porțiunile tubului corespund, în ordine, celor trei etape din legenda manualului: emulsionarea lipidelor, hidroliza trigliceridelor și formarea miceliilor mixte. Urmărește picăturile de grăsime: la intrare sunt puține și mari, după ce se varsă bila devin mici și numeroase, iar spre dreapta locul lor îl iau produșii hidrolizei. Etapa I. Emulsionarea lipidelor de către sărurile biliare De la stomac sosesc picăturile de grăsime, adică trigliceride încă nedigerate. În stomac, asupra lipidelor a acționat doar lipaza gastrică, o enzimă cu activitate slabă, care hidrolizează numai lipidele ingerate sub formă de emulsie. Prin canalul biliar coboară bila, venită de la ficat și de la vezica biliară. Bila este necesară pentru digestia și absorbția lipidelor. Este formată de hepatocite și de celulele ductale, în cantitate de 250 până la 1100 mL/zi, este secretată continuu și se depozitează în vezica biliară în perioadele interdigestive. În duoden se eliberează numai în perioadele digestive, după ce chimul a declanșat secreția de colecistokinină, care produce relaxarea sfincterului Oddi și contracția vezicii biliare. Colecistokinina este eliberată din celulele mucoasei duodenale mai ales la pătrunderea în duoden a produșilor digestiei lipidelor. Bila nu conține enzime. Ea aduce însă micelii alcătuite din săruri biliare, colesterol și lecitină. Înainte de a fi digerate, lipidele trebuie emulsionate, adică transformate în picături cu diametrul sub un micron, de către sărurile biliare și lecitină. Sărurile biliare reduc tensiunea superficială a lipidelor, permițând fragmentarea lor și facilitând acțiunea lipazei pancreatice. În desen, trei săgeți duc din zona în care se varsă bila spre mulțimea de picături de grăsime emulsionate. Etapa a II-a. Hidroliza trigliceridelor Asupra picăturilor emulsionate acționează lipaza. Sucul pancreatic conține lipaze secretate în forma lor activă (lipaza, colesterol-lipaza, fosfolipaza), iar enzimele care hidrolizează esteri insolubili în apă necesită prezența sărurilor biliare. Lipaza hidrolizează trigliceridele din picăturile lipidice până la doi produși, spre care pornesc în desen două săgeți: acizii grași liberi, în sus, și monogliceridele, în jos. Etapa a III-a. Formarea miceliilor mixte Săgețile care pleacă de la cei doi produși se întâlnesc la capătul din dreapta: acizii grași și monogliceridele sunt preluați în micelii, rezultând miceliile mixte. Acesta este al doilea rol important al sărurilor biliare, după emulsionare: ele ajută la absorbția acizilor grași, a monogliceridelor, a colesterolului și a altor lipide, formând cu acestea micelii complexe. Spre deosebire de glucide și de proteine, lipidele se absorb prin difuziune pasivă. Pentru a putea fi absorbite, ele trebuie să fie hidrosolubile, iar acest lucru se realizează în prezența sărurilor biliare. În lipsa sărurilor biliare din intestin, se pierd prin materiile fecale 40% din lipidele ingerate. În alcătuirea miceliilor intră și vitaminele liposolubile (A, D, K, E), care se absorb împreună cu celelalte lipide în intestinul proximal. Ce se întâmplă după absorbție Trigliceridele, fosfolipidele și colesterolul se combină cu proteinele din epiteliul celulelor intestinale și formează chilomicronii, formă în care trec în chiliferul central al vilozității (Figura 85). În timp ce aminoacizii și monozaharidele ajung prin vena portă la ficat, lipidele trec în circulația limfatică. Sărurile biliare, în schimb, nu sunt liposolubile, așa că rămân în intestin până la nivelul ileonului, unde se reabsorb activ. Cea mai mare parte a lor se întoarce prin vena portă la ficat: este circuitul enterohepatic (Figura 83).
- 2CirculațiaPaginile 84 - 96
Fig. 87 · Biologie Corint · p. 84
Compoziția sângelui: plasma și elementele figurateFigura arată din ce este alcătuit sângele, în două trepte. În stânga este o eprubetă cu sânge în care se deosebesc două coloane: sus, o coloană gălbuie, plasma, iar jos, o coloană roșie, elementele figurate. Săgeata pornește din coloana roșie și arată ce conține ea: în cercul din dreapta, un câmp microscopic mărit, se văd laolaltă cele trei tipuri de elemente figurate, așa cum apar la examenul microscopic al sângelui. Cele două fracțiuni ale sângelui Sângele este format din plasmă și elemente figurate, care ocupă părți diferite din volumul sangvin: Plasma reprezintă 55% din volumul sangvin. Elementele figurate reprezintă 45% din volumul sangvin. Această valoare se numește volum globular procentual sau hematocrit. Plasma sangvină Plasma conține apă (90%) și reziduu uscat, format din 1% substanțe anorganice ($\ce{Na+}$, $\ce{K+}$, $\ce{Ca^2+}$, $\ce{Mg^2+}$, $\ce{Cl-}$, $\ce{HCO3-}$) și 9% substanțe organice, majoritatea proteine (albumine, globuline, fibrinogen). Textul care urmează figurii arată rolul câtorva substanțe din plasmă: Anticorpii sunt proteine plasmatice din clasa gamma-globulinelor, care neutralizează sau distrug antigenul. Fibrinogenul plasmatic, solubil, se transformă la coagulare în fibrină insolubilă. Aglutininele, compuși cu rol de anticorpi, stau împreună cu aglutinogenele de pe membrana hematiilor la baza grupelor sangvine din sistemul OAB. Cele trei tipuri de elemente figurate În câmpul microscopic se observă: Globulele roșii (hematii sau eritrocite): discurile roșii, cele mai numeroase elemente figurate ale sângelui. Sunt celule fără nucleu, cu rol în transportul $\ce{O2}$ și $\ce{CO2}$ și în menținerea echilibrului acido-bazic. Globulele albe (leucocite): celulele mari, cu nucleu colorat intens. Spre deosebire de eritrocite, au nucleu și mitocondrii. Pot emite pseudopode și pot traversa peretele capilar prin porii săi, trecând în țesuturi, proces numit diapedeză. Principala lor funcție este participarea la reacția de apărare a organismului, iar răspunsurile imune specifice sunt mediate de două tipuri de leucocite, limfocitele B și T. Plachetele sangvine (trombocite): punctele mici presărate printre celule, cele mai mici formațiuni din câmp. Sunt elemente figurate necelulare, cu rol în hemostază. În hemostaza primară, ele aderă la nivelul plăgii, se agregă și suferă metamorfoza vâscoasă, ceea ce oprește sângerarea în 2 până la 4 minute. Valorile din tabelul de la pagina 126 Textul de lângă figură trimite la tabelul constantelor fiziologice, care dă pentru componentele sângelui: Număr de hematii: 4 500 000/mm³ la femei și 5 000 000/mm³ la bărbați Număr de leucocite: 5 000-10 000/mm³ Număr de plachete: 150 000-300 000/mm³ Hematocrit: 35-46% la femei și 41-50% la bărbați Proteine totale în plasmă: 6-8,5 g/dl (proteinograma: albumine 3,5-5 g/dl, globuline 2,5-3,5 g/dl) Tot acolo apare formula leucocitară, cu procentul fiecărui tip de leucocite: granulocitele (neutrofile 52-62%, eozinofile 1-3%, bazofile sub 1%) și agranulocitele (monocite 3-9%, limfocite 25-33%). Sângele în organism Sângele este fluidul care circulă în interiorul arborelui cardiovascular (Figura 88) și reprezintă cca 8% din masa corporală. Împreună cu limfa, lichidul interstițial, lichidul cefalorahidian, perilimfa și endolimfa, el constituie mediul intern al organismului. În clasificarea țesuturilor, sângele este trecut la țesutul conjunctiv, ca țesut fluid. Funcțiile sângelui sunt reprezentate de funcțiile componentelor sale, cele din figură. În plus, sângele este un sistem de integrare și coordonare umorală a funcțiilor, prin hormonii, mediatorii chimici și cataboliții pe care îi vehiculează. El îndepărtează și transportă spre locurile de excreție substanțele toxice, neutilizabile sau în exces, iar datorită conținutului bogat în apă are rol în termoreglare.

Fig. 88 · Biologie Corint · p. 87
Arborele vascular: principalele artere și vene ale corpuluiFigura desenează arborele vascular peste silueta unui om privit din față, așa că partea dreaptă a corpului apare în stânga desenului. Arterele, colorate cu roșu, sunt conductele prin care sângele iese din inimă și este distribuit în tot corpul. Venele, colorate cu albastru, sunt vasele prin care sângele se întoarce la inimă. În mijlocul toracelui se află inima (Figura 91), forța motrice a acestui sistem. Reperele sunt numerotate în două serii: mai întâi arterele, de la gât spre coapsă, apoi venele, de la coapsă înapoi spre gât. Cele două teritorii de circulație În arborele vascular se disting două teritorii de circulație, prin care sângele se deplasează în circuit închis și într-un singur sens. Ele sunt dispuse în serie, așa că într-un minut ventriculul stâng pompează în marea circulație același volum de sânge pe care ventriculul drept îl pompează în mica circulație. Circulația mică (pulmonară) începe în ventriculul drept, cu trunchiul arterei pulmonare. Acesta se împarte în cele două artere pulmonare, care duc sângele cu $\ce{CO2}$ spre rețeaua capilară din jurul alveolelor (Figura 95). Aici, $\ce{CO2}$ este cedat alveolelor, care îl elimină prin expirație. Sângele cu $\ce{O2}$ este colectat de venele pulmonare, câte două pentru fiecare plămân, iar cele patru vene se termină în atriul stâng. Circulația mare (sistemică) începe în ventriculul stâng, cu artera aortă, care duce sângele cu $\ce{O2}$ și substanțe nutritive spre țesuturi și organe. De acolo, sângele încărcat cu $\ce{CO2}$ este preluat de cele două vene cave, care îl aduc în atriul drept. Atenție la culori: ele arată tipul vasului, nu felul sângelui pe care îl transportă. Artera pulmonară este desenată cu roșu, deși duce sânge cu $\ce{CO2}$, iar vena pulmonară cu albastru, deși aduce sânge cu $\ce{O2}$. Toate celelalte vase marcate aparțin marii circulații. Sistemul aortic Artera aortă și ramurile ei formează sistemul aortic, care irigă toate țesuturile și organele corpului. Aorta pornește din ventriculul stâng ca aortă ascendentă, din care se desprind cele două artere coronare, ramificate în desen pe suprafața inimii. După ce urcă 5-6 cm, aorta se curbează și formează arcul aortic, care se continuă cu aorta descendentă, împărțită în toracală și abdominală. La capătul ei, aorta abdominală se bifurcă în cele două artere iliace comune, stângă și dreaptă. Ramurile arcului aortic Din arc se desprind, de la dreapta spre stânga, trunchiul brahiocefalic, artera carotidă comună stângă și artera subclaviculară stângă. Trunchiul brahiocefalic se împarte în artera carotidă comună dreaptă și artera subclaviculară dreaptă, iar acestea sunt cele marcate în figură. Artera carotidă comună urcă pe gât până în dreptul marginii superioare a cartilajului tiroid, unde se bifurcă în artera carotidă externă și internă. Acolo se află sinusul carotic (carotidian), o mică dilatație bogată în receptori. Artera subclaviculară ajunge până în axilă, unde ia numele de arteră axilară, și se continuă cu artera brahială, care vascularizează brațul. Ramurile aortei abdominale Ramurile viscerale ale aortei abdominale sunt trunchiul celiac, artera mezenterică superioară, arterele renale, arterele testiculare, respectiv ovariene, și artera mezenterică inferioară. În figură sunt marcate: Artera hepatică, una dintre cele trei ramuri ale trunchiului celiac, alături de artera splenică și de artera gastrică stângă. Trunchiul celiac vascularizează stomacul, duodenul, pancreasul, ficatul și splina. Artera renală, câte una de fiecare parte, care pleacă aproape orizontal din aortă, spre rinichi. Artera mezenterică inferioară, desenată mai jos decât arterele renale. Ea vascularizează partea stângă a colonului transvers, colonul descendent, sigmoidul și partea superioară a rectului. Ramurile terminale ale aortei În dreptul articulației sacro-iliace, fiecare arteră iliacă comună se împarte în artera iliacă externă și artera iliacă internă. Cea internă irigă pereții și organele din bazin, inclusiv organele genitale. Cea externă iese din bazin, ajunge pe fața anterioară a coapsei și devine artera femurală, care irigă coapsa și se continuă cu artera poplitee. Sistemul venos al marii circulații Sângele venos al marii circulații se adună în două vene mari, care se varsă în atriul drept. Vena cavă superioară se formează prin fuzionarea celor două vene brahiocefalice, stângă și dreaptă. Fiecare venă brahiocefalică ia naștere din unirea venei jugulare interne, care aduce sângele de la creier, cap și gât, cu vena subclaviculară, care continuă vena axilară și aduce sângele de la membrul superior. Sângele de la torace ajunge în vena cavă superioară prin sistemul azygos. Vena cavă inferioară se formează prin unirea celor două vene iliace comune, urcă prin dreapta coloanei vertebrale, străbate diafragma și se termină în atriul drept. Ea adună sângele de la membrele inferioare, de la pereții și viscerele din bazin, de la rinichi, suprarenale, testicule, respectiv ovare, de la peretele posterior al abdomenului și de la ficat. În desen se văd vărsându-se în ea venele renale, venite de la rinichi, și vena suprahepatică, venită de la ficat. În textul manualului, venele prin care sângele ficatului ajunge în vena cavă inferioară sunt numite vene hepatice. Venele membrelor La membre, sângele venos este strâns de vene profunde, care însoțesc arterele și poartă aceeași denumire cu ele, și de vene superficiale, subcutanate, care nu însoțesc arterele și se varsă în cele profunde. Pe coapsă, vena femurală, care strânge sângele venos al membrului inferior, merge alături de artera femurală. Ea este continuată de vena iliacă externă, care se unește cu vena iliacă internă, venită de la pereții și viscerele din bazin, și formează vena iliacă comună. Vena portă, o venă aparte O venă aparte a marii circulații este vena portă, care duce la ficat sângele încărcat cu substanțele nutritive absorbite în intestin. Ea se formează prin unirea a trei vene: mezenterica superioară, mezenterica inferioară și splenica. Vena portă nu este marcată în figură. Prin ea, sângele adunat de vena mezenterică inferioară nu ajunge direct în vena cavă inferioară, ci trece întâi prin ficat, unde ramurile venei porte și ale arterei hepatice ajung la lobulii hepatici (Figura 82). Abia de acolo, prin venele hepatice, sângele ajunge în vena cavă inferioară.

Fig. 89 · Biologie Corint · p. 89
Sistemul limfatic: drenarea regiunii superioare drepte și a întregului corpFigura prezintă sistemul limfatic în două panouri, cu corpul privit din față, așa că partea lui dreaptă apare în stânga desenului. Panoul (a) mărește regiunea superioară dreaptă a corpului și urmărește limfa de la membrul superior, de la glanda mamară și de la cap și gât până la vărsarea ei în vene. Panoul (b) cuprinde tot corpul, cu cele două colectoare limfatice mari și cu principalele grupe de ganglioni. Vasele limfatice sunt desenate ca niște lanțuri verzi, iar ganglionii apar ca noduri pe traseul lor. Canalul toracic se recunoaște după culoarea galbenă. Vasele violete de la baza gâtului, nenumerotate, nu fac parte din sistemul limfatic: sunt venele în care se varsă, în final, limfa. Ce este sistemul limfatic Prin sistemul limfatic circulă limfa, o componentă a mediului intern al organismului, care ajunge până la urmă în circulația venoasă. Față de sistemul circulator sangvin, sistemul limfatic are două particularități: Rețele terminale de capilare: fiind adaptat la drenarea țesuturilor, sistemul limfatic are capilare care formează rețele terminale, pe când capilarele sangvine ocupă o poziție intermediară între sistemul arterial și cel venos. Pereți mai subțiri: vasele limfatice au pereții mai subțiri decât vasele sangvine. Drumul limfei Limfa parcurge sistemul în această ordine: Capilarele limfatice se găsesc în toate organele și țesuturile și au aceeași structură ca și capilarele sangvine. Vasele limfatice se formează prin confluența capilarelor. Pereții lor seamănă cu cei ai venelor, iar la interior au valve semilunare, care înlesnesc circulația limfei. Ganglionii limfatici sunt așezați pe traseul vaselor, iar limfa trece obligatoriu prin ei. Trunchiurile limfatice mari preiau limfa după ce aceasta a străbătut ganglionii regionali. Colectoarele limfatice mari, canalul toracic și vena limfatică dreaptă, varsă limfa în vene, fiecare de partea sa, la unirea venei jugulare interne cu vena subclaviculară. (a) Drenarea regiunii superioare drepte Zona cea mai intens colorată a panoului este glanda mamară, străbătută de o rețea de vase numite limfaticele glandei mamare. Aceste vase se îndreaptă spre ganglionii limfatici axilari, grupul mare din axilă, unde converg și vasele venite de-a lungul membrului superior. Din axilă, un vas limfatic urcă peste umăr până la baza gâtului. Tot acolo ajunge și lanțul ganglionilor latero-cervicali, care coboară pe partea laterală a gâtului, pe traseul limfei venite de la cap și gât. Toate aceste căi se termină în vena limfatică dreaptă, desenată ca un segment foarte scurt chiar la locul în care se unesc venele de la baza gâtului. Are o lungime de 1-2 cm, strânge limfa din pătrimea superioară dreaptă a corpului și se deschide la confluența dintre vena jugulară internă din dreapta și vena subclaviculară dreaptă. Aceste vene sunt vasele violete din desen: vena jugulară internă coboară pe gât, iar vena subclaviculară vine dinspre umăr. Trunchiul violet care coboară în torace corespunde venei cave superioare, care strânge sângele venos adus de venele jugulare interne și de venele subclaviculare. Le regăsești, cu numele lor, și pe arborele vascular din Figura 88. (b) Drenarea întregului corp Al doilea panou arată cum își împart cele două colectoare teritoriul corpului: Pătrimea superioară dreaptă, zona colorată mai intens, este drenată de vena limfatică dreaptă. Restul corpului, adică jumătatea inferioară și pătrimea superioară stângă, este drenat de canalul toracic. Canalul toracic este cel mai mare colector limfatic. Începe printr-o dilatație numită cisterna chili, situată în fața vertebrei L2, pe care o recunoști în capătul de jos, mai lat, al vasului galben. De aici urcă anterior de coloana vertebrală, înapoia aortei, străbate diafragma și pătrunde în torace. La baza gâtului se curbează spre stânga și se deschide în unghiul venos format prin unirea venei jugulare interne din stânga cu vena subclaviculară stângă. Are o lungime de 25-30 cm și este prevăzut cu valve în interior. Pe traseul vaselor sunt marcate, de sus în jos, principalele grupe de ganglioni limfatici: Ganglionii submandibulari, sub mandibulă. Ganglionii latero-cervicali, pe părțile laterale ale gâtului. Ganglionii axilari, în axile, unde converg vasele membrelor superioare. Ganglionii lombari, în abdomen, pe cele două lanțuri de o parte și de alta a liniei mediane. Ganglionii inghinali, în regiunea inghinală, unde ajung vasele venite de la membrele inferioare. Ganglionii limfatici au mai multe funcții: produc limfocite și monocite, formează anticorpi, au rol în circulația limfei, opresc pătrunderea unor substanțe străine și au rol de barieră în răspândirea infecțiilor. Structura unui ganglion și drumul limfei prin el sunt prezentate în Figura 90. Câtă limfă se formează În fiecare minut, la nivelul capilarelor arteriale se filtrează 16 mL de apă. Din acest volum, 15 mL se resorb în sânge, la capătul venos al capilarelor. Apa rămasă în țesuturi nu stagnează, ci ia calea capilarelor limfatice. Debitul limfatic mediu este în jur de 1 500 mL/zi, dar poate varia mult în funcție de factorii hemodinamici locali.
Fig. 90 · Biologie Corint · p. 89
Ganglionul limfatic: structura și drumul limfei prin elFigura prezintă un ganglion limfatic secționat, ca să i se vadă interiorul. Ganglionii limfatici sunt formațiunile caracteristice așezate pe traseul vaselor limfatice, prin care limfa trece în mod obligatoriu. Pe schema sistemului limfatic din Figura 89 apar grupuri întregi de ganglioni (latero-cervicali, submandibulari, axilari, lombari, inghinali). Aici este mărit unul singur. Săgețile verzi arată sensul în care circulă limfa. Cele de sus coboară spre ganglion, pe vasele prin care limfa intră, iar cele de jos se îndepărtează de el, pe vasele prin care limfa iese. Se vede ușor că vasele care intră sunt mai multe decât cele care ies. Secțiunea se citește din afară spre centru: învelișul, apoi zona periferică și, la mijloc, partea centrală. Capsula și trabeculele Capsula fibroasă este învelișul de la exteriorul ganglionului. Pe marginea secțiunii apare ca o bandă deschisă la culoare, care încercuiește tot interiorul, iar în stânga și sus se vede și fața exterioară a ganglionului, portocalie. Vasele aferente o străbat ca să pătrundă în ganglion. Trabeculele sunt benzile deschise la culoare care pornesc din capsulă spre interior. Ele se strecoară printre compartimentele zonei corticale și le despart unele de altele. Cele două zone ale interiorului Zona corticală este partea periferică, așezată imediat sub capsulă. Este alcătuită din compartimente mari, violete, bine conturate, dispuse ca niște raze în jurul centrului. În ele se văd formațiuni ovale, mai închise la culoare. Medulara este partea centrală a ganglionului, un grup de compartimente mai mici, strânse la mijloc, spre care converg compartimentele zonei corticale. Din partea ei de jos pleacă vasele prin care limfa iese din ganglion. Drumul limfei prin ganglion Limfa colectată din diferitele țesuturi și organe ajunge la ganglion prin vasele aferente. Acestea sunt vase limfatice, formate prin confluența capilarelor limfatice și prevăzute la interior cu valve semilunare, care înlesnesc circulația limfei. Limfa străbate obligatoriu interiorul ganglionului. Din desen reiese că îl parcurge dinspre periferie spre centru: vasele aferente ajung, prin capsulă, la zona corticală, iar vasele care ies pleacă din dreptul medularei. Limfa părăsește ganglionul prin cele două vase din partea de jos. Manualul îl marchează pe unul dintre ele ca vas eferent, dar săgețile arată că limfa iese pe amândouă. După ce a străbătut ganglionii regionali, limfa circulă spre trunchiurile limfatice mari și ajunge, în final, în cele două colectoare limfatice mari, canalul toracic și vena limfatică dreaptă. Prin ele trece în circulația venoasă. Rolul ganglionilor limfatici Trecerea obligatorie a limfei prin ganglioni are un rost. Ganglionii limfatici produc limfocite și monocite (nu și eritrocite), formează anticorpi, au rol în circulația limfei, opresc pătrunderea unor substanțe străine și au rol de barieră în răspândirea infecțiilor. Anticorpii sunt proteine plasmatice din clasa gamma-globulinelor, care neutralizează sau distrug antigenul. Ganglionii fac parte din organele limfoide periferice, pe care le „însămânțează” timocitele din timus, iar în clasificarea țesuturilor manualul îi dă, alături de splină, ca exemplu de țesut conjunctiv moale reticulat.
Fig. 91 · Biologie Corint · p. 90
Cavitățile și valvele inimiiFigura prezintă inima deschisă printr-o secțiune care îi arată interiorul: cele patru cavități, valvele și reliefurile de pe pereții ventriculelor. Manualul o folosește atunci când prezintă inima ca forța motrice a aparatului cardiovascular. În acest sistem, arterele sunt conductele de distribuție, venele sunt rezervoarele de sânge care asigură întoarcerea lui la inimă, iar microcirculația (arteriole, metarteriole, capilare, venule) este teritoriul în care au loc schimburile de substanțe și gaze. Atenție la orientare: inima este privită din față, de aceea inima dreaptă (atriul drept și ventriculul drept) apare în stânga desenului, iar inima stângă în dreapta lui. Atriile se află în partea de sus, ventriculele în partea de jos. Cele patru cavități și vasele lor Atriul drept, sus în stânga desenului, primește cele două vene cave, care aduc sângele încărcat cu $\ce{CO2}$ de la țesuturi și organe (Figura 88). În desen, ele formează vasul vertical din stânga, care apare deasupra și dedesubtul inimii. Ventriculul drept este cavitatea mare din mijlocul desenului, sub atriul drept. În el începe circulația mică: sângele cu $\ce{CO2}$ pleacă spre plămân prin trunchiul arterei pulmonare, vasul care pornește din partea de sus a cavității, chiar sub arcul aortic. Atriul stâng, sus în dreapta desenului, primește cele patru vene pulmonare, câte două pentru fiecare plămân, cu sânge încărcat cu $\ce{O2}$. Ventriculul stâng, în dreapta desenului, sub atriul stâng, este locul în care începe circulația mare. Din el pleacă artera aortă, care duce sângele cu $\ce{O2}$ și substanțe nutritive spre țesuturi și organe. În desen, aorta este vasul gros care urcă prin mijloc și se curbează sus, formând arcul aortic, din care se desprind trei ramuri. Pereți de grosimi diferite Desenul arată clar că pereții nu au peste tot aceeași grosime. Atriile au pereți subțiri, iar ventriculele au pereți groși. Între cele două ventricule se află tot un perete gros, septul interventricular. Diferența are legătură cu funcția: forța de contracție este proporțională cu grosimea pereților inimii, mai redusă la atrii și mai puternică la ventricule, mai mare la ventriculul stâng față de cel drept. Totuși, cele două ventricule pompează același volum de sânge într-un minut, pentru că mica și marea circulație sunt dispuse în serie. Cele două seturi de valve Rolul fundamental al inimii este acela de a pompa sânge. Contracțiile ei se numesc sistole, iar relaxările, diastole. Pentru ca sângele să se deplaseze, în mod normal, într-un singur sens, fiecare parte a inimii este echipată cu două seturi de valve: Valvele atrio-ventriculare despart atriile de ventricule. În inima dreaptă se află valva tricuspidă, între atriul drept și ventriculul drept, iar în inima stângă valva bicuspidă, numită și mitrală, între atriul stâng și ventriculul stâng. Se deschid în timpul diastolei, permițând sângelui să treacă în ventricule, și se închid în timpul sistolei, interzicând trecerea lui înapoi în atrii. Valvele semilunare (sigmoide), aortice și pulmonare, se află acolo unde sângele iese din ventricule în artere. Se deschid în timpul sistolei, permițând expulzia sângelui în artere, și se închid în diastolă, împiedicând revenirea sângelui în ventricule. În desen se văd cele pulmonare, sus, în mijloc, acolo unde cavitatea ventriculului drept se continuă cu trunchiul arterei pulmonare. Închiderea valvelor se și aude. Zgomotul I, sistolic, este produs de închiderea valvelor atrio-ventriculare și de vibrația miocardului la începutul sistolei ventriculare, iar zgomotul II, diastolic, de închiderea valvelor semilunare, la începutul diastolei ventriculare. Reliefurile din interiorul ventriculelor Fața internă a ventriculelor nu este netedă. Desenul arată trei feluri de structuri, prezente în ambele ventricule: Trabeculele sunt reliefurile care acoperă pereții ventriculelor și le dau aspectul neregulat. Mușchii papilari sunt coloane musculare care se ridică din peretele ventriculului spre valva atrio-ventriculară. Cordajele tendinoase sunt fire subțiri care pornesc din vârful mușchilor papilari și se prind de valva atrio-ventriculară, legând-o de peretele ventriculului. Inima ca „pompă” Activitatea de pompă a inimii se apreciază prin debitul cardiac, volumul de sânge expulzat de fiecare ventricul într-un minut. Se obține înmulțind volumul-bătaie, în medie de 70 mL, cu frecvența cardiacă, care în mod normal este de 70-75 bătăi/min, și este, în repaus, de aproximativ 5 L/min. Deschiderea și închiderea valvelor urmează fazele ciclului cardiac (Figura 93), iar stimulii care declanșează contracțiile sunt generați chiar în inimă, de celulele sistemului de conducere (Figura 92).

Fig. 92 · Biologie Corint · p. 91
Sistemul de conducere al inimiiFigura arată sistemul de conducere al inimii, adică centrii care generează automatismul cardiac și căile prin care impulsul ajunge la tot miocardul. Traseul lui apare peste o inimă secționată, orientată la fel ca în Figura 91: atriul drept și ventriculul drept sunt în stânga desenului, iar atriul stâng și ventriculul stâng în dreapta. Structurile marcate sunt de două feluri: componentele sistemului de conducere, de la nodulul sinoatrial până la fibrele Purkinje, și trei repere anatomice (septul interatrial, septul interventricular și apexul) după care le poți găsi pe desen. Săgețile, desenate numai în ventricule, arată sensul în care se propagă impulsul. Automatismul: stimulul se naște chiar în inimă Musculatura cardiacă este alcătuită din două tipuri de celule musculare. Unele inițiază și conduc impulsul. Celelalte, pe lângă conducerea impulsului, răspund la stimuli prin contracție și alcătuiesc miocardul de lucru. Ambele tipuri sunt excitabile, dar, spre deosebire de mușchiul striat, stimulul nu vine din afară: este generat în interiorul inimii, de celulele din primul tip. Aceasta este automatismul (autoritmicitatea), proprietatea inimii de a se autostimula. De aceea, scoasă din corp și irigată cu un lichid nutritiv special, inima continuă să bată ritmic ore sau zile, chiar în lipsa influențelor extrinseci nervoase, vegetative și umorale. Automatismul este generat în anumiți centri, care au în alcătuirea lor celule ce inițiază și conduc impulsurile. Acești centri sunt chiar componentele sistemului de conducere din figură. Cei trei centri de automatism În mod normal, în inimă există trei centri de automatism cardiac, cu frecvențe diferite: Nodulul sinoatrial, la nivelul căruia frecvența descărcărilor este cea mai rapidă, de 70-80/minut. Din această cauză, activitatea cardiacă este condusă de acest centru, inima bătând în mod normal în ritm sinusal. Nodulul atrioventricular (joncțiunea atrioventriculară), la nivelul căruia frecvența descărcărilor este de 40 de potențiale de acțiune/minut. De aceea, acest centru nu se poate manifesta în mod normal, deși funcționează permanent și în paralel cu nodulul sinoatrial. Dacă centrul sinusal este scos din funcție, comanda inimii este preluată de nodulul atrioventricular, care imprimă ritmul nodal sau joncțional. Fasciculul His și rețeaua Purkinje, unde frecvența de descărcare este de 25 de impulsuri/minut. Acest centru poate comanda inima numai în cazul întreruperii conducerii atrioventriculare, imprimând ritmul idio-ventricular. Pe scurt, inima este comandată de centrul cu frecvența cea mai mare, iar ceilalți doi rămân în rezervă. Drumul impulsului pe desen Depolarizarea unei celule cardiace este transmisă celulelor adiacente, așa că miocardul se comportă ca un sincițiu funcțional. De fapt, inima funcționează ca două sinciții, unul atrial și unul ventricular, izolate din punct de vedere electric. Cu aceste două idei poți urmări impulsul pe desen, pornind de sus: Impulsul pornește din nodulul sinoatrial, desenat sus, în peretele atriului drept, și se răspândește prin miocardul celor două atrii, despărțite de septul interatrial. Între atrii și ventricule există, în mod normal, o singură conexiune funcțională electrică: nodulul atrioventricular, așezat la baza septului interatrial, și continuarea sa, fasciculul atrioventricular His. Prin nodulul atrioventricular, propagarea stimulului este întârziată. Fasciculul His coboară în septul interventricular, peretele dintre cele două ventricule, și se împarte în ramura dreaptă și ramura stângă. Săgeata de pe sept arată că impulsul coboară spre apex, vârful inimii. De la apex, săgețile ocolesc vârful și urcă prin pereții ambelor ventricule, de-a lungul fibrelor Purkinje, care duc impulsul la miocardul ventricular. Conductibilitatea Conductibilitatea este proprietatea miocardului de a propaga excitația la toate fibrele sale. Viteza de conducere diferă: de exemplu, este de 10 ori mai mare prin fasciculul His și rețeaua Purkinje decât prin miocardul contractil atrial și ventricular. Ce modifică ritmul Ritmul funcțional al centrului de comandă poate fi modificat sub acțiunea unor factori externi. Căldura sau stimularea sistemului nervos simpatic accelerează ritmul inimii, adică produc tahicardie, în timp ce răcirea nodulului sinusal sau stimularea parasimpaticului au efect contrar, bradicardie. Legătura cu ciclul cardiac Întârzierea stimulului în nodulul atrioventricular are o urmare pe care o regăsești în ciclul cardiac: atriile și ventriculele nu se contractă în același timp. Între sistola atriilor și cea a ventriculelor există un asincronism, iar sistola atrială o precedă cu 0,10 s pe cea ventriculară (Figura 93).

Fig. 93 · Biologie Corint · p. 92
Ciclul cardiac: durata sistolelor și a diastolelorFigura desfășoară un ciclu cardiac pe o bandă de timp citită de la stânga la dreapta, cu durata fiecărei faze scrisă în interiorul dreptunghiului ei. Rândul de sus urmărește atriile, rândul din mijloc urmărește ventriculele, iar dreptunghiul de jos marchează intervalul în care se relaxează și atriile, și ventriculele. Fazele desenate una sub alta se petrec în același timp, așa că merită urmărit unde începe și unde se termină fiecare dreptunghi față de cele de deasupra lui. Banda începe și se termină cu o sistolă atrială, așa că se vede exact locul în care ciclul se reia. Ce este un ciclu cardiac Un ciclu cardiac este format dintr-o sistolă și o diastolă, contracțiile inimii numindu-se sistole, iar relaxările, diastole. Durata unui ciclu cardiac este invers proporțională cu frecvența cardiacă, iar la un ritm de 75 de bătăi pe minut ciclul durează 0,8 s. Atât la atrii, cât și la ventricule, sistola și diastola însumează exact 0,8 s: 0,10 s plus 0,70 s la atrii, 0,30 s plus 0,50 s la ventricule. Asincronismul dintre atrii și ventricule În mod normal, singura conexiune funcțională electrică dintre atrii și ventricule este nodulul atrio-ventricular, cu continuarea sa, fasciculul His (Figura 92). Datorită întârzierii propagării stimulului prin acest nodul, există un asincronism între sistola atriilor și cea a ventriculelor: sistola atrială o precedă cu 0,10 s pe cea a ventriculelor. De aceea, în desen, dreptunghiul sistolei ventriculare nu începe odată cu cel al sistolei atriale, ci exact acolo unde acesta se termină, sub începutul diastolei atriale. Fazele, în ordinea parcurgerii Sistola atrială (0,10 s) deschide ciclul. Ventriculele se află la sfârșitul diastolei, sunt aproape pline cu sânge, iar sistola atrială definitivează această umplere. Presiunea din atrii crește, iar sângele nu poate reflua spre venele mari, datorită contracției fibrelor musculare din jurul orificiilor de vărsare a venelor în atrii, singura cale deschisă fiind orificiile atrio-ventriculare. Diastola atrială (0,70 s) urmează imediat și ocupă tot restul ciclului. Sub ea se succed, în desen, sistola ventriculară și diastola generală: 0,30 s plus 0,40 s dau exact cele 0,70 s. Sistola ventriculară (0,30 s) începe corespunzător începutului diastolei atriale și se desfășoară în două faze, delimitate de închiderea și deschiderea valvelor inimii (Figura 91). Faza de contracție izovolumetrică începe în momentul închiderii valvelor atrio-ventriculare (mitrală și tricuspidă) și se termină în momentul deschiderii valvelor semilunare (aortice și pulmonare). În acest interval, ventriculul se contractă ca o cavitate închisă, asupra unui lichid incompresibil, ceea ce duce la o creștere foarte rapidă a presiunii intracavitare. Faza de ejecție începe când presiunea ventriculară o depășește pe cea din artere și valvele semilunare se deschid, și se termină în momentul închiderii acestora. Volumul de sânge ejectat în timpul unei sistole (volum-bătaie sau volum sistolic) este de 75 mL în stare de repaus și poate crește până la 150-200 mL în eforturile fizice intense. Diastola ventriculară (0,50 s) începe cu relaxarea miocardului, iar presiunea intracavitară scade rapid. Când presiunea din ventricule devine inferioară celei din arterele mari, are loc închiderea valvelor semilunare, care împiedică reîntoarcerea sângelui în ventricule. Pentru scurt timp, ventriculele devin cavități închise, ceea ce se numește diastolă izovolumetrică. Presiunea intraventriculară continuă să scadă până la valori inferioare celei din atrii, valvele atrio-ventriculare se deschid și începe umplerea cu sânge a ventriculelor. În desen, dreptunghiul ei se întinde până sub sistola atrială din dreapta: primele 0,40 s se suprapun cu diastola generală, iar ultimele 0,10 s cu sistola atrială a ciclului următor, care cade astfel la sfârșitul diastolei ventriculare. Diastola generală (0,40 s) este perioada în care atriile și ventriculele se relaxează deopotrivă. În desen, dreptunghiul ei începe odată cu diastola ventriculară, exact unde se termină sistola ventriculară, și se oprește sub începutul sistolei atriale din dreapta. Acoperă, așadar, ultimele 0,40 s ale ciclului. La sfârșitul acestei faze are loc sistola atrială a ciclului cardiac următor. Ce se aude în timpul acestor faze Dintre manifestările electrice, mecanice și acustice pe care inima le produce în timpul activității sale, cele acustice, zgomotele cardiace, se leagă direct de două momente de pe bandă. Zgomotul I, sistolic, este mai lung, de tonalitate joasă și mai intens, și este produs de închiderea valvelor atrio-ventriculare și de vibrația miocardului la începutul sistolei ventriculare. Zgomotul II, diastolic, este mai scurt, mai acut și mai puțin intens, și este produs, la începutul diastolei ventriculare, de închiderea valvelor semilunare.
- 3RespirațiaPaginile 97 - 102

Fig. 94 · Biologie Corint · p. 97
Sistemul respirator: căile respiratorii și plămâniiFigura arată sistemul respirator în întregime, adică exact cele două părți din care manualul spune că este alcătuit: căile respiratorii și plămânii. Capul și gâtul sunt desenate în secțiune, ca să se vadă drumul aerului prin cavitatea nazală, faringe și laringe, iar toracele este privit din față, cu cei doi plămâni și cu arborele bronșic desenat în interiorul lor. Urmărește figura de sus în jos, în ordinea în care aerul străbate căile respiratorii. Pentru că toracele este văzut din față, plămânul drept apare în stânga imaginii, iar cel stâng în dreapta. Căile respiratorii Ele sunt reprezentate de cavitatea nazală, faringe, laringe, trahee și bronhii. Cavitatea nazală este formată din două spații simetrice numite fose nazale, situate sub baza craniului și deasupra cavității bucale. Aerul pătrunde în ea prin orificiile narinare, iar podeaua ei este palatul dur, care o desparte de cavitatea bucală. Înapoia palatului dur, desenul arată palatul moale, la trecerea spre faringe. Manualul nu descrie palatul dur și palatul moale în text, dar le numerotează și în Figura 75, unde cavitatea bucală este privită cu gura deschisă. Faringele este segmentul prin care trece aerul după ce părăsește cavitățile nazale. În desen coboară înapoia cavității nazale și a celei bucale, până în dreptul laringelui. În capitolul despre digestie, manualul îl împarte în trei porțiuni: nazo-, oro- și laringofaringe. Laringele este un organ cu dublă funcție: respiratorie, dar și fonatorie, prin corzile vocale. La intrarea în el, desenul arată epiglota. Manualul nu îi descrie rolul, dar în clasificarea țesuturilor o dă ca exemplu de cartilaj elastic, spre deosebire de cartilajele laringiale și traheale, care sunt de tip hialin. Traheea este un organ sub formă de tub care continuă laringele și are o lungime de 10-12 cm. În desen se recunoaște ușor după inelele ei. Bronhiile: la nivelul vertebrei T4, traheea se împarte în două bronhii, care pătrund în plămân prin hil, unde se ramifică intrapulmonar, formând arborele bronșic. Figura numerotează bronhia principală stângă, cea care intră în plămânul stâng. Răspântia din faringe Faringele este un segment comun sistemelor digestiv și respirator, o răspântie între calea respiratorie și cea digestivă. Desenul arată de ce: din el pornesc în jos două drumuri, în față laringele, continuat de trahee, iar în spate esofagul. Esofagul face parte din tubul digestiv și are în principal rolul de a transporta alimentele din faringe în stomac. Ca alimentele să nu ia calea aerului, în timpul faringian al deglutiției contracții musculare automate ale faringelui împiedică pătrunderea lor în trahee, iar centrul deglutiției inhibă centrul respirator bulbar, oprind respirația. Plămânii Plămânii sunt principalele organe ale respirației. Sunt situați în cavitatea toracică și au o capacitate totală de 5 000 mL de aer, cu variații individuale. În desen, arborele bronșic este arătat ramificându-se în interiorul fiecăruia dintre ei, pornind de la bronhia care intră prin hil. Fiecare plămân este învelit de o seroasă numită pleură, care nu este desenată aici. Pleura prezintă o foiță parietală, ce căptușește pereții toracelui, și o foiță viscerală, care acoperă plămânul. Între cele două foițe există o cavitate virtuală, cavitatea pleurală, în care se află o lamă fină de lichid pleural. Tocmai prin pleură plămânii sunt solidarizați cu cutia toracică și îi urmează mișcările (Figura 96). Unde se termină drumul aerului Bronhia principală se împarte în bronhii, iar acestea, la rândul lor, se divid în bronhiole. Ultimele ramificații ale arborelui bronșic sunt bronhiolele respiratorii, de la care pleacă ductele alveolare, terminate prin săculeți alveolari, ai căror pereți sunt compartimentați în alveole pulmonare. Aceste formațiuni, prea mici pentru a se vedea aici, alcătuiesc acinii pulmonari, unitatea morfo-funcțională a plămânului (Figura 95). Abia aici au loc schimburile de gaze dintre alveole și sânge, la nivelul membranei alveolo-capilare, formată din pereții alveolelor și bogata rețea de capilare din jurul lor. Aerul care umple căile aeriene până la bronhiile terminale nu participă la schimburi, iar ventilația lui este numită în manual ventilația spațiului mort.
Fig. 95 · Biologie Corint · p. 97
Structura acinului pulmonarFigura duce mai departe drumul aerului din Figura 94, până la capătul arborelui bronșic, acolo unde au loc schimburile de gaze dintre alveole și sânge. Desenul mare se citește pornind din stânga sus. O bronhiolă, tăiată la capăt ca să i se vadă lumenul, se ramifică de mai multe ori, iar fiecare ramură se termină cu o formațiune în formă de ciorchine. Pe lângă bronhiolă merg două vase subțiri, o arteriolă și o venulă, care se ramifică odată cu ea. Ciorchinele din dreapta jos este desenat în secțiune, ca să i se vadă interiorul, iar cercul din stânga mărește o singură alveolă, îmbrăcată în rețeaua ei de capilare. Drumul aerului până în alveole Bronhia principală se împarte în bronhii, iar acestea se divid, la rândul lor, în bronhiole. Figura pornește de la o bronhiolă și arată ultimele ramificații, în ordinea în care le parcurge aerul: Bronhiola lobulară, tubul gros din stânga sus, aduce aerul și se ramifică de mai multe ori. Bronhiolele respiratorii sunt ultimele ramificații ale arborelui bronșic. În desen, una dintre ele se vede jos, chiar înainte de ciorchinele secționat. Ductele (canalele) alveolare pleacă de la bronhiolele respiratorii. În ciorchinele secționat, ductul se vede ca un culoar care îl străbate pe la mijloc. Săculeții alveolari sunt formațiunile prin care se termină ductele alveolare, adică ciorchinii din desen. Alveolele pulmonare sunt compartimentele în care sunt împărțiți pereții săculeților alveolari, bobițele fiecărui ciorchine. În ciorchinele secționat apar ca niște cămăruțe rotunde, așezate în jurul ductului. Acinul pulmonar Bronhiolele respiratorii, împreună cu formațiunile derivate din ele (ducte alveolare, săculeți alveolari și alveole pulmonare), formează acinii pulmonari. Acinul este unitatea morfo-funcțională a plămânului. Bronhiola lobulară din capătul de sus al desenului arată de unde vine aerul, dar nu intră în alcătuirea acinului, care începe abia de la bronhiola respiratorie. Vasele și rețeaua de capilare Arteriola pulmonară și venula pulmonară însoțesc bronhiola și se ramifică odată cu ea, până la ciorchini. Pe unul dintre ciorchinii din dreapta sus, ramurile lor se desfac pe suprafața alveolelor. Prin aceste vase trece sângele micii circulații. Arterele pulmonare duc sângele cu $\ce{CO2}$ spre rețeaua capilară din jurul alveolelor. Acolo, sângele cedează $\ce{CO2}$ alveolelor, care îl elimină prin expirație. Sângele cu $\ce{O2}$ este apoi colectat de venele pulmonare, câte două pentru fiecare plămân, care se termină în atriul stâng. Mărirea din cerc arată acest drum la nivelul unei singure alveole. Arteriola trece pe la marginea ei de jos, venula pe la marginea de sus, iar între ele alveola este îmbrăcată de o bogată rețea de capilare. Sângele adus de arteriolă străbate rețeaua și se adună în venulă. Desenul colorează arteriola în albastru și venula în roșu, iar capilarele trec treptat de la albastru la roșu. Culorile urmăresc schimbarea sângelui pe suprafața alveolei: intră în rețea ca sânge cu $\ce{CO2}$ și ajunge în venulă ca sânge cu $\ce{O2}$. Membrana alveolo-capilară Rețeaua de capilare formează, împreună cu pereții alveolelor, membrana alveolo-capilară (membrana respiratorie), la nivelul căreia au loc schimburile de gaze dintre alveole și sânge. Ea este alcătuită din endoteliul capilar, interstițiul pulmonar, epiteliul alveolar și surfactant (lichid tensioactiv), are o grosime medie de 0,6 microni și o suprafață totală de 50-100 m². Cum trec oxigenul și dioxidul de carbon prin ea se vede în Figura 97.
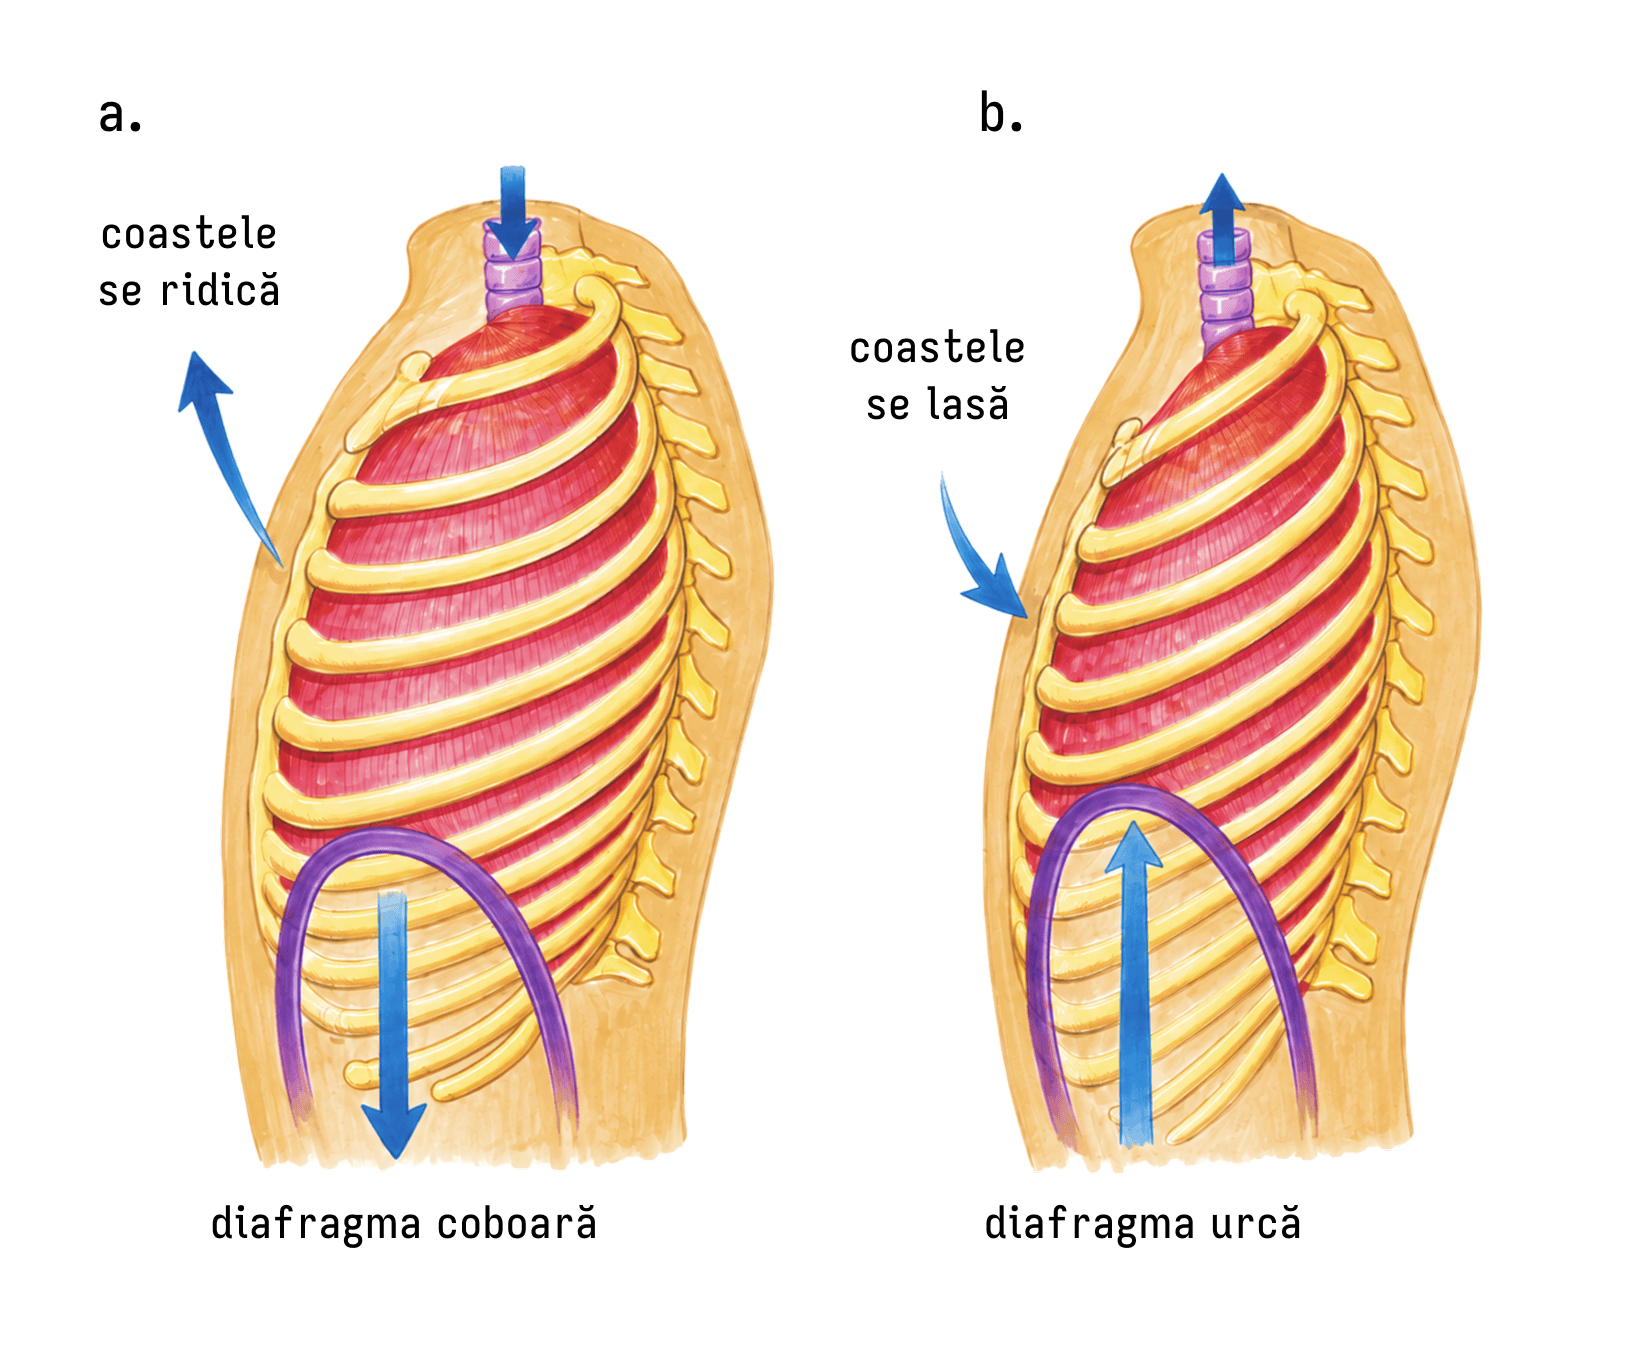
Fig. 96 · Biologie Corint · p. 98
Modificările de volum ale cutiei toracice în inspirație și expirațieFigura arată cum se schimbă volumul cutiei toracice în timpul ventilației pulmonare, adică al deplasării aerului în ambele sensuri între alveolele pulmonare și atmosferă. Panoul a prezintă inspirația, iar panoul b, expirația. În ambele, toracele este văzut din profil: sternul în față, coloana vertebrală în spate și, între ele, coastele, care formează pereții laterali. Printre coaste se văd plămânii, iar sub ei, diafragma, ca o boltă. Fiecare panou are trei săgeți. Cea de sus, pe căile respiratorii care urcă spre gât (Figura 94), arată în ce sens circulă aerul, iar celelalte două arată încotro se mișcă coastele și diafragma. Cum urmează plămânii mișcările toracelui Aerul intră și iese pe rând pentru că volumul cutiei toracice variază ciclic, iar plămânii se mișcă în același sens cu ea. Legătura dintre plămâni și torace o face pleura, seroasa care învelește fiecare plămân. Foița ei parietală căptușește pereții toracelui, foița viscerală acoperă plămânul, iar între ele se află cavitatea pleurală, o cavitate virtuală cu o lamă fină de lichid pleural. Aici, presiunea pleurală este în mod normal negativă (mai mică decât cea atmosferică), din cauza sucțiunii permanente a lichidului din acest spațiu, și variază cu fazele respirației. Variația de volum are loc prin două mișcări de sens opus, mișcarea inspiratorie și mișcarea expiratorie, câte una în fiecare panou. Două căi prin care se schimbă volumul Dimensiunile plămânilor variază prin distensie și retracție în două moduri, iar desenul le arată pe amândouă deodată: Diafragma, mușchiul lat în formă de cupolă care separă cutia toracică de cavitatea abdominală, are fața boltită spre torace. Când coboară, alungește cavitatea toracică, iar când urcă, o scurtează. Coastele se pot ridica și coborî. Ridicarea lor mărește diametrul antero-posterior al cavității toracice, iar coborârea îl micșorează. În respirația normală, de repaus, aproape toată variația de volum se datorează diafragmei. (a) Inspirația Diafragma se contractă și coboară (săgeata de la bază, orientată în jos), trăgând după ea fața bazală a plămânilor. Coastele se ridică (săgeata din față, orientată în sus și înainte). În repaus, grilajul costal este coborât, iar sternul stă aproape de coloana vertebrală. Când grilajul se ridică, proiectează sternul înainte, departe de coloană, așa că în inspirația maximă diametrul antero-posterior este cu aproximativ 20% mai mare decât în expirație. Grilajul costal este ridicat de mușchii inspiratori, mai ales de mușchii gâtului. Pentru ca aerul să poată intra, presiunea din interiorul alveolelor, presiunea alveolară, trebuie să scadă sub cea atmosferică. În repaus, cu glota deschisă, aerul nu circulă, iar în tot arborele respirator presiunea este egală cu cea atmosferică, considerată 0 cm $\ce{H2O}$. Într-o inspirație normală, presiunea alveolară coboară la $-1$ cm $\ce{H2O}$. Deși mică, această presiune negativă este suficientă pentru ca aproximativ 500 mL de aer să intre în plămâni în cele două secunde cât ține inspirația, în sensul săgeții de sus. La lucrarea practică a capitolului, manualul reproduce acest mecanism cu aparatul Donders și conchide că inspirația este un proces activ. (b) Expirația Diafragma se relaxează și urcă (săgeata de la bază, orientată acum în sus), iar coastele se lasă (săgeata din față, orientată în jos și înapoi). În expirația liniștită, odată cu relaxarea diafragmei, plămânii sunt comprimați de retracția elastică a lor înșiși, a peretelui toracic și a structurilor abdominale. Grilajul costal este coborât de mușchii expiratori, de exemplu mușchii drepți abdominali. Presiunea alveolară variază acum în sens opus: crește la aproximativ $+1$ cm $\ce{H2O}$, peste cea atmosferică, și forțează 500 mL de aer să iasă din plămâni în cele 2-3 secunde cât durează expirația, cum arată săgeata de sus. Acest volum de aer inspirat și expirat într-o respirație normală, în medie 500 mL, este volumul curent. Forțele elastice pulmonare (de recul) Expirația se bazează pe două tipuri de forțe elastice: cele ale țesutului pulmonar însuși și cele produse de tensiunea superficială a lichidului tensioactiv (surfactant) care căptușește la interior pereții alveolari și celelalte spații aeriene pulmonare. Tensiunea superficială apare pentru că fața internă a alveolelor este acoperită de acest strat subțire de lichid, iar în alveole se află aer. Cum fenomenul are loc în toate spațiile aeriene ale plămânului, rezultă o forță a întregului plămân, forța de tensiune superficială, care se adaugă elasticității țesutului pulmonar și favorizează expirația.

Fig. 97 · Biologie Corint · p. 100
Difuziunea gazelor respiratoriiFigura ilustrează difuziunea, etapa respirației care urmează după ventilația alveolară: oxigenul trece din alveole în sângele capilar, iar dioxidul de carbon trece în sens invers. Desenul mărește un singur loc din rețeaua de capilare care înconjoară alveolele în acinul pulmonar (Figura 95). Citește-l de sus în jos: sus se află alveola (și, pe margini, alveolele vecine), la mijloc peretele subțire care desparte alveolele de sânge, iar jos sângele din capilarul pulmonar. Săgeata dreaptă de la bază arată sensul în care curge sângele, iar săgețile curbe arată drumul gazelor: oxigenul coboară spre sânge, dioxidul de carbon urcă spre alveolă. Ce se află de o parte și de alta a peretelui Alveola conține aerul alveolar, cu o compoziție foarte diferită de a aerului atmosferic. La fiecare respirație, acest aer este înlocuit doar parțial, din el este extras oxigenul, primește permanent $\ce{CO2}$ din sângele pulmonar, iar aerul inspirat a fost umezit înainte să ajungă aici. Plasma umple capilarul, iar în ea plutește o hematie (eritrocit), unul dintre elementele figurate ale sângelui: o celulă fără nucleu, cu rol în transportul $\ce{O2}$ și $\ce{CO2}$ (Figura 87). Artera pulmonară și vena pulmonară stau la capetele săgeții de la bază. Arterele pulmonare aduc sângele cu $\ce{CO2}$ spre rețeaua capilară din jurul alveolelor, iar sângele cu $\ce{O2}$ este colectat de venele pulmonare, care se varsă în atriul stâng. Membrana alveolo-capilară Peretele dintre alveole și plasmă, desenat ca o bandă de celule turtite cu nuclei, este membrana alveolo-capilară (respiratorie). Desenul nu îi numește straturile, dar manualul arată că este alcătuită din endoteliul capilar, interstițiul pulmonar, epiteliul alveolar și surfactant, lichidul tensioactiv care căptușește pe dinăuntru pereții alveolari. Grosimea ei medie este de 0,6 microni, iar suprafața totală de 50-100 m². Membrana este deci foarte subțire și foarte întinsă, două însușiri care cresc rata difuziunii (vezi factorii de la final). Regula care dă sensul săgeților Difuziunea are loc numai acolo unde există o diferență de presiune și merge totdeauna dinspre zona cu presiune mare spre zona cu presiune mică. Oxigenul are presiunea parțială mai mare în alveolă, iar dioxidul de carbon în sânge, de aceea săgețile lor au sensuri opuse. Drumul oxigenului Presiunea parțială a $\ce{O2}$ este de 100 mm Hg în aerul alveolar și de numai 40 mm Hg în sângele care intră în capilarele pulmonare. Săgeata lui pornește din alveolă, străbate peretele și se desface sub el în două ramuri, care arată ordinea pașilor: Ramura care se oprește în plasmă („$\ce{O2}$ dizolvat în plasmă”): după ce traversează membrana, moleculele de $\ce{O2}$ se dizolvă întâi în plasmă, iar presiunea parțială a $\ce{O2}$ din plasmă crește. Ramura care coboară în hematie („$\ce{O2}$”): apoi $\ce{O2}$ difuzează în hematie și se combină reversibil cu ionii de fier din hemoglobină, transformând dezoxihemoglobina în oxihemoglobină. În mod normal, presiunile parțiale ale $\ce{O2}$ din alveolă și din sânge se egalează în 0,25 secunde. Hematia petrece în capilarul pulmonar, adică pe drumul arătat de săgeata de la bază, în medie 0,75 secunde. Restul de 0,50 secunde se numește margine de siguranță și asigură o preluare adecvată a $\ce{O2}$ în perioade de stres, cum ar fi efortul fizic sau expunerea la altitudini mari. Drumul dioxidului de carbon Presiunea parțială a $\ce{CO2}$ este de 46 mm Hg în sângele din capilarele pulmonare și de 40 mm Hg în aerul alveolar. Săgeata lui urcă în două trepte, în oglindă cu cea a oxigenului: Prima săgeată pleacă din hematie, de la „$\ce{CO2}$ din $\ce{HCO3-}$”, și se oprește în plasmă. Formula $\ce{HCO3-}$ este cea a bicarbonatului, una dintre substanțele anorganice ale plasmei. Sub formă de bicarbonat plasmatic, obținut prin fenomenul de membrană Hamburger (fenomenul migrării clorului) la nivelul eritrocitelor, se transportă 90 % din $\ce{CO2}$. A doua săgeată pornește din plasmă, unde gazul se află ca „$\ce{CO2}$ dizolvat în plasmă”, străbate membrana și intră în alveolă. De aici, $\ce{CO2}$ este eliminat prin expirație. Pe lângă bicarbonat, $\ce{CO2}$ mai este transportat dizolvat fizic în plasmă (5 %) și sub formă de carbaminohemoglobină (5 %), formă pe care figura nu o arată. Deși diferența de presiune a $\ce{CO2}$ ($46 - 40 = 6$ mm Hg) este doar o zecime din cea a $\ce{O2}$ ($100 - 40 = 60$ mm Hg), $\ce{CO2}$ difuzează de 20 de ori mai repede, pentru că este de 25 de ori mai solubil decât $\ce{O2}$ în lichidele organismului. Presiunile lui parțiale se egalează tot în 0,25 secunde. De ce depinde rata difuziunii Manualul enumeră patru factori care influențează rata difuziunii gazelor prin membrana alveolo-capilară: Presiunea parțială a gazului în alveolă, deasupra peretelui din desen. Presiunea parțială a gazului în capilarul pulmonar, sub perete. Împreună, primii doi factori dau diferența de presiune care stabilește sensul săgeților. Coeficientul de difuziune al gazului, specific pentru fiecare tip de moleculă. Dimensiunile membranei respiratorii: rata difuziunii este invers proporțională cu grosimea membranei și direct proporțională cu suprafața ei.
- 4ExcrețiaPaginile 103 - 106
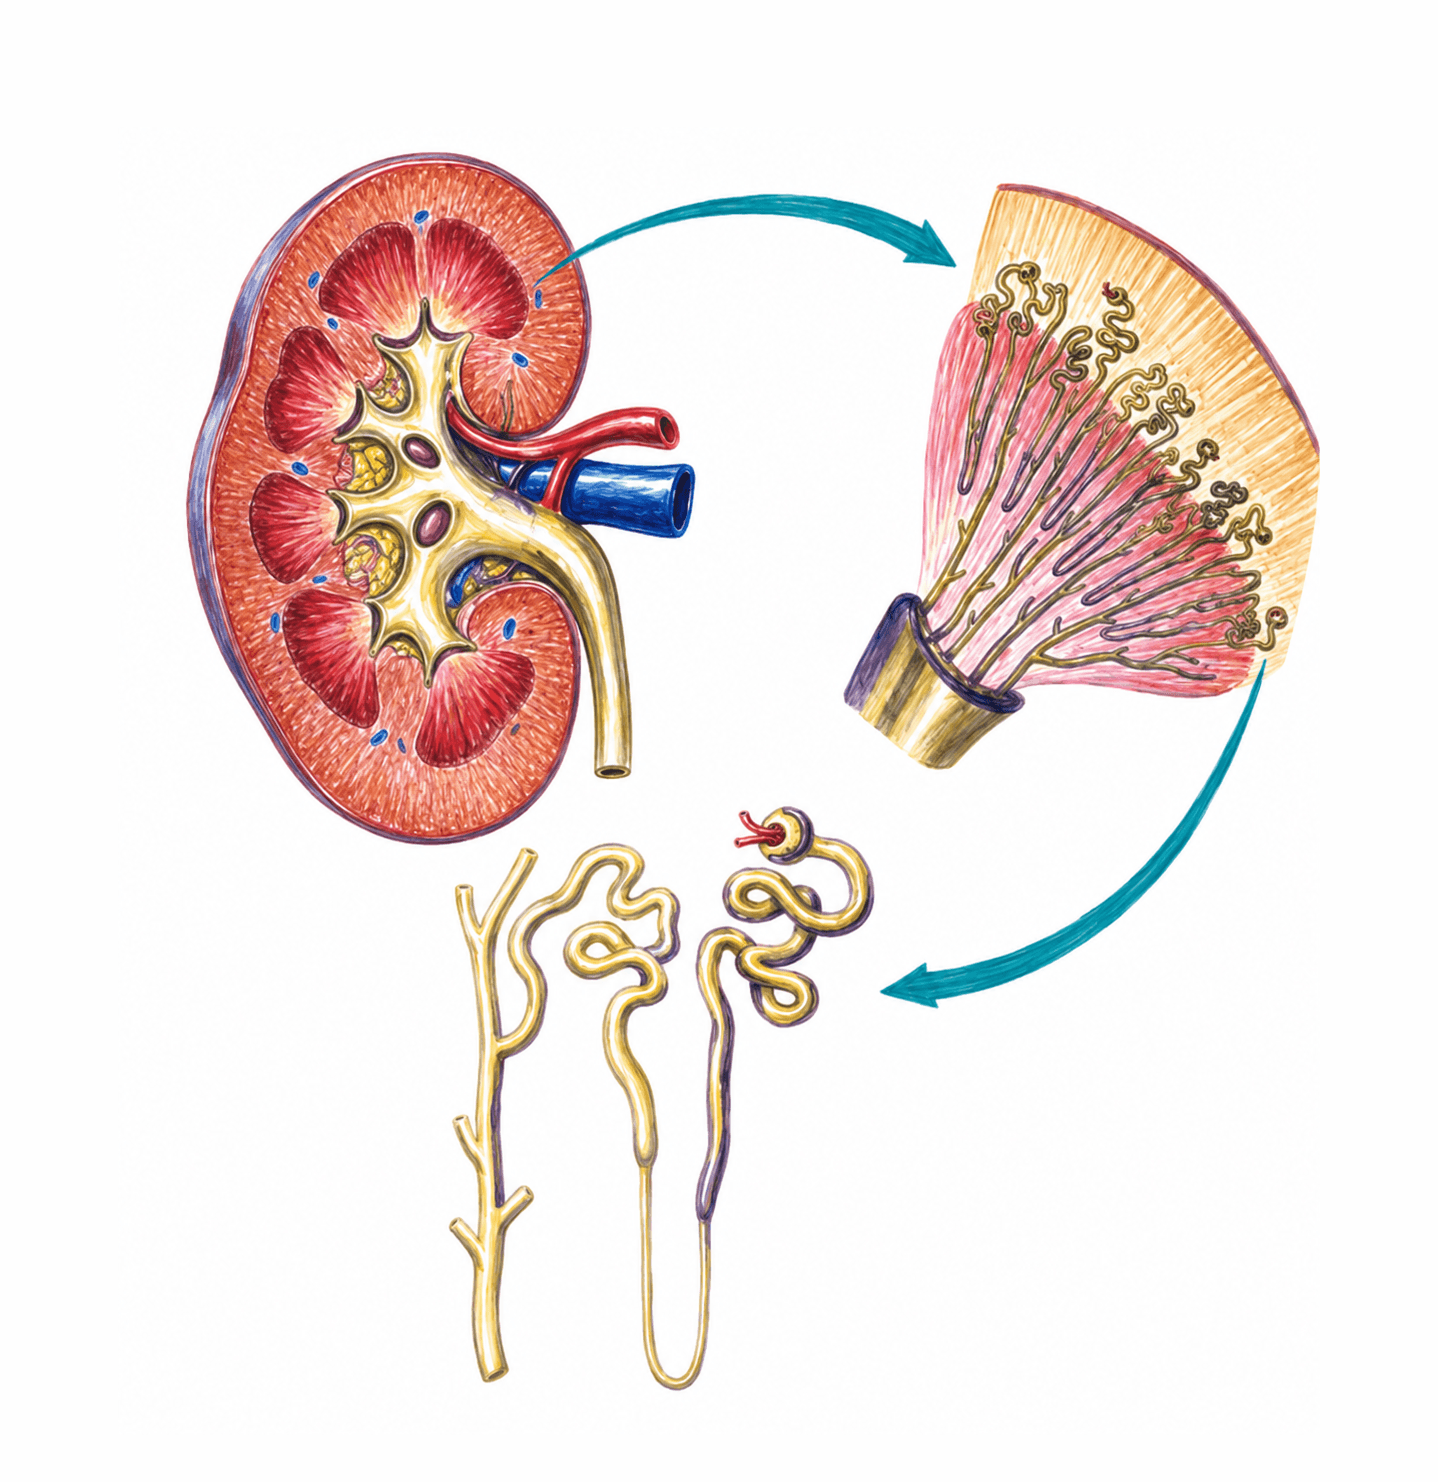
Fig. 98 · Biologie Corint · p. 103
Structura rinichiului și nefronulFigura urmărește rinichiul de la organul întreg până la unitatea lui de bază, în trei desene legate prin două săgeți curbe. Sus, în stânga, rinichiul este tăiat pe lungime. Prima săgeată duce spre o felie mărită, în formă de pană, care merge de la suprafața organului până la vârful unei piramide. A doua săgeată pornește de la nefronii acestei felii și duce, jos, la un singur nefron, desfășurat, împreună cu tubul colector în care se deschide. Nefronul este unitatea anatomică și funcțională a rinichiului, iar în alcătuirea lui intră două părți: corpusculul renal și un sistem tubular. Rinichii sunt așezați în cavitatea abdominală, de o parte și de alta a coloanei vertebrale, în regiunea lombară. Rinichiul în secțiune Pe secțiune se deosebesc o zonă periferică și una profundă, iar pe partea scobită a organului se află calicele, bazinetul și vasele. Corticala este zona periferică, de sub suprafața rinichiului, care pătrunde și printre piramide. Aici se află glomerulii nefronilor corticali și cea mai mare parte a rețelei de capilare peritubulare. Medulara este zona profundă, formată din piramidele Malpighi, formațiuni conice cu striații fine. Fiecare piramidă stă cu baza spre corticală, iar vârful ei, papila renală, este îndreptat spre calice. Fiecare papilă este cuprinsă de un calice mic. Calicele mici se unesc în calice mari, iar desenul arată trei: superior, mijlociu și inferior. Calicele mari se deschid în bazinet (pelvis renal), în care ajunge urina finală. Bazinetul se continuă în jos, îngustându-se, cu ureterul. Pe aceeași parte intră artera renală, una dintre ramurile viscerale ale aortei descendente abdominale, și iese vena renală, iar sângele venos al rinichilor ajunge în vena cavă inferioară. Ambele vase apar și în arborele vascular al marii circulații (Figura 88). Debitul sangvin renal este de aproximativ 1200 mL/min (420 mL/100 g țesut/min), iar în condiții bazale reprezintă 20% din debitul cardiac de repaus. Felia mărită: unde se află nefronii Felia cuprinde o piramidă, cu corticala care o acoperă. Marginea ei exterioară este capsula renală, învelișul de la suprafața organului. Chiar sub capsulă, în corticală, nefronii apar ca mici ghemuri de tubi răsuciți, din care pornesc tubi drepți ce străbat piramida și se strâng spre vârful ei. Acolo, la papila renală, urina trece în calicele mic, desenat ca o pâlnie care cuprinde papila. Cei doi rinichi conțin împreună circa 2 milioane de nefroni, fiecare nefron fiind apt să producă urină. Nefronul, desfășurat Lichidul parcurge nefronul de la capsula din dreapta sus până la tubul drept din stânga: Capsula glomerulară (Bowman) este formațiunea rotundă în care intră un mic vas de sânge. Ea cuprinde capilarele glomerulare, iar lichidul care filtrează din ele în capsulă se numește filtrat glomerular sau urină primară (Figura 99). În desen, capsula cu capilarele ei reprezintă corpusculul renal, iar tubii care urmează, sistemul tubular. Tubul contort proximal este prima porțiune răsucită, imediat după capsulă. Aici are loc cea mai importantă reabsorbție a apei, cea obligatorie, de 80% din apa filtrată. Ansa Henle este bucla lungă în formă de U, care coboară în medulară și urcă înapoi. Tubul contort distal este a doua porțiune răsucită, după ansă. La nivelul lui, un schimb ionic activat de aldosteron reabsoarbe $\ce{Na+}$ și secretă $\ce{K+}$ sau $\ce{H+}$. Tubul colector este tubul drept în care se deschide tubul contort distal și care duce lichidul spre papilă. La nivelul tubilor contorți distali, dar mai ales al tubilor colectori, se reabsoarbe facultativ 15% din apa filtrată, doar în prezența ADH. Două tipuri de nefroni Corticali, 85% din numărul total, au glomerulul situat în corticala renală și ansa Henle scurtă, care ajunge doar în stratul extern al medularei renale. Juxtamedulari, cu glomerulul situat la joncțiunea dintre corticală și medulară, au anse Henle lungi, care coboară adânc în medulară, uneori ajungând la nivelul papilelor renale. Ei sunt extrem de importanți în mecanismul contracurent, prin care rinichiul produce urina concentrată. Drumul urinei Sistemul excretor este format din rinichi și căile urinare, pe care urina le străbate în ordinea: tubi colectori, calice mici, calice mari, bazinet, uretere, vezică și uretră. Din cei aproximativ 180 L de filtrat glomerular formați zilnic, peste 99% sunt reabsorbiți în tubii uriniferi, iar restul trece în urină. Prin urina formată astfel, rinichii excretă cea mai mare parte a produșilor finali de metabolism și controlează concentrațiile majorității constituenților organismului. Ce se întâmplă cu lichidul de-a lungul nefronului este arătat în Figura 100.
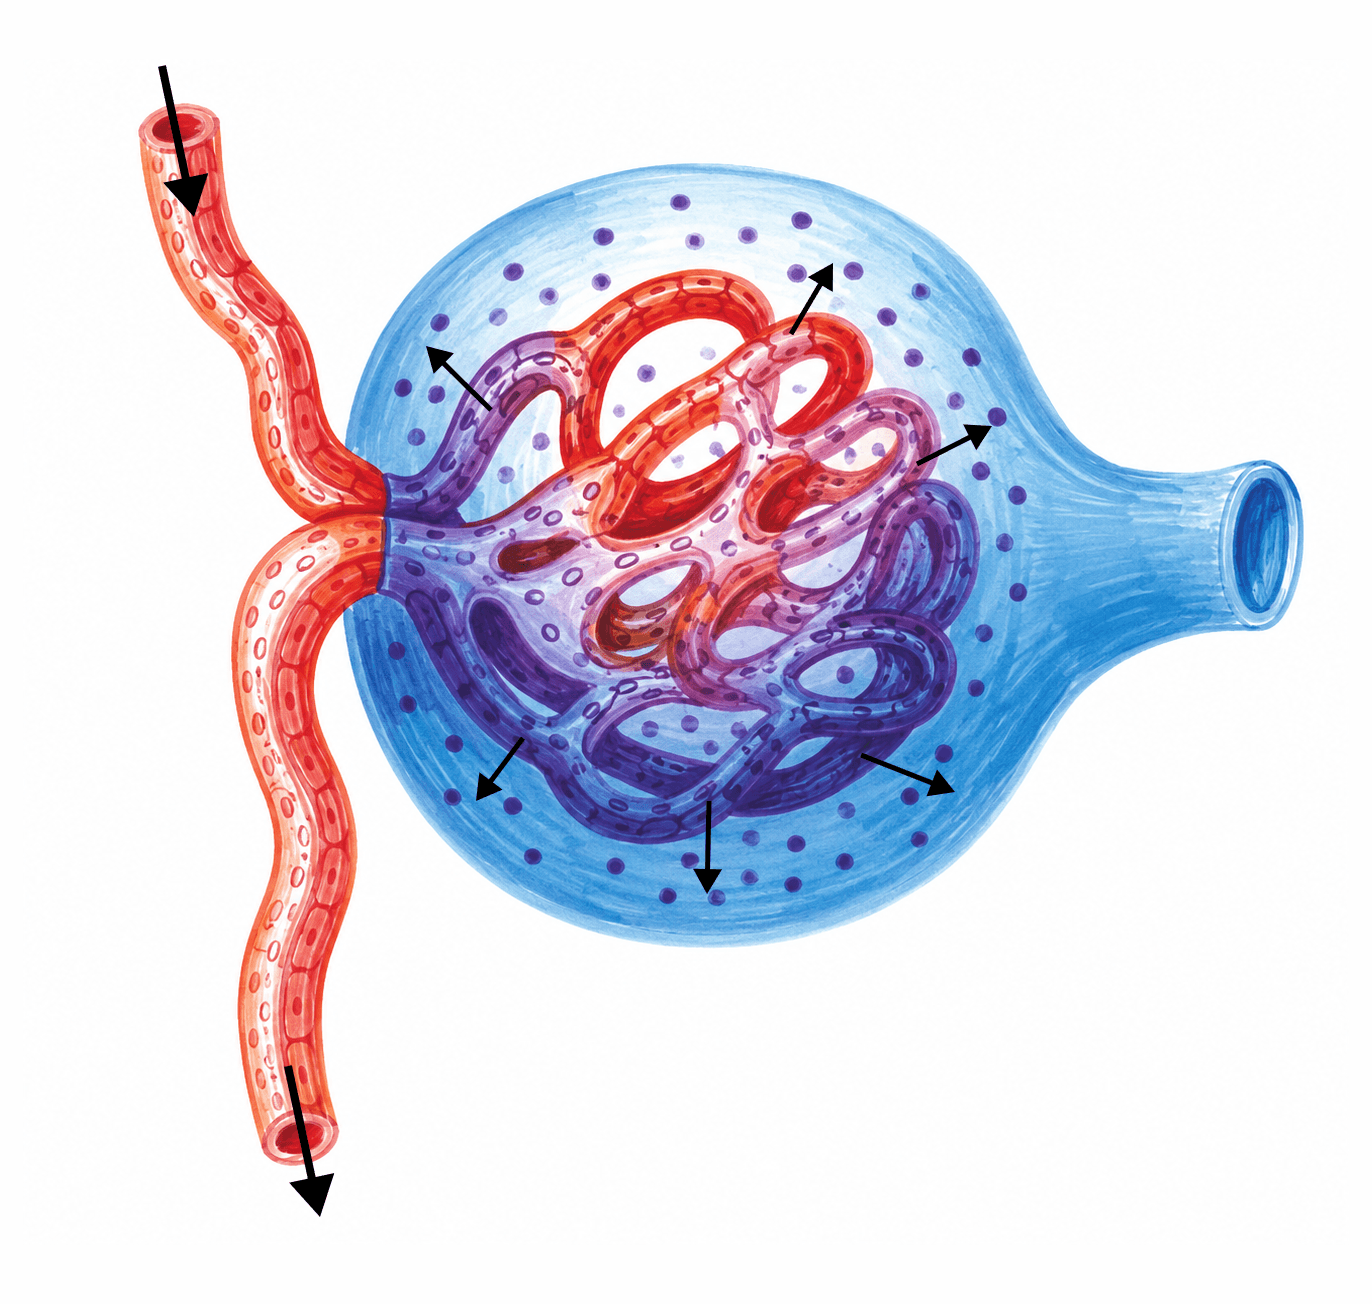
Fig. 99 · Biologie Corint · p. 103
Filtrarea glomerularăFigura mărește corpusculul renal, prima dintre cele două părți ale nefronului: un ghem de capilare, glomerulul, închis în capsula glomerulară (Bowman). Aici se formează urina primară, din care, de-a lungul tubilor, va rezulta urina finală. Urmărește întâi săgețile mari de la capetele vaselor: sângele coboară prin arteriola aferentă, străbate capilarele glomerulare și pleacă prin arteriola eferentă. Apoi privește cele șase săgeți mici din jurul ghemului. Toate pornesc dinspre capilare spre spațiul capsulei și arată sensul filtrării, iar punctele risipite în acest spațiu sunt lichidul filtrat. Spre dreapta, capsula se continuă cu un tub deschis la capăt, începutul sistemului tubular, adică a doua parte a nefronului. Cele două arteriole Ambele vase se prind de capsulă în același punct, pe partea stângă a desenului, așa că ghemul de capilare este așezat între două arteriole. Arteriola aferentă aduce sângele în capilarele glomerulare. Arteriola eferentă duce sângele care a trecut deja prin glomerul spre rețeaua capilară peritubulară, rețeaua bogată de capilare din jurul întregului sistem tubular al rinichiului. Ce este filtratul glomerular Lichidul care filtrează din capilarele glomerulare în capsula Bowman se numește filtrat glomerular sau urină primară. Are aproape aceeași compoziție ca lichidul care filtrează în interstiții la capătul arterial al capilarelor. Se consideră că filtratul glomerular este o plasmă care nu conține proteine în cantități semnificative. De aceea desenul deosebește două feluri de particule: proteinele apar doar în interiorul vaselor de sânge, unde rămân, iar în capsulă ajung numai punctele filtratului. Forțele care realizează filtrarea Filtrarea prin membrana glomerulară, din capilare în capsula Bowman, este rezultatul a patru presiuni: Presiunea din capilarele glomerulare, cu valoarea medie de 60 mm Hg, care determină filtrarea. Ea împinge lichidul în sensul săgeților mici. Presiunea din capsula Bowman, în exteriorul capilarelor, de aproximativ 18 mm Hg, care se opune filtrării. Presiunea coloid-osmotică a proteinelor plasmatice din capilare, în medie 32 mm Hg, care se opune și ea filtrării. Aceste proteine sunt cele desenate în interiorul vaselor. Presiunea coloid-osmotică a proteinelor din capsula Bowman, considerată 0, pentru că filtratul nu conține proteine în cantități semnificative. Observă că presiunea care determină filtrarea (60 mm Hg) este mai mare decât suma celor două care i se opun (18 + 32 = 50 mm Hg). De aceea lichidul trece din capilare în capsulă, și nu invers. Cât se filtrează Cantitatea de filtrat glomerular care se formează într-un minut prin toți nefronii ambilor rinichi (împreună, circa 2 milioane) se numește debitul filtrării glomerulare. Normal, acesta este de aproximativ 125 mL/min, adică 180 L pe zi. Peste 99% din filtrat este reabsorbit în mod obișnuit în tubii uriniferi, iar restul trece în urină. Ce urmează Din capsulă, filtratul străbate diferitele porțiuni ale tubilor uriniferi. Pe tot acest parcurs, substanțele sunt absorbite sau secretate selectiv de către epiteliul tubular, iar lichidul rezultat ajunge în pelvisul renal ca urină finală (Figura 100). Locul nefronilor în rinichi se vede în Figura 98. La nefronii corticali, care reprezintă 85% din total, glomerulul se află în corticala renală, iar la cei juxtamedulari, la joncțiunea dintre corticală și medulară.

Fig. 100 · Biologie Corint · p. 104
Formarea urinei de-a lungul nefronuluiFigura urmărește formarea urinei de-a lungul unui nefron întins de la stânga la dreapta, urmat de tubul colector și de calicele mic. Se citește în sensul în care curge lichidul: capsulă glomerulară → tub contort proximal → ansa Henle → tub contort distal → tub colector → calice mic. Deasupra tubilor trece capilarul, cu săgeți care arată sensul curgerii sângelui, tot de la stânga la dreapta. Casetele numesc procesul pe care desenul îl leagă de fiecare porțiune: „presiune de filtrare” la glomerul, „reabsorbție selectivă” la tubul contort proximal, „secreție tubulară” la tubul contort distal și „reabsorbția apei” la tubul colector. Două săgeți scurte leagă tubul de capilar: la tubul contort proximal una urcă din tub spre capilar (reabsorbție), iar la tubul contort distal alta coboară din capilar spre tub (secreție). Săgețile însoțite de $\ce{H2O}$ arată apa care părăsește tubul, iar caseta „excreție”, de la capătul drumului, marchează urina eliminată. Filtrarea: glomerulul și capsula glomerulară Nefronul începe cu glomerulul, ale cărui capilare stau în capsula glomerulară (capsula Bowman). Sângele intră în glomerul prin vasul din stânga, iar o săgeată arată drumul filtratului din glomerul spre începutul tubului. Lichidul care filtrează din capilarele glomerulare în capsulă este filtratul glomerular, numit și urină primară, considerat o plasmă care nu conține proteine în cantități semnificative. Filtrarea este determinată de presiunea din capilarele glomerulare (în medie 60 mm Hg), căreia i se opun presiunea din capsula Bowman (aproximativ 18 mm Hg) și presiunea coloid-osmotică a proteinelor plasmatice (32 mm Hg), așa cum arată pe larg Figura 99. Debitul filtrării glomerulare este de aproximativ 125 mL/min (180 L pe zi), dar peste 99% din filtrat este reabsorbit în tubii uriniferi. Reabsorbția selectivă Cei mai mulți compuși ai urinei primare sunt substanțe utile, pe care tubii le recuperează. Nefrocitele sunt adaptate pentru asta: au la polul apical numeroși microvili, care cresc mult suprafața activă, la polul bazal numeroase mitocondrii, care fabrică ATP-ul necesar absorbției, iar membranele lor conțin pompe metabolice. Transportul pasiv se face prin difuziune, osmoză și diferențe de presiune hidrostatică, fără consum de energie și fără o capacitate maximă de transport. Așa se reabsorb apa (în gradient osmotic), ureea (în gradient chimic) și o parte din sodiu și clor (în gradient electric și electrochimic). Transportul activ este selectiv: celula consumă energie și oxigen (ATP) doar pentru a recupera substanțele utile, lucrând împotriva gradientelor de concentrație sau electrice, și lasă cataboliții în urină. Forța pompelor este limitată de capacitatea lor maximă de transport pe unitatea de timp (Tmax). Așa se reabsorb glucoza, aminoacizii, unele vitamine, polipeptidele și majoritatea sărurilor minerale ($\ce{Na+}$, $\ce{K+}$, $\ce{Cl-}$, $\ce{HCO3-}$, fosfați, sulfați, urați). Reabsorbția apei Toate segmentele nefronului pot reabsorbi apă, dar în proporții foarte diferite: Tubul contort proximal reabsoarbe 80% din apa filtrată. Reabsorbția este obligatorie: apa este atrasă osmotic din tub în interstițiu, după sărurile, glucoza și ceilalți compuși utili reabsorbiți aici. Tubii contorți distali și mai ales tubii colectori reabsorb 15%, printr-o reabsorbție facultativă pe care o crește ADH (vasopresina). Fără ADH se elimină 20-25 L de urină diluată în 24 de ore, iar cu ADH doar 1,8 L de urină concentrată. Așa se adaptează volumul diurezei la starea de hidratare a organismului. Restul nefronului mai reabsoarbe 4%, astfel că în urina definitivă ajunge cca 1% din apa filtrată. Prima săgeată de apă din desen stă lângă ansa Henle, porțiunea în formă de U care coboară spre medulară și urcă înapoi. Ansa este scurtă la nefronii corticali, care reprezintă 85% din nefroni, și lungă la cei juxtamedulari, extrem de importanți în mecanismul contracurent, prin care rinichiul produce urina concentrată. A doua săgeată stă lângă tubul colector, în dreptul casetei „reabsorbția apei”. Secreția tubulară Secreția completează eliminarea substanțelor acide, toxice sau aflate în exces și a unor medicamente și ajută la reglarea concentrației plasmatice a unor constituenți obișnuiți ($\ce{K+}$, acid uric, creatinină). Mecanismele sunt aceleași ca la reabsorbție, active și pasive, dar sensul transportului este invers, din interstițiul peritubular spre interiorul tubului. Procesele de secreție pot avea loc pe toată lungimea nefronului. Secreția de $\ce{H+}$ este activă și are ca sediu principal tubul contort proximal, deși poate avea loc și în restul nefronului. Prin ea rinichiul participă la reglarea echilibrului acido-bazic. La tubul contort distal, mecanisme de schimb ionic activate de aldosteron reabsorb $\ce{Na+}$ și secretă $\ce{K+}$ sau $\ce{H+}$, în funcție de pH-ul mediului intern. Tot aici are loc mai ales secreția de $\ce{K+}$, prin mecanisme active (schimb ionic) și pasive, prin care rinichiul menține normală potasemia. Secreția de $\ce{NH3}$ are efect antitoxic și permite eliminarea unor protoni în plus fără o acidifiere suplimentară a urinei. Protonii se leagă de amoniac ($\ce{NH3 + H+ -> NH4+}$), iar ionul amoniu rezultat se elimină împreună cu clorul, sub formă de clorură de amoniu. Capilarul peritubular Capilarul de deasupra tubilor face parte din rețeaua capilară peritubulară, rețeaua bogată de capilare din jurul întregului sistem tubular. Ea primește din arteriolele eferente sângele care a trecut deja prin glomerul, iar în desen capilarul pornește chiar din glomerul. Cea mai mare parte a rețelei se află în cortexul renal, de-a lungul tubilor proximali, al tubilor distali și al tubilor colectori corticali, adică pe lângă porțiunile peste care trece capilarul din desen. Drumul urinei finale Lichidul rămas după toate aceste procese trece din tubul colector în calicele mic și ajunge în pelvisul renal ca urină finală. Manualul socotește tubii colectori și calicele mici printre căile urinare, alături de calicele mari, bazinet (pelvis renal), uretere, vezică și uretră. Locul nefronului și al calicelor în rinichi se vede în Figura 98.
- CFuncția de reproducerePaginile 116 - 123
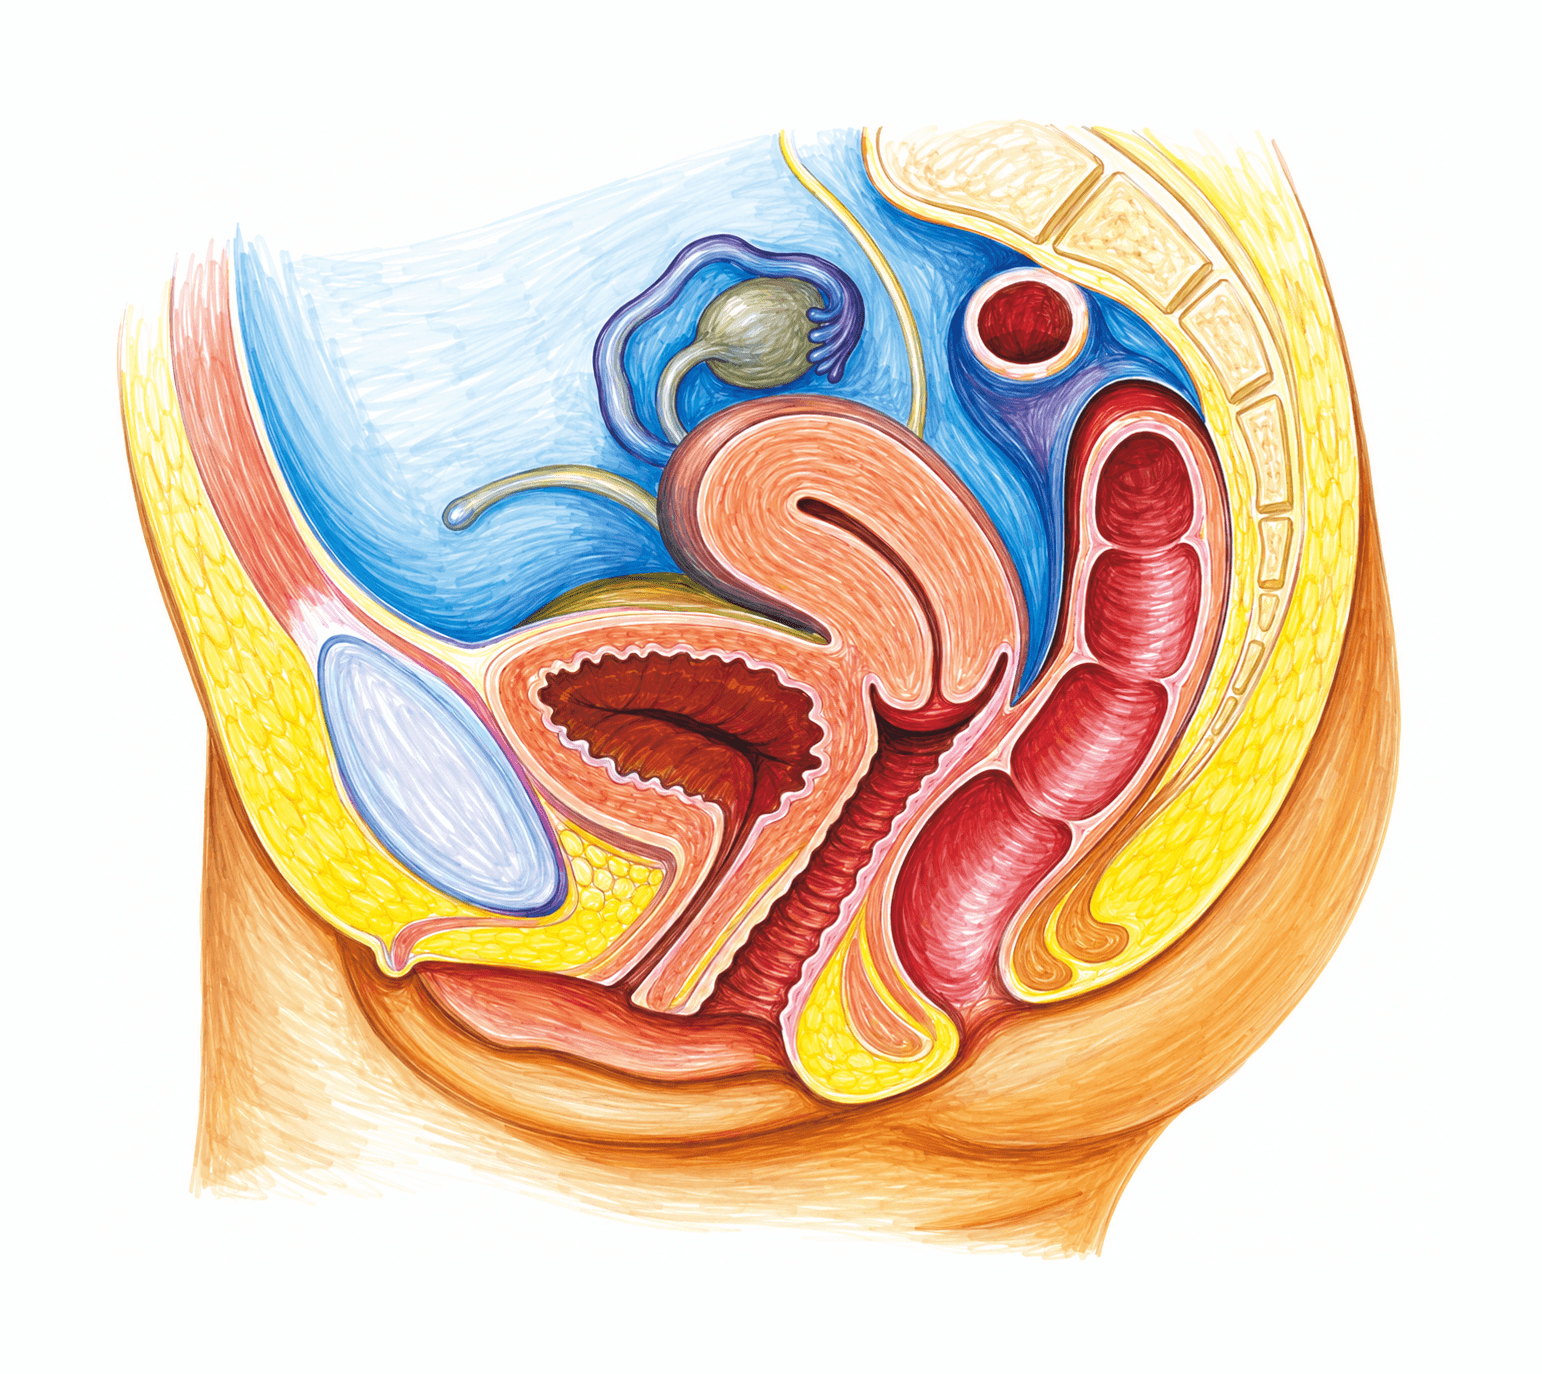
Fig. 101 · Biologie Corint · p. 116
Aparatul genital femininFigura este o secțiune sagitală prin mijlocul bazinului unei femei, privită din lateral. Partea din față a corpului este la stânga, cu simfiza pubiană și vezica urinară, iar partea din spate la dreapta, cu rectul și anusul. Pe desen se recunosc toate cele trei componente din care, după manual, este format aparatul genital feminin: o glandă mixtă, ovarul, căile genitale și organele genitale externe. Cel mai ușor le urmărești de sus în jos, de la ovar, prin trompa uterină, uter și vagin, până la vulvă. Desenul arată și organele vecine, față de care manualul descrie poziția organelor genitale. Ovarul, glanda mixtă Ovarul este un organ pereche, situat în cavitatea pelviană, cu funcție mixtă: exocrină, producând ovulele, și endocrină, secretând hormoni (estrogeni și progesteron). Are forma unui ovoid turtit, cântărește 6-8 g și are diametrul mare de 3-5 cm. Fața lui laterală se află pe peretele lateral al cavității pelviene, în fosa ovariană, iar fața medială este acoperită de pavilionul trompei. În figură, ovarul este ovalul mic din partea de sus, deasupra corpului uterin, înconjurat de trompa uterină. Alcătuirea lui internă, cu foliculii ovarieni, se vede în Figura 105. Căile genitale Căile genitale se întind de lângă ovar până la vulvă: Trompa uterină este desenată, deși nu are număr în legendă: tubul care se arcuiește peste ovar și ajunge la partea de sus a uterului. Trompele sunt conducte musculo-membranoase, lungi de 7-12 cm, întinse de la ovare până la uter, cu care comunică prin orificii numite ostii uterine. Extremitatea lor laterală are un orificiu care se deschide în cavitatea abdominală. Uterul este un organ musculos, cavitar și impar, interpus între trompele uterine și vagin. Are formă de pară, cu extremitatea mare orientată superior, și prezintă corpul și colul uterin, separate de o porțiune mai strâmtă, istmul uterin. În desen, corpul uterului este aplecat înainte, deasupra vezicii urinare, cavitatea lui apare ca o fantă îngustă, iar colul coboară spre vagin. Vaginul este un conduct musculo-conjunctiv, median și impar, lung de 7-9 cm. Prin extremitatea superioară se inseră pe colul uterin, iar prin cea inferioară, orificiul vaginal, se deschide în vestibulul vaginal. În desen coboară oblic, în jos și înainte, între uretră și rect. Porțiunile uterului și straturile peretelui său se văd mai bine pe desenul din față al organului (Figura 102). Organele genitale externe (vulva) Vulva are forma unei fante alungite în sens sagital, mărginită lateral de două repliuri cutanate, labiile mari și mici. Clitorisul este unul dintre organele erectile ale vulvei. Este situat median, are o lungime de 5-6 cm și ocupă partea cea mai anterioară a vulvei, sub simfiza pubiană. Labiile mici sunt două cute simetrice, situate medial de labiile mari. Spațiul mărginit de ele se numește vestibul vaginal. În el se deschid, anterior, uretra, iar posterior, vaginul. Labiile mari sunt acoperite de tegument și prevăzute cu păr și glande sebacee mari. Orificiul vaginal este extremitatea inferioară a vaginului, deschisă în vestibulul vaginal. Organele vecine Simfiza pubiană, în partea cea mai anterioară, este locul în care cele două oase coxale se articulează între ele. Posterior, aceleași oase se articulează cu sacrul, formând bazinul, care protejează organele pelvine. Vezica urinară stă imediat înapoia simfizei, sub corpul uterului. În ea se acumulează urina. Colul ei, în formă de pâlnie, se continuă în jos cu uretra, canalul îngust, fără număr în legendă, care coboară înaintea vaginului până în vestibul. Rectul, ultima porțiune a intestinului gros, coboară înapoia uterului și a vaginului și se termină la anus, deschiderea desenată înapoia orificiului vaginal. Așezarea lor explică formularea manualului: uterul este situat în cavitatea pelviană, între vezica urinară și rect. De la ovulație la nidare Ovulația: în ziua a 14-a a ciclului, foliculul matur se rupe, iar ovulul este expulzat în cavitatea abdominală, de unde este preluat de trompa uterină. Fecundația are loc în trompa uterină, aproape de capătul ei dinspre ovar. Spermatozoizii ajung aici după ce sunt introduși în vagin. În perioada ovulației, mucusul cervical este mai puțin vâscos și le permite trecerea din vagin în uter. Drumul zigotului: zigotul rezultat călătorește spre uter, locul de implantare, și se divide în acest timp. Nidarea: oul se fixează în mucoasa uterină, pregătită de progesteron. Dacă fecundația nu a avut loc, ovulul se elimină în ziua a 19-a, a 20-a a ciclului.
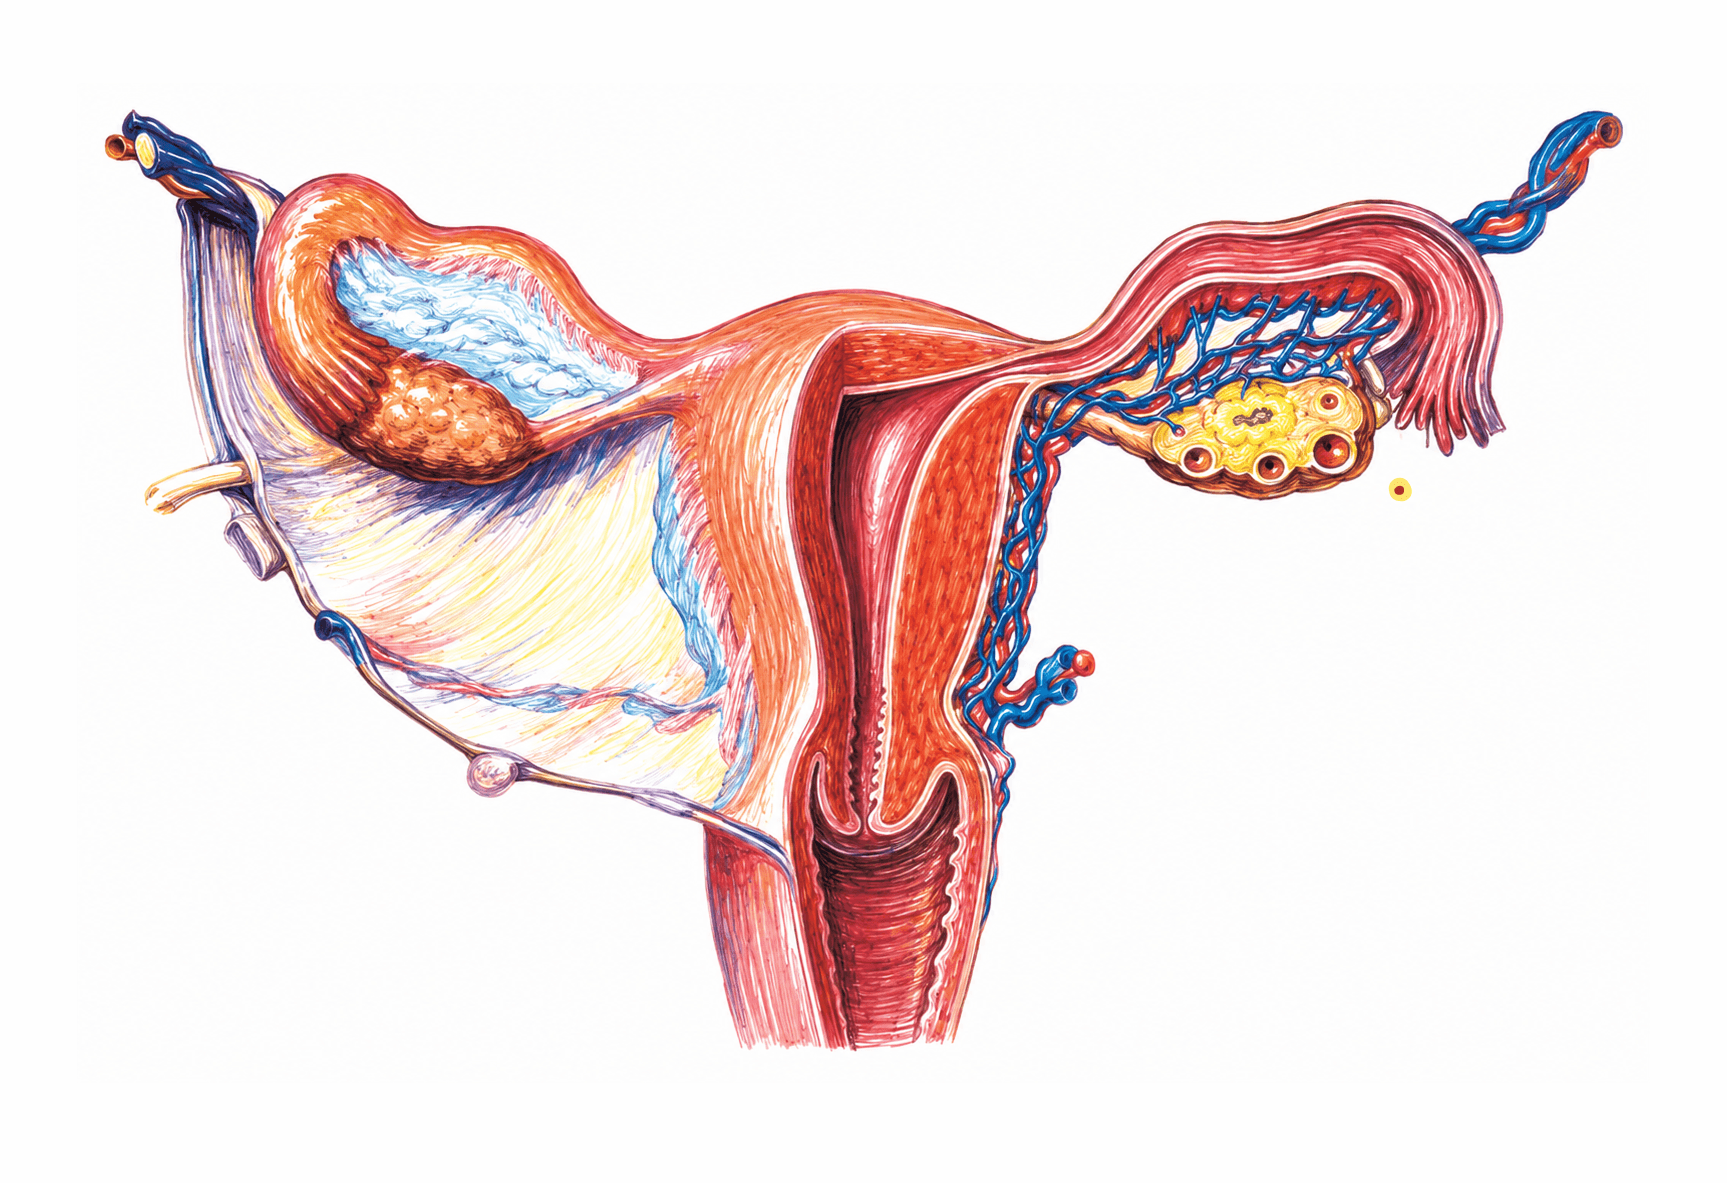
Fig. 102 · Biologie Corint · p. 116
Uterul: porțiunile, straturile peretelui și anexeleFigura arată uterul văzut din față, cu trompele uterine și ovarele de o parte și de alta și cu vaginul dedesubt. Cele două jumătăți ale desenului se citesc diferit. În stânga, trompa este deschisă pe toată lungimea ei, ca să i se vadă interiorul brăzdat de cute, iar ovarul apare întreg, așa cum se vede din afară, sub arcul trompei. Sub ele se întinde o membrană subțire, prinsă de marginea uterului. În dreapta, uterul și ovarul sunt deschise: se văd cavitatea uterină, cele trei tunici ale peretelui și interiorul ovarului, cu foliculii lui. Trompa dreaptă rămâne întreagă și se termină, lângă ovar, cu un capăt răsfirat în franjuri. Lângă acest capăt apare și un punct mic, ovocitul abia eliberat din ovar. Porțiunile uterului Uterul este situat în cavitatea pelviană, între vezica urinară și rect, cum se vede în Figura 101. Este un organ musculos, cavitar și impar, interpus între trompele uterine și vagin. Are formă de pară, cu extremitatea mare orientată superior: conturul lui este larg sus, între trompe, și se îngustează spre vagin. Manualul îi distinge trei porțiuni, de sus în jos: Corpul uterin este porțiunea largă de sus, de ale cărei colțuri superioare se prind cele două trompe. Istmul uterin este porțiunea mai strâmtă dintre corp și col, acolo unde conturul organului se strânge. Colul uterin (cervix) este porțiunea de jos, pe care se inseră vaginul prin extremitatea sa superioară. În desen, capătul colului pătrunde în partea de sus a vaginului. Straturile peretelui Pe jumătatea deschisă, peretele uterului se vede în toată grosimea lui. De la exterior spre interior, manualul descrie trei tunici: Perimetrul este tunica seroasă de la exterior, întâlnită numai la nivelul corpului uterin. În desen, apare ca un înveliș subțire pe conturul peretelui. Miometrul este tunica musculară, formată din musculatură netedă. În desen, este stratul cel mai gros. Endometrul este tunica mucoasă care căptușește cavitatea uterină, fanta îngustă din mijlocul organului. Este considerat stratul funcțional al uterului: el prezintă modificări structurale, se elimină odată cu sângerarea menstruală și se reface în ciclul următor. Trompele uterine și vaginul Împreună cu uterul, trompele și vaginul formează calea genitală. Trompa uterină este un conduct musculo-membranos, lung de 7-12 cm, întins de la ovar până la uter, cu care comunică prin orificii numite ostii uterine. Extremitatea ei laterală conține un orificiu care se deschide în cavitatea abdominală. Vaginul este un conduct musculo-conjunctiv, median și impar, lung de 7-9 cm. Prin extremitatea superioară se inseră pe colul uterin, iar prin cea inferioară (orificiul vaginal) se deschide în vestibulul vaginal. Vasele de sânge desenate de-a lungul uterului nu sunt numerotate. Manualul spune că vascularizația uterului este asigurată de arterele uterine, ramuri din artera iliacă internă, din care se desprind și ramuri pentru vagin, trompe și ovare. Ovarul, foliculii și ovocitul Ovarul este glanda mixtă a aparatului genital feminin: exocrină, pentru că produce ovulele, și endocrină, pentru că secretă hormoni (estrogeni și progesteron). Este un organ pereche, în formă de ovoid turtit, cu fața medială acoperită de pavilionul trompei. În zona corticală a ovarului se află foliculii ovarieni, în diferite faze de evoluție. Ovarul secționat din dreapta îi arată ca mici formațiuni rotunde. Manualul descrie foliculi primordiali, primari, secundari (cavitari) evolutivi și maturi (terțiari, de Graaf). În fiecare lună, de la pubertate până la menopauză, un folicul secundar devine folicul matur, cel mai voluminos, care conține în interior ovocitul. La ovulație, foliculul matur se rupe, iar ovocitul este expulzat în cavitatea abdominală, de unde este preluat de trompa uterină. De aceea desenul îl arată în afara ovarului, lângă capătul trompei. Foliculul rămas se transformă în corp galben, care secretă progesteron și devine în final corp alb, cu țesut cicatricial. Figura 105 mărește ovarul și arată pe larg evoluția foliculilor și ovulația. De la ovar la uter Fecundația are loc în trompa uterină, în apropierea capătului ei dinspre ovar. Zigotul rezultat călătorește spre uter, locul de implantare, unde progesteronul a pregătit mucoasa uterină (endometrul) pentru fixarea oului (nidare). Dacă fecundația nu are loc, secreția corpului galben scade brusc, iar în mucoasa uterină apar modificări vasculare, urmate de necroză și hemoragie, care determină pierderea de sânge menstrual.
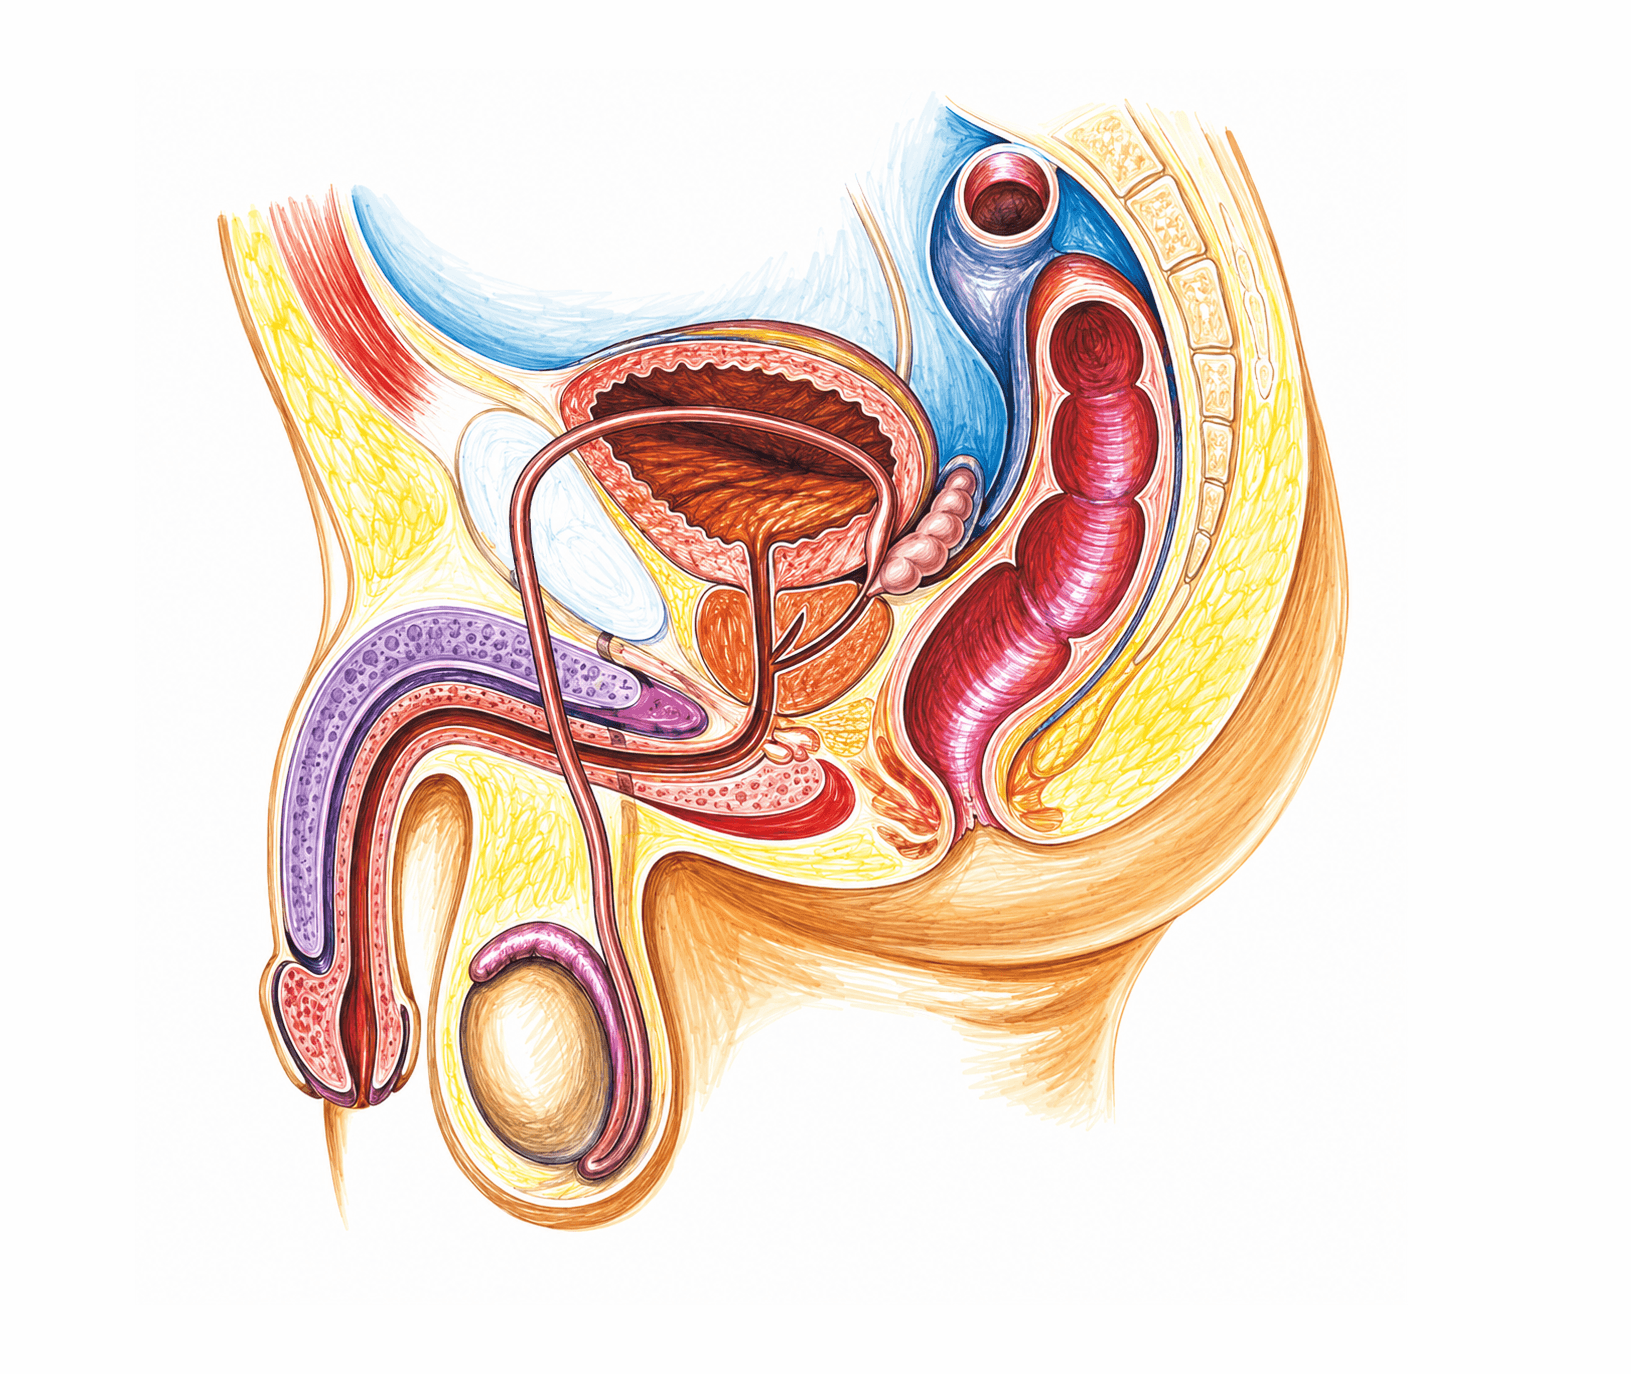
Fig. 103 · Biologie Corint · p. 117
Aparatul genital masculinFigura prezintă aparatul genital masculin într-o secțiune sagitală prin bazin, privită din lateral. Partea din față a corpului este la stânga, cu penisul și scrotul, iar spatele este la dreapta, unde coboară rectul. Manualul spune că aparatul genital masculin este format din testicul, conducte spermatice, prostată, glande bulbo-uretrale și organele genitale externe, iar desenul le arată pe toate. Cel mai ușor îl citești urmărind drumul spermiilor: pornești de la testicul, urci pe canalul deferent până în bazin, cobori spre prostată și ieși prin uretră, de-a lungul penisului. Pe lângă ele, figura marchează trei structuri vecine, care nu fac parte din aparatul genital. Testiculul și epididimul Testiculul este glanda genitală masculină, un organ pereche cu o masă de aproximativ 25 g și forma unui ovoid turtit transversal, situat în bursa scrotală. Îndeplinește două funcții: Spermatogeneza: formarea celulelor sexuale (spermii sau spermatozoizi), care se desfășoară la nivelul tubilor seminiferi contorți. Funcția endocrină: celulele interstițiale ale parenchimului testicular secretă hormonii androgeni (testosteronul). Pe marginea posterioară a testiculului se află epididimul, un organ alungit, în formă de virgulă, care în desen îi acoperă partea de sus și de spate. Face parte din conductele seminale și conține canalul epididimar. Interiorul testiculului, cu lobulii, tubii seminiferi și primele segmente ale căilor spermatice, este arătat în Figura 104. Căile spermatice Căile spermatice sunt conducte de eliminare a spermiilor și a lichidului spermatic. Manualul le împarte în intratesticulare (tubii seminiferi drepți și rețeaua testiculară) și extratesticulare (canalele eferente, canalul epididimar, canalul deferent, canalul ejaculator și uretra). Căile intratesticulare și canalele eferente nu se văd la această scară, dar restul traseului se urmărește pas cu pas: Canalul epididimar se află în epididim, unde spermiile se înmagazinează și își dezvoltă capacitatea de mișcare. Canalul deferent continuă canalul epididimar. În desen urcă din bursa scrotală spre bazin, face o buclă peste vezica urinară și coboară până la baza prostatei. Canalul ejaculator se formează la baza prostatei, acolo unde canalul deferent se unește cu canalul veziculei seminale. Străbate prostata și se deschide în uretră. Uretra pornește din colul vezicii urinare, trece prin prostată și apoi prin penis, până la orificiul extern din vârful glandului. Ea face parte atât din căile spermatice, cât și din căile urinare. Glandele anexe Cele trei glande anexe sunt desenate sub vezica urinară și în spatele ei, iar secrețiile lor se adaugă lichidului spermatic: Vezicula seminală este un organ pereche, situat deasupra prostatei, lateral de canalele deferente. Are formă ovoidală, cu o lungime de 4-5 cm și o lățime de 2 cm. Produsul ei se adaugă lichidului seminal și are rol nutritiv pentru spermatozoizi. Prostata este un organ glandular exocrin, impar, situat în jurul uretrei, sub vezica urinară. Secreția ei participă la formarea spermei și are rolul de a crește fertilitatea și mobilitatea spermatozoizilor. Glandele bulbo-uretrale sunt două formațiuni glandulare ovoide, de dimensiunile unui sâmbure de cireașă, desenate sub prostată. Se deschid în uretră și secretă un lichid clar, vâscos, asemănător cu cel prostatic. Organele genitale externe Penisul este un organ genital și urinar, situat deasupra scrotului, înaintea simfizei pubiene. Are o rădăcină, fixată prin cei doi corpi cavernoși de oasele bazinului, și o porțiune liberă, corpul penisului. Organele lui erectile sunt cei doi corpi cavernoși și un corp spongios, care, umplându-se cu sânge, determină erecția. Glandul este partea mai voluminoasă cu care se termină corpul penisului la extremitatea anterioară. În vârful lui se află orificiul extern al uretrei. Scrotul (bursele scrotale) este punga cutanată în care sunt localizate testiculele. Fiecare bursă este situată sub penis și este formată din mai multe tunici concentrice, care se continuă cu structurile peretelui anterior abdominal. Structurile vecine Te ajută să te orientezi în secțiune: Vezica urinară, desenată deasupra prostatei, este o cavitate cu pereți din musculatură netedă, în care se acumulează urina. Colul ei se continuă în jos cu uretra. Ureterul este un tub muscular neted care pornește din pelvisul rinichiului și coboară până la vezica urinară, ducând urina prin contracții peristaltice. În desen este tubul subțire din partea de sus a figurii, care coboară spre spatele vezicii. Anusul este desenat jos, în partea posterioară a secțiunii, la capătul rectului. Sperma Sperma ejaculată este alcătuită din lichidele provenite din canalele epididimar și deferent, veziculele seminale, glanda prostatică și glandele mucoase, mai ales cele bulbo-uretrale. Spermiile din ea se formează în tubii seminiferi prin spermatogeneză, proces prezentat în Figura 108.
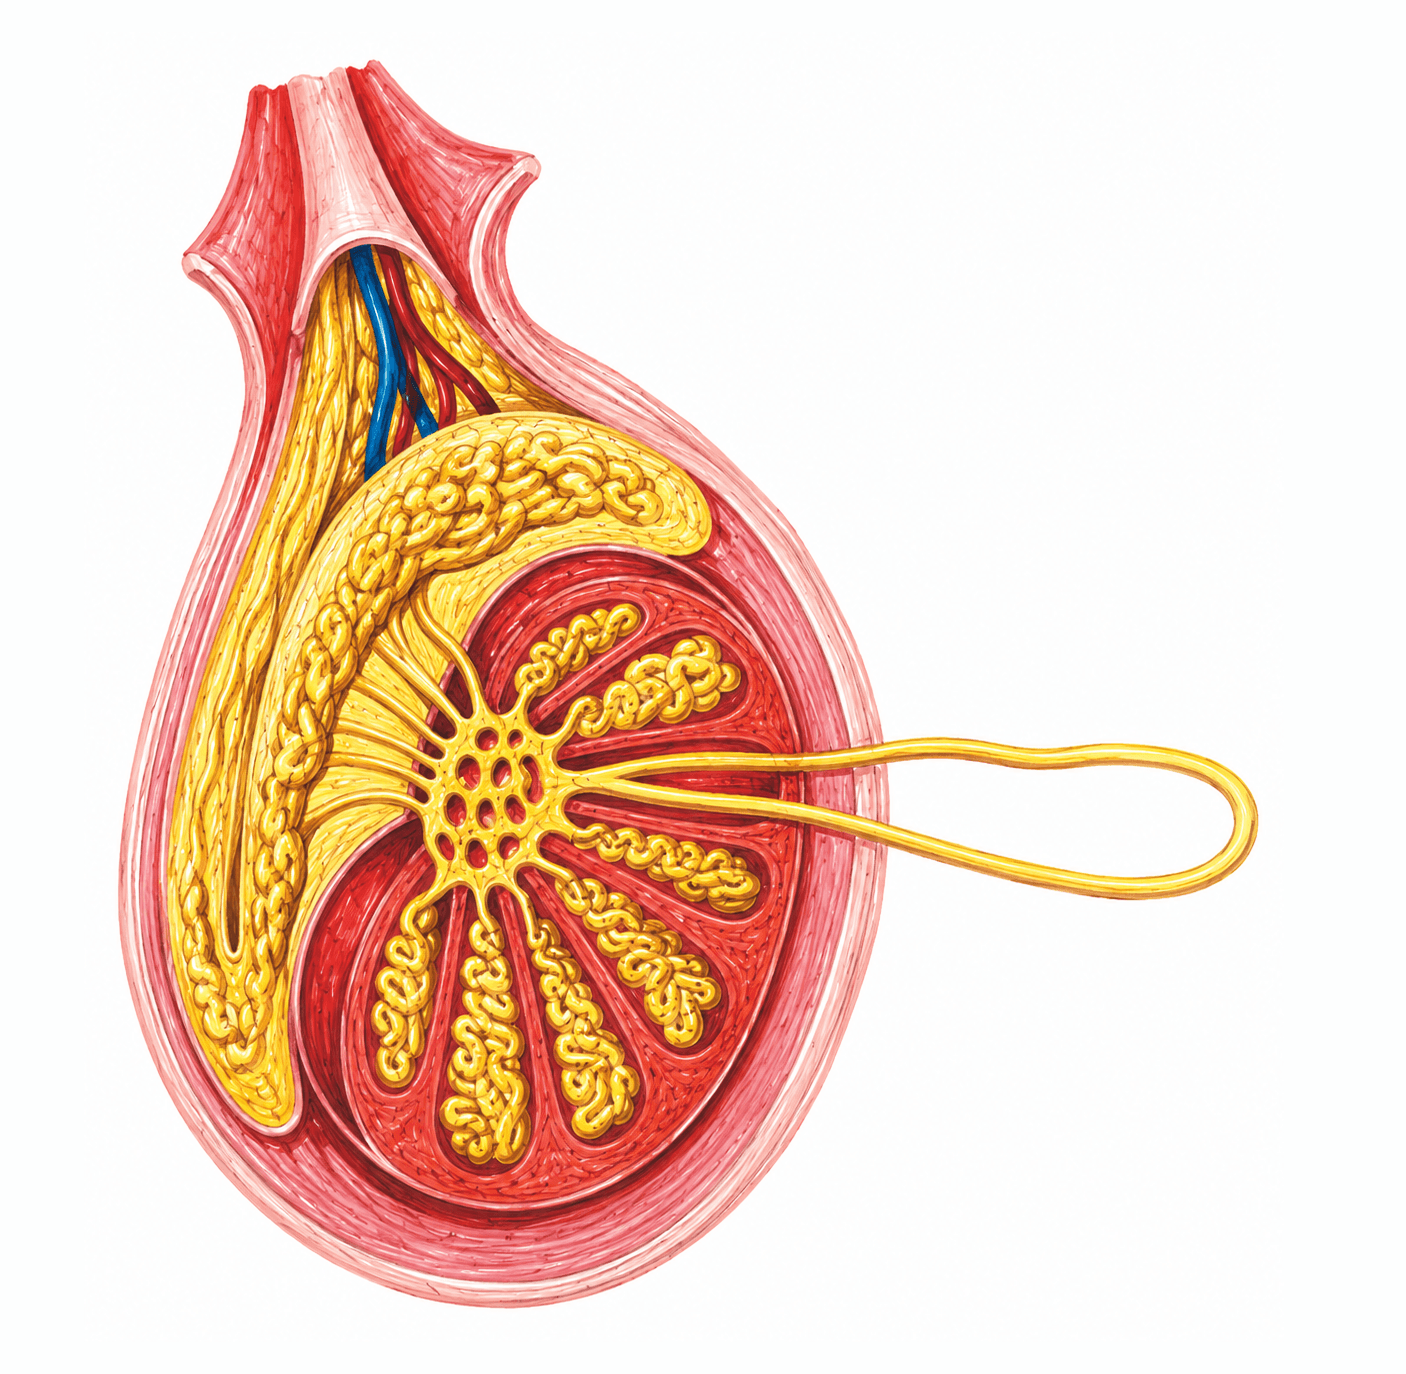
Fig. 104 · Biologie Corint · p. 118
Testiculul în secțiune: lobulii și căile spermaticeFigura arată testiculul în secțiune, împreună cu învelișurile lui, și drumul pe care îl urmează spermiile de la locul în care se formează până în canalul deferent. Tot sistemul de tuburi este desenat cu galben, așa că traseul se poate urmări pe culoare. Epididimul, pe care manualul îl așază pe marginea posterioară a testiculului, este desenat deasupra organului și de-a lungul marginii lui stângi, deci marginea din stânga este cea posterioară. În dreapta, un singur tub seminifer contort a fost scos în afara organului și desenat desfășurat, ca o buclă lungă. Testiculul, o glandă cu două funcții Testiculul este glanda genitală masculină, un organ pereche cu o masă de aproximativ 25 g și forma unui ovoid turtit transversal. Ca și ovarul, este o glandă mixtă: Spermatogeneza, funcția lui exocrină, este formarea celulelor sexuale (spermii sau spermatozoizi). Are loc în tubii seminiferi contorți, începând cu pubertatea. Funcția endocrină este îndeplinită de celulele interstițiale (Leydig) ale parenchimului, care secretă hormonii androgeni, în principal testosteronul. Desenul urmărește prima funcție. Celulele interstițiale nu apar în el. Parenchimul și învelișurile Parenchimul testicular, roșu în desen, este străbătut de septuri conjunctive care îl împart în felii ce converg spre rețeaua testiculară. Aceste felii sunt lobulii testiculului, 250-300 pentru fiecare testicul. Fiecare conține 2-3 tubi seminiferi contorți, ghemurile galbene, în care se desfășoară spermatogeneza. Tubul desfășurat din dreapta arată că aceste ghemuri sunt, de fapt, tuburi lungi, strâns încolăcite. La suprafață, testiculul este învelit de albuginee, membrana conjunctivă de culoare albă-sidefie de la marginea parenchimului. Fiind rezistentă și inextensibilă, ea ține în tensiune parenchimul testicular. Stratul cel mai din afară este bursa scrotală, punga cutanată în care este așezat testiculul. Ea este formată din mai multe tunici concentrice, care se continuă cu structurile peretelui anterior abdominal. Sus, peretele bursei rămâne deschis ca un tub, pe unde ies din desen canalul deferent și vasele de sânge. Drumul spermiilor prin căile spermatice Căile spermatice sunt conductele de eliminare a spermiilor și a lichidului spermatic. Pe desen, drumul pornește din lobuli și merge spre stânga, către epididim: Tubii seminiferi contorți, din lobuli, sunt locul în care se formează spermiile. Căile spermatice încep abia după ei. Tubii seminiferi drepți îi continuă și sunt primul segment al căilor spermatice. În figură nu sunt numerotați, dar îi poți recunoaște în porțiunile scurte și drepte care leagă ghemurile din lobuli de rețeaua testiculară. Rețeaua testiculară, în care se deschid tubii drepți, este rețeaua galbenă, cu ochiuri, din partea stângă a testiculului. Canalele eferente, 10-15, pleacă din rețeaua testiculară și se desfac în evantai până la epididim. Canalul epididimar se află în epididim, organul alungit în formă de virgulă ale cărui bucle acoperă testiculul pe deasupra și coboară pe marginea lui stângă. În epididim, spermiile se înmagazinează și își dezvoltă capacitatea de mișcare. Canalul deferent continuă canalul epididimar și iese din desen prin partea de sus. Tubii drepți și rețeaua testiculară formează căile intratesticulare. Canalele eferente, canalul epididimar și canalul deferent fac parte din căile extratesticulare. Vasele roșii și albastre care urcă alături de canalul deferent nu sunt numerotate. Ele țin de vascularizația testiculului și a epididimului, asigurată de artera testiculară, ramură din aorta abdominală. Venele se varsă în vena cavă inferioară. Mai departe de figură Canalul deferent se termină la baza prostatei, unde se unește cu canalul veziculei seminale și formează canalul ejaculator, care se deschide în uretră. Aceste ultime segmente ale căilor extratesticulare se văd în Figura 103, din care desenul de față mărește testiculul și epididimul. Ce se petrece în interiorul tubului seminifer contort, de la spermatogonie la spermatozoid, arată Figura 108. Spermatogeneza este stimulată de FSH, iar secreția de testosteron este reglată prin feedback negativ, sub influența LH hipofizar (Figura 109).
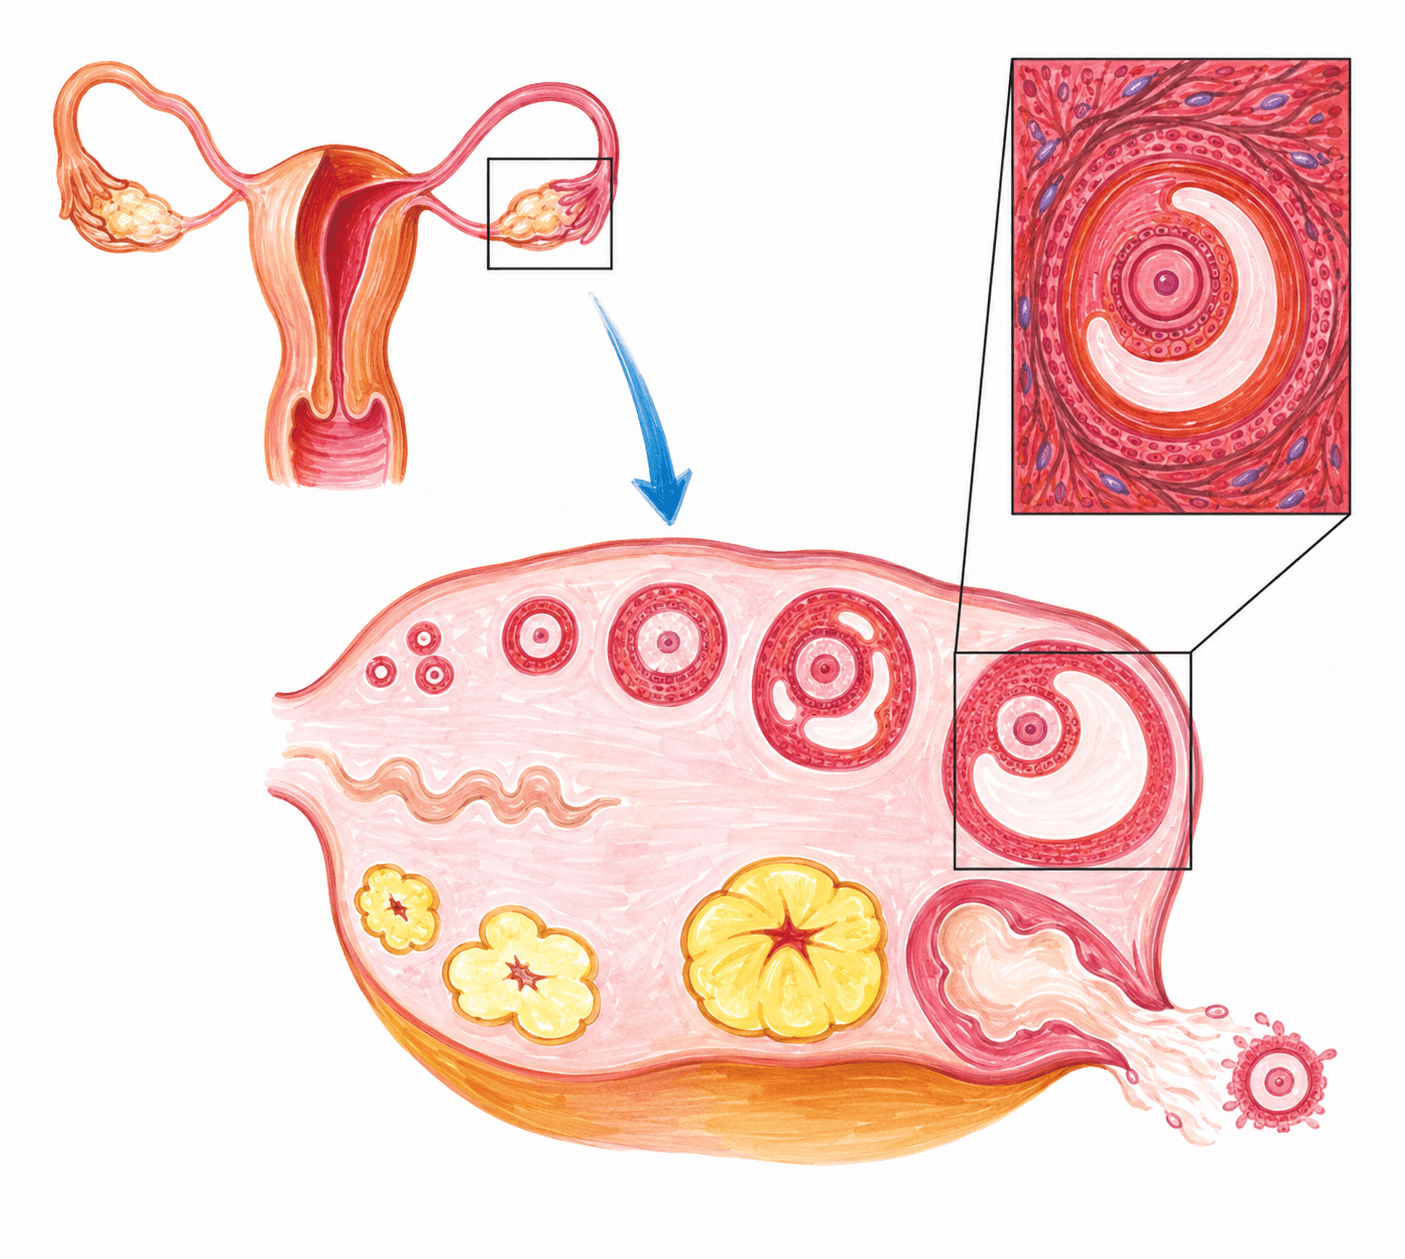
Fig. 105 · Biologie Corint · p. 119
Anatomia ovarului: evoluția foliculilor și ovulațiaFigura prezintă ovarul în secțiune. Ca și testiculul, ovarul este o glandă mixtă: exocrină, pentru că produce ovulele, și endocrină, pentru că secretă hormoni, estrogeni și progesteron. Desenul mic din stânga sus arată uterul cu trompele uterine și cu cele două ovare, ca în Figura 102. Chenarul și săgeata albastră indică ovarul desenat mărit dedesubt, iar imaginea din dreapta sus mărește și mai mult foliculul din chenarul de pe marginea dreaptă a ovarului. Formațiunile din ovar sunt așezate în ordinea în care se succed, așa că desenul se parcurge în sensul acelor de ceasornic: foliculii cresc de-a lungul marginii de sus, de la stânga la dreapta, foliculul matur se rupe în dreapta jos, iar pe marginea de jos, de la dreapta spre stânga, urmează corpul galben și formațiuni galbene tot mai mici. Cum este alcătuit ovarul Ovarul este acoperit de un epiteliu simplu, sub care se află albugineea ovarului, un înveliș conjunctiv. Parenchimul glandular din interior are două zone: zona medulară, cu vase sangvine și limfatice și fibre nervoase vegetative, și zona corticală, în care se află foliculii ovarieni în diferite faze de evoluție. În desen, foliculii și formațiunile galbene ocupă marginea organului, deci zona corticală. Formațiunea ondulată, nenumerotată, care pătrunde dinspre marginea stângă spre mijlocul ovarului reprezintă, cel mai probabil, vase sangvine ale zonei medulare. Evoluția foliculilor Manualul descrie foliculi primordiali, primari, secundari (cavitari) evolutivi și maturi (terțiari, de Graaf). La naștere, fiecare ovar conține câteva sute de mii de foliculi primordiali, dar numai 300-400 dintre ei ajung la maturație, câte unul pe lună, de la pubertate până la menopauză. Creșterea și maturarea foliculului sunt stimulate de FSH. Figura numerotează trei dintre aceste faze: Foliculii primari sunt cei mai mici, desenați ca inele mărunte grupate la capătul din stânga al marginii de sus, fiecare cu ovocitul în centru. Foliculul secundar este mai mare, cu un perete mai gros în jurul ovocitului. Manualul îl numește cavitar, pentru că, pe măsură ce ovulul se maturează, în folicul apare o cavitate care se umple cu lichid folicular. În desen, cavitatea se vede, ca spații albe, abia în foliculul următor, nenumerotat. În fiecare lună, un folicul secundar devine folicul matur. Foliculul de Graaf, foliculul matur, este cel mai voluminos. Cavitatea lui, mare și în formă de semilună, este plină cu lichid folicular, iar ovocitul stă într-o parte a ei, lipit de perete. Pereții foliculului prezintă două teci celulare, una internă și alta externă. În perioada preovulatorie, celulele tecii interne secretă estrogeni și progesteron, secreție stimulată de FSH și LH. Ovocitul și cele două inele din jurul lui În foliculul de Graaf, desenul arată trei cercuri concentrice. În centru se află ovocitul, celula care va deveni ovulul matur. Imediat în jurul lui se vede un prim inel, zona pellucida, iar în afara acestuia un inel exterior, coroana radiata. Aceeași structură apare în imaginea mărită din dreapta sus și la ovulul expulzat din ovar, unde inelul exterior se vede ca o coroană. În perioada preovulatorie, ovocitul trece prin diviziuni ecuaționale și reducționale, de la ovogonia diploidă la ovulul matur, haploid (Figura 106). Ovulația În ziua a 14-a a ciclului, care durează în medie 28 de zile, foliculul matur se rupe, iar ovulul este expulzat în cavitatea abdominală, de unde este preluat de trompa uterină. Ziua a 14-a încheie perioada preovulatorie, iar din ziua a 15-a până în prima zi a menstruației urmează perioada postovulatorie. Momentul ovulației este desenat în dreapta jos: peretele foliculului s-a deschis la suprafața ovarului, conținutul lui se revarsă prin deschizătură, iar ovulul a ieșit deja din organ. Ovulația este stimulată de LH. Cu 24-48 de ore înainte, hipofiza anterioară începe să secrete cantități mult crescute de LH, iar fără acest vârf preovulator ovulația nu poate avea loc. Corpul galben După ovulație, foliculul se transformă în corp galben, cea mai mare formațiune galbenă de pe marginea de jos. În a doua fază a ciclului, el îndeplinește rolul de secreție internă al ovarului: secretă atât estrogeni, cât și progesteron, un hormon care favorizează păstrarea sarcinii. Formarea corpului galben este stimulată de LH, iar secreția lui de LH și prolactină. Dacă ovulul nu a fost fecundat, corpul galben involuează după 10 zile și se transformă în corp alb, care are țesut cicatricial. Cele două formațiuni galbene mai mici din stânga jos, nenumerotate, par să arate tocmai această involuție. Dacă ovulul a fost fecundat, activitatea corpului galben se prelungește cu încă trei luni. Reglarea secreției ovariene Secreția ovariană este reglată, ca a altor glande periferice, prin feedback negativ hipotalamo-hipofizo-ovarian, schematizat în Figura 107.
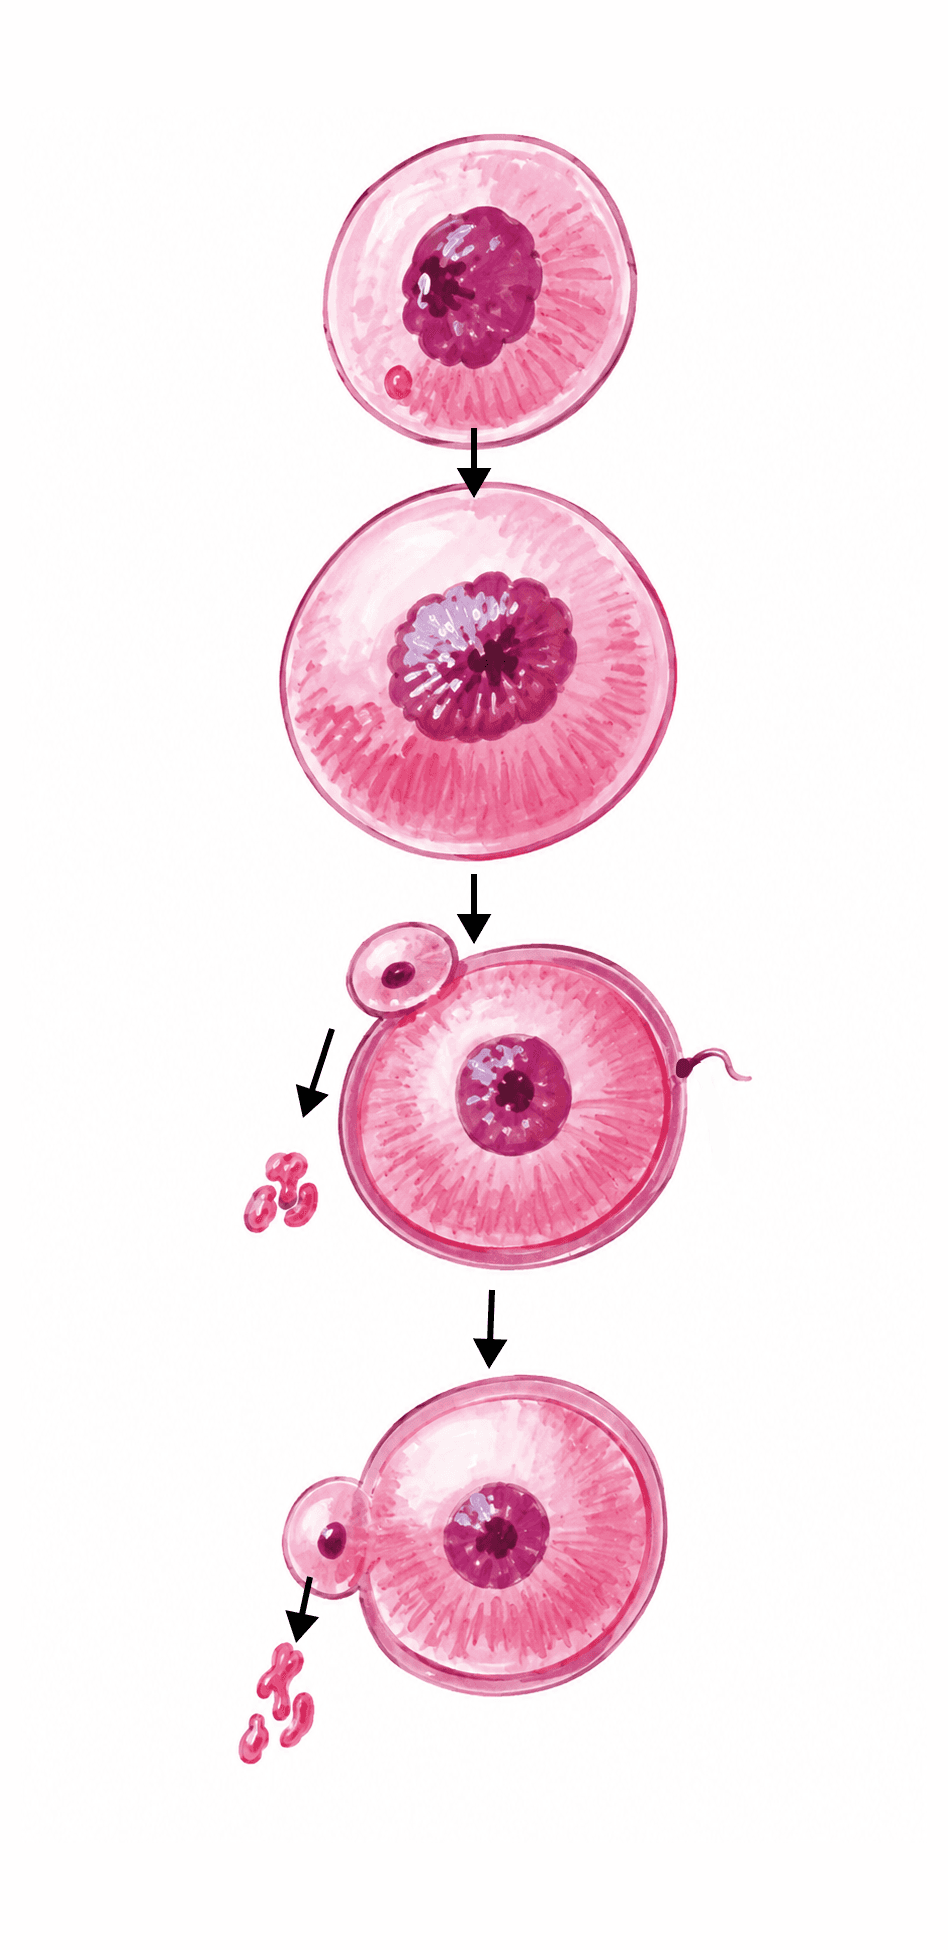
Fig. 106 · Biologie Corint · p. 119
Ovogeneza: de la ovogonie la zigotFigura arată ovogeneza, adică formarea gametului feminin. Ea ține de funcția exocrină a ovarului, care, ca și testiculul, este o glandă mixtă: exocrină, asigurând formarea gameților, și endocrină, prin secreția hormonilor sexuali. Celulele sunt așezate într-o singură coloană, care se citește de sus în jos, în sensul săgeților. Cele trei săgeți verticale sunt cele trei diviziuni, notate I, II și III, iar între ele stau celulele rezultate, de la ovogonie până la zigot. Manualul rezumă procesul astfel: ovocitul străbate mai multe etape, de la ovogonie, diploidă, la ovulul matur, haploid. În perioada preovulatorie a ciclului ovarian, din ziua 1 până în ziua a 14-a, au loc diviziuni ecuaționale și reducționale la nivelul ovocitului. Figura continuă și după acest punct: arată întâlnirea cu spermatozoidul și formarea zigotului. I. Diviziunea mitotică Din ovogonie, celula din vârful coloanei, rezultă ovocitul primar (de ordinul I). Pe desen, ovocitul primar este vizibil mai mare decât ovogonia, fiind cea mai mare celulă din figură, iar legenda le arată pe amândouă diploide. Din această diviziune nu se desprinde nicio celulă mică. II. Diviziunea meiotică Ovocitul primar se împarte în două celule foarte inegale ca mărime: ovocitul secundar (de ordinul II), celula mare, acum haploidă, primul globul polar, o celulă mică lipită de marginea din stânga sus a ovocitului secundar. Săgeata oblică arată ce se întâmplă cu el: degenerează, iar la capătul săgeții nu mai rămân decât câteva fragmente. Întâlnirea cu spermatozoidul În dreapta ovocitului secundar este desenat, foarte mic, spermatozoidul, lipit de marginea celulei. Fiind celula haploidă pe care o întâlnește spermatozoidul, ovocitul secundar corespunde celulei pe care textul o numește „ovul”. În ziua a 14-a a ciclului, foliculul ovarian se rupe, iar ovulul este expulzat în cavitatea abdominală (ovulația), de unde este preluat de trompa uterină. Fecundația este internă și are loc în trompa uterină, în apropierea capătului ei dinspre ovar. Pentru fecundarea ovulului este necesar un singur spermatozoid. Odată pătruns în ovul, capul spermatozoidului își mărește rapid volumul și formează pronucleul masculin. Atât spermatozoidul, cât și ovulul au câte 23 de cromozomi: 22 de autozomi și un heterozom (cromozomul sexului), care la spermatozoid poate fi X sau Y, iar la ovul numai X. III. A doua diviziune mitotică Ultima săgeată duce la zigot, celula mare de la baza coloanei. Lângă el, lipit de marginea din stânga, se află al doilea globul polar, pe care o săgeată oblică îl duce, ca pe primul, spre câteva fragmente: și el degenerează. În ovulul fecundat, cei 23 de cromozomi ai pronucleului masculin și cei 23 ai pronucleului feminin se aliniază și refac un set complet de 46 de cromozomi (23 de perechi). Zigotul are astfel 44 de autozomi și doi heterozomi. Sexul copilului este determinat de tipul de spermatozoid care fecundează ovulul: dacă ambii heterozomi sunt X, copilul va fi fată, iar dacă unul este X și celălalt Y, copilul va fi băiat. Pe scurt Din toată coloana, o singură celulă ajunge până la capăt, zigotul, iar celulele mici desprinse la a doua și la a treia diviziune, globulii polari, degenerează. În spermatogeneză (Figura 108), aceleași trei diviziuni se încheie cu patru spermatide, iar fiecare devine spermatozoid. Până la ovulație, ovocitul se află în interiorul foliculului ovarian, iar pe măsură ce se maturează, în folicul apare o cavitate care se umple cu lichid folicular (Figura 105). După fecundare, zigotul călătorește spre uter, locul de implantare, și în același timp se divide, căpătând aspectul de embrion.
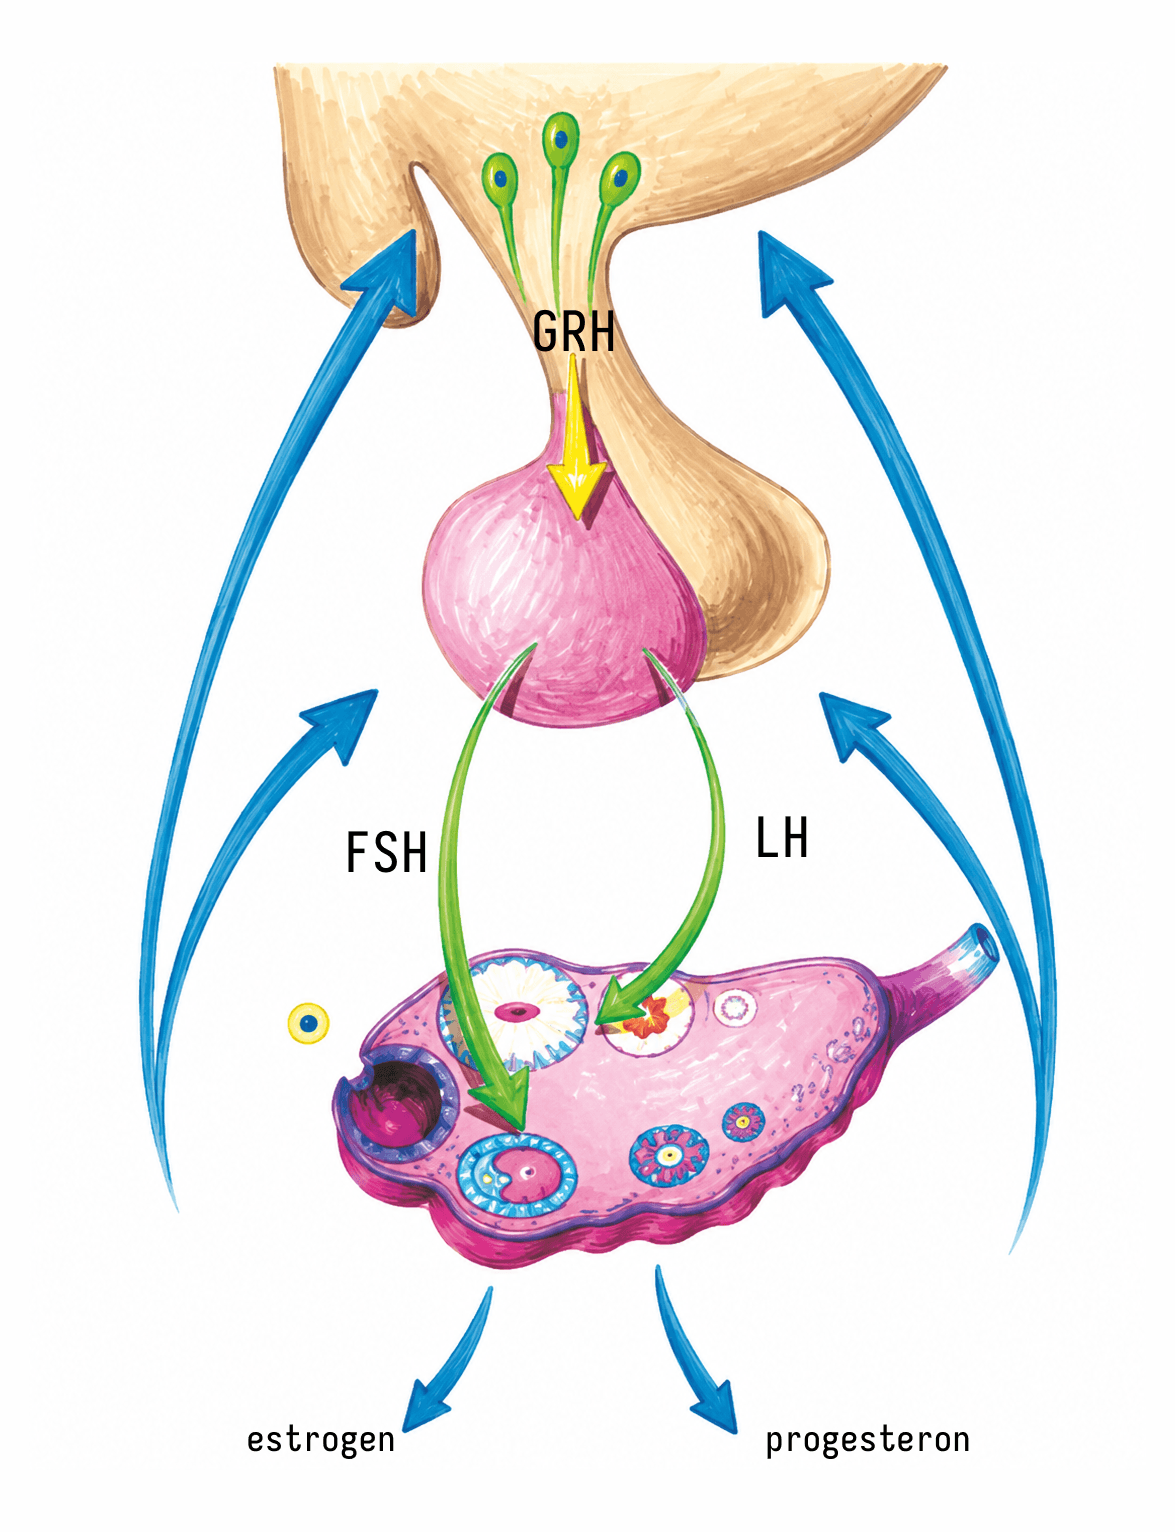
Fig. 107 · Biologie Corint · p. 120
Reglarea secreției ovariene: axul hipotalamo-hipofizo-ovarianFigura așază unul sub altul cele trei etaje ale reglării: hipotalamusul sus, adenohipofiza la mijloc și ovarul jos. Săgețile se citesc după culoare. Săgeata galbenă și cele două verzi coboară și duc comanda de la un etaj la altul. Cele două săgeți albastre de sub ovar, notate estrogen și progesteron, sunt hormonii secretați de ovar, iar săgețile albastre mari și curbate, care urcă de o parte și de alta a desenului, duc semnalul înapoi în sus. Manualul rezumă totul într-o propoziție: reglarea secreției ovariene se face la fel ca a altor glande periferice, prin feedback negativ hipotalamo-hipofizo-ovarian. Comanda, de sus în jos Hipotalamusul: unii neuroni hipotalamici au și activitate secretorie (neurosecreție), iar prin produșii de neurosecreție și prin legăturile vasculare și nervoase cu hipofiza, hipotalamusul îi controlează și îi reglează secreția. În partea lui de jos sunt desenați trei neuroni, iar sub ei pornește săgeata galbenă notată GRH. Adenohipofiza este globul roz. Hipofiza este legată de hipotalamus prin tija pituitară, porțiunea îngustă de deasupra ei, iar lobul bej din dreapta globului, nenumerotat, este neurohipofiza, care pune în circulație alți hormoni, vasopresina și oxitocina. Adenohipofiza secretă hormonii gonadotropi (gonadostimulinele), care controlează funcția gonadelor: hormonul foliculostimulant (FSH), săgeata verde din stânga, și hormonul luteinizant (LH), cea din dreapta. Ovarul este glanda periferică asupra căreia acționează cei doi hormoni. La femeie, FSH determină creșterea și maturarea foliculului de Graaf și secreția de estrogeni, iar LH determină ovulația și apariția corpului galben, a cărui secreție de progesteron și estrogeni o stimulează. Ce se vede pe ovar Ovarul, gonada feminină, este o glandă mixtă: exocrină, pentru că produce ovulele, și endocrină, pentru că secretă estrogeni și progesteron. Cercurile mai mici răspândite pe el sunt foliculi ovarieni în diferite faze de evoluție. În partea de sus se află corpul galben, cea mai mare formațiune rotundă, cu aspect radiar. Nu îl confunda cu corpul mai mic, cu centrul roșu, din dreapta lui, pe care figura nu îl numește. Pe marginea stângă a ovarului se vede o deschidere, iar alături, în afara lui, ovocitul. Desenul surprinde astfel ovulația: în ziua a 14-a a ciclului, foliculul matur se rupe și ovulul este expulzat în cavitatea abdominală, de unde îl preia trompa uterină. După eliminarea ovocitului, foliculul se transformă în corp galben. Răspunsul ovarului: estrogenii și progesteronul Cei doi hormoni de pe săgețile albastre de sub ovar sunt hormonii sexuali feminini. Ciclul durează în medie 28 de zile, iar cine îi secretă depinde de perioada lui: În perioada preovulatorie (din ziua 1 până în ziua a 14-a) îi secretă celulele tecii interne a foliculului, sub stimularea FSH și LH. În perioada postovulatorie (din ziua a 15-a până în prima zi a menstruației) rolul de secreție internă îl preia corpul galben, care secretă atât estrogeni, cât și progesteron, sub stimularea LH și a prolactinei. Estrogenii stimulează dezvoltarea organelor genitale feminine, a mucoasei uterine și a glandelor mamare, apariția și dezvoltarea caracterelor sexuale secundare la femeie, precum și comportamentul sexual feminin. Progesteronul produce modificări histologice și secretorii ale mucoasei uterine, pe care o pregătește pentru fixarea oului (nidare), și favorizează păstrarea sarcinii. Bucla de feedback Săgețile albastre mari închid bucla. Două urcă pe margini până la hipotalamus, iar două, mai scurte, se opresc în dreptul adenohipofizei: hormonii ovarieni, eliberați în sânge, se întorc la ambele etaje de comandă. Fiind un feedback negativ, cu cât ovarul secretă mai mult, cu atât comanda venită de sus slăbește, iar secreția se menține între anumite limite. Vârful preovulator de LH Timp de 1-2 zile, începând cu 24-48 de ore înainte de ovulație, hipofiza anterioară secretă cantități mult crescute de LH, fenomen însoțit și de un vârf preovulator mic al FSH. Cauza acestei creșteri bruște este insuficient cunoscută, iar manualul dă două explicații posibile: Feedback-ul pozitiv al estrogenului: în acest moment al ciclului, estrogenul stimulează secreția de gonadotropine, în contradicție cu efectul său normal de feedback negativ din restul ciclului. Progesteronul secretat de foliculi: cu aproximativ o zi înaintea vârfului de LH, anumite celule foliculare încep să secrete progesteron în cantități mici, dar în creștere, și s-a presupus că acesta ar putea stimula secreția excesivă de LH. Indiferent de cauză, fără acest vârf preovulator de LH ovulația nu poate avea loc. Unde se leagă de restul manualului Foliculii, ovulația și corpul galben sunt desenați pe larg în Figura 105. Legăturile dintre hipotalamus și hipofiză, doar sugerate aici de săgeata galbenă, sunt detaliate în Figura 58. La bărbat, același lanț cu trei etaje apare în Figura 109, cu testiculul în locul ovarului.
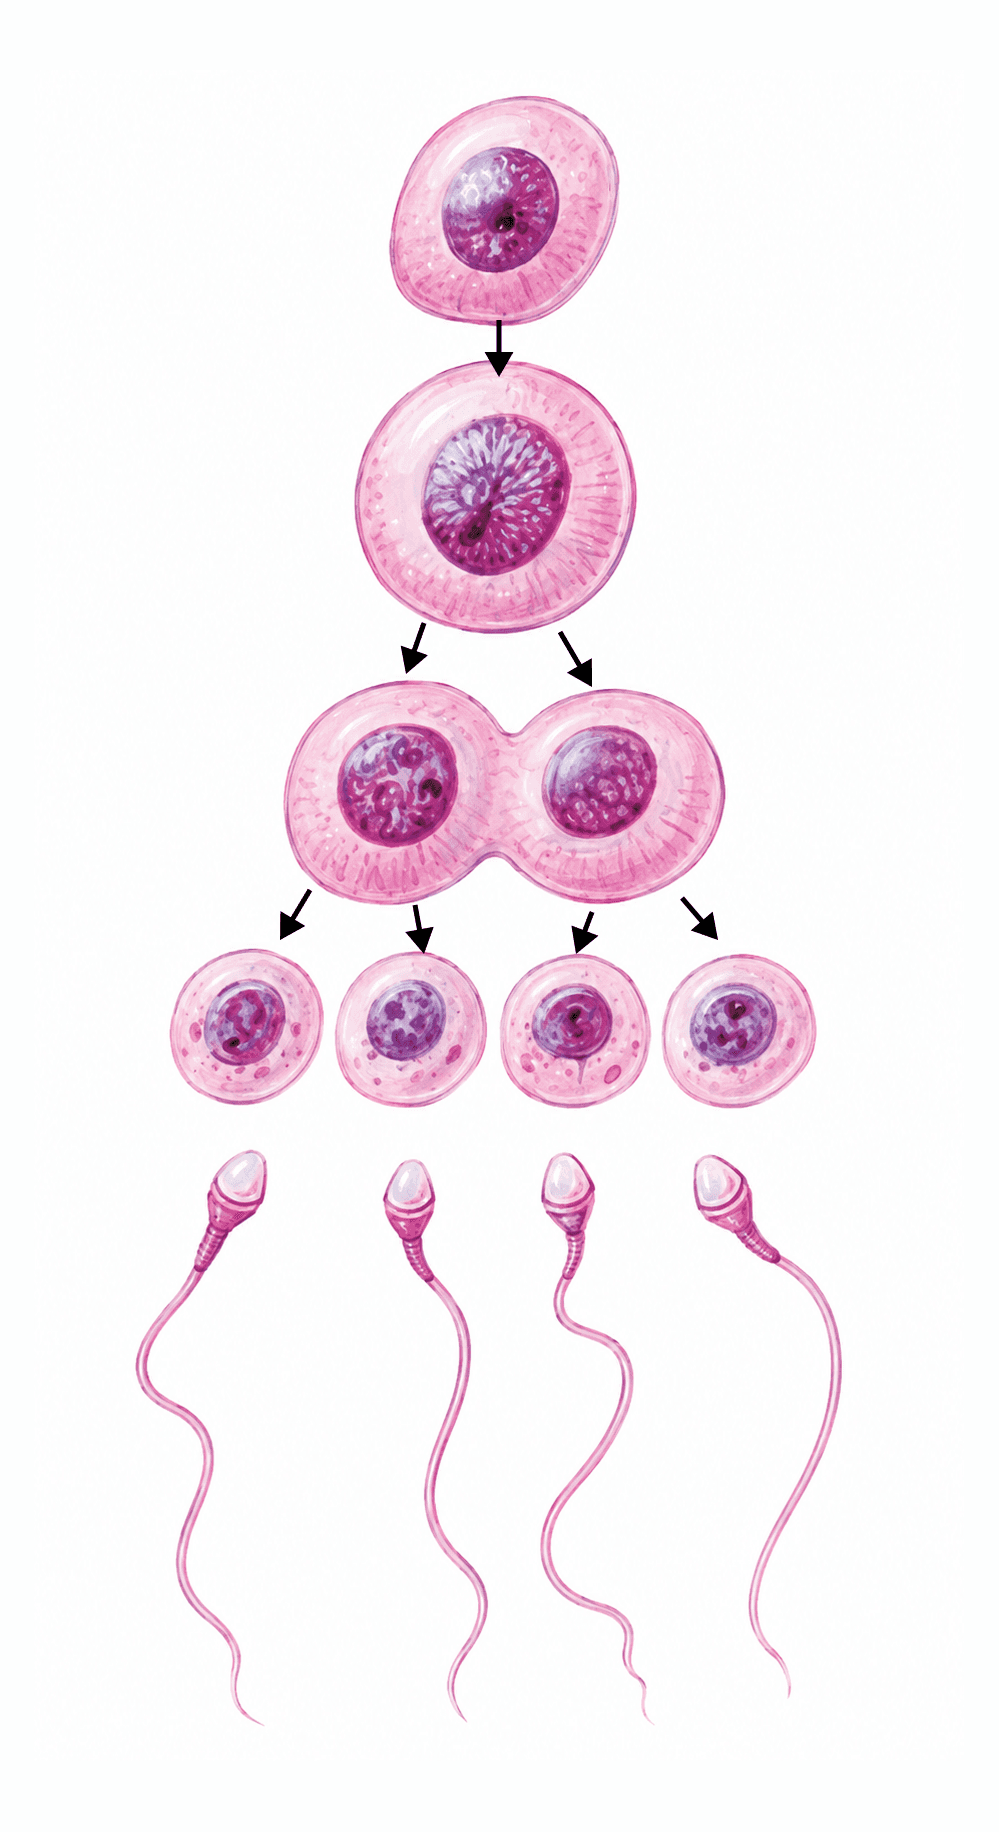
Fig. 108 · Biologie Corint · p. 121
Spermatogeneza: de la spermatogonie la spermatozoidFigura urmărește spermatogeneza, formarea celulelor sexuale masculine, pe o singură coloană care se citește de sus în jos. Fiecare săgeată înseamnă o diviziune: pornești de la o singură celulă din vârf și, după trei diviziuni, ajungi la patru celule mici, fiecare cu câte un spermatozoid desenat dedesubt. Urmărește și mărimea celulelor: după prima diviziune rezultă o celulă mai mare, apoi fiecare diviziune dublează numărul celulelor și le micșorează. Pe primul spermatozoid din stânga poți recunoaște și părțile lui. Spermatogeneza este funcția exocrină a testiculului. Se desfășoară în tubii seminiferi contorți, din care sunt alcătuiți lobulii testiculului (Figura 104), și începe la pubertate. Manualul o descrie ca pe o serie de etape de diviziune ecuațională și apoi reducțională, care pornește de la celulele primordiale, spermatogoniile, diploide, și ajunge la celulele mature, gameții masculini, adică spermiile (spermatozoizii), haploide. Spermatogeneza este stimulată de FSH, hormon al adenohipofizei care acționează asupra testiculului (Figura 109). Testosteronul, secretat de celulele interstițiale Leydig, are și rolul de a menține tonusul epiteliului spermatogenic. I. Diviziunea mitotică În vârful coloanei se află spermatogonia, celula primordială, diploidă. Prin diviziunea mitotică, ea dă naștere spermatocitului primar (de ordinul I), tot diploid. Săgeata este una singură și duce la o singură celulă, desenată mai mare decât spermatogonia: spermatocitul primar este cea mai mare celulă din toată coloana. II. Diviziunea meiotică Spermatocitul primar se împarte în două spermatocite secundare (de ordinul II). Cele două săgeți care pleacă din aceeași celulă duc la două celule fiice egale, desenate lipite una de alta. Aici are loc singura trecere de la diploid la haploid din toată figura: spermatocitul primar este încă diploid, dar spermatocitele secundare sunt deja haploide. III. A doua diviziune mitotică Fiecare spermatocit secundar se împarte la rândul lui, așa că cele patru săgeți duc la patru spermatide, mai mici, toate haploide. Din celule haploide rezultă tot celule haploide, iar numărul celulelor se dublează încă o dată. De la spermatidă la spermatozoid Sub fiecare spermatidă este desenat câte un spermatozoid. Între aceste două rânduri nu mai apare nicio săgeată, iar numărul rămâne patru, deci fiecare spermatidă devine un spermatozoid, celula matură a procesului, haploidă. Fiecare spermie are 23 de cromozomi, din care 22 de autozomi și un heterozom (cromozomul sexului), care poate fi X sau Y. Părțile spermatozoidului Capul este partea din față a spermatozoidului, mică și rotunjită. La fecundație, după ce spermatozoidul pătrunde în ovul, capul își mărește rapid volumul și formează pronucleul masculin. Acrozomul ocupă vârful capului și îl acoperă în partea din față ca o calotă. Piesa intermediară (gâtul) este segmentul scurt și mai gros de imediat sub cap, care leagă capul de coadă. Flagelul este prelungirea lungă și ondulată care formează coada și ocupă cea mai mare parte din lungimea celulei. Piesa terminală este capătul cozii, porțiunea cea mai subțire, cu care se încheie flagelul. Comparație cu ovogeneza Ovogeneza (Figura 106) trece prin aceleași trei diviziuni, cu aceleași nume, dar se încheie altfel. La spermatogeneză, diviziunile dau celule egale și toate cele patru ajung spermatozoizi. La ovogeneză rămâne o singură celulă mare, iar globulii polari degenerează. După spermatogeneză Spermiile se înmagazinează în epididim, unde își dezvoltă capacitatea de mișcare, apoi trec în ductul deferent. Își mențin fertilitatea aproximativ o lună și sunt eliminate prin ejaculare. Pentru fecundarea ovulului este necesar un singur spermatozoid, iar tipul lui determină sexul copilului. Ovulul are întotdeauna heterozomul X, așa că zigotul va avea fie doi heterozomi X (fată), fie un X și un Y (băiat).
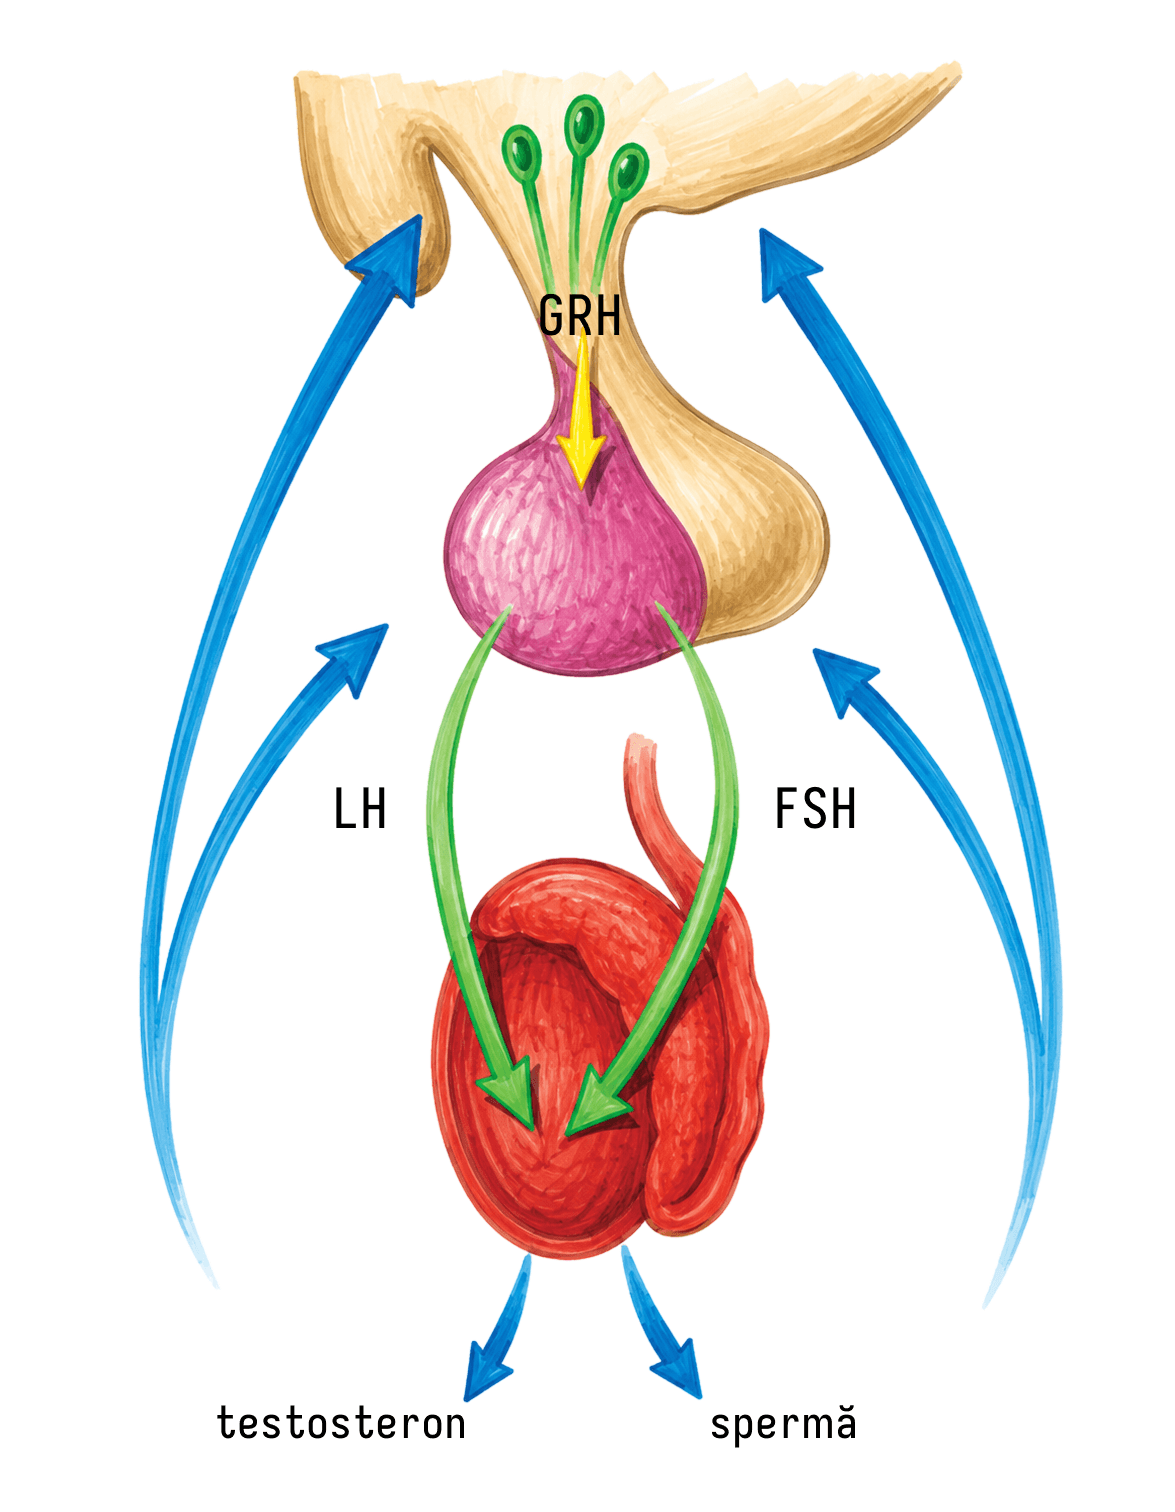
Fig. 109 · Biologie Corint · p. 122
Reglarea secreției de testosteronFigura arată cum este reglată secreția de testosteron și așază unul sub altul cele trei etaje ale acestei reglări: hipotalamusul sus, adenohipofiza la mijloc și testiculul jos. Culorile săgeților îți spun de unde pleacă fiecare semnal: săgeata galbenă vine de la hipotalamus, cele două săgeți verzi sunt hormonii adenohipofizei, iar săgețile albastre pleacă de la nivelul testiculului. Citește schema de sus în jos, pe săgețile care coboară spre testicul, apoi înapoi în sus, pe săgețile albastre mari de pe margini, care închid cercul. Manualul rezumă mecanismul într-o singură frază: reglarea secreției de testosteron se face printr-un mecanism de feedback negativ, sub influența LH hipofizar. Comanda, de sus în jos Hipotalamusul este un centru superior de integrare, reglare și coordonare a principalelor funcții ale organismului, printre care și secreția endocrină. În partea lui de jos sunt desenați trei neuroni, iar manualul arată că unii neuroni hipotalamici au și activitate secretorie, proces numit neurosecreție. Prin produșii de neurosecreție și prin legăturile vasculare și nervoase cu hipofiza, desenate în Figura 58, hipotalamusul controlează și reglează secreția hipofizei. În figură, această comandă este săgeata galbenă notată GRH, care pornește de sub neuroni și coboară în adenohipofiză. Adenohipofiza, formată din lobul anterior și cel intermediar al hipofizei, răspunde secretând doi hormoni gonadotropi, desenați ca săgeți verzi care coboară spre testicul. Ei fac parte dintre hormonii glandulotropi, care au ca organ-țintă o altă glandă endocrină, și controlează funcția gonadelor. Testiculul este glanda periferică a lanțului, ținta celor doi hormoni gonadotropi. La bărbat, fiecare dintre cei doi hormoni are propriul efect asupra testiculului: LH (hormonul luteinizant), săgeata din stânga, stimulează secreția de androgeni de către celulele interstițiale testiculare Leydig. De aceea secreția de testosteron se reglează sub influența LH hipofizar. FSH (hormonul foliculostimulant), săgeata din dreapta, stimulează dezvoltarea tubilor seminiferi și spermatogeneza. Ce produce testiculul Din testicul pleacă în jos două săgeți albastre, notate testosteron și spermă. Ele corespund celor două funcții ale testiculului, care, ca și ovarul, este o glandă mixtă: exocrină, prin formarea gameților, și endocrină, prin secreția hormonilor sexuali. Funcția exocrină este funcția spermatogenetică. Ea are loc în tubii seminiferi contorți, începând cu pubertatea, și formează gameții masculini, spermiile (spermatozoizii), ale căror etape de formare sunt desenate în Figura 108. Sperma ejaculată nu provine însă doar din testicul: ea este alcătuită din lichidele venite din canalele epididimar și deferent, prin care trec spermatozoizii, din veziculele seminale, din prostată și din glandele mucoase, mai ales cele bulbo-uretrale. Funcția endocrină este asigurată de celulele interstițiale testiculare Leydig, care secretă hormonii androgeni, al căror reprezentant principal este testosteronul. Testiculul secretă și un procent redus de estrogeni. Testosteronul este un hormon lipidic, cu structură sterolică. El stimulează creșterea organelor genitale masculine și apariția caracterelor sexuale secundare la bărbat: dezvoltarea scheletului și a mușchilor, modul de dispunere a părului, vocea, repartiția topografică a grăsimii de rezervă. Este și un puternic anabolizant proteic, iar asupra testiculului însuși are efecte de menținere a tonusului epiteliului spermatogenic. Bucla de feedback Cele patru săgeți albastre mari pornesc de jos, de la nivelul testiculului, și urcă pe lângă marginile desenului: cele două exterioare ajung la hipotalamus, iar cele două interioare, la adenohipofiză. Ele închid cercul: testosteronul, eliberat în sânge ca orice hormon, se întoarce la cele două etaje de comandă și le frânează secreția. Fiind un feedback negativ, cu cât testiculul produce mai mult testosteron, cu atât comanda venită de sus slăbește, iar nivelul hormonului se menține astfel între anumite limite. La femeie, secreția ovariană este reglată în același fel, prin feedback negativ hipotalamo-hipofizo-ovarian, într-un lanț cu trei etaje desenat asemănător în Figura 107. Testosteronul și pubertatea Activitatea testiculului devine evidentă la pubertate, iar instalarea pubertății este consecința modificărilor din secreția hormonilor gonadotropi. Hipersecreția de testosteron duce la pubertate precoce, iar hiposecreția, la infantilism genital.
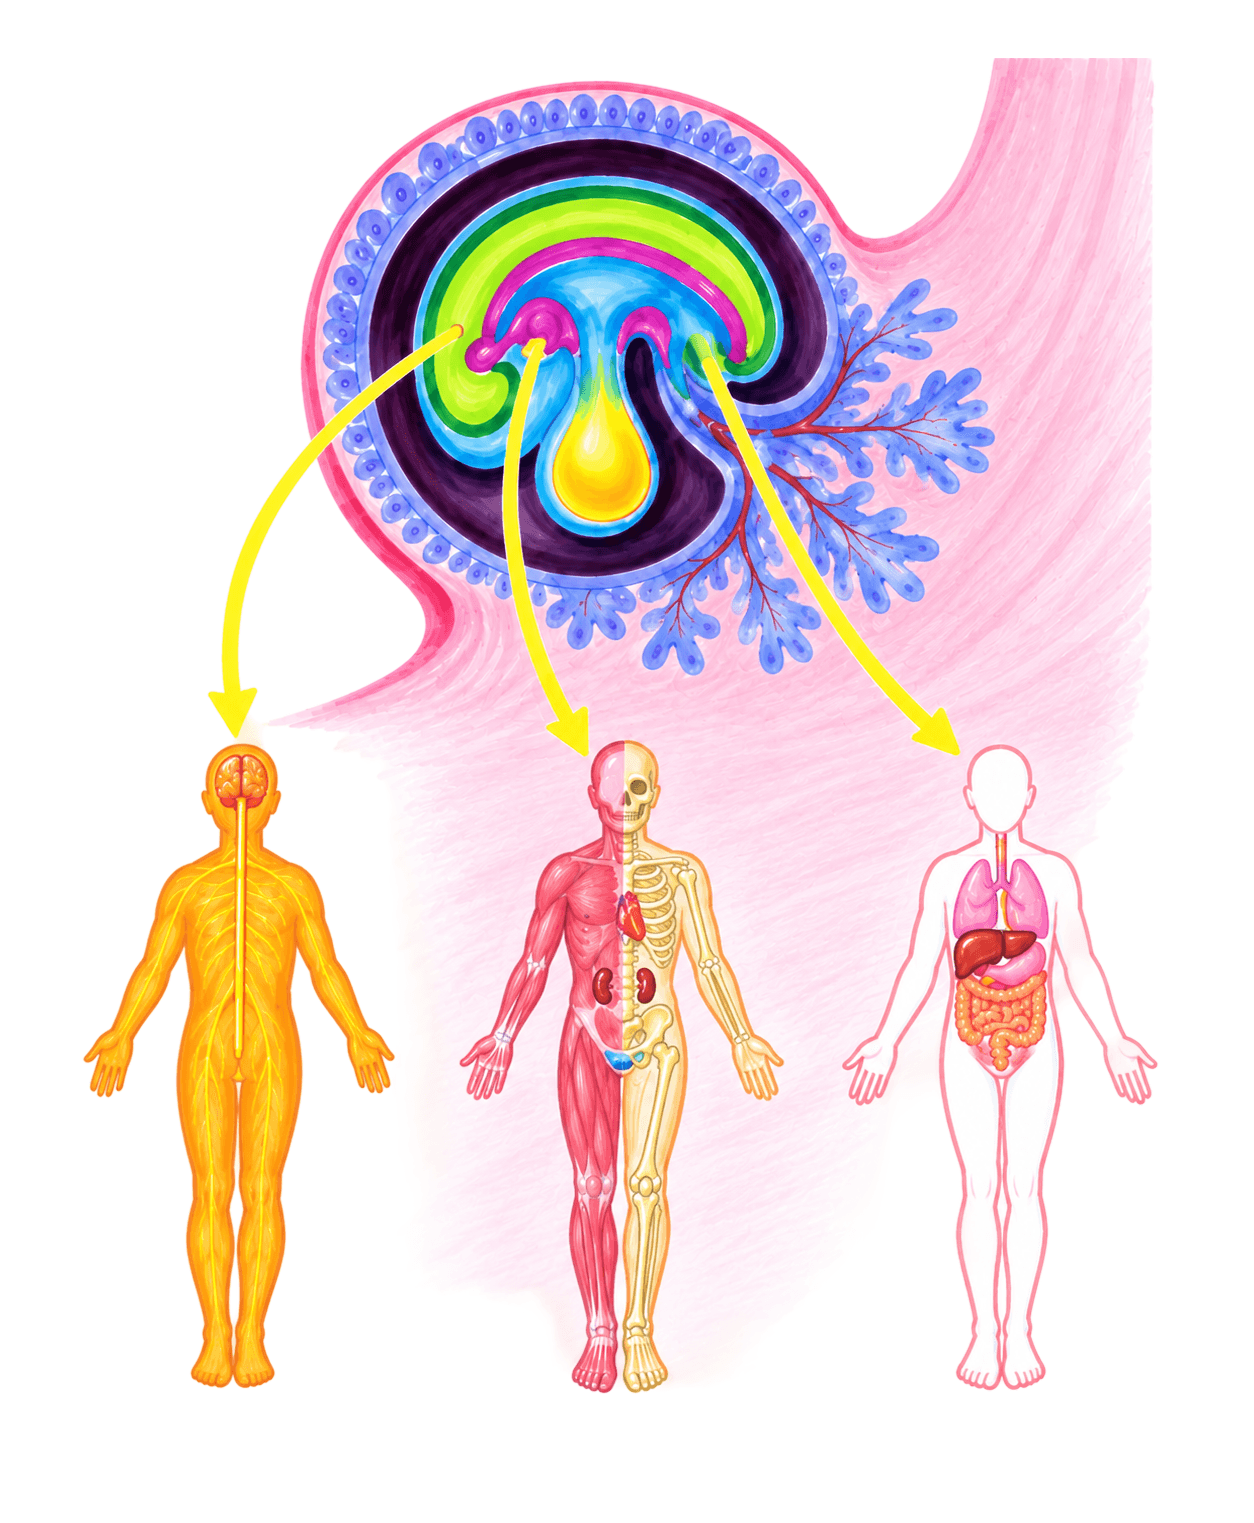
Fig. 110 · Biologie Corint · p. 123
Originea embrionară a aparatelor, sistemelor și organelorFigura arată de unde provin aparatele, sistemele și organele corpului. Sus este desenat embrionul, în secțiune, cufundat în peretele uterului, iar în interiorul lui se deosebesc trei straturi suprapuse: ectodermul, mezodermul și endodermul. Din fiecare strat pleacă câte o săgeată, care coboară spre o siluetă de om. Cele trei siluete nu înfățișează trei oameni diferiți, ci același corp, în care de fiecare dată este desenat alt grup de organe. Citește figura de sus în jos: alege un strat, urmărește săgeata care pleacă din el și uită-te ce organe apar în silueta la care ajunge. Embrionul din peretele uterului Fecundația este internă și are loc în trompa uterină, în apropierea capătului ei dinspre ovar. Rezultă zigotul, care face călătoria spre locul de implantare, uterul, și în același timp se divide, căpătând aspectul de embrion. Locul fusese pregătit dinainte: progesteronul produce modificări histologice și secretorii în mucoasa uterină, pe care o pregătește pentru fixarea oului, numită nidare. În figură, embrionul este deja fixat în grosimea peretelui uterin, înconjurat de un inel întunecat și de ramificații care pătrund în perete. De aici încolo, creșterea și dezvoltarea produsului de concepție sunt asigurate de organismul matern, prin modificările biologice care definesc gestația sau sarcina, până la naștere, după aproximativ 280 de zile. Cele trei straturi ale embrionului Straturile se recunosc după poziția lor, de la exterior spre interior: Ectodermul este stratul de la exterior dintre cele trei. Formează o bandă groasă, care le învelește pe celelalte două pe deasupra și pe margini. Mezodermul este stratul din mijloc, prins între ectoderm, deasupra, și endoderm, dedesubt. Endodermul este stratul cel mai din interior, cuprins sub arcul mezodermului. Se continuă în jos, în jurul unui sac rotunjit care atârnă în partea de jos a embrionului. Urmărește săgețile Fiecare săgeată leagă un strat de grupul de organe care se formează din el: Din ectoderm, săgeata coboară spre prima siluetă. În ea este evidențiată toată suprafața corpului, adică pielea, pe care manualul o descrie drept „învelișul protector și sensibil al organismului”. Sub piele se văd encefalul, în cap, și măduva spinării, care coboară pe mijlocul trunchiului. Împreună, ele formează sistemul nervos central, iar din măduvă pleacă nervii, desenați ca o rețea care se ramifică în tot corpul. Din mezoderm, săgeata ajunge la silueta din mijloc. În ea sunt desenate oasele și mușchii, adică sistemul osos și cel muscular, împreună cu inima, în torace, și cei doi rinichi, mai jos, de o parte și de alta a liniei mediane. Textul manualului leagă și el oasele de embrion: prin osteogeneză, țesutul cartilaginos sau conjunctivo-fibros al embrionului se transformă în scheletul osos al adultului (Figura 63). Din endoderm, săgeata duce la ultima siluetă, în care se văd doar organele din interior: plămânii, care umplu toracele, iar sub ei ficatul și tubul digestiv, cu intestinele strânse în abdomen. De la o celulă la organism Toate aceste organe provin, până la urmă, dintr-o singură celulă, zigotul, ultima etapă din Figura 106. În el, cei 23 de cromozomi ai pronucleului masculin și cei 23 ai pronucleului feminin realcătuiesc un set complet de 46 de cromozomi (23 de perechi). La începutul manualului se arată că organele sunt formate din grupări de celule și țesuturi care s-au diferențiat pentru a îndeplini anumite funcții, iar organele lucrează în strânsă corelație, grupate în sisteme de organe. Nivelurile acestea, de la celulă la organism, sunt înșirate în Figura 4.
- DOrganismul — un tot unitarPaginile 124 - 126
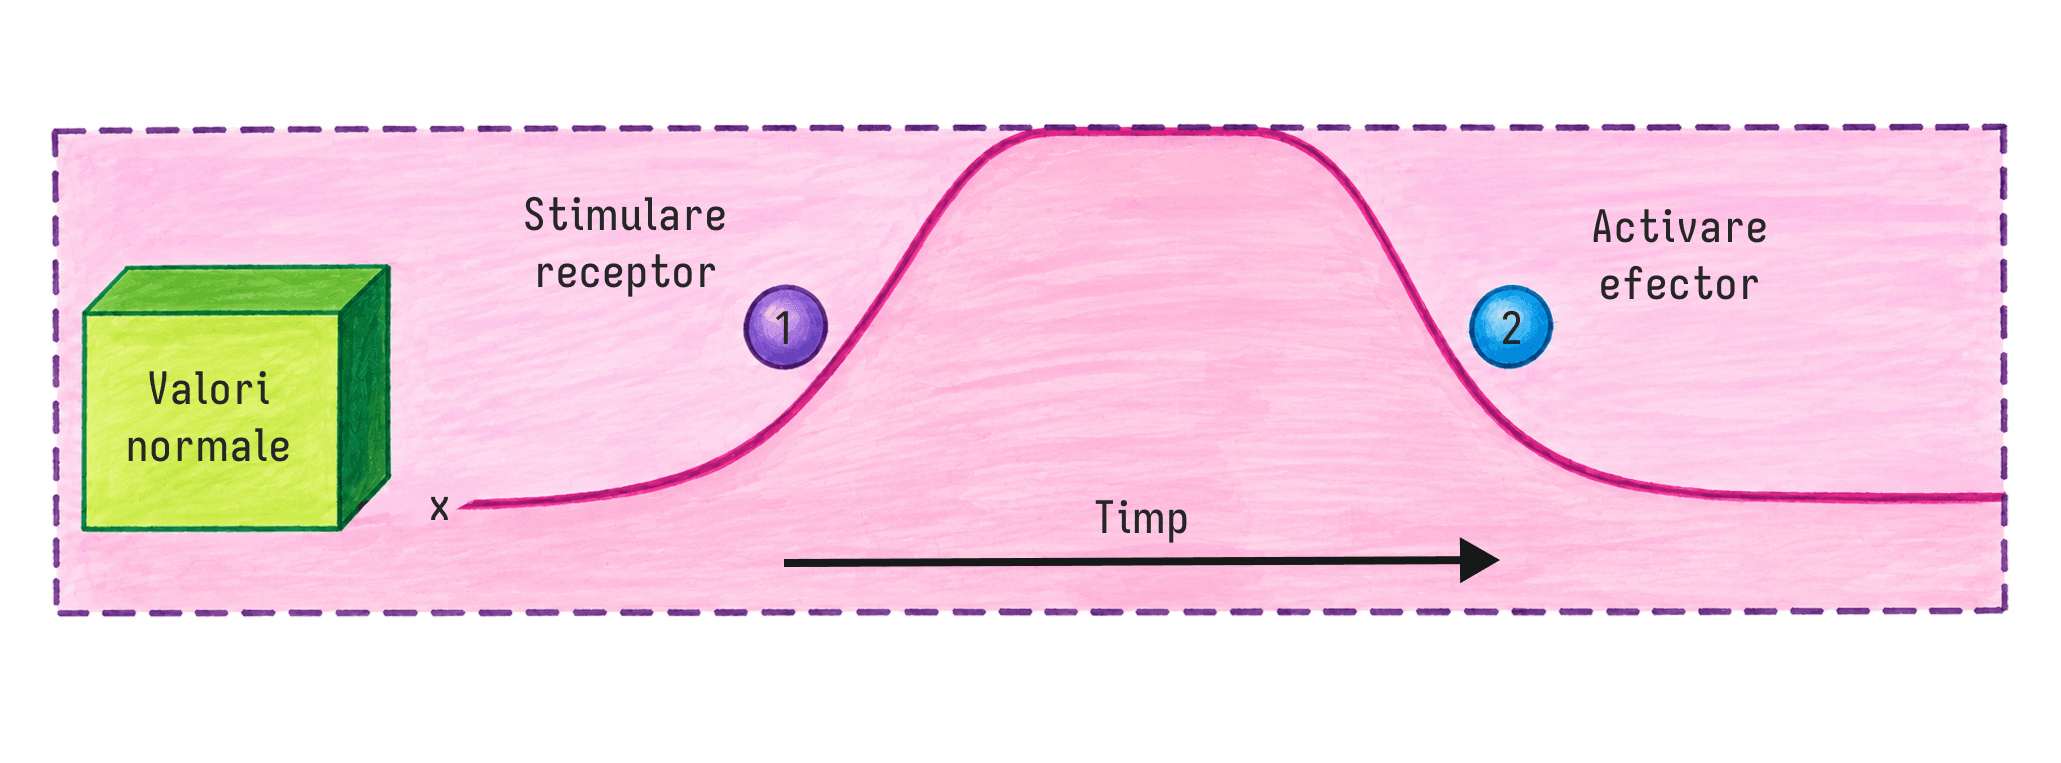
Fig. 111 · Biologie Corint · p. 124
Schema unui mecanism de reglareFigura desenează un mecanism de reglare ca pe un grafic. Curba urmărește valoarea unui factor al mediului intern, notat cu x: cu cât urcă mai sus, cu atât valoarea factorului este mai mare. Graficul se citește de la stânga la dreapta, în sensul săgeții „Timp” de jos, iar blocul „Valori normale” din stânga arată punctul de plecare: la început, factorul are o valoare normală. Cele două momente ale reglării Curba pleacă de jos, din dreptul literei x, urcă, se menține un timp sus și apoi coboară înapoi. Pe cele două porțiuni înclinate, cifrele încercuite 1 și 2 dau ordinea celor două momente: Stimulare receptor, pe urcuș. Valoarea factorului crește peste nivelul normal, iar această creștere este stimulul care acționează asupra receptorilor mediului intern: chemoreceptorii, baroreceptorii și termoreceptorii. Activare efector, pe coborâș. Pe baza informațiilor primite de la receptori, efectorii intră în acțiune, iar valoarea factorului revine la nivelul normal. Între cele două momente, curba rămâne sus, adică valoarea se menține peste normal până intervin efectorii. În dreapta, curba se așază din nou la nivelul de la care a plecat. Valori normale, între anumite limite Manualul numește homeostazie mecanismele de reglare ca acesta, care mențin constantele dinamice ale mediului intern și funcțiile vitale. Datorită lor, oricum ar varia condițiile din afara organismului, unele valori ale componentelor mediului intern și unele caracteristici ale lui, precum pH-ul și temperatura, rămân între anumite limite, considerate normale. Tabelul cu principalele constante fiziologice, de la pagina 126, dă multe dintre aceste valori tot ca intervale, de exemplu pH-ul sangvin între 7,38 și 7,42 și glicemia între 65 și 110 mg/dl. Așa se înțelege și de ce aceste constante sunt numite dinamice: valoarea lor se poate abate de la normal, ca în desen, dar este readusă la el. Bucla de feedback Manualul precizează că reglarea se face prin bucle de feedback, nervos sau umoral, ca urmare a interacțiunii receptor-efector. Figura 112 desenează aceeași reglare ca buclă și reia cifrele încercuite: 1 stă lângă ↑x, creșterea peste nivelul normal, iar 2 lângă ↓x, revenirea la nivelul normal. Tot acolo apare și veriga pe care graficul de aici nu o arată, centrul integrator dintre receptor și efector. Rolul integrator revine sistemului nervos, sistemului endocrin și mediului intern (sânge, limfă, lichid interstițial, lichid cefalorahidian ș.a.). Reglarea se realizează și prin efectori antagonici: insulină/glucagon pentru glicemie și vasoconstricție/vasodilatație pentru controlul temperaturii corpului.
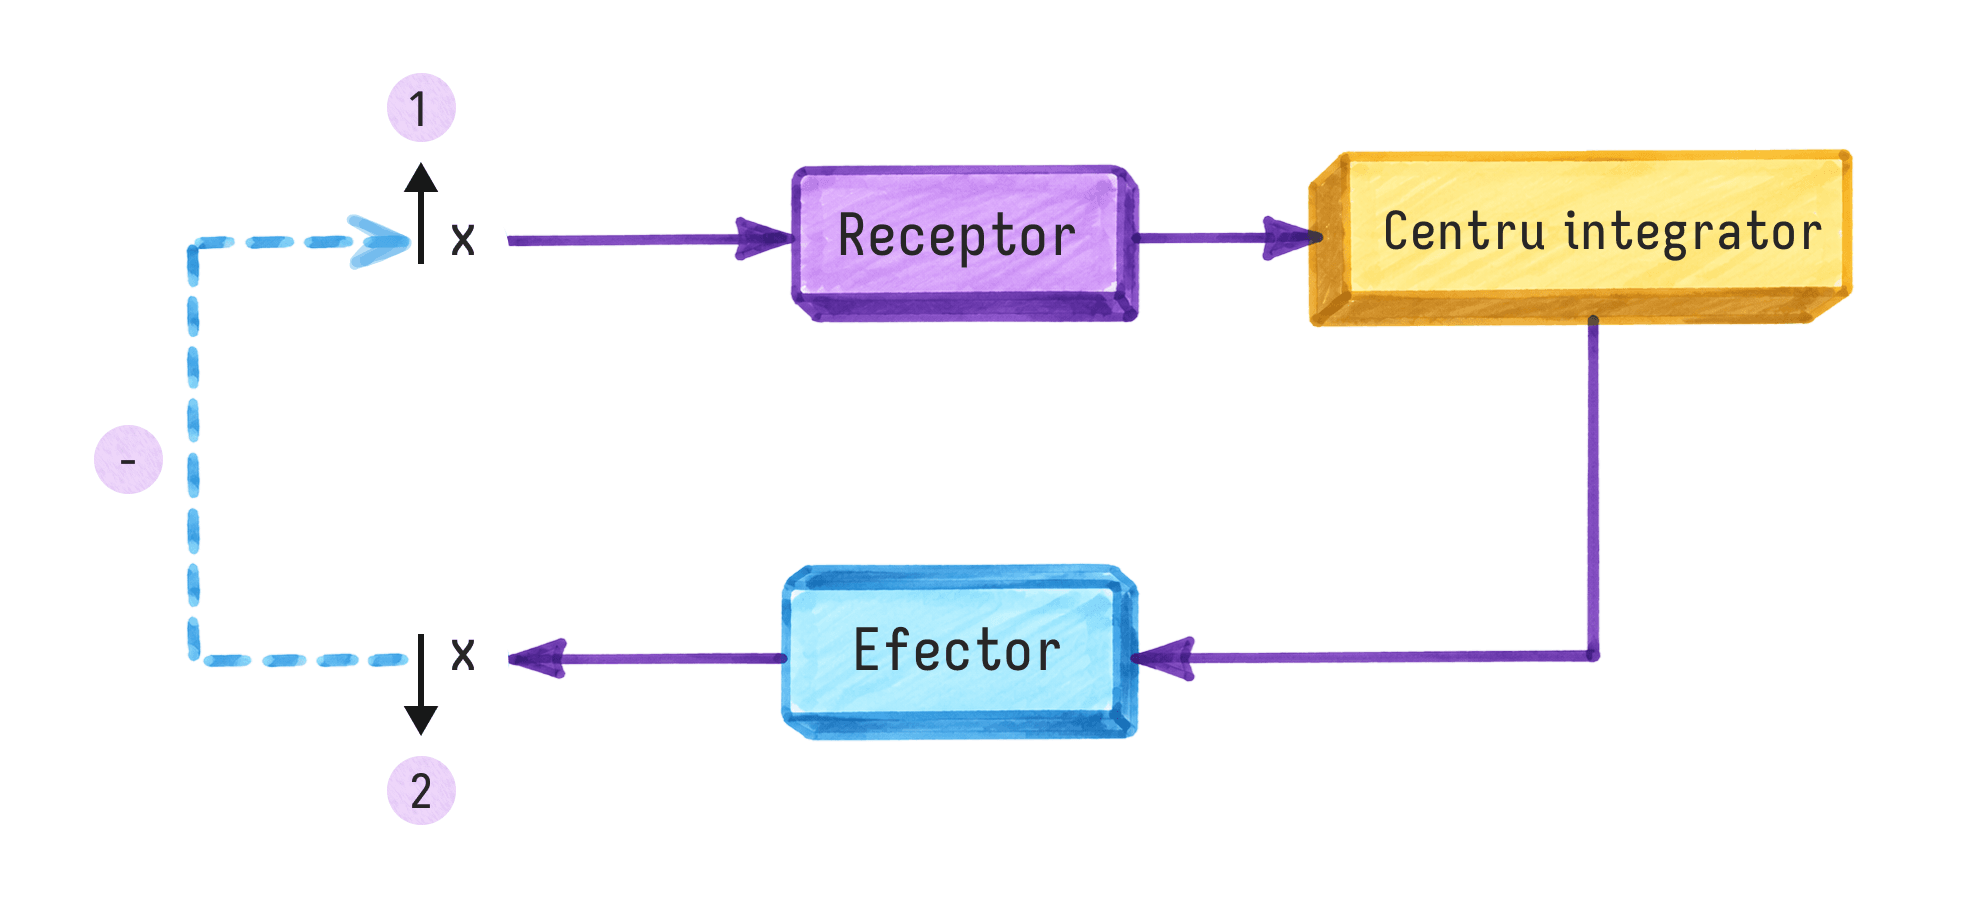
Fig. 112 · Biologie Corint · p. 125
Reglarea unor constante fiziologice prin buclă de feedbackFigura arată, sub forma unei scheme cu blocuri și săgeți, cum lucrează mecanismele de reglare care mențin constantele dinamice ale mediului intern, mecanisme care pot fi denumite, pe scurt, homeostazie. Datorită lor, unele valori și caracteristici ale mediului intern, precum pH-ul sau temperatura, rămân între anumite limite, considerate normale, indiferent de variațiile din afara organismului. Manualul explică notațiile de la capetele schemei: ↑ x reprezintă creșterea peste nivelul normal al unui factor al mediului intern, iar ↓ x semnifică revenirea la nivelul normal. Așadar, în schemă intră o abatere și iese corectarea ei. Cum se parcurge schema Se pornește din stânga sus, de la ↑ x, cu cifra încercuită 1 deasupra. De aici, o săgeată duce spre dreapta, la receptor. Din receptor, săgeata continuă spre dreapta, la centrul integrator. Din centrul integrator, linia coboară pe partea dreaptă a desenului și se întoarce spre stânga, până la efector. Din efector, o săgeată duce spre stânga, la ↓ x, cu cifra încercuită 2 dedesubt. De la ↓ x pornește o linie întreruptă care ocolește schema prin stânga, trece pe lângă un semn minus încercuit și urcă înapoi la ↑ x, unde se termină cu vârful săgeții. Ea închide bucla. Cele trei verigi Receptorul este veriga la care ajunge abaterea. Manualul dă ca receptori ai mediului intern chemoreceptorii, baroreceptorii și termoreceptorii. Centrul integrator primește informația de la receptor și o transmite mai departe, spre efector. Rolul integrator revine sistemului nervos, sistemului endocrin și mediului intern (sânge, limfă, lichid interstițial, lichid cefalorahidian și altele). Efectorul este veriga care acționează: homeostazia este realizată de către efectori, pe baza informațiilor primite de la receptori, iar în schemă acțiunea lui duce la ↓ x, revenirea la normal. Manualul adaugă că reglarea se realizează și prin efectori antagonici, cu efecte opuse: insulina (singurul hormon hipoglicemiant) și glucagonul, sau vasoconstricția și vasodilatația, în controlul temperaturii corpului. De ce este o buclă de feedback Manualul spune că reglarea se face prin bucle de feedback, nervos sau umoral, ca urmare a interacțiunii receptor-efector. În desen, bucla este închisă de linia întreruptă: rezultatul lanțului, revenirea la normal, se întoarce asupra abaterii care l-a pornit și o anulează. Semnul minus încercuit arată că această întoarcere lucrează împotriva abaterii, adică este un feedback negativ, expresie pe care manualul o folosește la reglarea secreției unor glande endocrine. În bucla nervoasă, sistemul nervos lucrează prin mediatori chimici. Receptorul, centrul și efectorul se regăsesc printre cele cinci componente ale arcului reflex, iar săgețile dintre ele corespund căii aferente și căii eferente (Figura 16). În bucla umorală, sistemul endocrin lucrează prin hormoni. Un exemplu din manual este reglarea secreției de testosteron, care se face printr-un mecanism de feedback negativ, sub influența LH hipofizar (Figura 109). Cifrele încercuite 1 și 2 Aceleași cifre apar în graficul de pe pagina anterioară (Figura 111), care urmărește în timp valoarea factorului reglat. Acolo, cifra 1 marchează stimularea receptorului, pe porțiunea în care curba urcă peste valorile normale, iar cifra 2 marchează activarea efectorului, pe porțiunea în care curba coboară înapoi. Cele două figuri descriu așadar același mecanism, o dată ca lanț de verigi și o dată ca variație în timp. Când homeostazia are nevoie de ajutor din afară Chiar sub figură, manualul amintește că parametrii mediului intern sunt menținuți între anumite limite prin reglarea neuro-umorală a funcțiilor organismului. În anumite împrejurări însă, când unele componente ale sistemelor circulator, respirator, digestiv ori excretor au disfuncții temporare sau permanente, homeostazia se poate realiza și prin mijloace extracorporale: aparatura inimă-plămân artificial, perfuzarea sau dializa.